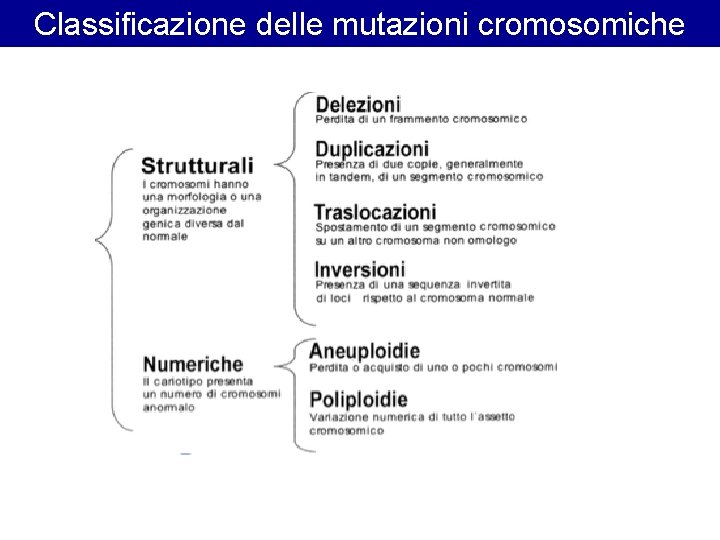
Le mutazioni cromosomiche Classificazione delle mutazioni cromosomiche La
- Slides: 98
Le mutazioni cromosomiche
Classificazione delle mutazioni cromosomiche
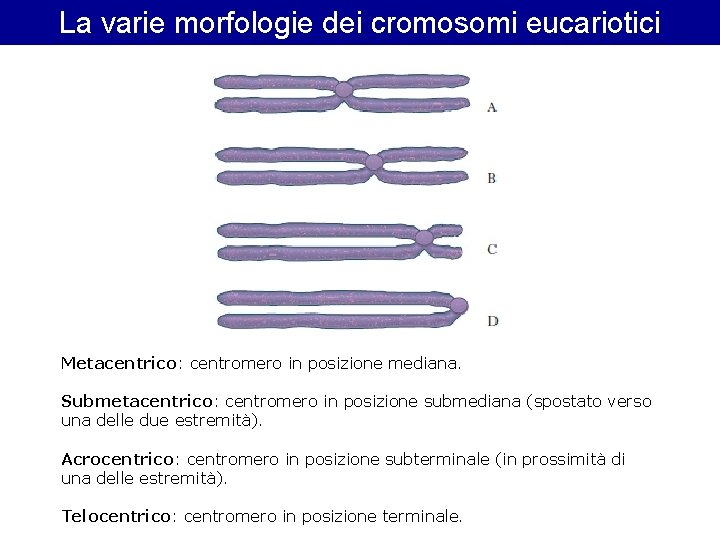
La varie morfologie dei cromosomi eucariotici Metacentrico: centromero in posizione mediana. Submetacentrico: centromero in posizione submediana (spostato verso una delle due estremità). Acrocentrico: centromero in posizione subterminale (in prossimità di una delle estremità). Telocentrico: centromero in posizione terminale.
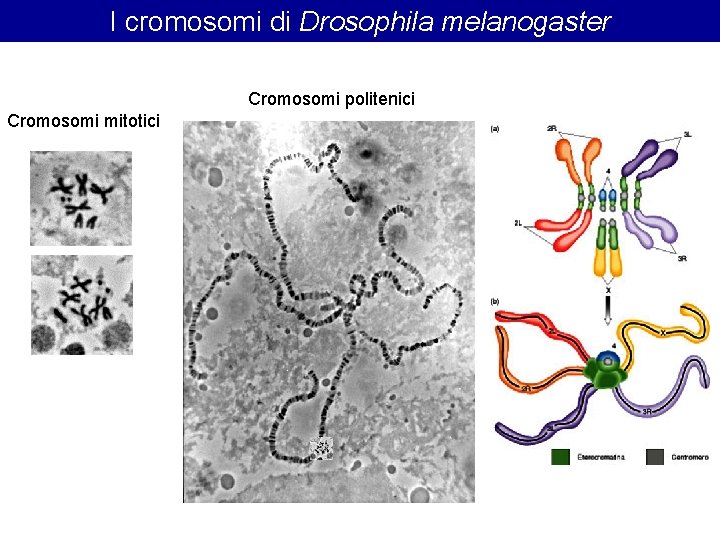
I cromosomi di Drosophila melanogaster Cromosomi politenici Cromosomi mitotici
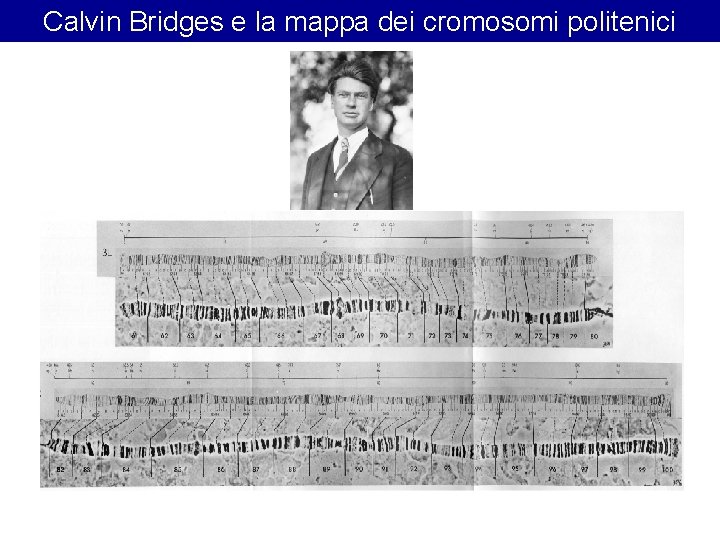
Calvin Bridges e la mappa dei cromosomi politenici
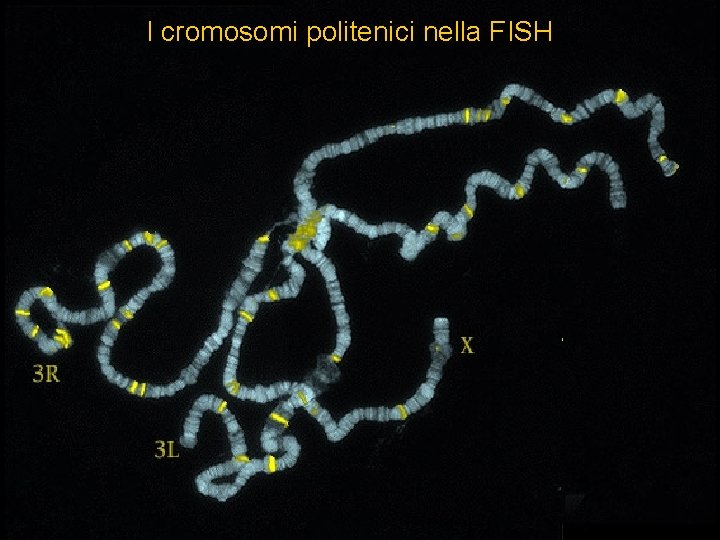
I cromosomi politenici nella FISH
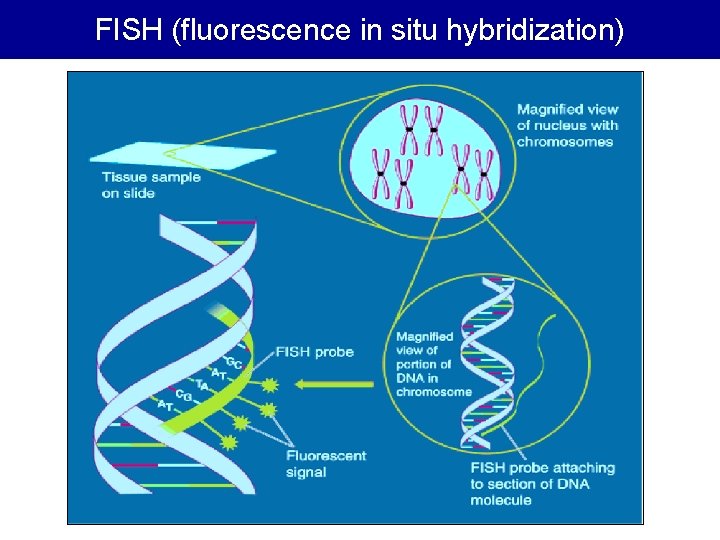
FISH (fluorescence in situ hybridization)
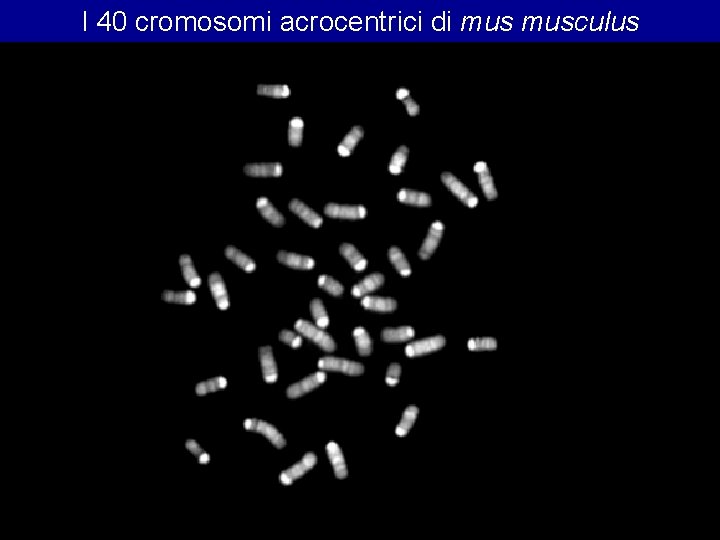
I 40 cromosomi acrocentrici di musculus
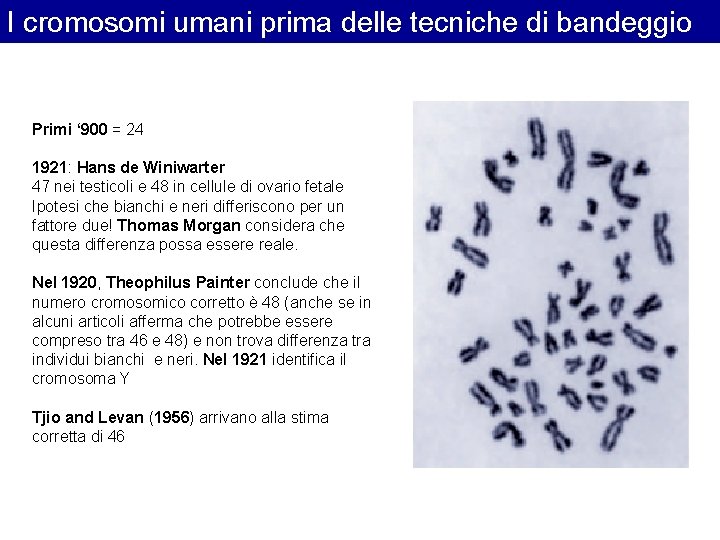
I cromosomi umani prima delle tecniche di bandeggio Primi ‘ 900 = 24 1921: Hans de Winiwarter 47 nei testicoli e 48 in cellule di ovario fetale Ipotesi che bianchi e neri differiscono per un fattore due! Thomas Morgan considera che questa differenza possa essere reale. Nel 1920, Theophilus Painter conclude che il numero cromosomico corretto è 48 (anche se in alcuni articoli afferma che potrebbe essere compreso tra 46 e 48) e non trova differenza tra individui bianchi e neri. Nel 1921 identifica il cromosoma Y Tjio and Levan (1956) arrivano alla stima corretta di 46
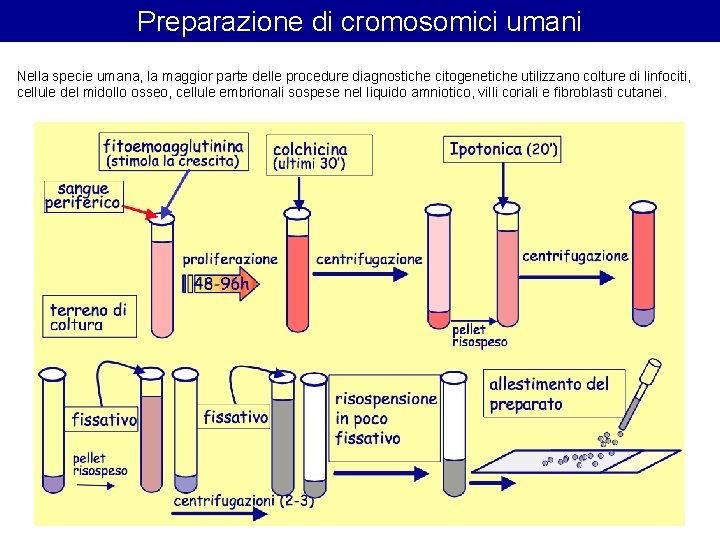
Preparazione di cromosomici umani Nella specie umana, la maggior parte delle procedure diagnostiche citogenetiche utilizzano colture di linfociti, cellule del midollo osseo, cellule embrionali sospese nel liquido amniotico, villi coriali e fibroblasti cutanei.
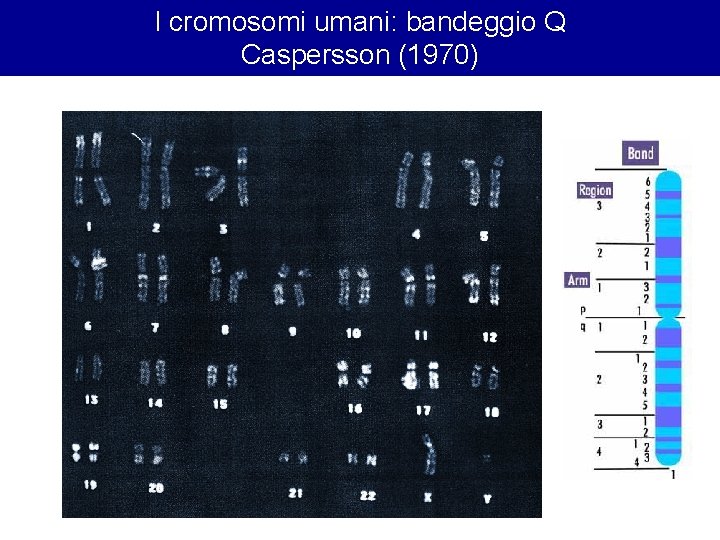
I cromosomi umani: bandeggio Q Caspersson (1970)
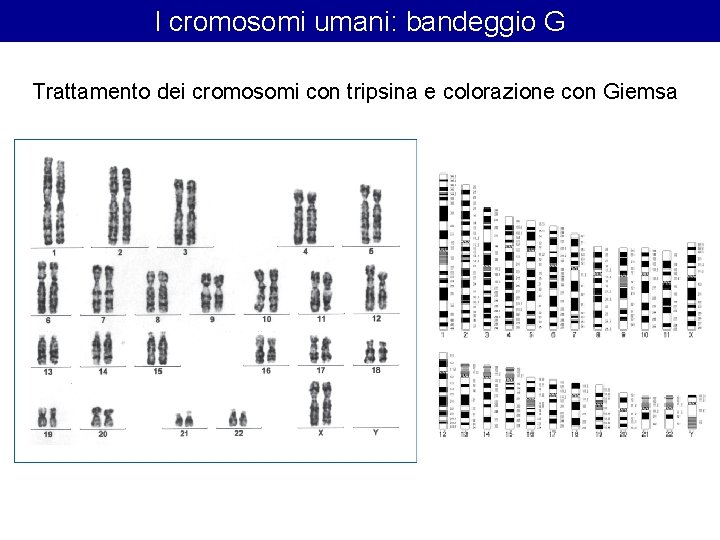
I cromosomi umani: bandeggio G Trattamento dei cromosomi con tripsina e colorazione con Giemsa
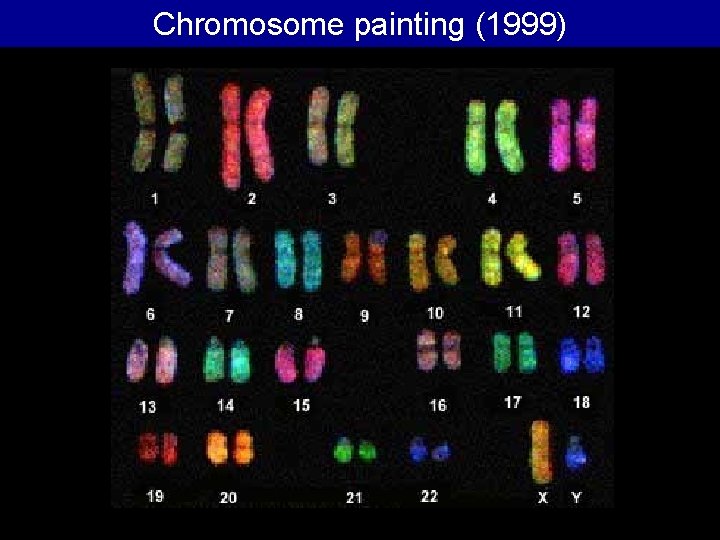
Chromosome painting (1999)
Le mutazioni cromosomiche di struttura
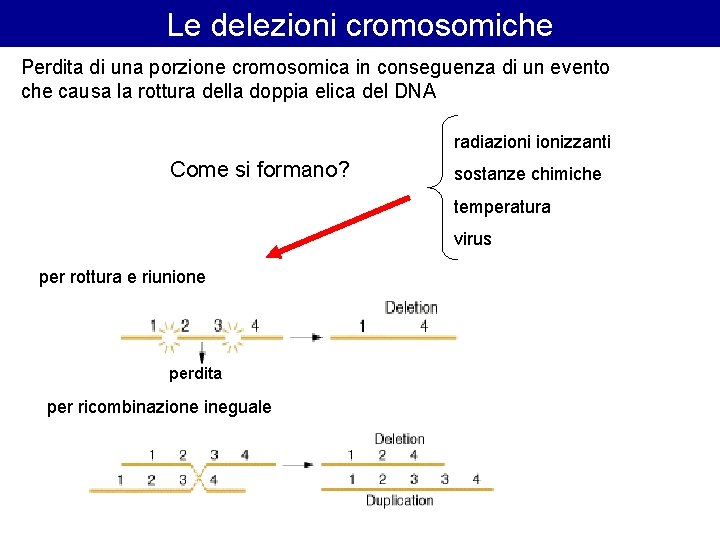
Le delezioni cromosomiche Perdita di una porzione cromosomica in conseguenza di un evento che causa la rottura della doppia elica del DNA radiazionizzanti Come si formano? sostanze chimiche temperatura virus per rottura e riunione perdita per ricombinazione ineguale
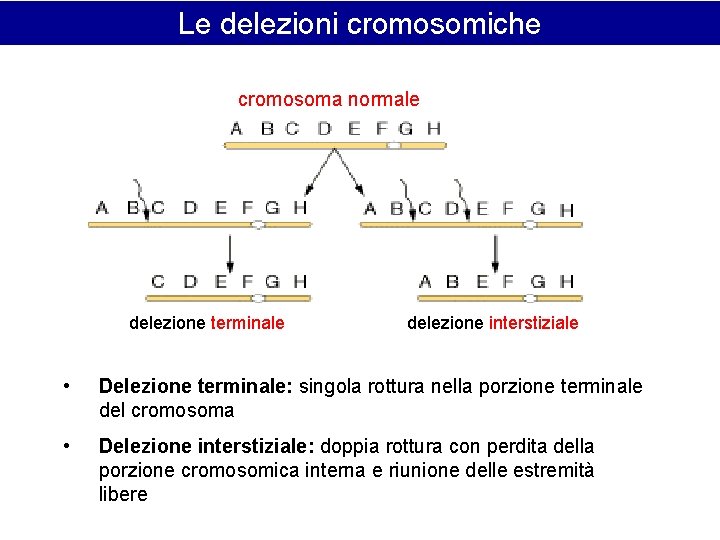
Le delezioni cromosomiche cromosoma normale delezione terminale delezione interstiziale • Delezione terminale: singola rottura nella porzione terminale del cromosoma • Delezione interstiziale: doppia rottura con perdita della porzione cromosomica interna e riunione delle estremità libere
Effetti sulla vitalità Le delezioni cromosomiche multigeniche sono letali in omozigosi a causa dello sbilanciamento genico che producono (perdita totale di molti geni) Le delezioni cromosomiche in eterozigosi sono letali se rimuovono geni aplo-insufficienti. In caso contrario, possono essere vitali e causano alterazioni nell’appaiamento dei cromosomi omologhi alla meiosi.
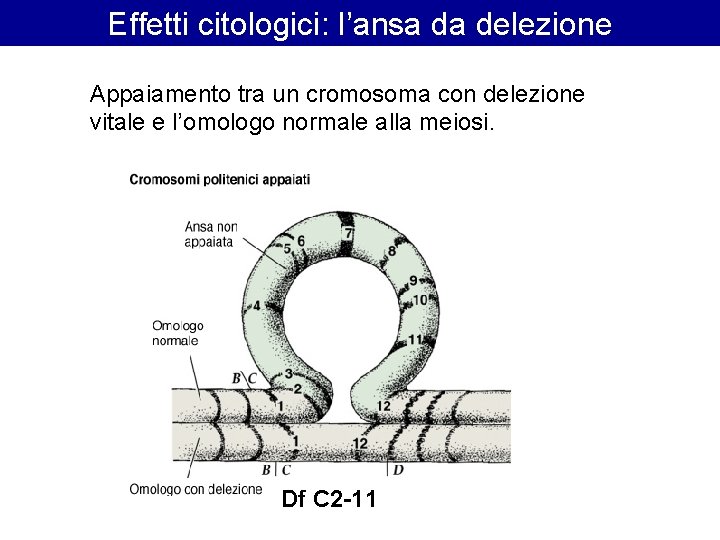
Effetti citologici: l’ansa da delezione Appaiamento tra un cromosoma con delezione vitale e l’omologo normale alla meiosi. Df C 2 -11
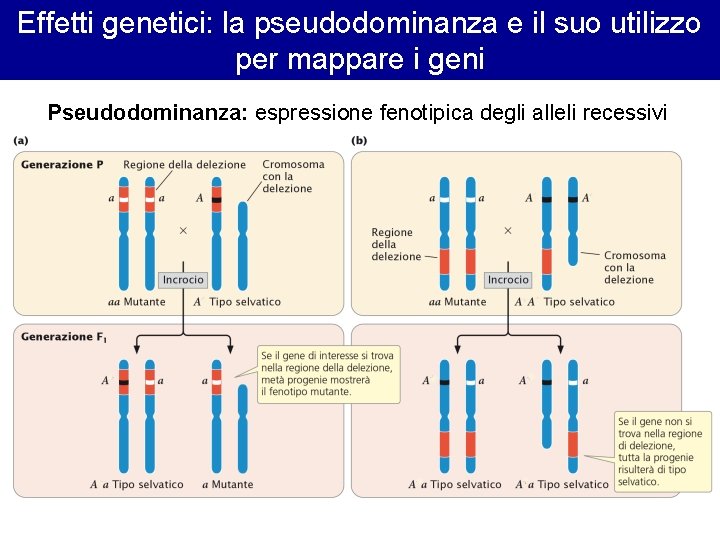
Effetti genetici: la pseudodominanza e il suo utilizzo per mappare i geni Pseudodominanza: espressione fenotipica degli alleli recessivi
Mappatura di geni per delezione In Drosophila per mappare i geni sui cromosomi politenici si è sfruttata la pseudodominanza. Si incrociano moscerini omozigoti per l’allele recessivo m (del gene m+) che in omozigosi produce un fenotipo mutante con moscerini che portano una delezione e si esamina la progenie m/Df Se la progenie m/Df mostra fenotipo mutante significa che la delezione “scopre” la mutazione recessiva m e quindi il gene m+ mappa nella regione corrispondente alla delezione Se invece m/Df mostra fenotipo selvatico, il gene m+ non è compreso nella regione corrispondente alla delezione
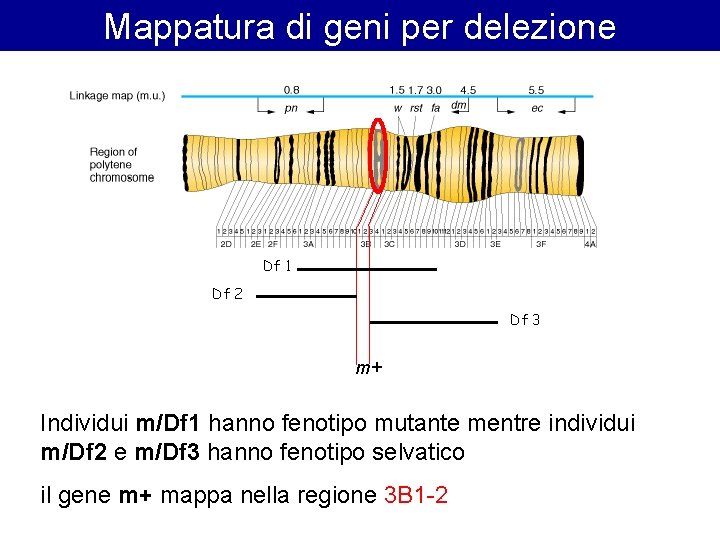
Mappatura di geni per delezione Df 1 Df 2 Df 3 m+ Individui m/Df 1 hanno fenotipo mutante mentre individui m/Df 2 e m/Df 3 hanno fenotipo selvatico il gene m+ mappa nella regione 3 B 1 -2
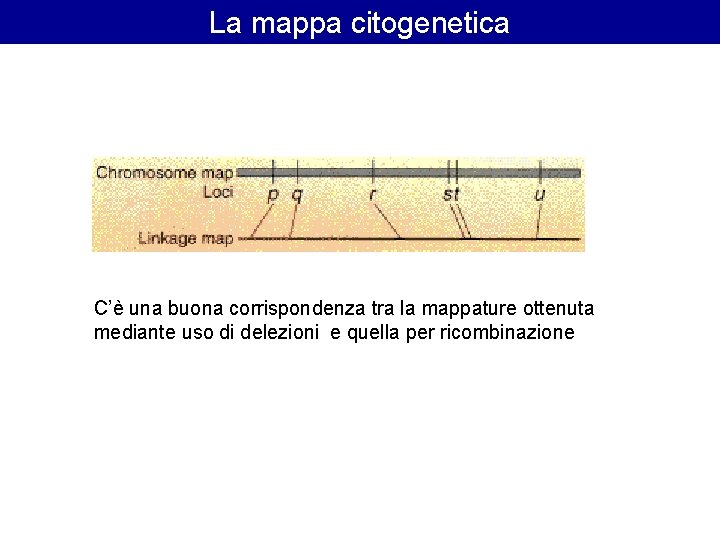
La mappa citogenetica C’è una buona corrispondenza tra la mappature ottenuta mediante uso di delezioni e quella per ricombinazione
Effetti genetici delle delezioni cromosomiche nella specie umana
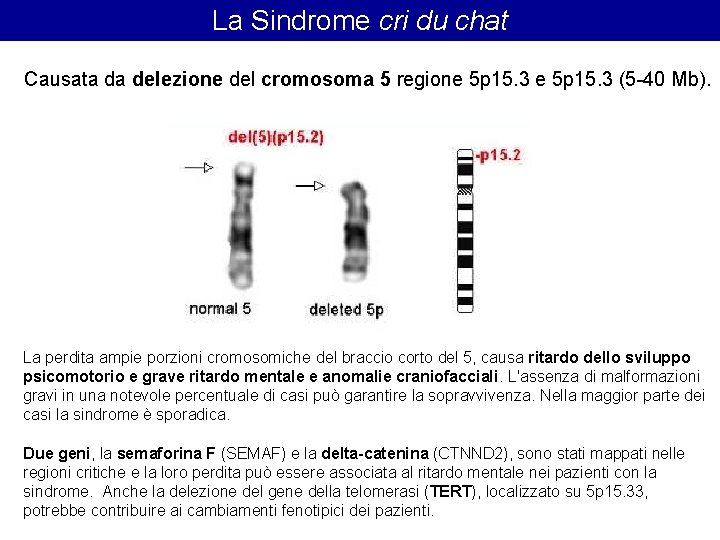
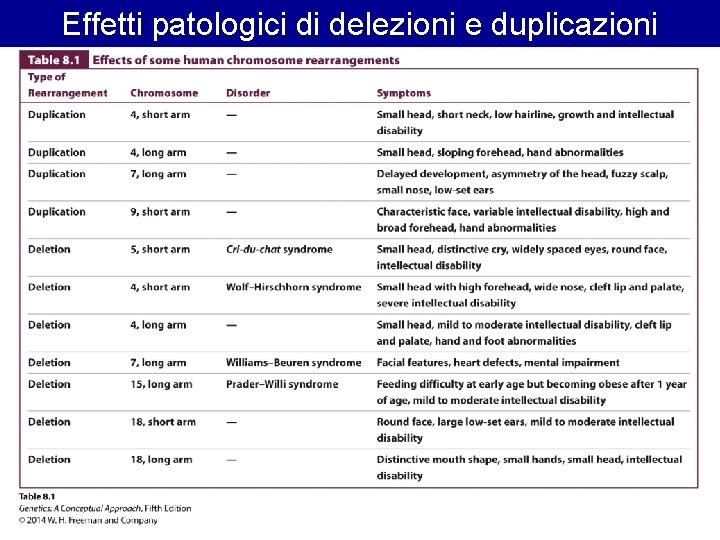
La Sindrome cri du chat Causata da delezione del cromosoma 5 regione 5 p 15. 3 (5 -40 Mb). La perdita ampie porzioni cromosomiche del braccio corto del 5, causa ritardo dello sviluppo psicomotorio e grave ritardo mentale e anomalie craniofacciali. L'assenza di malformazioni gravi in una notevole percentuale di casi può garantire la sopravvivenza. Nella maggior parte dei casi la sindrome è sporadica. Due geni, la semaforina F (SEMAF) e la delta-catenina (CTNND 2), sono stati mappati nelle regioni critiche e la loro perdita può essere associata al ritardo mentale nei pazienti con la sindrome. Anche la delezione del gene della telomerasi (TERT), localizzato su 5 p 15. 33, potrebbe contribuire ai cambiamenti fenotipici dei pazienti.
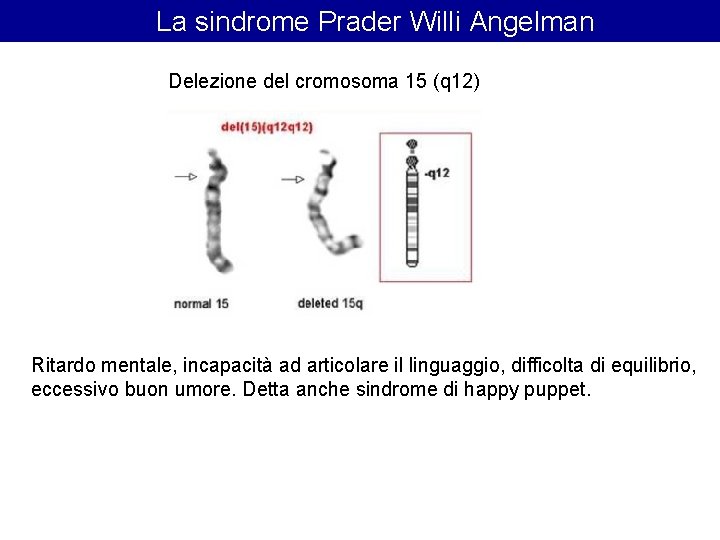
La sindrome Prader Willi Angelman Delezione del cromosoma 15 (q 12) Ritardo mentale, incapacità ad articolare il linguaggio, difficolta di equilibrio, eccessivo buon umore. Detta anche sindrome di happy puppet.
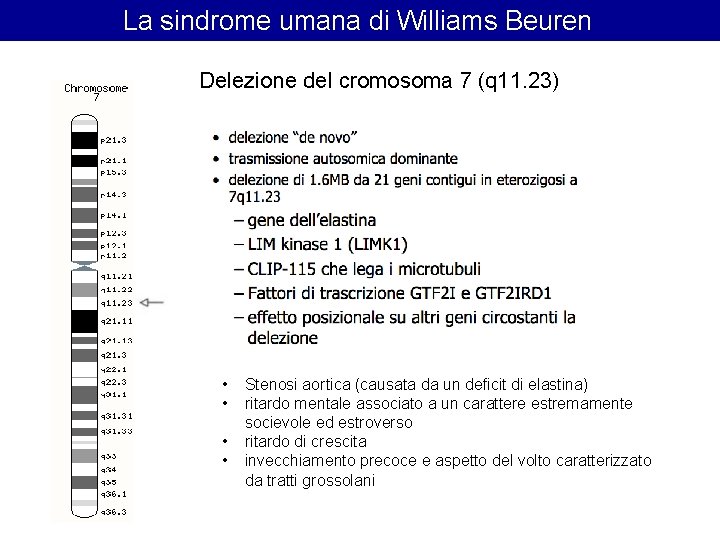
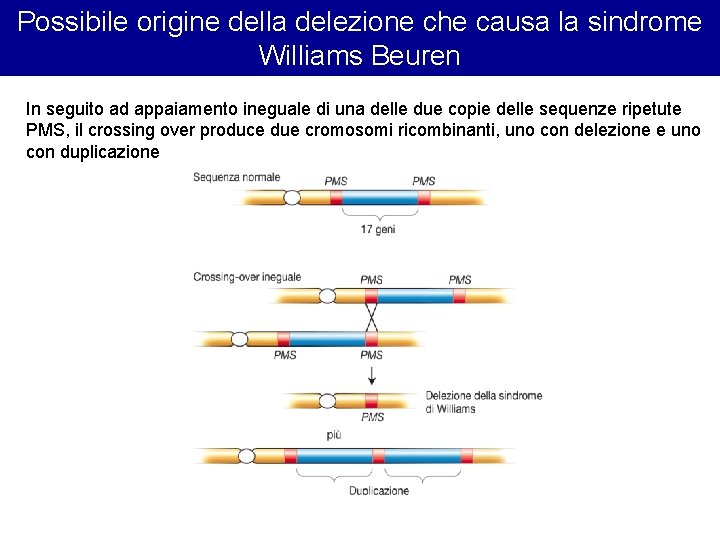
La sindrome umana di Williams Beuren Delezione del cromosoma 7 (q 11. 23) • • Stenosi aortica (causata da un deficit di elastina) ritardo mentale associato a un carattere estremamente socievole ed estroverso ritardo di crescita invecchiamento precoce e aspetto del volto caratterizzato da tratti grossolani
Possibile origine della delezione che causa la sindrome Williams Beuren In seguito ad appaiamento ineguale di una delle due copie delle sequenze ripetute PMS, il crossing over produce due cromosomi ricombinanti, uno con delezione e uno con duplicazione
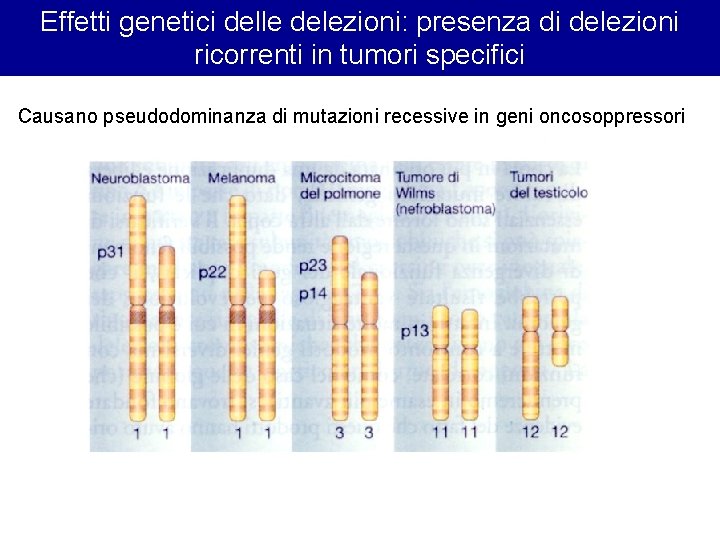
Effetti genetici delle delezioni: presenza di delezioni ricorrenti in tumori specifici Causano pseudodominanza di mutazioni recessive in geni oncosoppressori
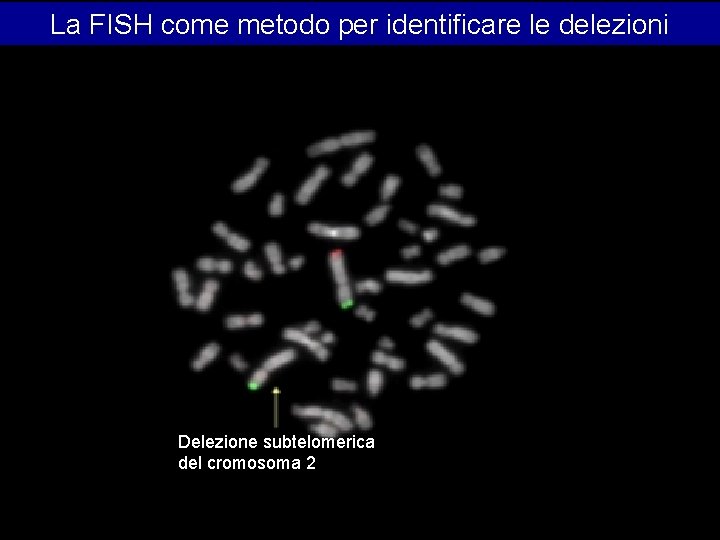
La FISH come metodo per identificare le delezioni Delezione subtelomerica del cromosoma 2:
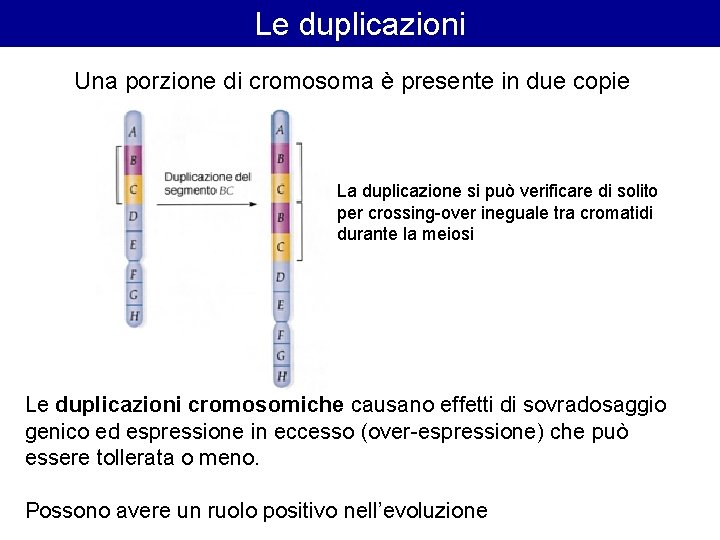
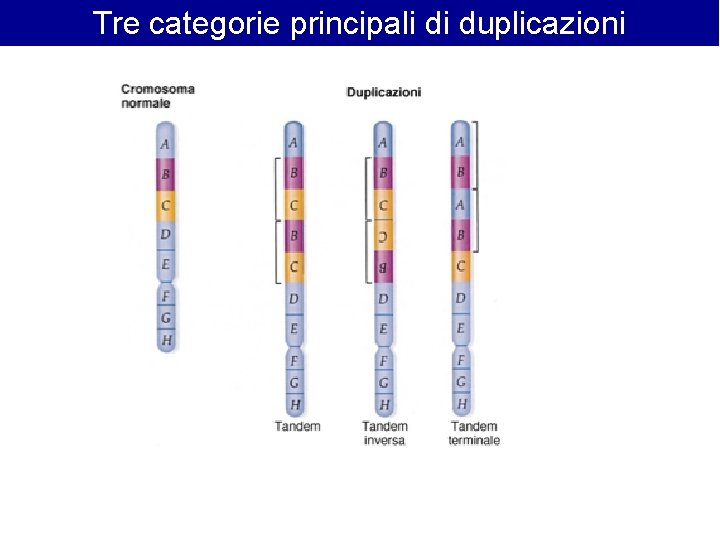
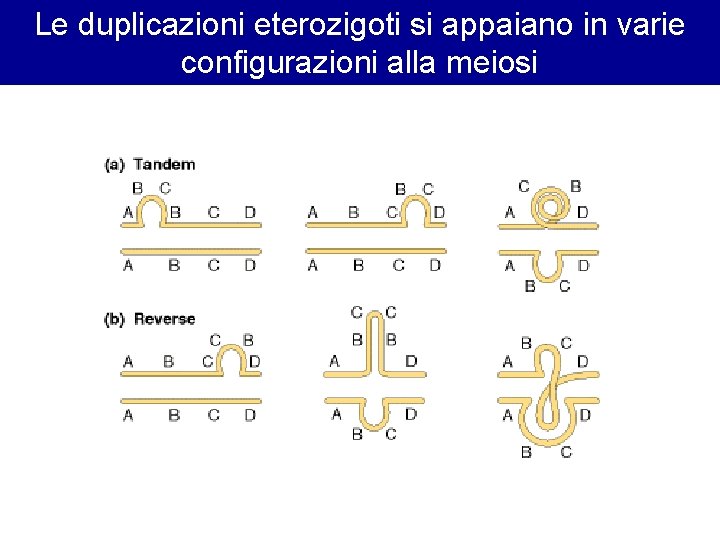
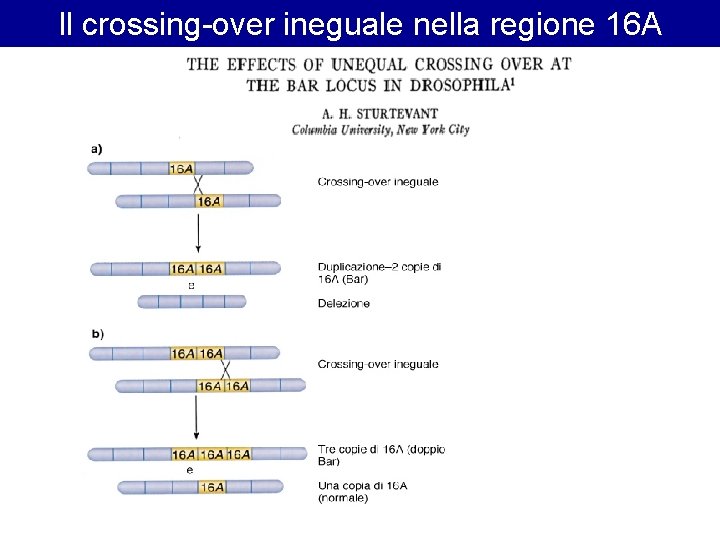
Le duplicazioni Una porzione di cromosoma è presente in due copie La duplicazione si può verificare di solito per crossing-over ineguale tra cromatidi durante la meiosi Le duplicazioni cromosomiche causano effetti di sovradosaggio genico ed espressione in eccesso (over-espressione) che può essere tollerata o meno. Possono avere un ruolo positivo nell’evoluzione
Tre categorie principali di duplicazioni
Le duplicazioni eterozigoti si appaiano in varie configurazioni alla meiosi
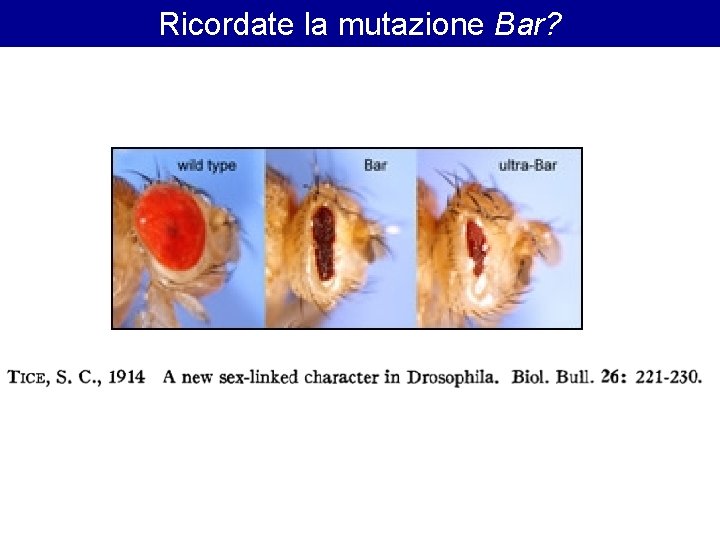
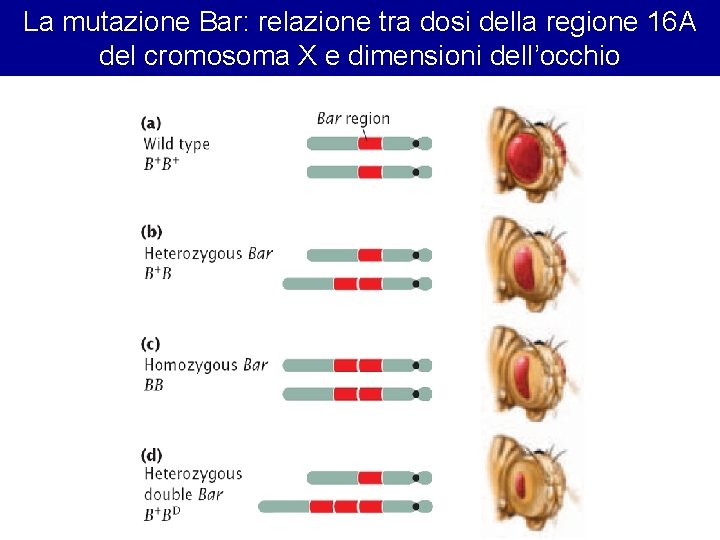
Ricordate la mutazione Bar?
Il crossing-over ineguale nella regione 16 A
La mutazione Bar: relazione tra dosi della regione 16 A del cromosoma X e dimensioni dell’occhio
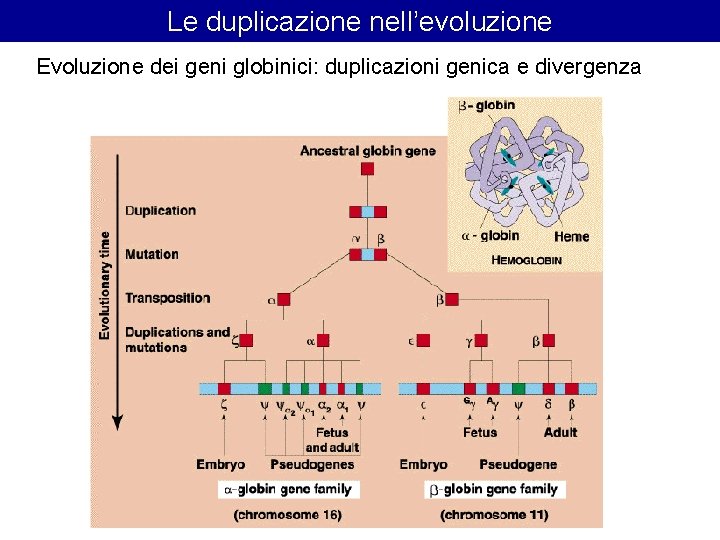
Le duplicazione nell’evoluzione Evoluzione dei geni globinici: duplicazioni genica e divergenza
Effetti patologici di delezioni e duplicazioni
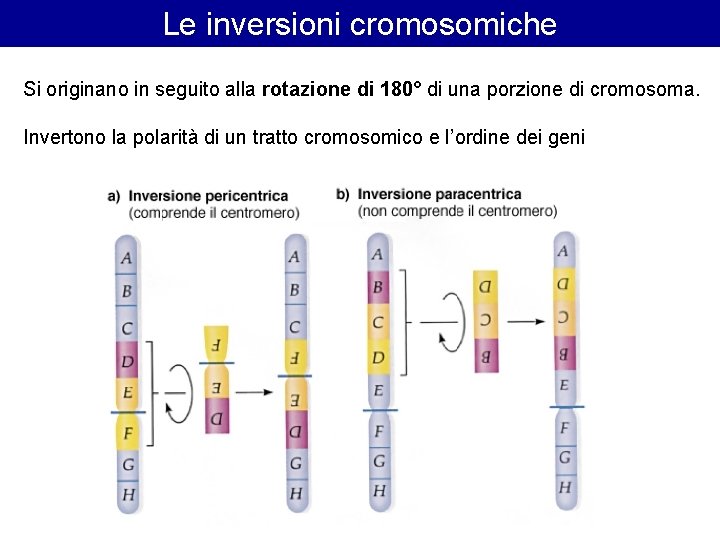
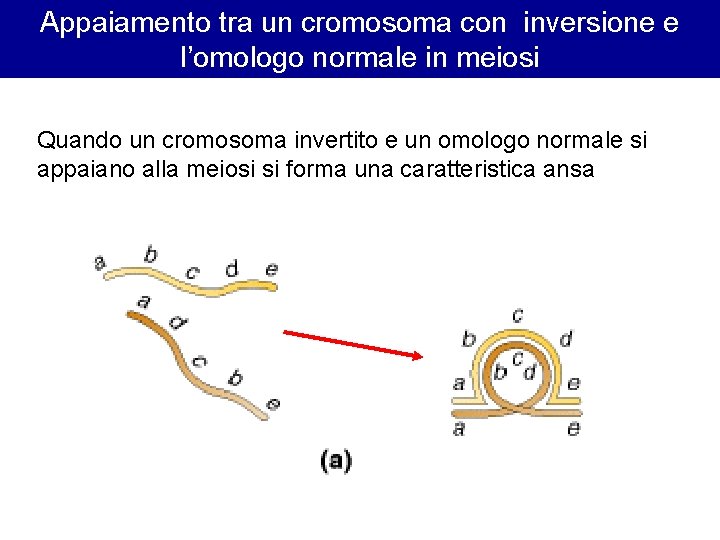
Le inversioni cromosomiche Si originano in seguito alla rotazione di 180° di una porzione di cromosoma. Invertono la polarità di un tratto cromosomico e l’ordine dei geni
Appaiamento tra un cromosoma con inversione e l’omologo normale in meiosi Quando un cromosoma invertito e un omologo normale si appaiano alla meiosi si forma una caratteristica ansa
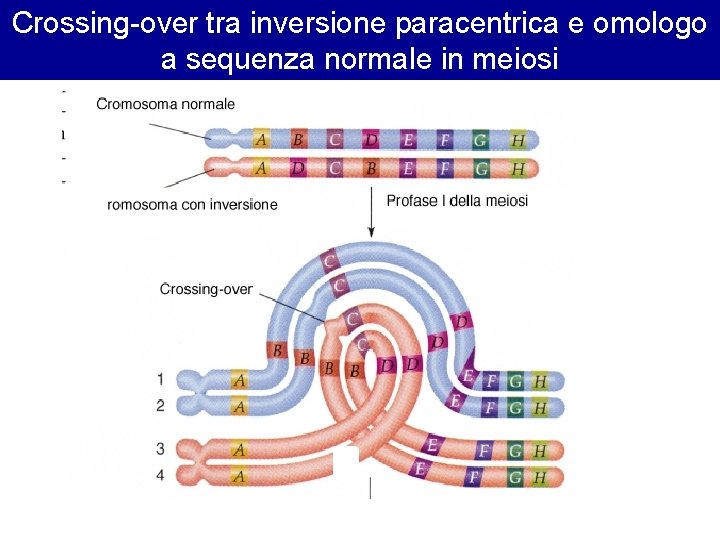
Crossing-over tra inversione paracentrica e omologo a sequenza normale in meiosi
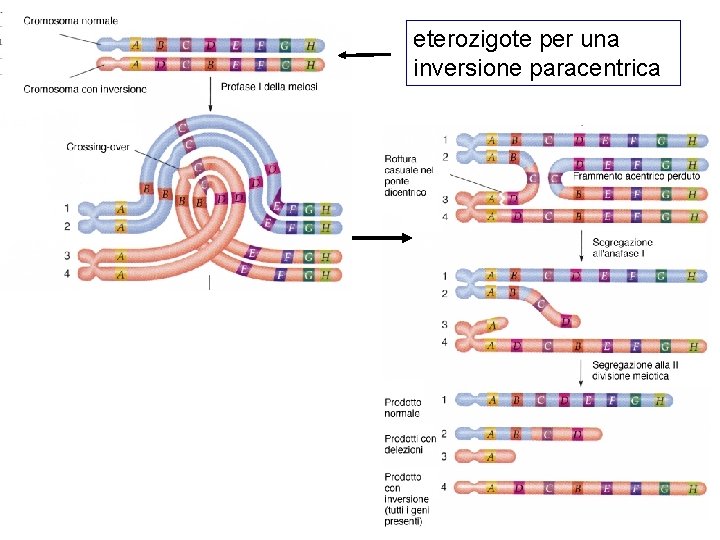
eterozigote per una inversione paracentrica
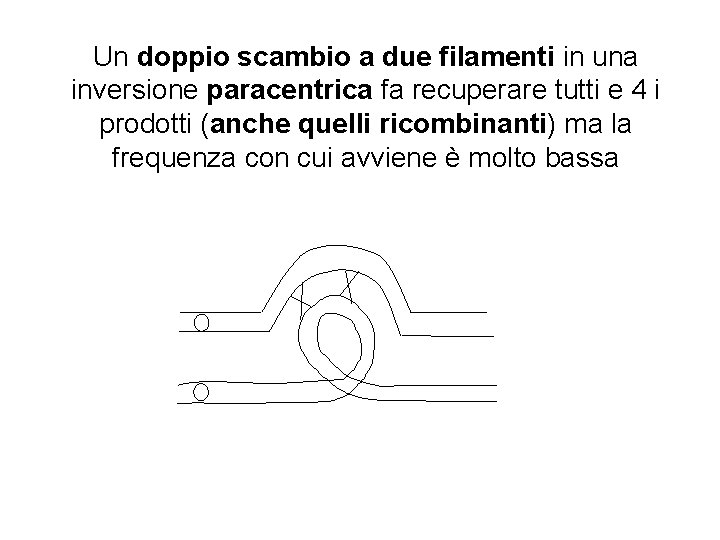
Ne consegue che: Quando avviene un singolo scambio tra un’inversione paracentrica e l’omologo normale i cromosomi ricombinanti sono letali (a livello gametico o zigotico) e i prodotti della ricombinazione non si recuperano
Un doppio scambio a due filamenti in una inversione paracentrica fa recuperare tutti e 4 i prodotti (anche quelli ricombinanti) ma la frequenza con cui avviene è molto bassa
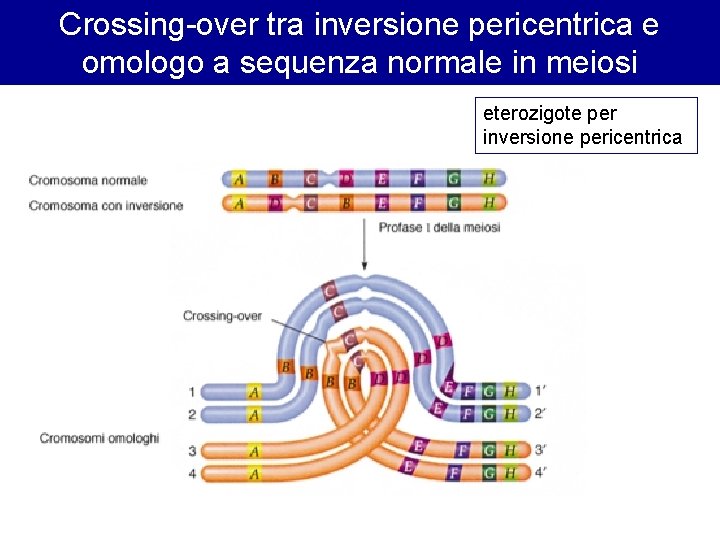
Crossing-over tra inversione pericentrica e omologo a sequenza normale in meiosi eterozigote per inversione pericentrica
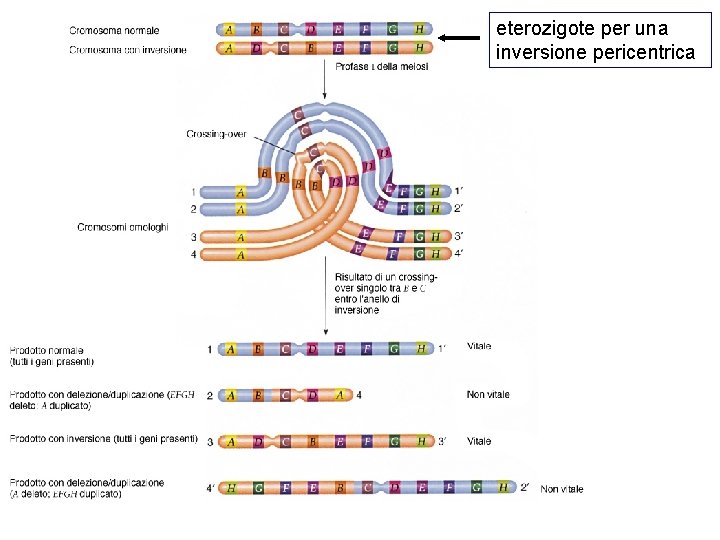
eterozigote per una inversione pericentrica
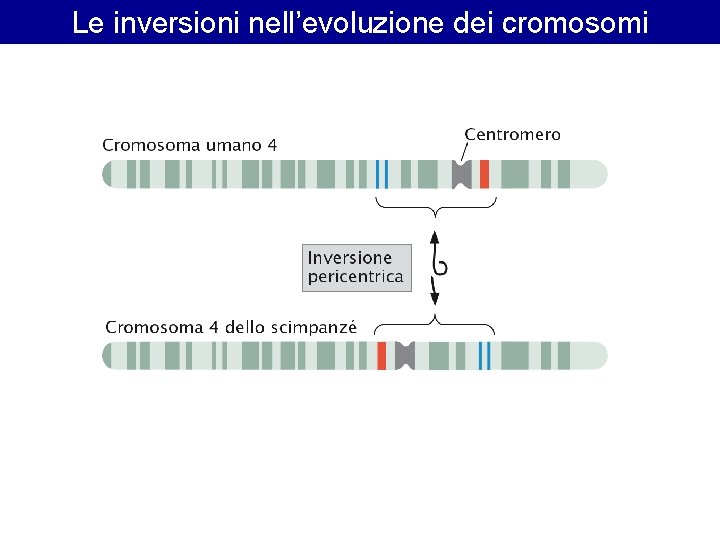
Le inversioni nell’evoluzione dei cromosomi
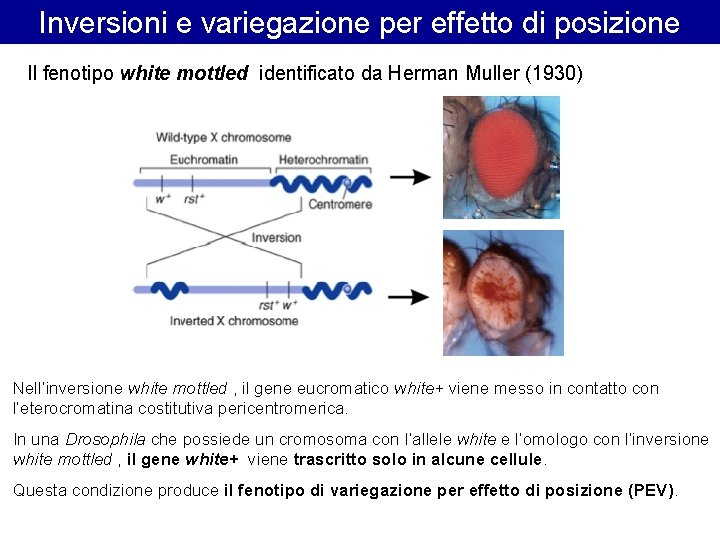
Inversioni e variegazione per effetto di posizione Il fenotipo white mottled identificato da Herman Muller (1930) Nell’inversione white mottled , il gene eucromatico white+ viene messo in contatto con l’eterocromatina costitutiva pericentromerica. In una Drosophila che possiede un cromosoma con l’allele white e l’omologo con l’inversione white mottled , il gene white+ viene trascritto solo in alcune cellule. Questa condizione produce il fenotipo di variegazione per effetto di posizione (PEV).
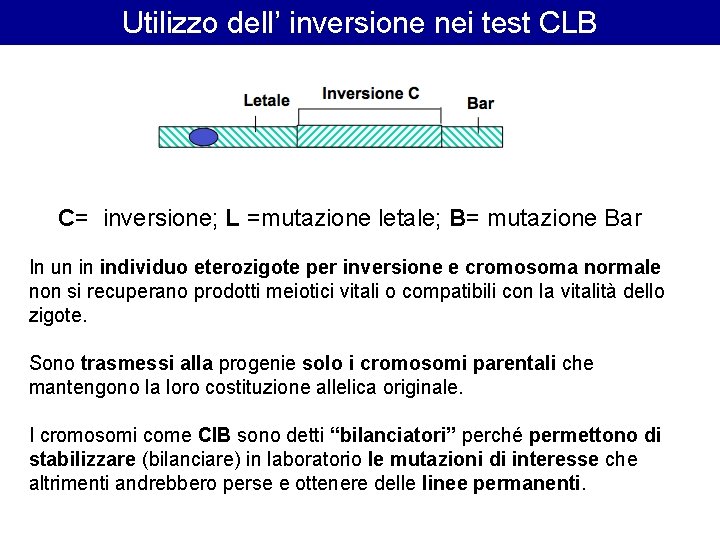
Utilizzo dell’ inversione nei test CLB C= inversione; L =mutazione letale; B= mutazione Bar In un in individuo eterozigote per inversione e cromosoma normale non si recuperano prodotti meiotici vitali o compatibili con la vitalità dello zigote. Sono trasmessi alla progenie solo i cromosomi parentali che mantengono la loro costituzione allelica originale. I cromosomi come Cl. B sono detti “bilanciatori” perché permettono di stabilizzare (bilanciare) in laboratorio le mutazioni di interesse che altrimenti andrebbero perse e ottenere delle linee permanenti.
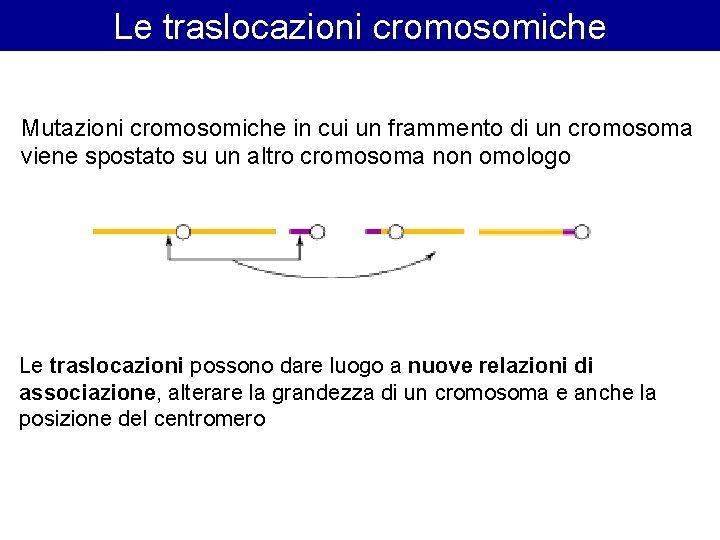
Le traslocazioni cromosomiche Mutazioni cromosomiche in cui un frammento di un cromosoma viene spostato su un altro cromosoma non omologo Le traslocazioni possono dare luogo a nuove relazioni di associazione, alterare la grandezza di un cromosoma e anche la posizione del centromero
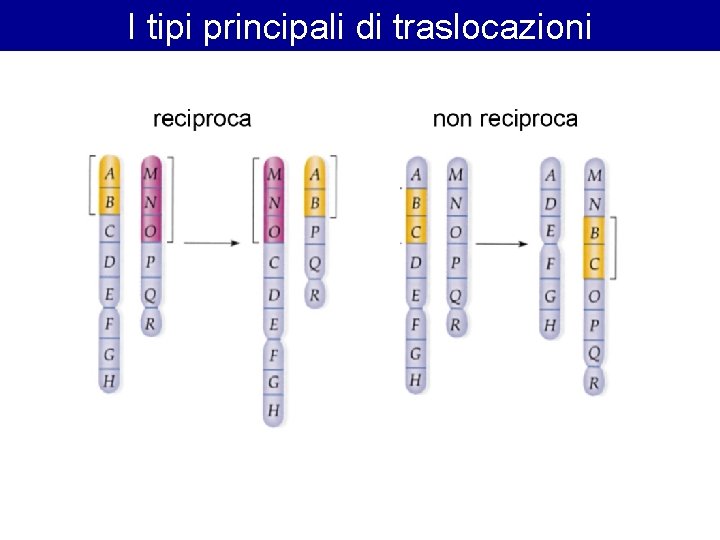
I tipi principali di traslocazioni
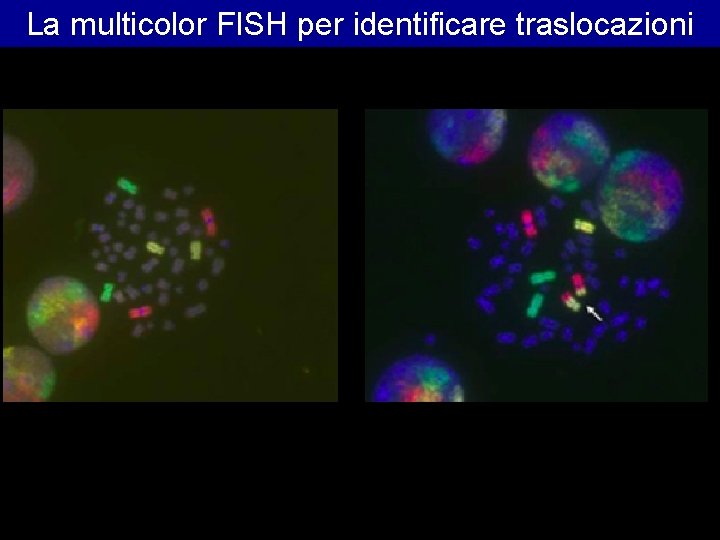
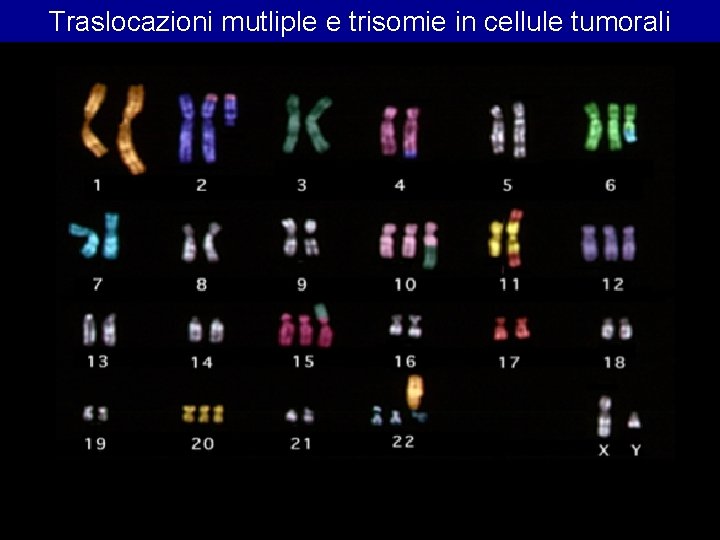
La multicolor FISH per identificare traslocazioni
Traslocazioni e cancro:
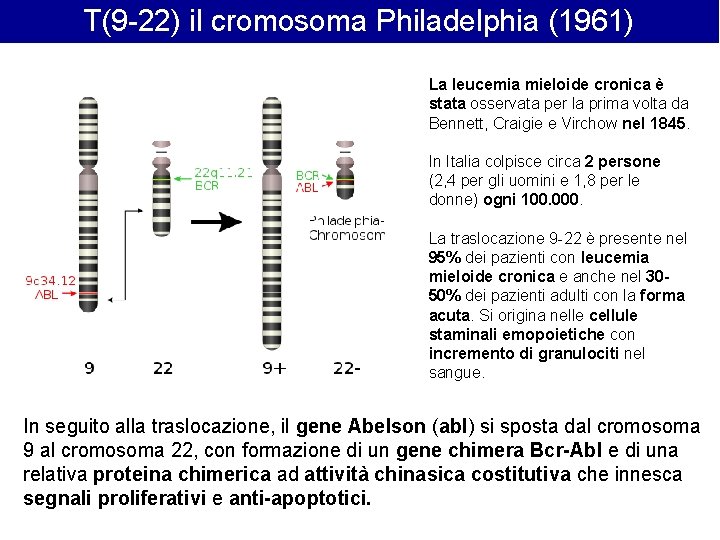
T(9 -22) il cromosoma Philadelphia (1961) La leucemia mieloide cronica è stata osservata per la prima volta da Bennett, Craigie e Virchow nel 1845. In Italia colpisce circa 2 persone (2, 4 per gli uomini e 1, 8 per le donne) ogni 100. 000. La traslocazione 9 -22 è presente nel 95% dei pazienti con leucemia mieloide cronica e anche nel 3050% dei pazienti adulti con la forma acuta. Si origina nelle cellule staminali emopoietiche con incremento di granulociti nel sangue. In seguito alla traslocazione, il gene Abelson (abl) si sposta dal cromosoma 9 al cromosoma 22, con formazione di un gene chimera Bcr-Abl e di una relativa proteina chimerica ad attività chinasica costitutiva che innesca segnali proliferativi e anti-apoptotici.
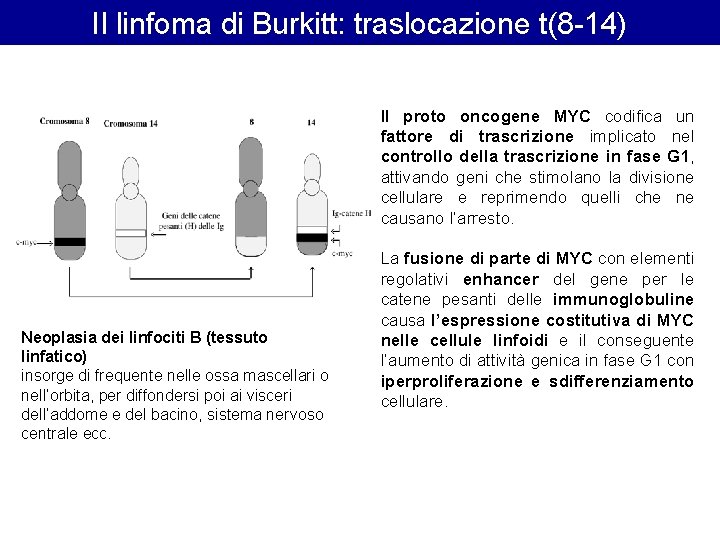
Il linfoma di Burkitt: traslocazione t(8 -14) Neoplasia dei linfociti B (tessuto linfatico) insorge di frequente nelle ossa mascellari o nell’orbita, per diffondersi poi ai visceri dell’addome e del bacino, sistema nervoso centrale ecc. Il proto oncogene MYC codifica un fattore di trascrizione implicato nel controllo della trascrizione in fase G 1, attivando geni che stimolano la divisione cellulare e reprimendo quelli che ne causano l’arresto. La fusione di parte di MYC con elementi regolativi enhancer del gene per le catene pesanti delle immunoglobuline causa l’espressione costitutiva di MYC nelle cellule linfoidi e il conseguente l’aumento di attività genica in fase G 1 con iperproliferazione e sdifferenziamento cellulare.
Traslocazioni mutliple e trisomie in cellule tumorali
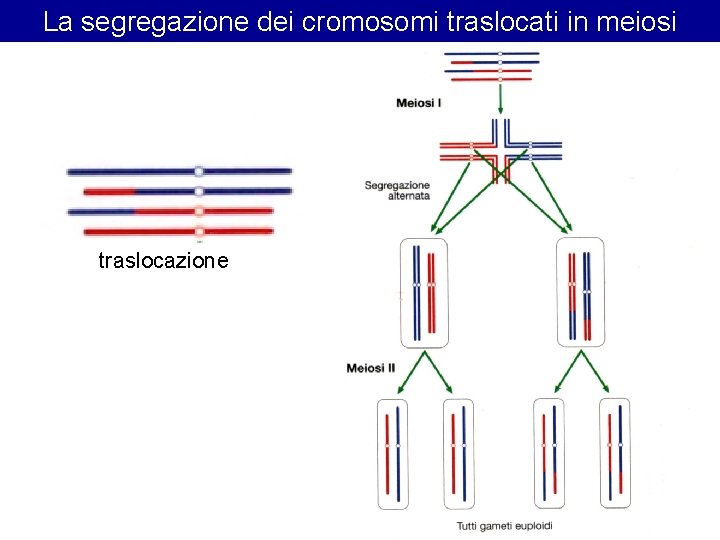
La segregazione dei cromosomi traslocati in meiosi traslocazione
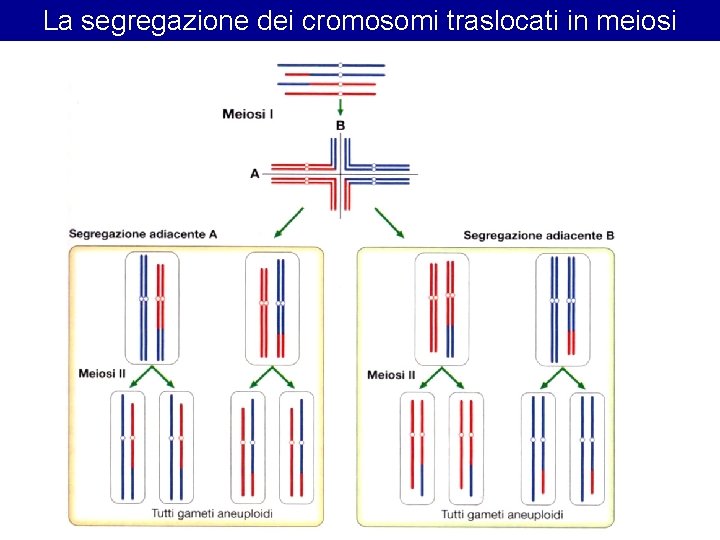
La segregazione dei cromosomi traslocati in meiosi
Tra i vari effetti prodotti, le traslocazioni (come le inversioni) possono causare una riduzione della fertilità degli individui
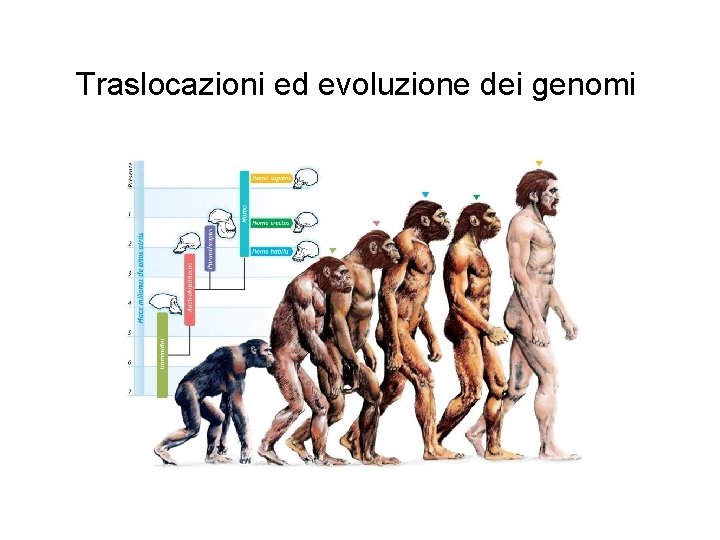
Traslocazioni ed evoluzione dei genomi
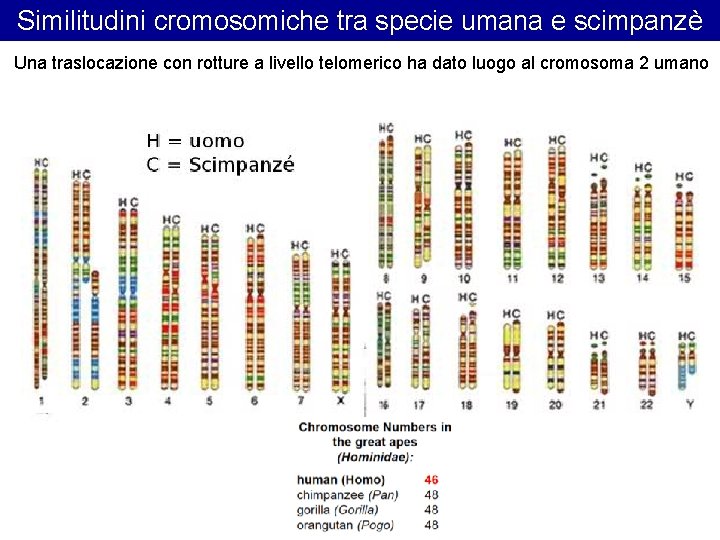
Similitudini cromosomiche tra specie umana e scimpanzè Una traslocazione con rotture a livello telomerico ha dato luogo al cromosoma 2 umano
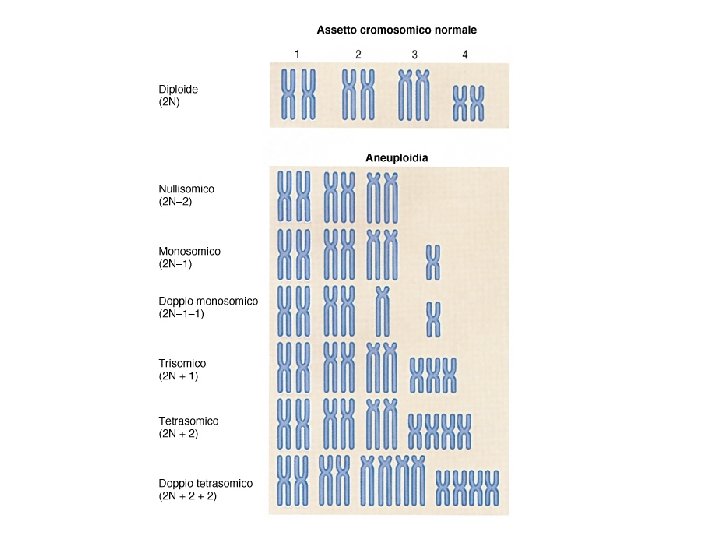
Le mutazioni del genoma 1. Variazione del numero di singoli cromosomi 2. Variazione di interi assetti cromosomici completi Una cellula (o un organismo) con un assetto cromosomico completo viene definita euploide Una cellula (o un organismo) con un numero cromosomico che non è un multiplo esatto dell’assetto cromosomico aploide viene definita aneuploide Una cellula (o un organismo) con assetti cromosomici aploidi aggiuntivi rispetto a quello di partenza viene definito poliploide (triploide, tetraploide, esaploide ecc)
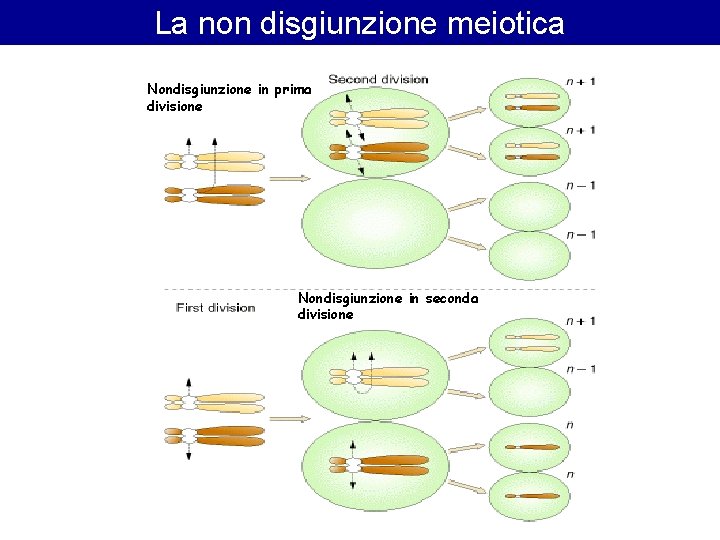
La non disgiunzione meiotica Nondisgiunzione in prima divisione Nondisgiunzione in seconda divisione
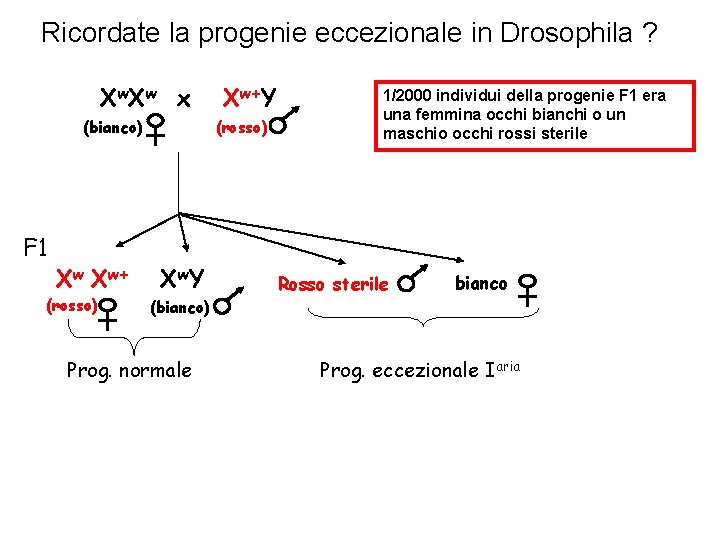
Ricordate la progenie eccezionale in Drosophila ? X w x (bianco) F 1 Xw Xw+ (rosso) Xw+Y (rosso) X w. Y 1/2000 individui della progenie F 1 era una femmina occhi bianchi o un maschio occhi rossi sterile Rosso sterile bianco (bianco) Prog. normale Prog. eccezionale Iaria
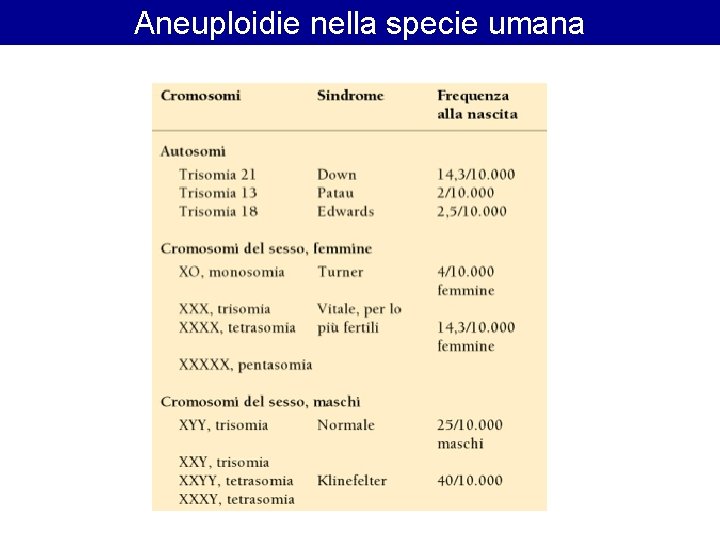
Aneuploidie nella specie umana
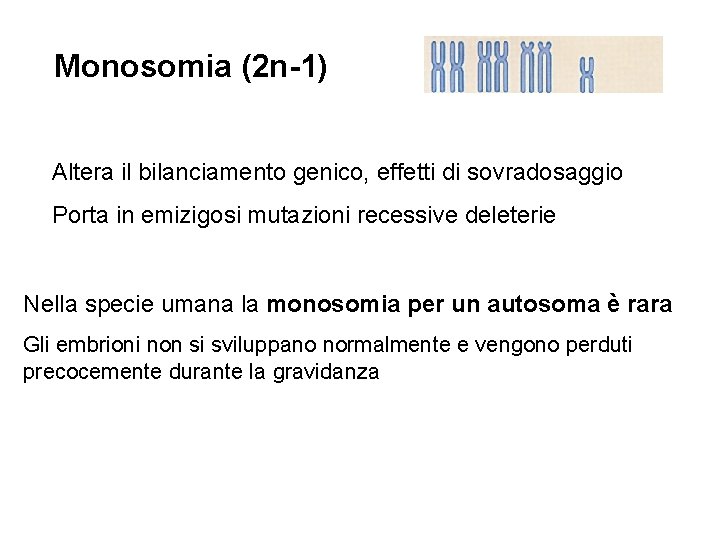
Monosomia (2 n-1) Altera il bilanciamento genico, effetti di sovradosaggio Porta in emizigosi mutazioni recessive deleterie Nella specie umana la monosomia per un autosoma è rara Gli embrioni non si sviluppano normalmente e vengono perduti precocemente durante la gravidanza
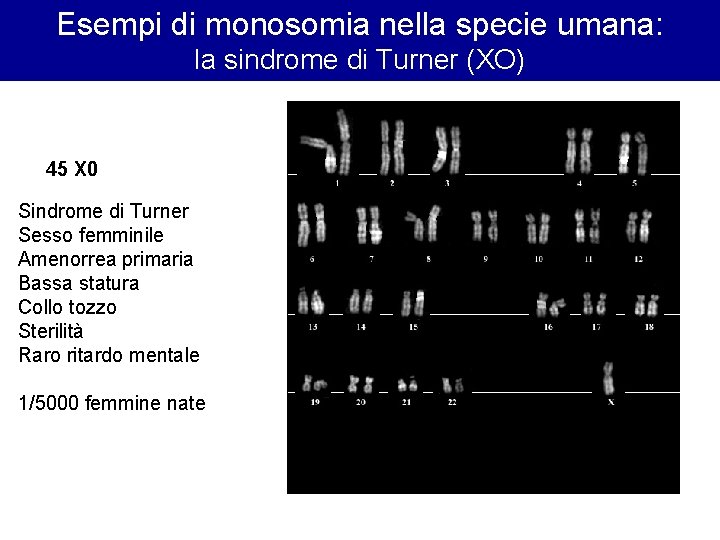
Esempi di monosomia nella specie umana: la sindrome di Turner (XO) 45 X 0 Sindrome di Turner Sesso femminile Amenorrea primaria Bassa statura Collo tozzo Sterilità Raro ritardo mentale 1/5000 femmine nate
Trisomia (2 n+1) Altera il bilanciamento genico, effetti di sovradosaggio Nella specie umana le trisomie più frequenti sono quelle che coinvolgono i cromosomi sessuali Le trisomie autosomiche sono rare. L’unica compatibile con la sopravvivenza è la trisomia del cromosoma 21. Nella trisomia dei cromosomi 18 , 15 o 13, l’individuo può nascere, ma non sopravvive. In altri casi, gli embrioni non si sviluppano normalmente e vengono persi precocemente durante la gravidanza
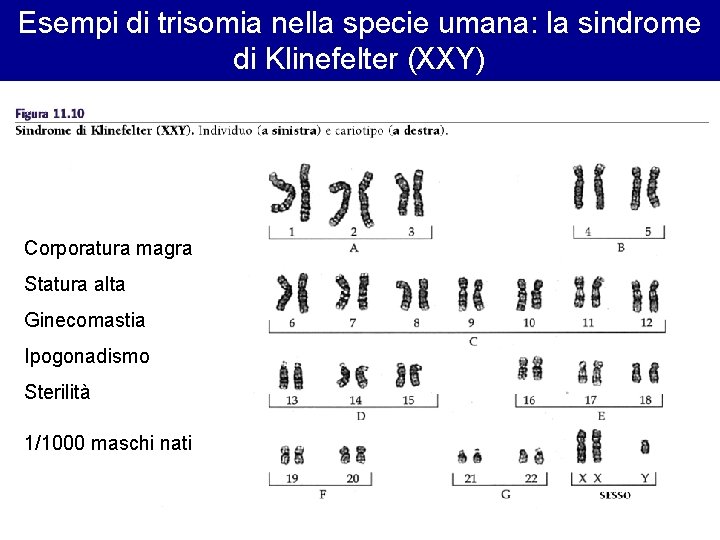
Esempi di trisomia nella specie umana: la sindrome di Klinefelter (XXY) Corporatura magra Statura alta Ginecomastia Ipogonadismo Sterilità 1/1000 maschi nati
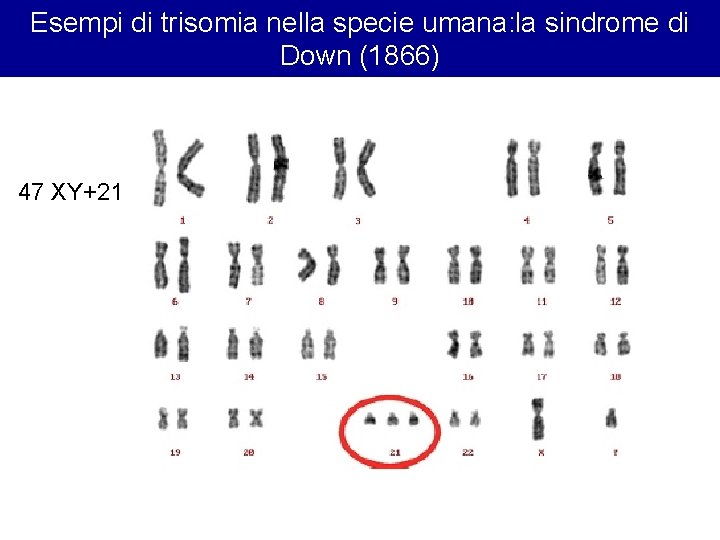
Esempi di trisomia nella specie umana: la sindrome di Down (1866) 47 XY+21
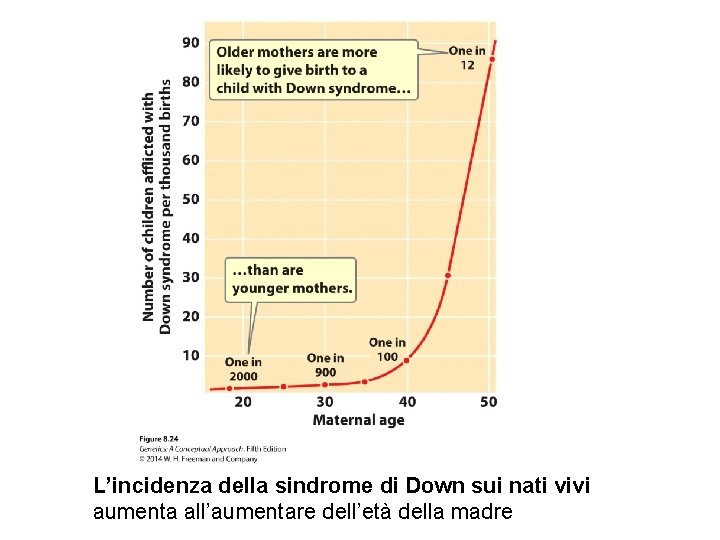
L’incidenza della sindrome di Down sui nati vivi aumenta all’aumentare dell’età della madre
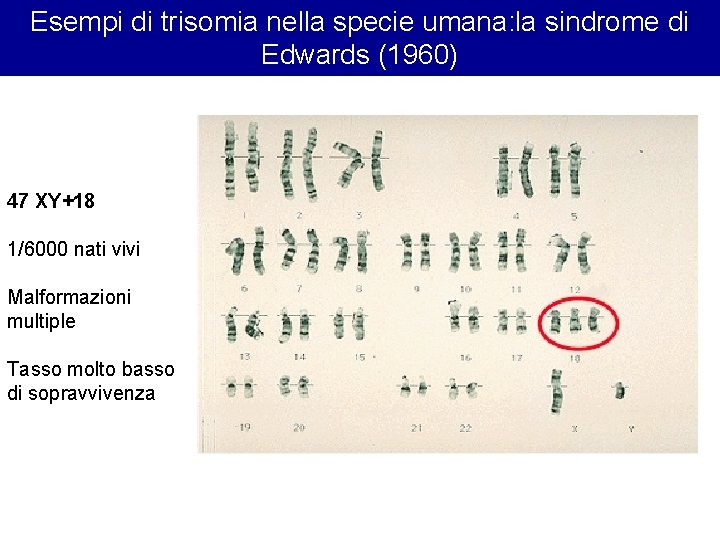
Esempi di trisomia nella specie umana: la sindrome di Edwards (1960) 47 XY+18 1/6000 nati vivi Malformazioni multiple Tasso molto basso di sopravvivenza
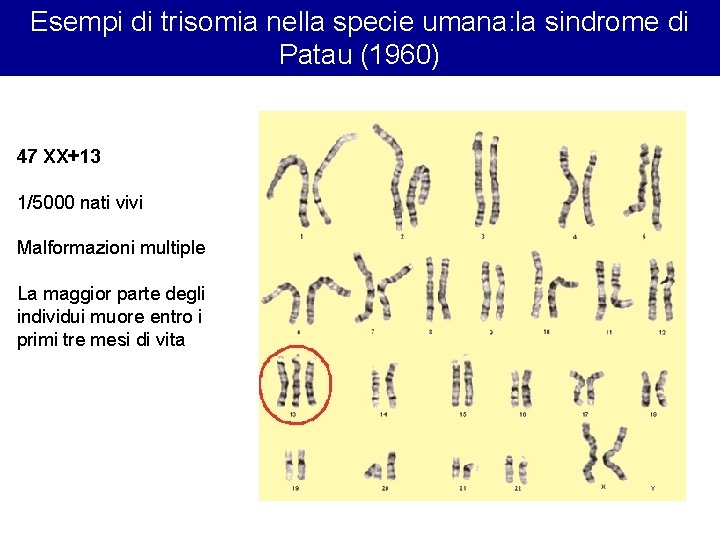
Esempi di trisomia nella specie umana: la sindrome di Patau (1960) 47 XX+13 1/5000 nati vivi Malformazioni multiple La maggior parte degli individui muore entro i primi tre mesi di vita
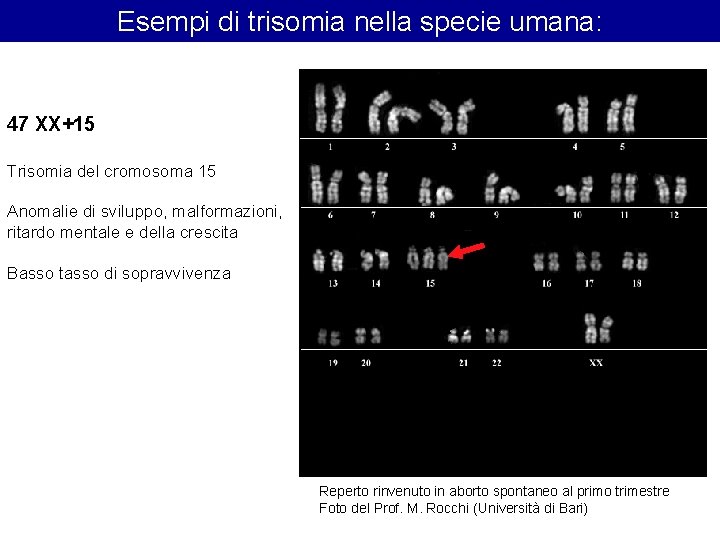
Esempi di trisomia nella specie umana: 47 XX+15 Trisomia del cromosoma 15 Anomalie di sviluppo, malformazioni, ritardo mentale e della crescita Basso tasso di sopravvivenza Reperto rinvenuto in aborto spontaneo al primo trimestre Foto del Prof. M. Rocchi (Università di Bari)
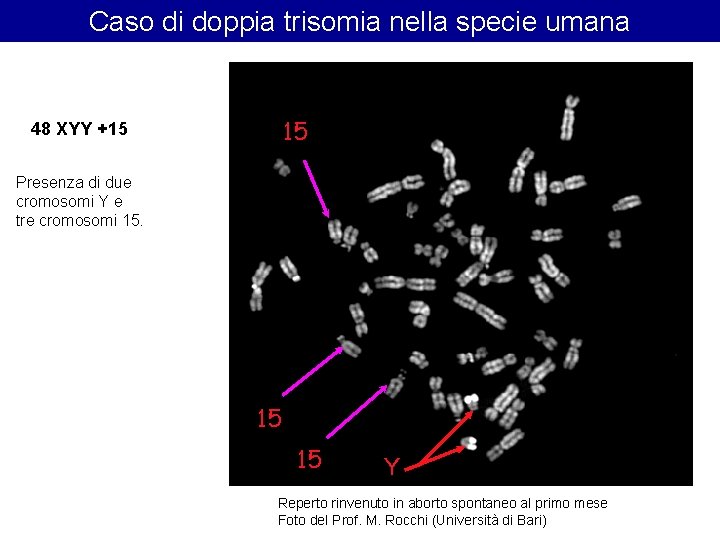
Caso di doppia trisomia nella specie umana 15 48 XYY +15 Presenza di due cromosomi Y e tre cromosomi 15. 15 15 Y Reperto rinvenuto in aborto spontaneo al primo mese Foto del Prof. M. Rocchi (Università di Bari)
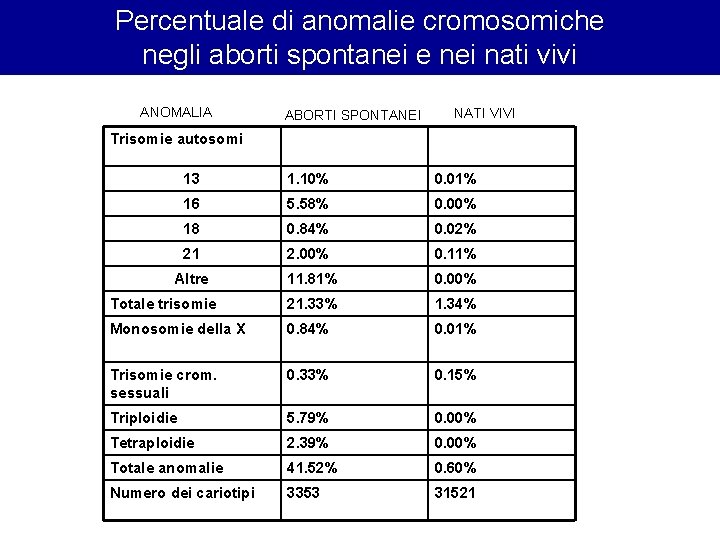
Percentuale di anomalie cromosomiche negli aborti spontanei e nei nati vivi ANOMALIA ABORTI SPONTANEI NATI VIVI Trisomie autosomi 13 1. 10% 0. 01% 16 5. 58% 0. 00% 18 0. 84% 0. 02% 21 2. 00% 0. 11% Altre 11. 81% 0. 00% Totale trisomie 21. 33% 1. 34% Monosomie della X 0. 84% 0. 01% Trisomie crom. sessuali 0. 33% 0. 15% Triploidie 5. 79% 0. 00% Tetraploidie 2. 39% 0. 00% Totale anomalie 41. 52% 0. 60% Numero dei cariotipi 3353 31521
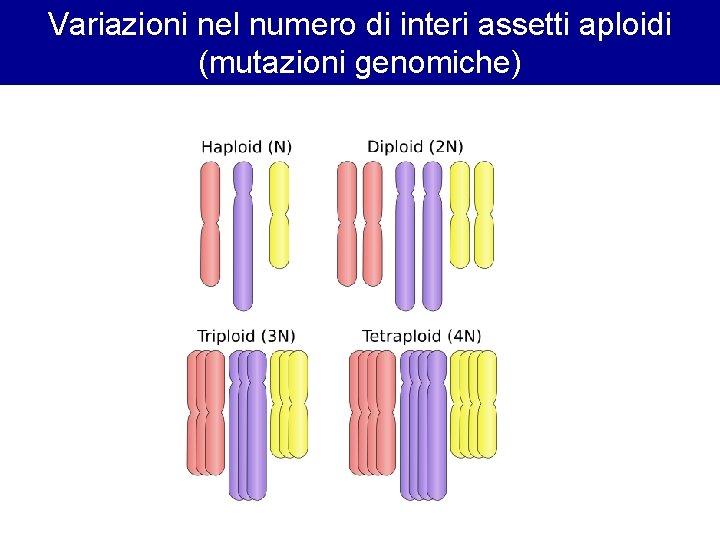
Variazioni nel numero di interi assetti aploidi (mutazioni genomiche)
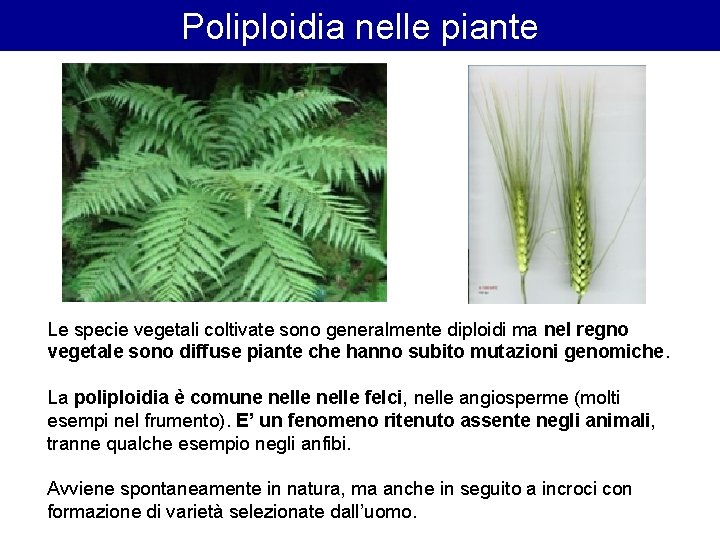
Poliploidia nelle piante Le specie vegetali coltivate sono generalmente diploidi ma nel regno vegetale sono diffuse piante che hanno subito mutazioni genomiche. La poliploidia è comune nelle felci, nelle angiosperme (molti esempi nel frumento). E’ un fenomeno ritenuto assente negli animali, tranne qualche esempio negli anfibi. Avviene spontaneamente in natura, ma anche in seguito a incroci con formazione di varietà selezionate dall’uomo.
Come si origina la poliplidia? 1. Assenza di citochinesi 2. Non-disgiunzione che coinvolge tutti i cromosomi
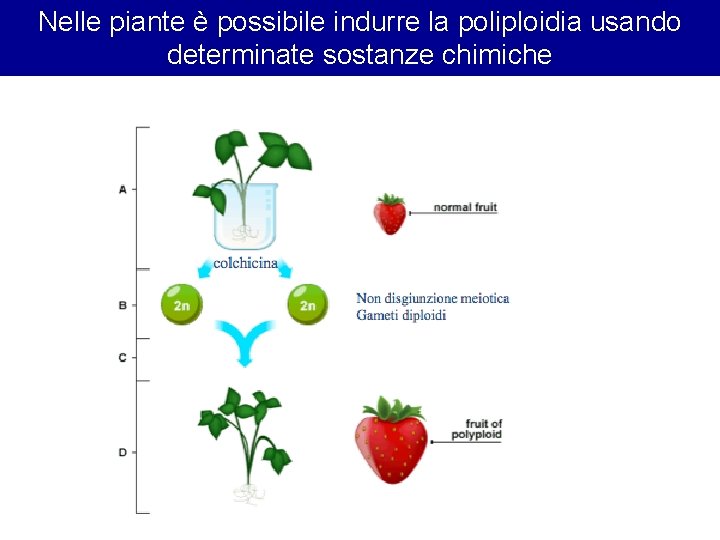
Nelle piante è possibile indurre la poliploidia usando determinate sostanze chimiche
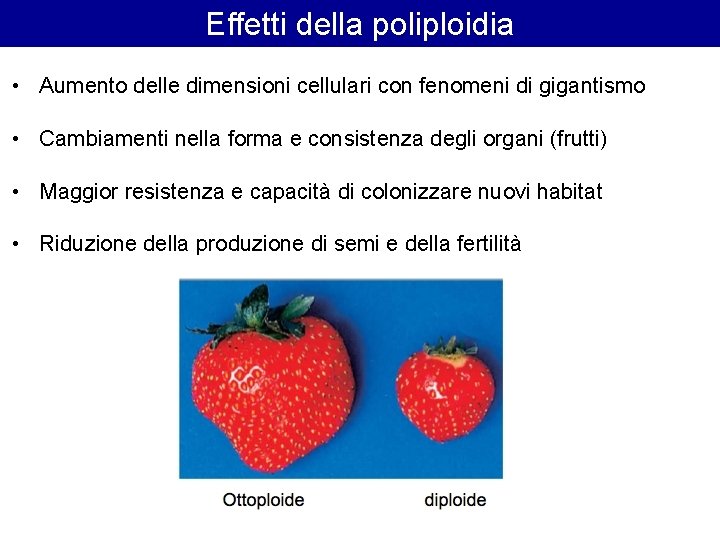
Effetti della poliploidia • Aumento delle dimensioni cellulari con fenomeni di gigantismo • Cambiamenti nella forma e consistenza degli organi (frutti) • Maggior resistenza e capacità di colonizzare nuovi habitat • Riduzione della produzione di semi e della fertilità
AUTOPOLIPLOIDIA E ALLOPOLIPLIDIA
AUTOPOLIPLOIDIA Più assetti aploidi della stessa specie, in genere prodotti in seguito a raddoppiamento del numero cromosomico Molte specie coltivate sono autopoliploidi: • Erba medica, patata e caffè sono autotetraploidi naturali • Barbabietola e banana sono triploidi • Il pruno domestico è esaploide • Nella fragola ci sono casi di ottoploidia
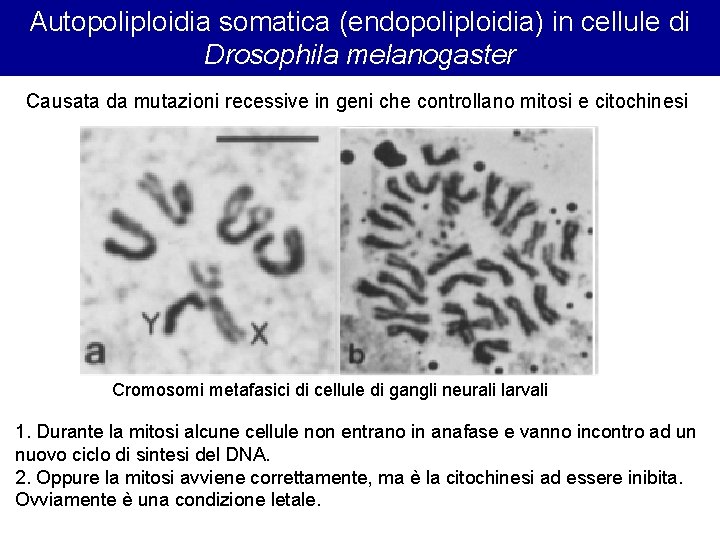
Autopoliploidia somatica (endopoliploidia) in cellule di Drosophila melanogaster Causata da mutazioni recessive in geni che controllano mitosi e citochinesi Cromosomi metafasici di cellule di gangli neurali larvali 1. Durante la mitosi alcune cellule non entrano in anafase e vanno incontro ad un nuovo ciclo di sintesi del DNA. 2. Oppure la mitosi avviene correttamente, ma è la citochinesi ad essere inibita. Ovviamente è una condizione letale.
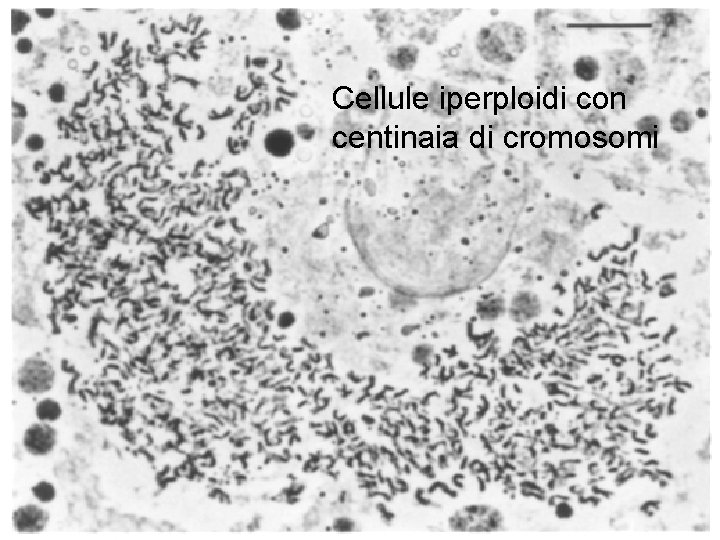
Cellule iperploidi con centinaia di cromosomi
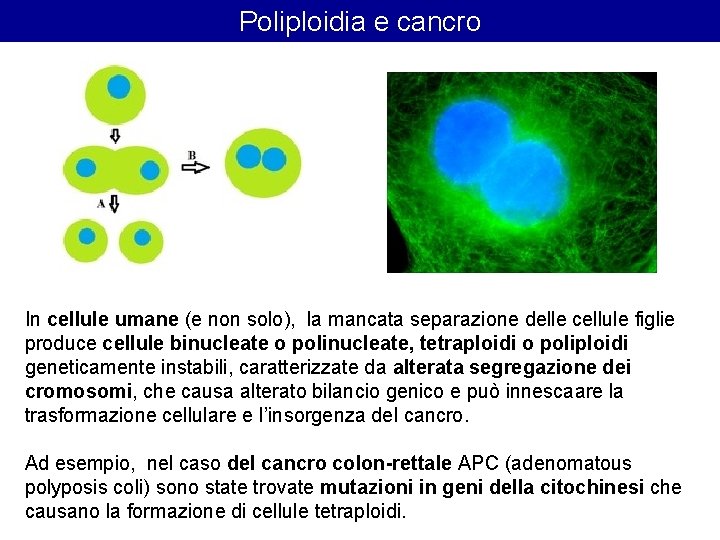
Poliploidia e cancro In cellule umane (e non solo), la mancata separazione delle cellule figlie produce cellule binucleate o polinucleate, tetraploidi o poliploidi geneticamente instabili, caratterizzate da alterata segregazione dei cromosomi, che causa alterato bilancio genico e può innescaare la trasformazione cellulare e l’insorgenza del cancro. Ad esempio, nel caso del cancro colon-rettale APC (adenomatous polyposis coli) sono state trovate mutazioni in geni della citochinesi che causano la formazione di cellule tetraploidi.
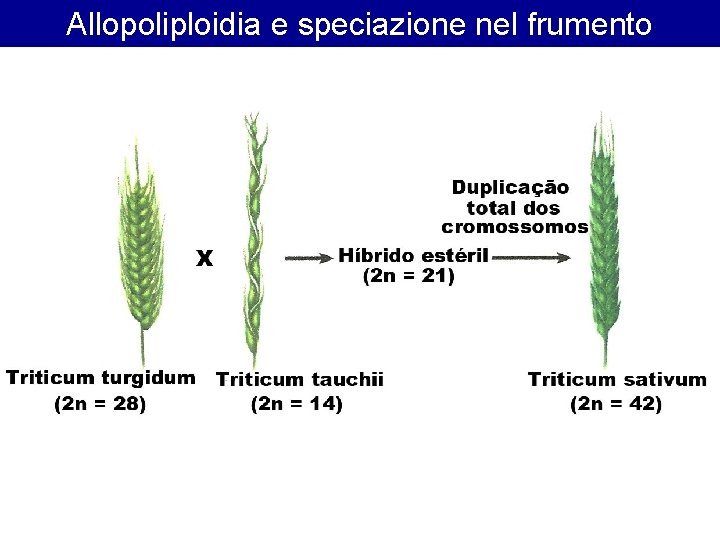
Allopoliploidia L’allopoliploidia può essere il risultato di incroci tra specie diverse, ma geneticamente simili
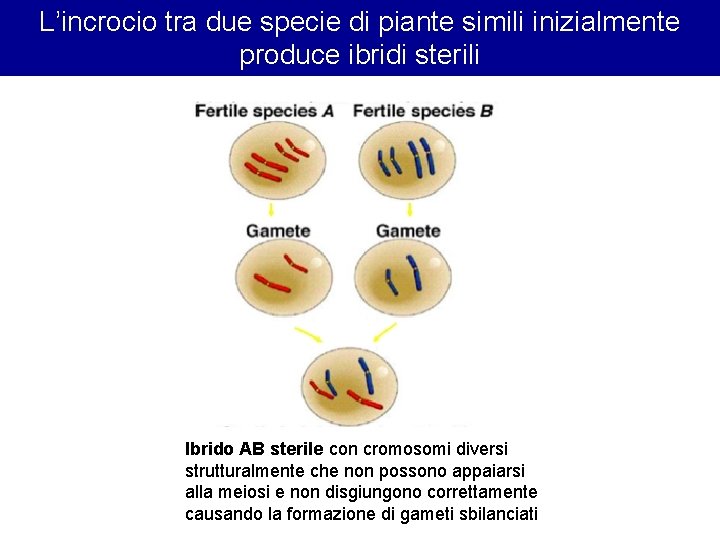
L’incrocio tra due specie di piante simili inizialmente produce ibridi sterili Ibrido AB sterile con cromosomi diversi strutturalmente che non possono appaiarsi alla meiosi e non disgiungono correttamente causando la formazione di gameti sbilanciati
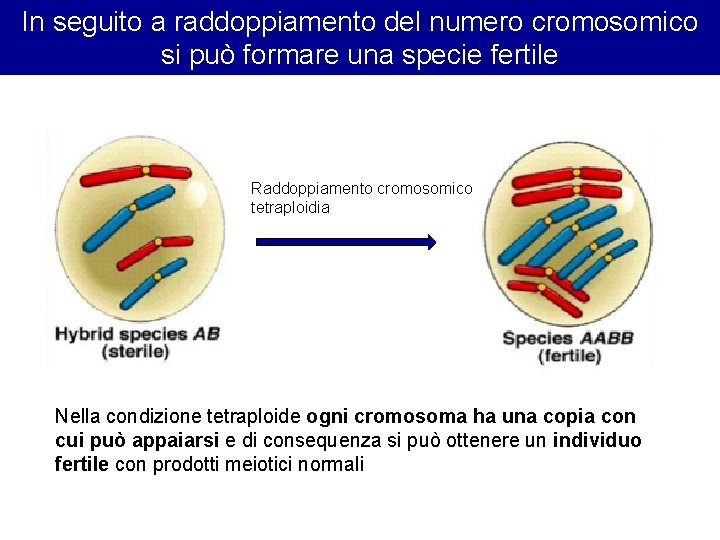
In seguito a raddoppiamento del numero cromosomico si può formare una specie fertile Raddoppiamento cromosomico tetraploidia Nella condizione tetraploide ogni cromosoma ha una copia con cui può appaiarsi e di consequenza si può ottenere un individuo fertile con prodotti meiotici normali
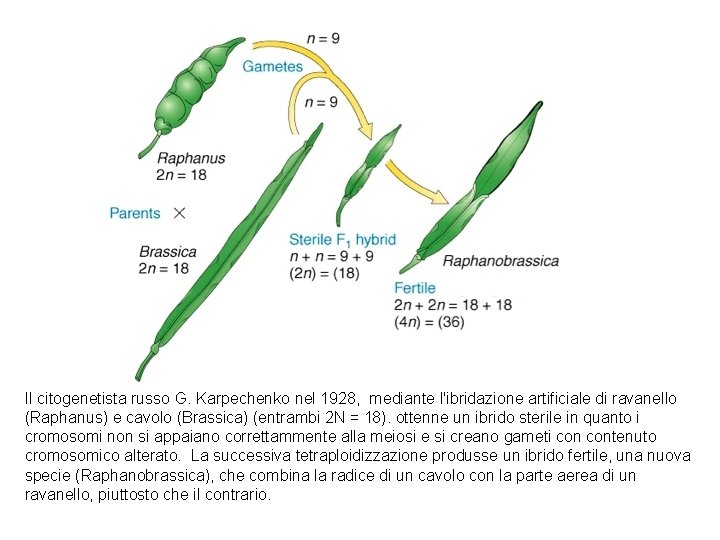
Il citogenetista russo G. Karpechenko nel 1928, mediante l'ibridazione artificiale di ravanello (Raphanus) e cavolo (Brassica) (entrambi 2 N = 18). ottenne un ibrido sterile in quanto i cromosomi non si appaiano correttammente alla meiosi e si creano gameti contenuto cromosomico alterato. La successiva tetraploidizzazione produsse un ibrido fertile, una nuova specie (Raphanobrassica), che combina la radice di un cavolo con la parte aerea di un ravanello, piuttosto che il contrario.
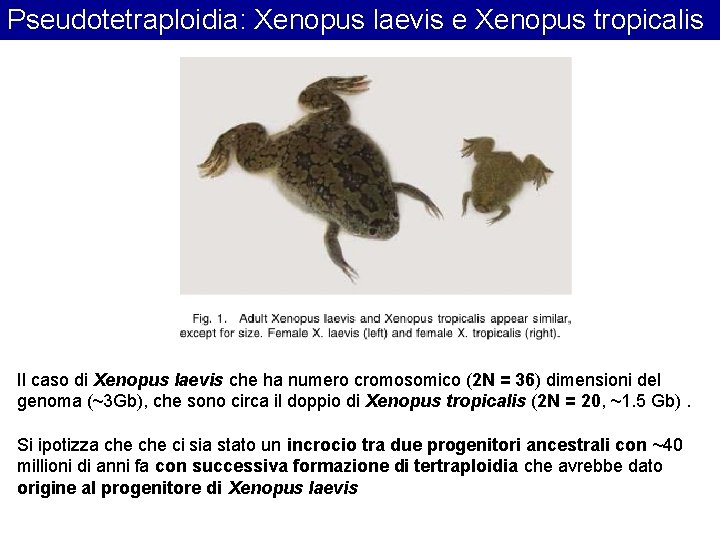
Pseudotetraploidia: Xenopus laevis e Xenopus tropicalis Il caso di Xenopus laevis che ha numero cromosomico (2 N = 36) dimensioni del genoma (~3 Gb), che sono circa il doppio di Xenopus tropicalis (2 N = 20, ~1. 5 Gb). Si ipotizza che ci sia stato un incrocio tra due progenitori ancestrali con ~40 millioni di anni fa con successiva formazione di tertraploidia che avrebbe dato origine al progenitore di Xenopus laevis
Allopoliploidia e speciazione nel frumento
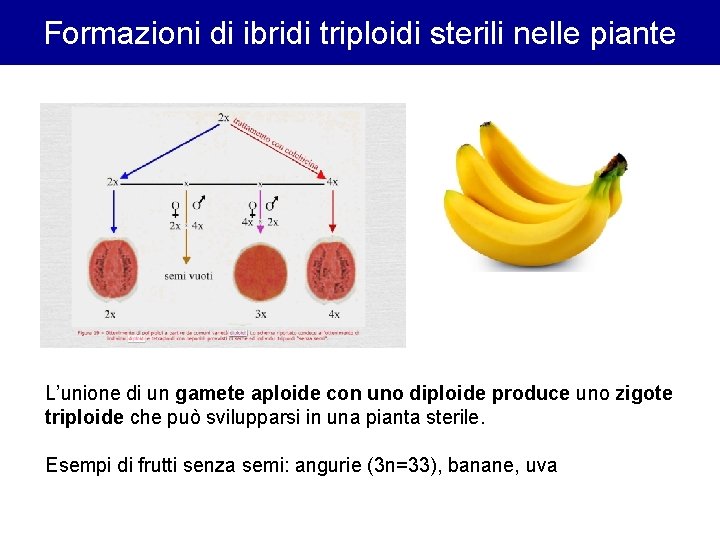
Formazioni di ibridi triploidi sterili nelle piante L’unione di un gamete aploide con uno diploide produce uno zigote triploide che può svilupparsi in una pianta sterile. Esempi di frutti senza semi: angurie (3 n=33), banane, uva
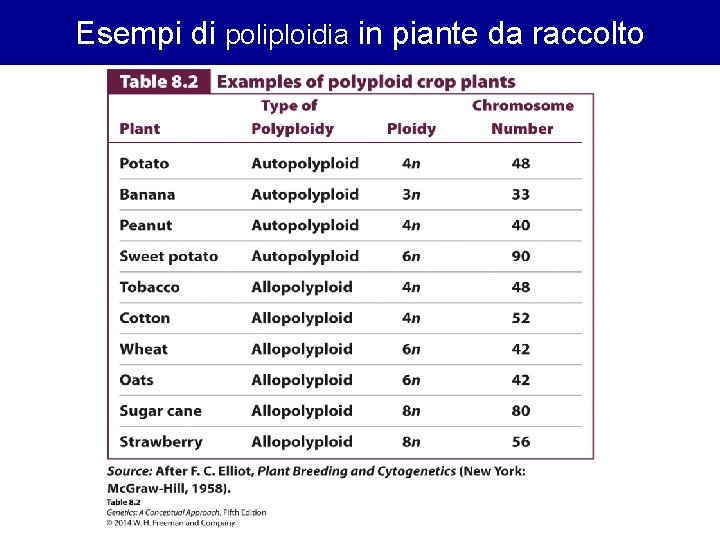
Esempi di poliploidia in piante da raccolto
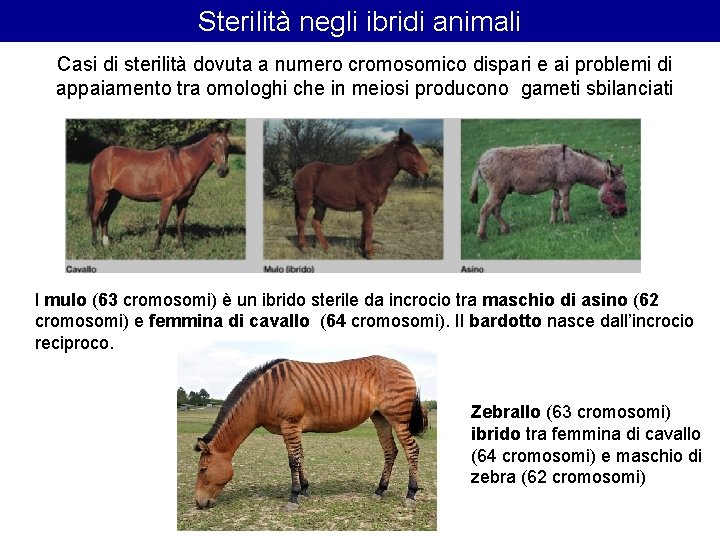
Sterilità negli ibridi animali Casi di sterilità dovuta a numero cromosomico dispari e ai problemi di appaiamento tra omologhi che in meiosi producono gameti sbilanciati l mulo (63 cromosomi) è un ibrido sterile da incrocio tra maschio di asino (62 cromosomi) e femmina di cavallo (64 cromosomi). Il bardotto nasce dall’incrocio reciproco. Zebrallo (63 cromosomi) ibrido tra femmina di cavallo (64 cromosomi) e maschio di zebra (62 cromosomi)
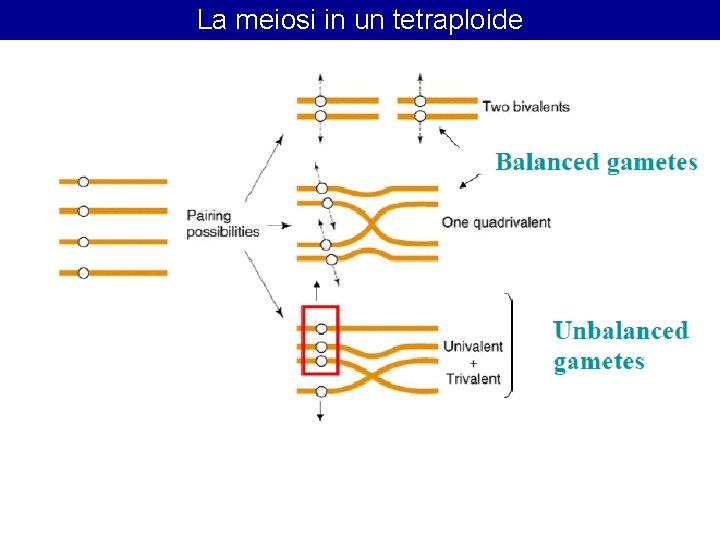
La meiosi in un tetraploide
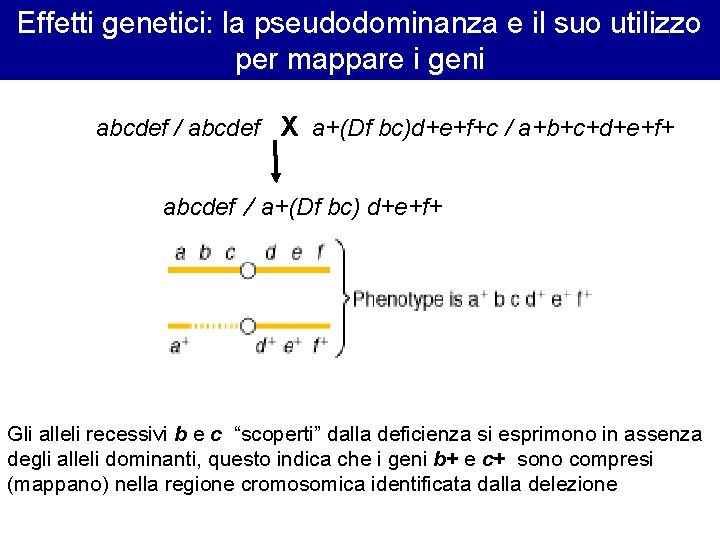
Effetti genetici: la pseudodominanza e il suo utilizzo per mappare i geni abcdef / abcdef X a+(Df bc)d+e+f+c / a+b+c+d+e+f+ abcdef / a+(Df bc) d+e+f+ Gli alleli recessivi b e c “scoperti” dalla deficienza si esprimono in assenza degli alleli dominanti, questo indica che i geni b+ e c+ sono compresi (mappano) nella regione cromosomica identificata dalla delezione