UNIVERSIDAD NACIONAL DE ASUNCIN FACULTAD DE CIENCIAS QUMICAS
- Slides: 94
UNIVERSIDAD NACIONAL DE ASUNCIÓN FACULTAD DE CIENCIAS QUÍMICAS CÁTEDRA DE INMUNOLOGÍA CLÍNICA UNIDAD TEMÁTICA: INTRODUCCIÓN A LAS PATOLOGÍAS DEL SISTEMA INMUNE 1
Analizar los diferentes mecanismos que actúan en la regulación del sistema inmune Discernir diferencias entre los mecanismos de tolerancia central y periférica
1. 2 Regulación de la respuesta inmune 1. 2. 1. Elementos que participan en la regulación del sistema inmune: antígenos, anticuerpos, factores genéticos, sistema endócrino y sistema nervioso 1. 2. 2 Rol de la subpoblación de células T en la regulación: Th 17 y T reguladoras. 1. 3 Tolerancia a lo propio 1. 3. 1 Mecanismos de tolerancia del sistema inmune 1. 3. 2 Tolerancia central 1. 3. 3 Tolerancia Periférica 1. 3. 4 Tolerancia artificial �
1. El antígeno 2. Los anticuerpos 3. Determinadas células del sistema inmune 4. Las citoquinas 5. Los factores genéticos 6. El sistema regulador neuroendocrino 7. Linfocitos T reguladores 8. Homoestasis de la respuesta inmune antimicrobiana 9. Tolerancia oral
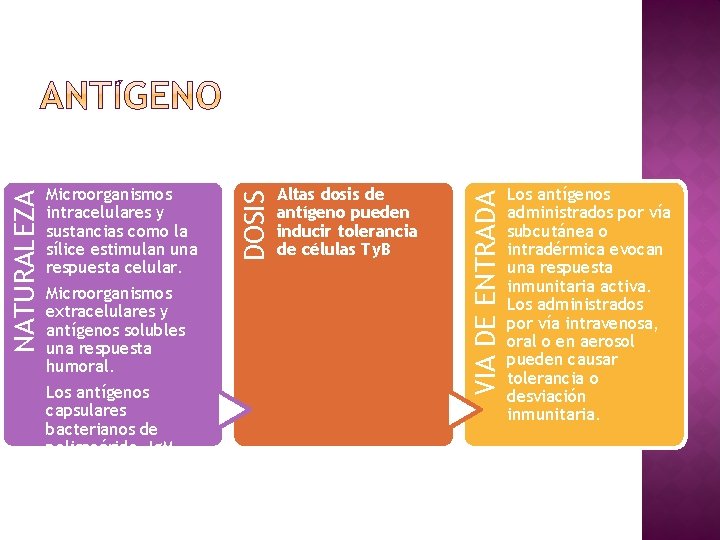
Altas dosis de antígeno pueden inducir tolerancia de células Ty. B VIA DE ENTRADA DOSIS NATURALEZA Microorganismos intracelulares y sustancias como la sílice estimulan una respuesta celular. Microorganismos extracelulares y antígenos solubles una respuesta humoral. Los antígenos capsulares bacterianos de polisacárido. Ig. M Los antígenos administrados por vía subcutánea o intradérmica evocan una respuesta inmunitaria activa. Los administrados por vía intravenosa, oral o en aerosol pueden causar tolerancia o desviación inmunitaria.
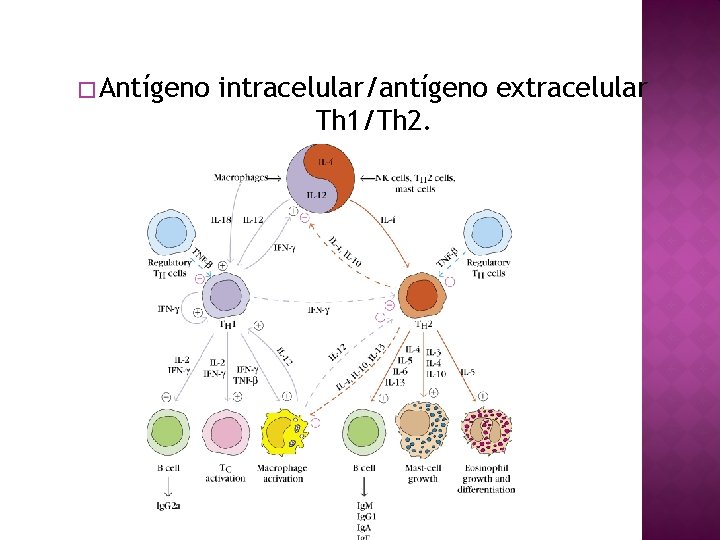
� Antígeno intracelular/antígeno extracelular Th 1/Th 2.
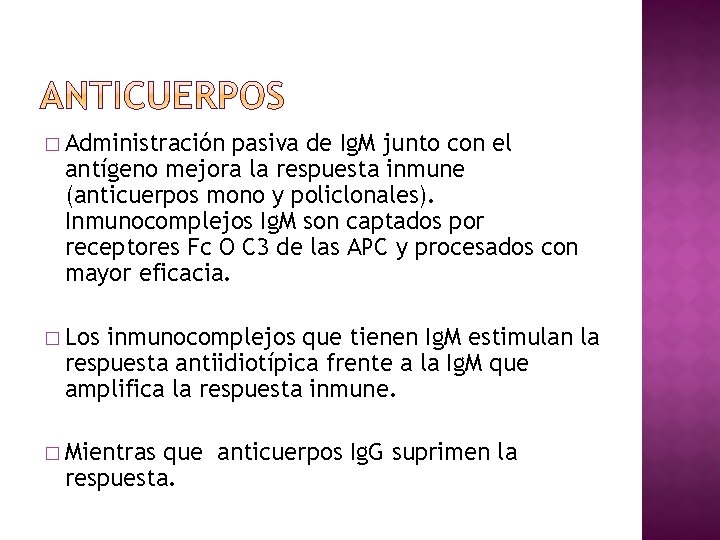
� Administración pasiva de Ig. M junto con el antígeno mejora la respuesta inmune (anticuerpos mono y policlonales). Inmunocomplejos Ig. M son captados por receptores Fc O C 3 de las APC y procesados con mayor eficacia. � Los inmunocomplejos que tienen Ig. M estimulan la respuesta antiidiotípica frente a la Ig. M que amplifica la respuesta inmune. � Mientras que anticuerpos Ig. G suprimen la respuesta.
� Regulación por anticuerpos: Retrorregulación negativa basada en la supresión mediada por los anticuerpos (fundamentalmente Ig. G), que bloquean las interacciones entre el epitopo y el BCR especifico de los linfocitos B, por entrecruzamiento de receptores Fc unidos a inmunoglobulinas o inmunocomplejos en diferentes células: Inhibición de las células B por entrecruzamiento de receptores
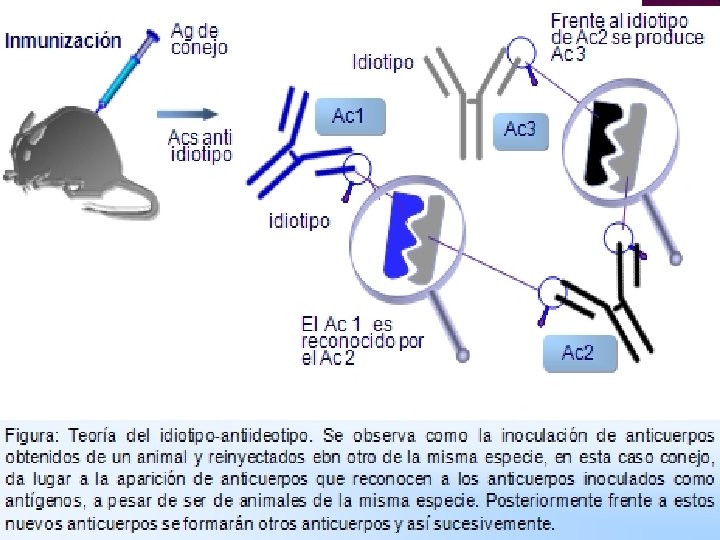
Redes idiotípicas: Durante el periodo neonatal las regiones idiotípicas de las inmunoglobulinas son un repertorio de inmunógenos para el sistema inmune. Los anticuerpos que se formarían frente a estos idiotipos se denominan anticuerpos antiidiotipo, y podrían modificar el curso de las reacciones inmunitarias. Jerne propuso la existencia de una red o entramado idiotipo-antiidiotipo que, en estado de reposo del S. I. tiene un equilibrio cuantitativo y cualitativo
� Estos autoantígenos están en muy pequeña cantidad para ser destruidos por el sistema inmune, pero cuando un determinado clon es estimulado por su antígeno, el sistema inmune ya no podría ignorarlo y originaría unas respuestas contra ellos en forma de segundos anticuerpos (antiidiotipo), que encajarían con los primeros y tendrían además un efecto modulador que puede ser positivo o negativo. A este proceso se le denominó "teoría de la red de anticuerpos" (Figura: Teoría del idiotipo-antiidiotipo).
Las respuestas anti-idiotípicas asociarse a tolerancia. pueden La supresión de un idiotipo por los anticuerpos antiidiotípicos puede alterar de forma significativa la respuesta…la tolerancia será parcial porque solo afecta a las células B que portan ese idiotipo.
FACTORES GENÉTICOS La capacidad de respuesta inmune depende de la genética del individuo. Mediante experimentos de genética molecular se ha determinado la existencia de genes que condicionan o modulan la respuesta inmune (en el ratón, genes Ir). • Influencia del CMH: El polimorfismo de secuencias CMH que cada individuo hereda (Tema 6). • Genes no ligados al CMH: Controlan la capacidad de respuesta global del organismo a antígenos complejos, como la capacidad del macrófago para procesar Ag o la tasa de proliferación de linfocitos B.
� EXPOSICIÓN DE UN DETERMINADO LOCUS A LA MAQUINARIA TRANSCRIPCIONAL. LA TRANSCRIPCIÓN SE INCICIA POR FACTORES DE TRANSCRIPCION � NIVELES DE COMPACTACIÓN DE LA CROMATINA � LA ACETILACIÓN DE HISTONAS � MODIFICACIONES POSTRANSCRIPCIONALES � TRANSPORTE DE TRANSCRIPTOS DESDE EL NUCLEO CELULAR � LA ESTABILIDAD DEL RNA MENSAJERO
� MADURACIÓN DE LOS LINFOCITOS � ACTIVACION LINFOCITARIA � DIFERENCIACIÓN DE CELULAS TCD 4 � ACTIVIDAD CITOTOXICA DE LINFOCITOS T Y NK � DIFERENCIACIÓN DE CELULAS B � FENOMENOS DE HOMEOSTASIS Y TOLERANCIA - SELECCIÓN NEGATIVA - ANERGIA CLONAL - GENERACIÓN DE CEL T REG - APOPTOSIS DE CÉLULAS T EFECTORAS
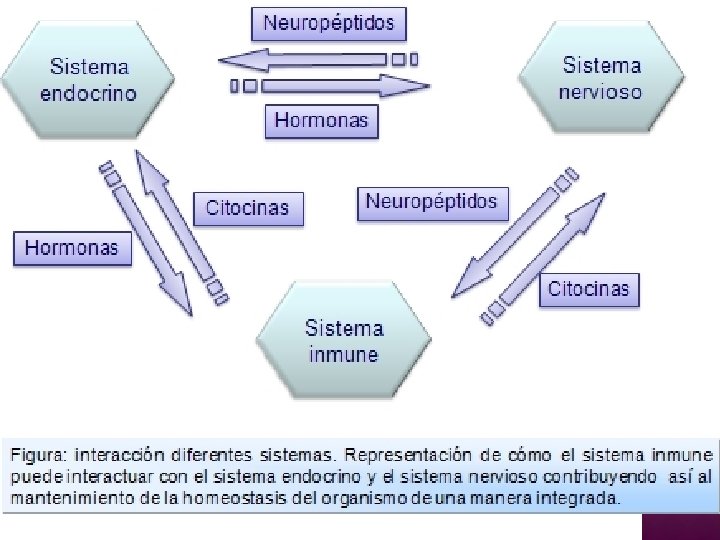
� Actualmente existen evidencias que sugieren la existencia de una compleja red de comunicación tridireccional entre el sistema inmune, el sistema nervioso y el sistema endocrino. � El estrés o una infección (inflamación) pueden activar y modificar el equilibrio de las citoquinas pro-inflamatorias, y activar tanto al eje hipotálamo-hipófisisadrenal (HPA) como al sistema simpático-adrenal, produciendo la liberación de hormonas como ACTH, glucocorticoides, y catecolaminas (adrenalina y noradrenalina) que inducen cambios cualitativos y cuantitativos en el sistema inmunitario.
� Hoy es conocido como el sistema endocrino y el sistema nervioso pueden contribuir a la regulación del sistema inmune. La confirmación de este fenómeno se realizó en los años setenta cuando por primera vez se demostró que los niveles de glucocorticoides se elevaban durante la respuesta inmunitaria produciendo un efecto supresor sobre la misma. � Esta conexión ha sido después ampliamente demostrada en ambas direcciones de tal manera que, en su conjunto, se mantiene la homeostasis del organismo de una forma integrada con participación de los sistemas inmune, endocrino y nervioso.
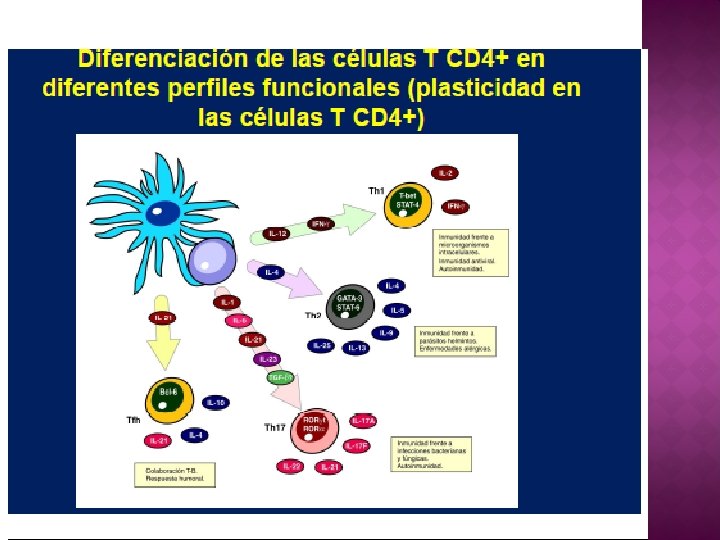
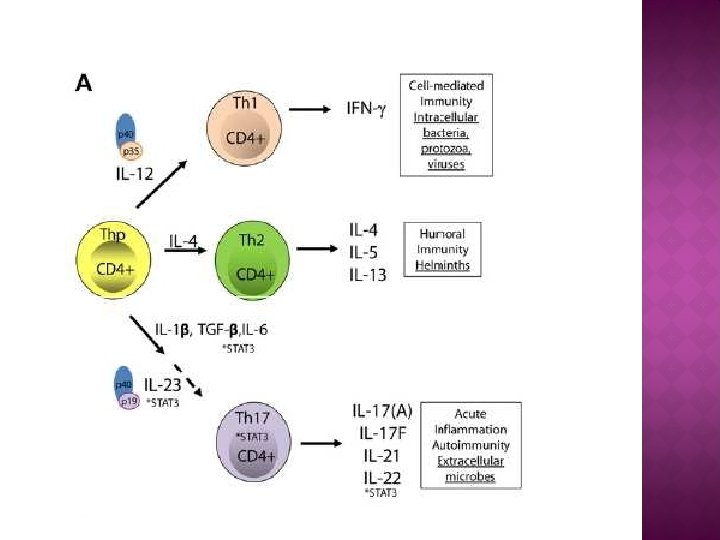
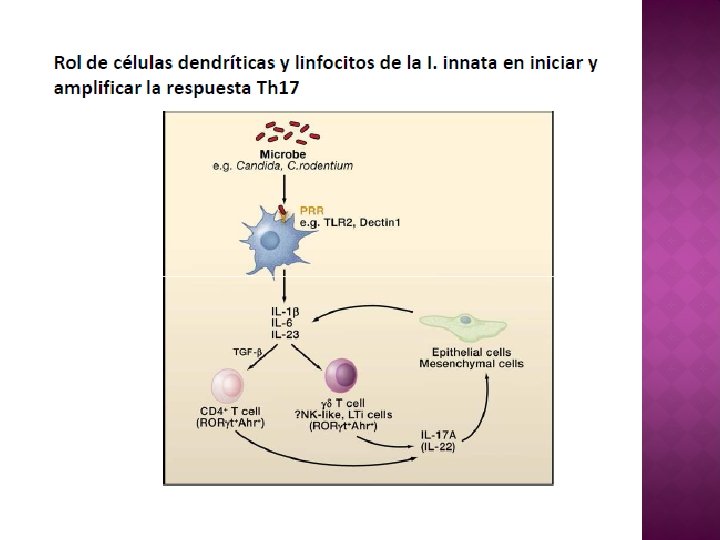
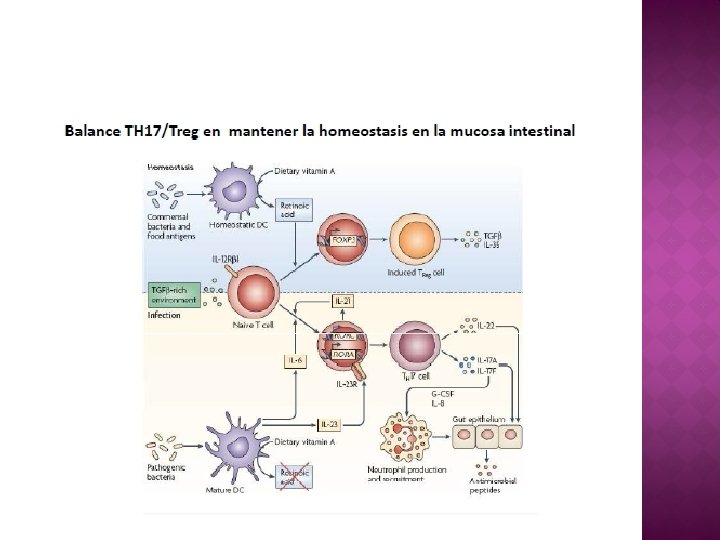
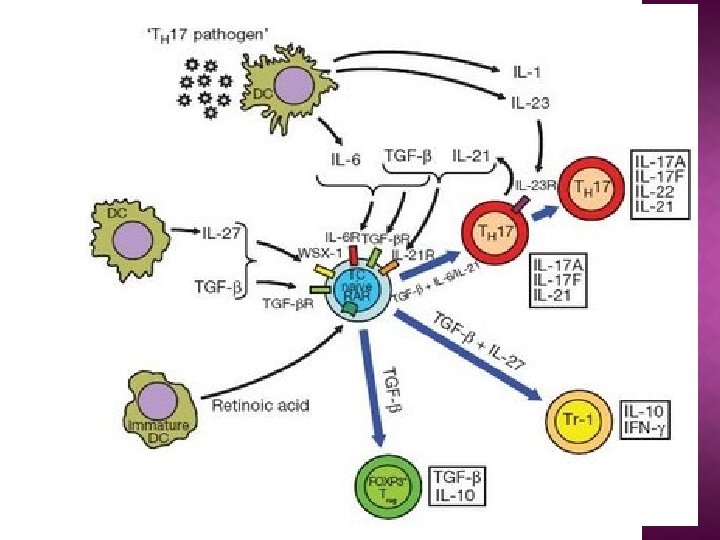
� La combinación de TGF-β e IL-6, y los factores de transcripción RORγt, RORα y Stat 3 son esenciales para comprometer el subtipo Th 17. � IL-23 juega un papel clave en la estabilización del fenotipo y de la actividad patogénica de células productoras de IL-17. � La citocina IL-21 producida por células Th 17 participa en un mecanismo de retroalimentación para favorecer el desarrollo de células productoras de IL-17, mientras que las citocinas IL-27, IL-4, IFN-γ, IL-25 e IL-2 limitan el fenotipo Th 17.
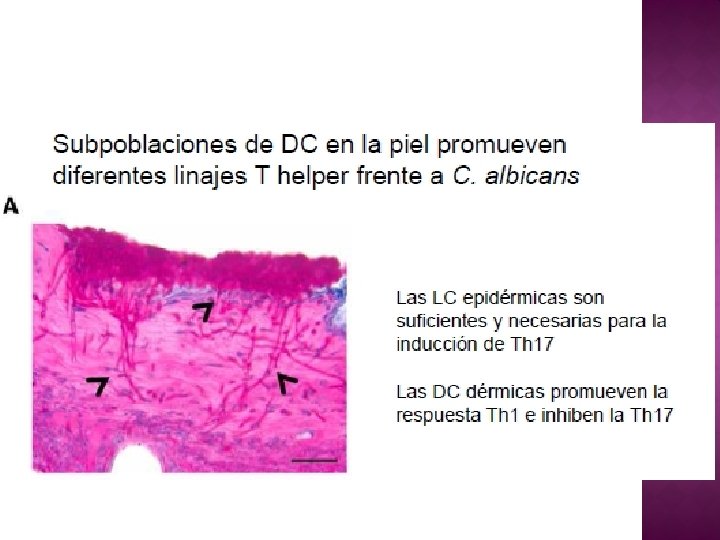
� Las células TCD 4+ efectoras productoras de IL-17 representan un perfil de diferenciación. � Las células TH 17 cumplen un papel destacado no solo en las infecciones micóticas, sino también en la inmunidad frente a bacterias extracelulares y fenómenos de autoinmunidad. Constituye una línea de defensa propia de la inmunidad adaptativa en las superficies mucosas en el aparato digestivo, respiratorio y piel y nos protegen de las infecciones invasivas.
� Las citocinas IL-1, IL-6, IL-21, IL 23 y TGF-B desempeñan un papel importante en la diferenciación de un perfil TH 17. � IL-1 e IL-6 cumple una función crítica en la diferenciación. � IL 21 e IL-23 contribuyen en la expansión.
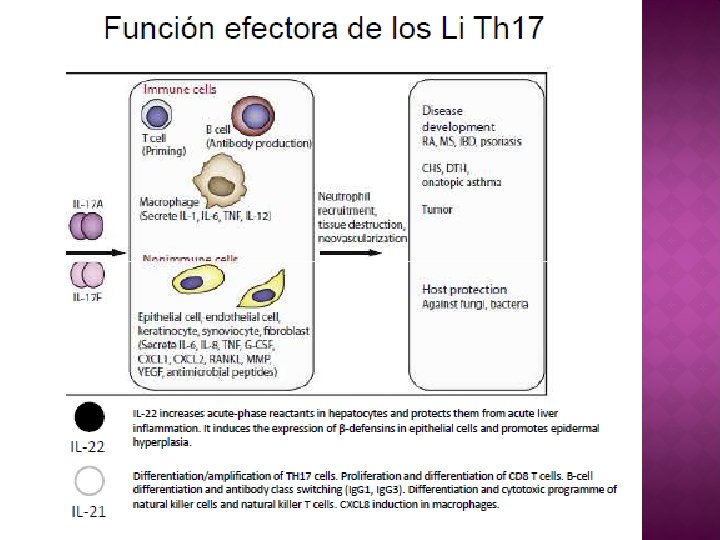
� Las células TH 17 producen citocinas IL-17 A, IL 17 F, IL -21 e IL-22. � Las dos primeras expresan una notoria capacidad proinflamatoria. Actual sobre un abanico de tipos celulares activando el factor NF-Kb estimulando la producción de citocinas inflamatorias ( TNF-α, IL-1, IL-6, GM-CSF y G-CSF), quimiocinas inflamatorias, mucinas, péptidos antimicrobianos y metaloproteasas que promueven la infiltración de tejido afectado por células reclutadas desde la circulación, particularmente granulocitos neutrófilos.
� La IL-22 media también efectos proinflamatorios similares pero su receptor se encuentra en queratinocitos, cel. epiteliales, endoteliales y fibroblastos pero no en células inmunitarias.
� Las IL-17 A e IL-17 F no solo son producidas por células TH 17, sino que también son producidas en altas cantidades durante la fase temprana de los procesos infecciosos por diferentes tipos celulares de la inmunidad innata como NKT y linfocitos Tγδ que puede cumplir un papel importante en el control de infecciones bacterianas y micóticas nacientes, en las mucosas intestinal y respiratorias
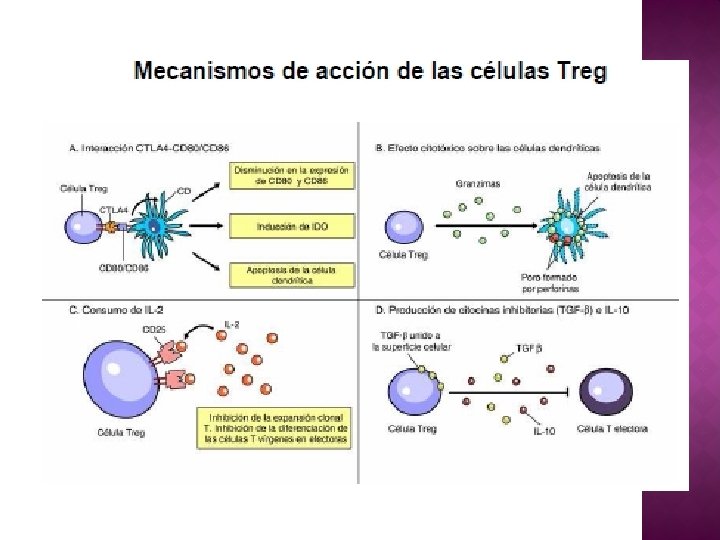
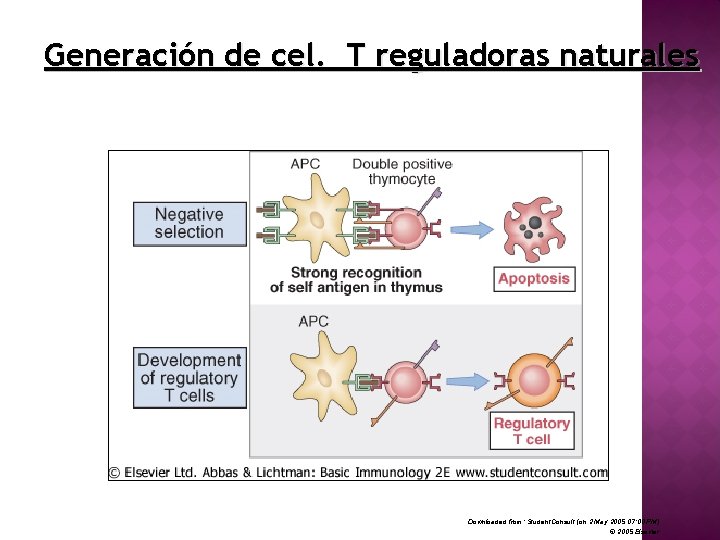
� Las células T y B autorreactivas presentes en la periferia deben ser silenciadas a fin de evitar el desarrollo de enfermedades autoinmunes. � Las células T reguladoras cumplen en este sentido un papel fundamental, por otra parte, modulan también los mecanismos propios de la inmunidad antiinfecciosa.
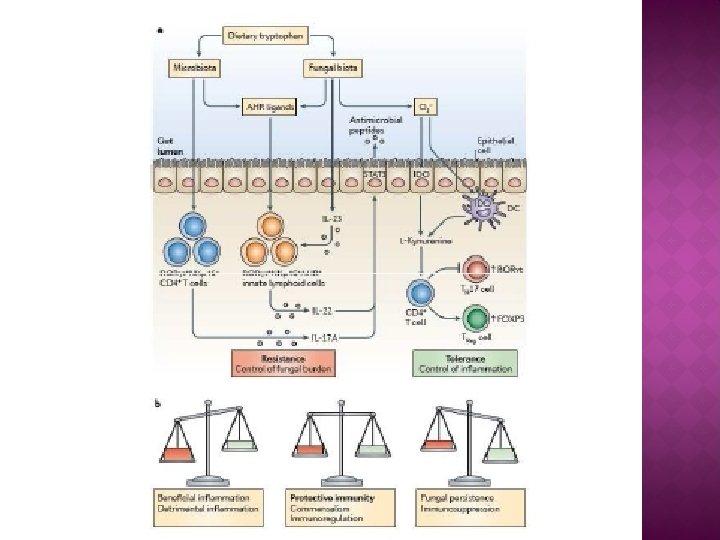
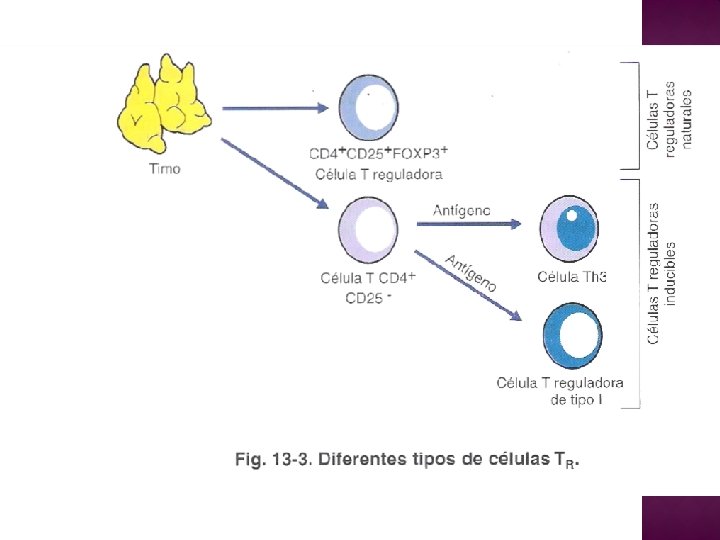
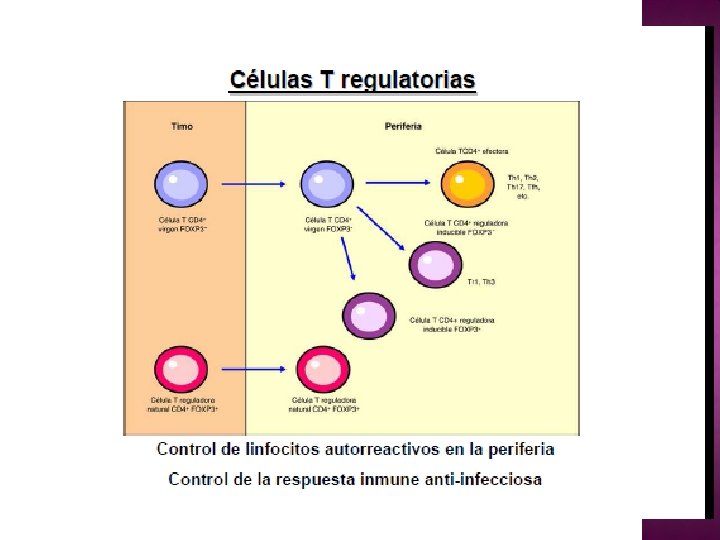
� Las células T reguladoras pueden mostrar a grandes rasgos 2 orígenes diferentes. Celulas T reguladoras naturales: emigran del timo expresando constitutivamente el factor de transcripción FOXP 3, la molécula CD 25 y una funcionalidad supresora. Células T virgenes convencionales pueden diferenciarse en los órganos linfáticos secundarios en T reguladoras
� Tr 1 son células T reguladoras FOXP 3 - que median su actividad supresora a través de la producción de IL-10 � TH 3 son células T reguladoras FOXP 3 - que median su actividad supresora a través de la producción de TGF-B. Tolerancia Oral � Tercera población que al activarse expresan FOXP 3 y median un efecto supresor através de varios mecanismos
Adquieren su perfil supresor luego de activarse por el antígeno en los órganos linfáticos secundarios. Principalmente producen IL-10 y TGF-B. -Numerosas evidencias sugieren que su inducción es dirigida por células dendríticas semimaduras presentes en los órganos linfáticos secundarios, que expresan un fenotipo caracterizado por baja expresión de CD 40, baja producción de IL 12 y alta producción de IL-10. -CD que no han recibido las señales de peligro y arriban a los órganos linfáticos secundarios sin alcanzar su madurez.
La administración de un antígeno por vía oral o la estimulación in vitro de células T CD 4+CD 25 - en presencia de factor de crecimiento transformador B induce la generación de células T CD 4+ productoras de TGFB (Células Th 3). Inhibición de las vías de señalización empleadas por el TGFB produce la activación espontánea de células T y la inducción de cuadros inflamatorios in vivo…. …. th 3 tendrían un rol en los mecanismos de escape tumoral frente a la respuesta inmune. .
� Se generan en órganos linfáticos secundarios en el momento de reconocer al antígeno en condiciones TOLEROGÉNICAS. AUSENCIA DE CITOCINAS PROINFLAMATORIAS PRESENCIA DE IL-10 Y TGFB BAJA EXPRESIÓN DE MOLECULAS COESTIMULATORIAS PRODUCCIÓN DE ÁCIDO RETINOICO POR DC EN LA MUCOSA INTESTINAL
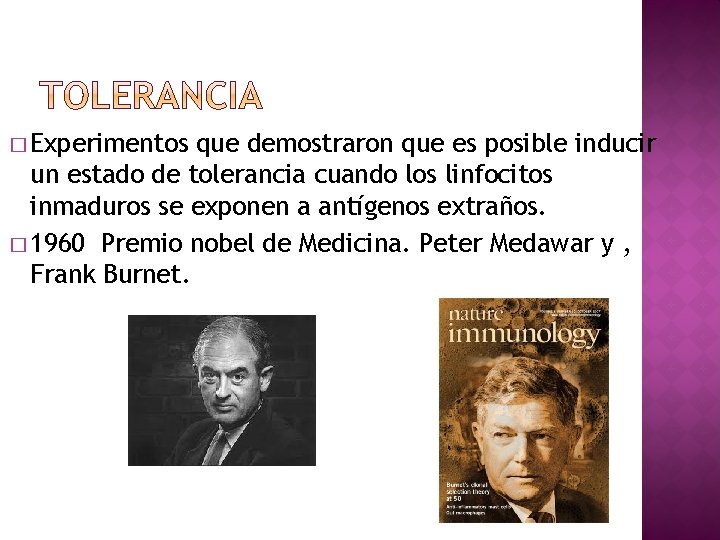
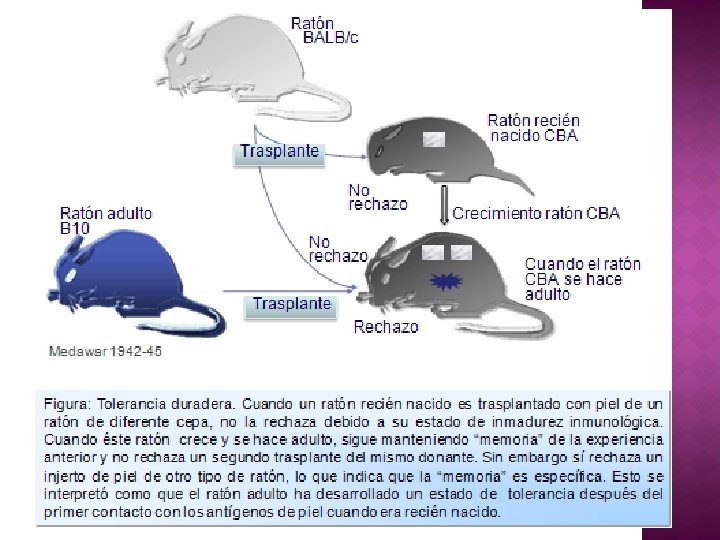
� Experimentos que demostraron que es posible inducir un estado de tolerancia cuando los linfocitos inmaduros se exponen a antígenos extraños. � 1960 Premio nobel de Medicina. Peter Medawar y , Frank Burnet.
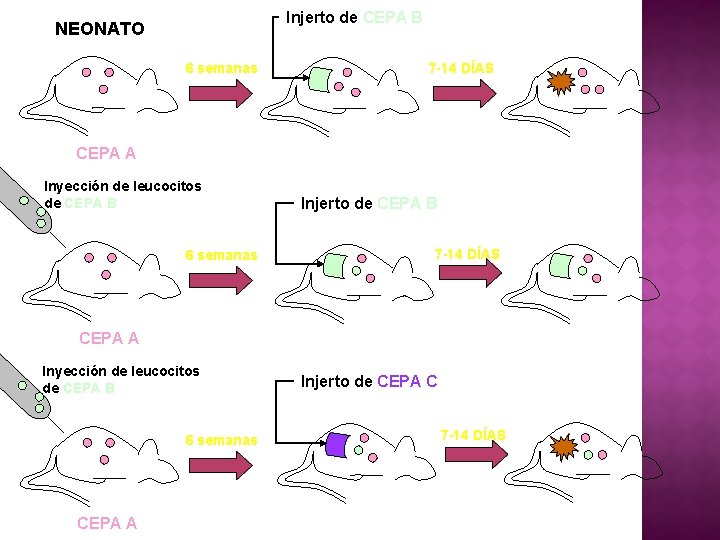
� Ratón de la cepa A antes de su nacimiento, le implantó células alogénicas provenientes de un ratón B. Cuando el ratón A alcanzó el estado de adulto aceptó el injerto proveniente de B. � La adquisición activa de tolerancia fue específica. � La administración en el ratón de cepa A de células no tolerizadas fue capaz de romper el estado de tolerancia.
La tolerización inducida por el reconocimiento antigénico en los linfocitos inmaduros es sólo aplicable a antígenos extraños? . TOLERANCIA CENTRAL
MECANISMOS DE TOLERANCIA INMUNE
TOLERANCIA INMUNE � Estado de “no respuesta” a un antígeno inducido por una exposición previa a ese antígeno. Por lo tanto es específica � El desarrollo de tolerancia a autoantígenos es necesario ya que al azar se genera una amplia diversidad de receptores específicos para antígenos y algunos de éstos, son autoreactivos � Las células que expresan estos receptores deben ser eliminadas, ya sea física o funcionalmente
La tolerancia se puede desarrollar de un modo natural, como cuando un animal en desarrollo se vuelve incapaz de responder a sus propias moléculas (autototolerancia). Cuando este sistema falla, se producen patologías por autoinmunidad.
TOLERANCIA INMUNE A LO PROPIO � Estado fisiológico que se adquiere en el cual el sistema inmune reconoce lo propio pero no establece una respuesta inmune que conlleve a la destrucción de los autoantígenos � No hay una diferencia fundamental entre moléculas propias o extrañas para inducir un estado de tolerancia siempre que el antígeno se introduzca en el momento y lugar adecuado
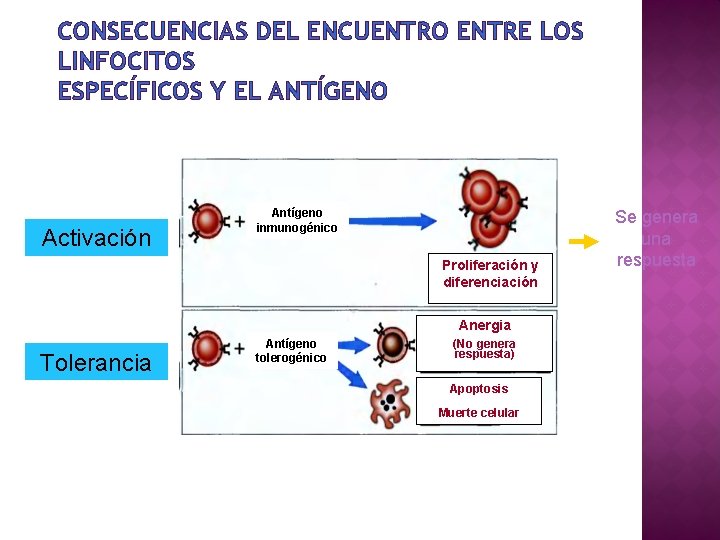
CONSECUENCIAS DEL ENCUENTRO ENTRE LOS LINFOCITOS ESPECÍFICOS Y EL ANTÍGENO Activación Antígeno inmunogénico Proliferación y diferenciación Anergia Tolerancia Antígeno tolerogénico (No genera respuesta) Apoptosis Muerte celular Se genera una respuesta
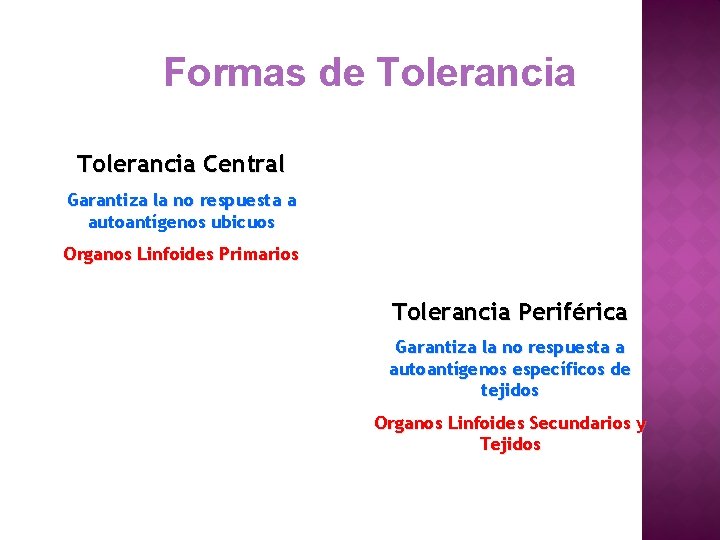
Formas de Tolerancia Central Garantiza la no respuesta a autoantígenos ubicuos Organos Linfoides Primarios Tolerancia Periférica Garantiza la no respuesta a autoantígenos específicos de tejidos Organos Linfoides Secundarios y Tejidos
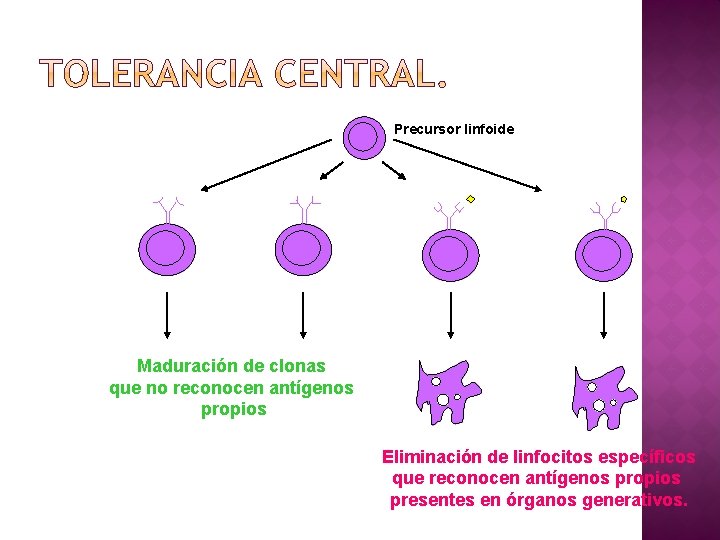
Precursor linfoide Maduración de clonas que no reconocen antígenos propios Eliminación de linfocitos específicos que reconocen antígenos propios presentes en órganos generativos.
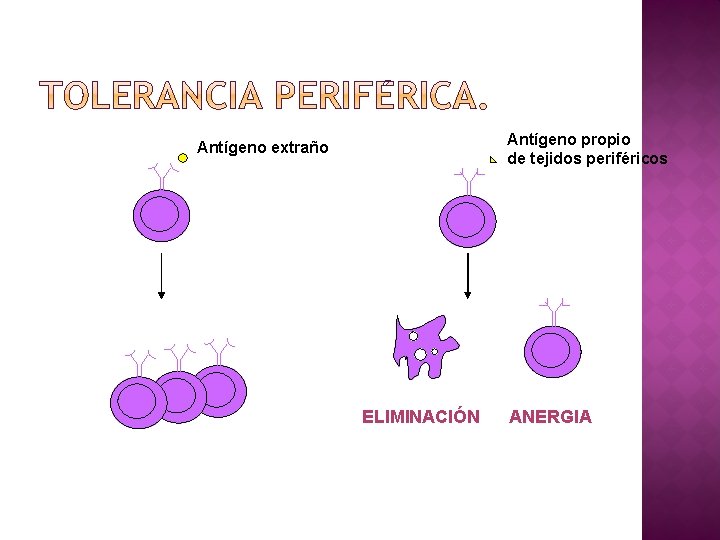
Antígeno propio de tejidos periféricos Antígeno extraño ELIMINACIÓN ANERGIA
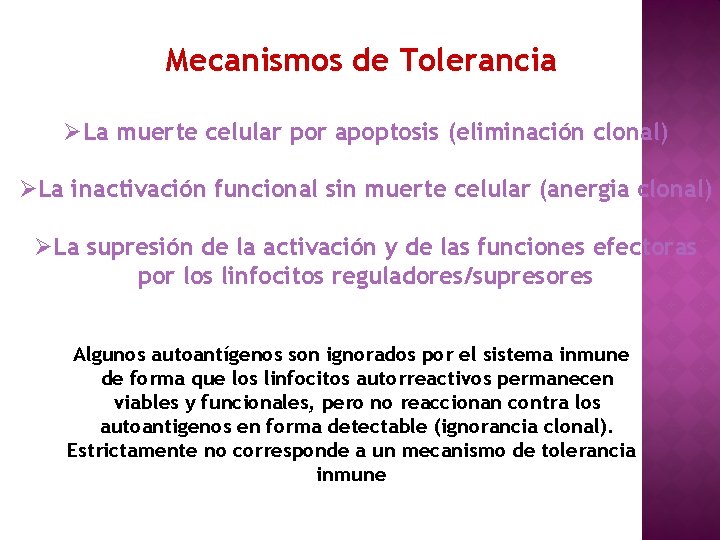
Mecanismos de Tolerancia ØLa muerte celular por apoptosis (eliminación clonal) ØLa inactivación funcional sin muerte celular (anergia clonal) ØLa supresión de la activación y de las funciones efectoras por los linfocitos reguladores/supresores Algunos autoantígenos son ignorados por el sistema inmune de forma que los linfocitos autorreactivos permanecen viables y funcionales, pero no reaccionan contra los autoantigenos en forma detectable (ignorancia clonal). Estrictamente no corresponde a un mecanismo de tolerancia inmune
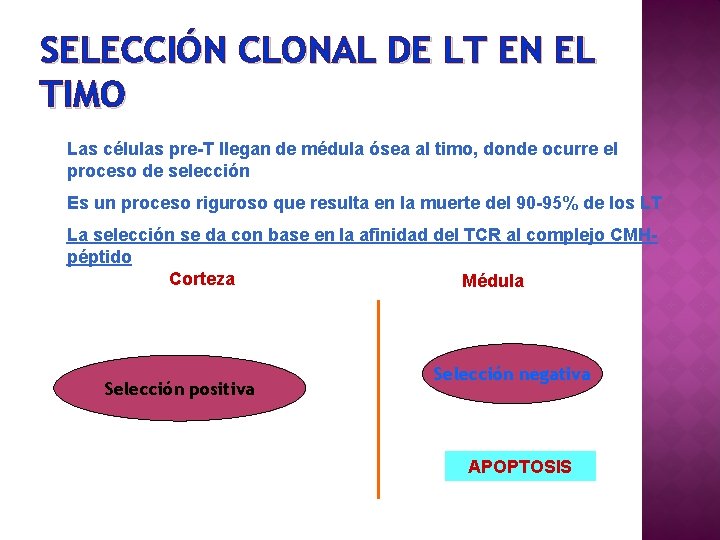
SELECCIÓN CLONAL DE LT EN EL TIMO Las células pre-T llegan de médula ósea al timo, donde ocurre el proceso de selección Es un proceso riguroso que resulta en la muerte del 90 -95% de los LT La selección se da con base en la afinidad del TCR al complejo CMHpéptido Corteza Médula Selección positiva Selección negativa APOPTOSIS
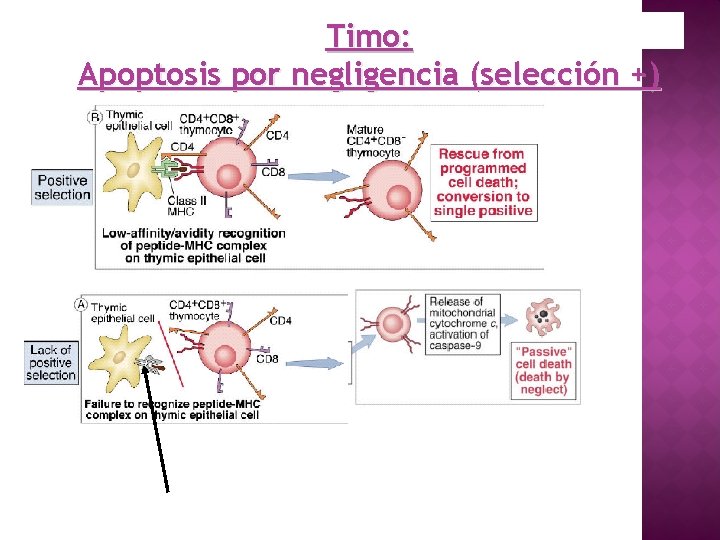
Timo: Apoptosis por negligencia (selección +)
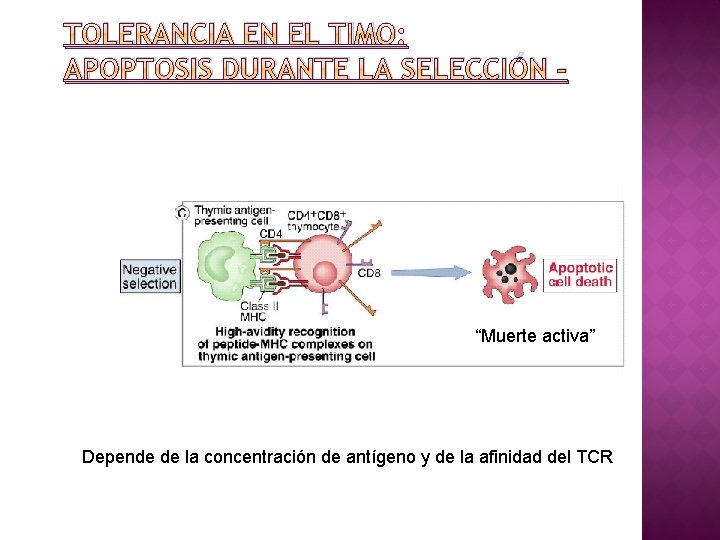
TOLERANCIA EN EL TIMO: APOPTOSIS DURANTE LA SELECCIÓN - “Muerte activa” Depende de la concentración de antígeno y de la afinidad del TCR
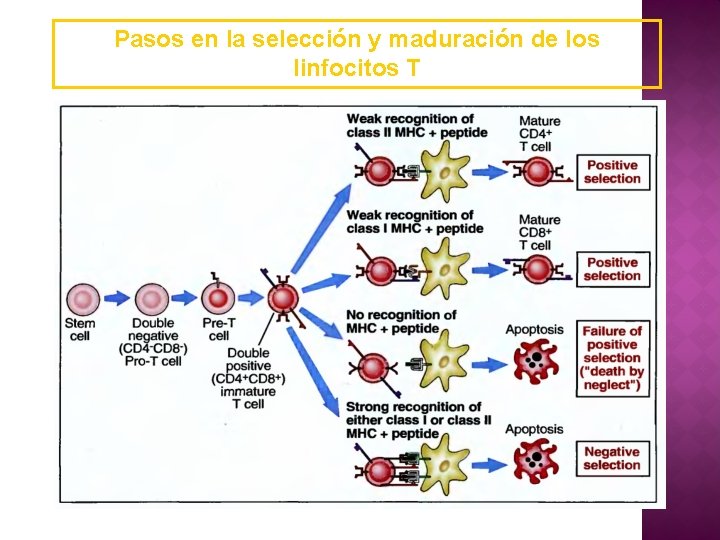
Pasos en la selección y maduración de los linfocitos T
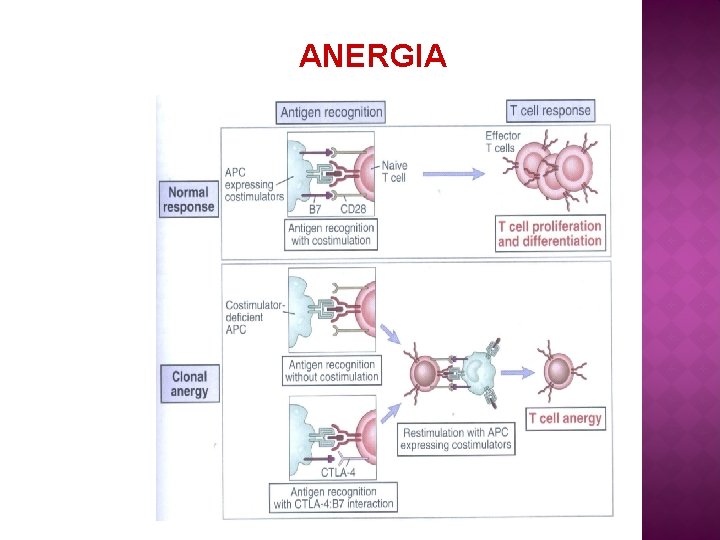
TOLERANCIA PERIFÉRICA DE CÉLULAS T 1. ANERGIA: la activación de células T requiere señales coestimulatorias además de las señales derivadas de la unión al antígeno. Ante la ausencia de señales coestimulatorias, la célula se convierte en “anérgica”. ANERGIA: Ausencia de respuesta funcional
LINFOCITOS T 1. - TOLERANCIA CENTRAL 2. - TOLERANCIA PERIFÉRICA � Deleción clonal � Anergia clonal � Ignorancia inmunológica � Células T reguladoras LINFOCITOS B 1. - TOLERANCIA CENTRAL 2. - TOLERANCIA PERIFÉRICA � Deleción clonal � Anergia clonal
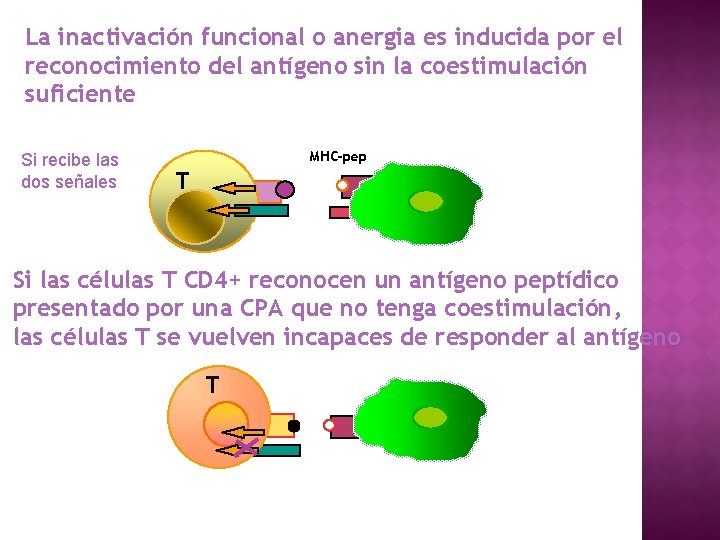
La inactivación funcional o anergia es inducida por el reconocimiento del antígeno sin la coestimulación suficiente Si recibe las dos señales TCR MHC-pep T CD 28 B 7 Si las células T CD 4+ reconocen un antígeno peptídico presentado por una CPA que no tenga coestimulación, las células T se vuelven incapaces de responder al antígeno T ANERGIA
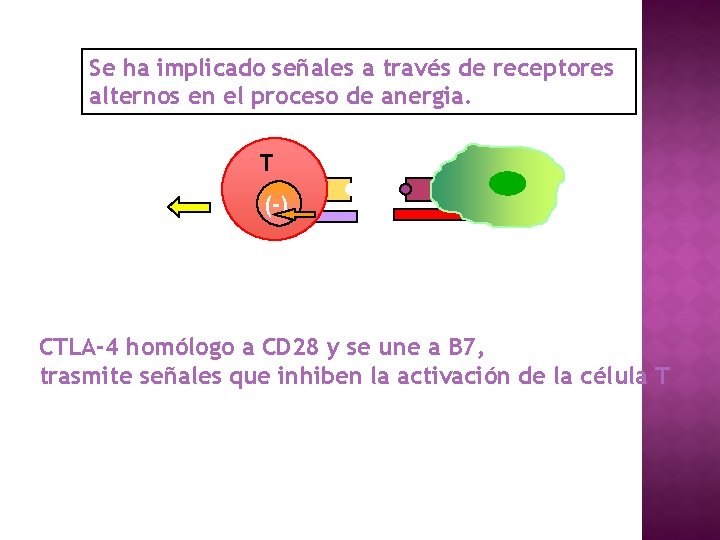
Se ha implicado señales a través de receptores alternos en el proceso de anergia. T ANERGIA (-) CTLA-4 B 7 CTLA-4 homólogo a CD 28 y se une a B 7, trasmite señales que inhiben la activación de la célula T
ANERGIA
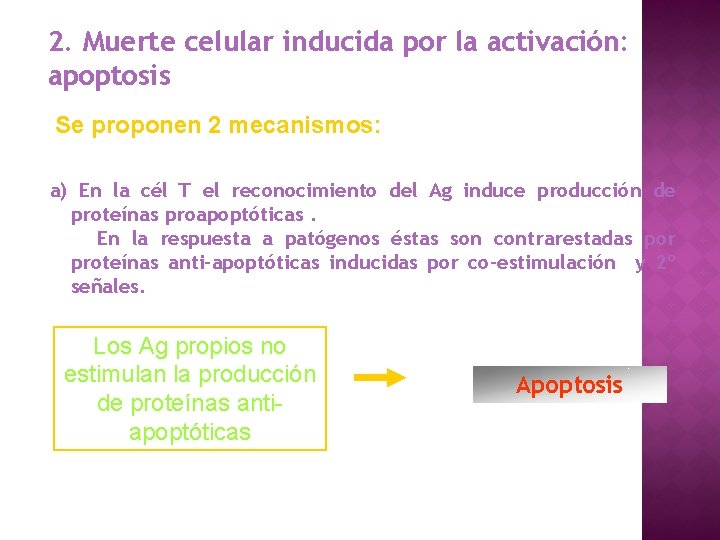
2. Muerte celular inducida por la activación: apoptosis Se proponen 2 mecanismos: a) En la cél T el reconocimiento del Ag induce producción de proteínas proapoptóticas. En la respuesta a patógenos éstas son contrarestadas por proteínas anti-apoptóticas inducidas por co-estimulación y 2º señales. Los Ag propios no estimulan la producción de proteínas antiapoptóticas Apoptosis
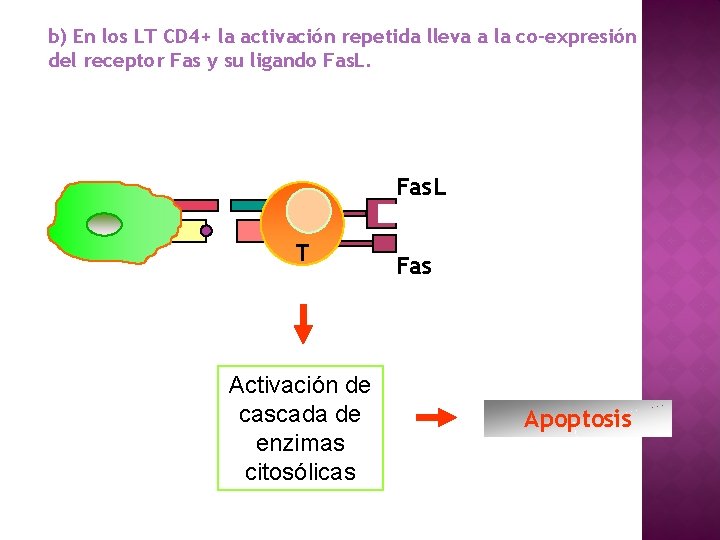
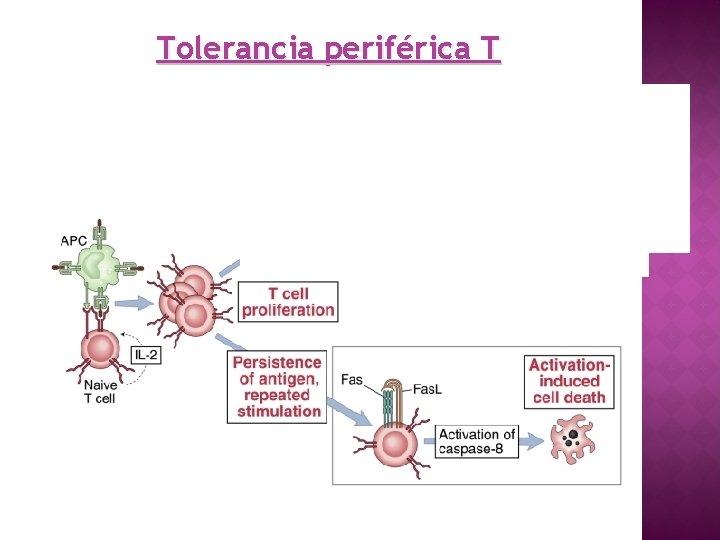
b) En los LT CD 4+ la activación repetida lleva a la co-expresión del receptor Fas y su ligando Fas. L T Activación de cascada de enzimas citosólicas Fas Apoptosis
Tolerancia periférica T
3. Mecanismos reguladores 3. 1. La reactividad de las células T podría ser controlada indirectamente por una subpoblación diferente de células T con funciones reguladoras. 3. 2. Citoquinas reguladoras
Generación de cel. T reguladoras naturales Downloaded from: Student. Consult (on 2 May 2005 07: 00 PM) © 2005 Elsevier
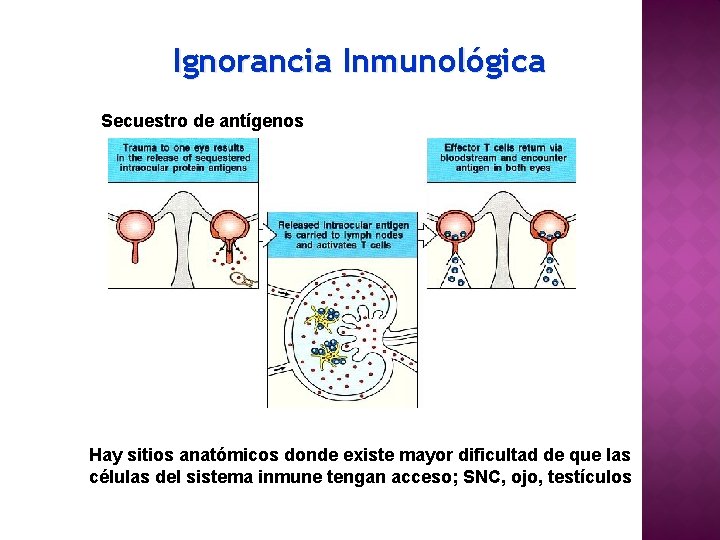
Ignorancia Inmunológica Secuestro de antígenos Hay sitios anatómicos donde existe mayor dificultad de que las células del sistema inmune tengan acceso; SNC, ojo, testículos
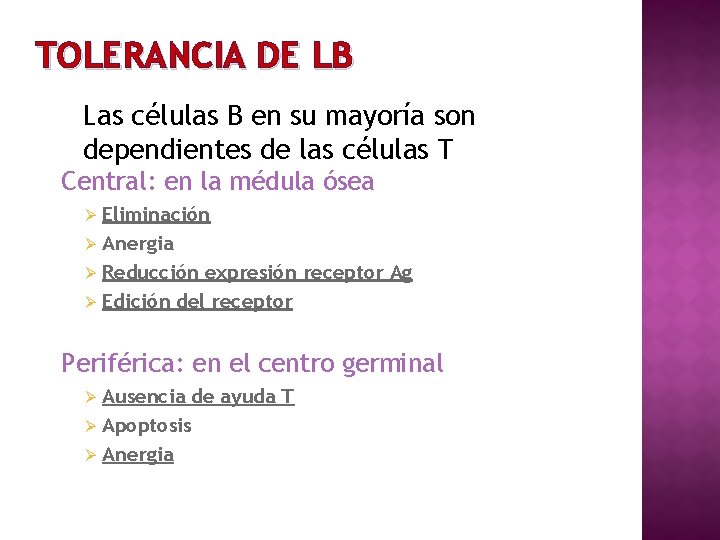
TOLERANCIA DE LB Las células B en su mayoría son dependientes de las células T Central: en la médula ósea Ø Eliminación Ø Anergia Ø Reducción expresión receptor Ag Ø Edición del receptor Periférica: en el centro germinal Ø Ausencia de ayuda T Ø Apoptosis Ø Anergia
Tolerancia central 1. ELIMINACIÓN DE CÉLULAS B Se da en la médula ósea: Las células B en diferenciación que expresan receptores de inmunoglobulinas, con alta afinidad de unión para antígenos propios son eliminadas por apoptosis
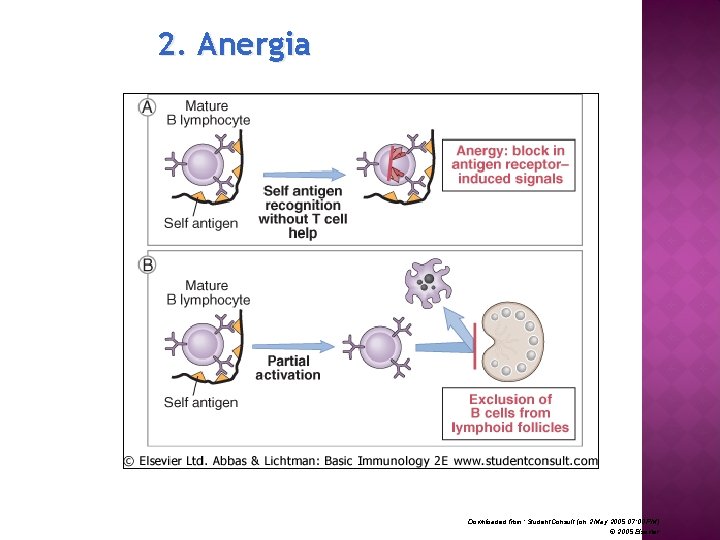
2. ANERGIA DE CÉLULAS B Se produce cuando las células B, con el potencial para responder a proteínas propias solubles, inhiben sus receptores de superficie Ig. M
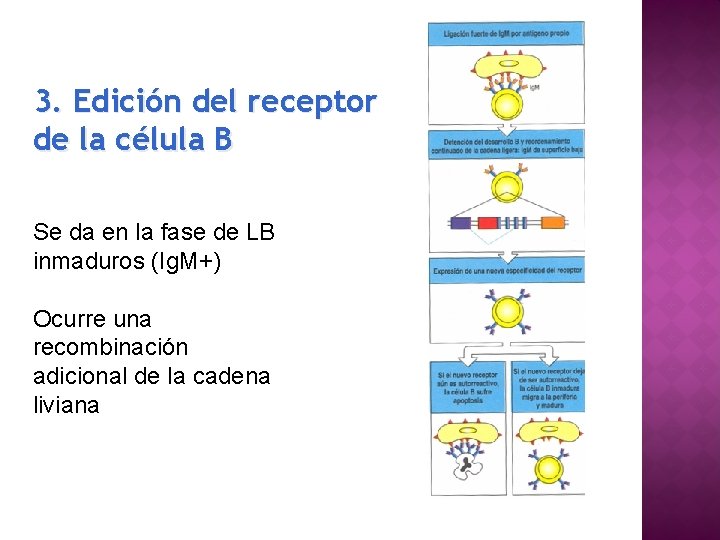
3. Edición del receptor de la célula B Se da en la fase de LB inmaduros (Ig. M+) Ocurre una recombinación adicional de la cadena liviana
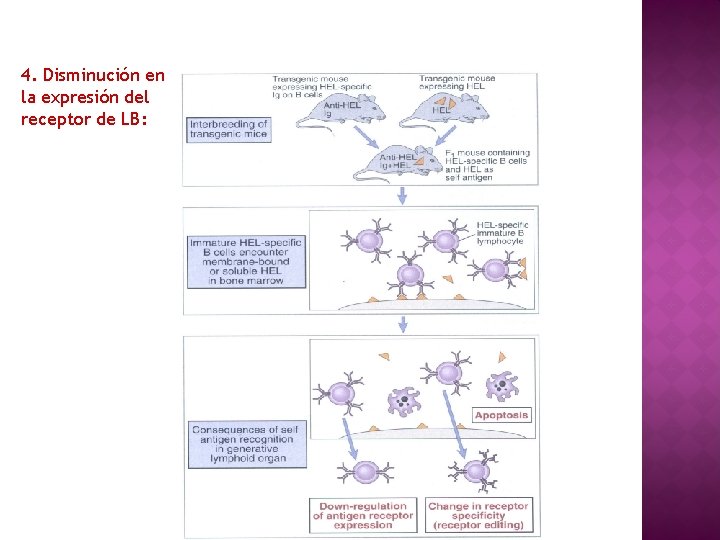
4. Disminución en la expresión del receptor de LB:
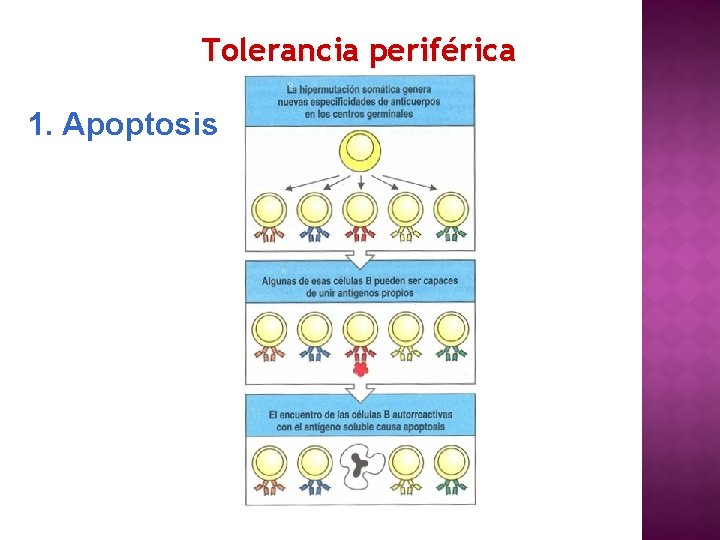
Tolerancia periférica 1. Apoptosis
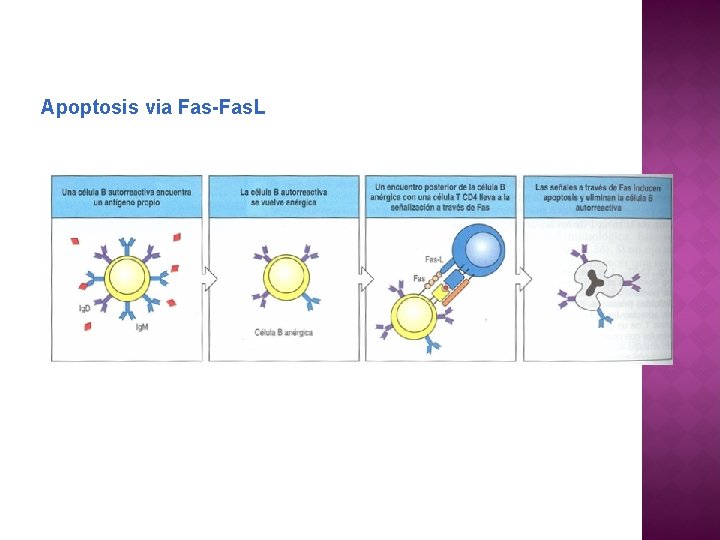
Apoptosis via Fas-Fas. L
2. Anergia Downloaded from: Student. Consult (on 2 May 2005 07: 00 PM) © 2005 Elsevier
TOLERANCIA ARTIFICIAL Puede inducirse artificialmente por varios esquemas que eventualmente pueden utilizarse clínicamente, para evitar el rechazo de transplantes y para el tratamiento de enfermedades autoinmunes, alergias
La tolerancia inducida experimentalmente es un estado de ausencia de respuesta a un antígeno que normalmente sería inmunogénico. Para ello el antígeno ha de ser administrado bajo ciertas condiciones.
� Los antígenos extraños pueden ser administrados por vías que preferencialmente inhiben respuestas inmunes por la inducción de tolerancia en linfocitos específicos. � La inducción de la tolerancia inmunológica puede ser explotada como una alternativa terapéutica para prevenir respuestas inmunes dañinas.
La tolerancia es un estado adquirido ("aprendido"), no innato. � Se induce más fácilmente en linfocitos inmaduros. � Se induce cuando no hay señal coestimulatoria. � Requiere que el antígeno persista para que dicho estado permanezca. �
Injerto de CEPA B NEONATO 6 semanas 7 -14 DÍAS CEPA A Inyección de leucocitos de CEPA B 6 semanas Injerto de CEPA B 7 -14 DÍAS CEPA A Inyección de leucocitos de CEPA B 6 semanas CEPA A Injerto de CEPA C 7 -14 DÍAS
INDUCCIÓN DE TOLERANCIA Naturaleza del antígeno: soluble (tolerogénico); particulado (inmunogénico) Vía de entrada: oral, sanguíneo (tolerogénico); intradérmico, muscular (inmunogénico) APCs DC tolerogénicas, B cells, APC no profesionales (tolerogénicas) DC Citocinas IL-10, TGF-b suelen ser tolerogénicas
Se describió una población de células TR CD 8+CD 28 - capaces de inducir en las CD la expresión de ILT 3 e ILT 4 (immunoglobulin-like transcripst) que inhiben tanto la expresión de moléculas co-estimulatorias como la señalización a través de CD 40.
Linfocitos B capaces de reconocer autoantígenos que hayan escapado a los mecanismos de delección propios de la tolerancia central podrían madurar sin convertirse en peligrosos ya que no contarían con linfocitos T autorreactivos que puedan colaborar con ellos para su expansión clonal y diferenciación.
Las células T efectoras son células de vida media corta. La eliminación del antígeno priva a las células T efectoras de señales co-estimulatorias y citocinas (ambas producidas durante el reconocimiento antigénico) y conduce a una rápida pérdida en la expresión de proteínas antiapoptóticas.
El receptor CTLA-4 se expresa en los linfocitos T luego de su activiación y envía señales que inhiben la transcripción de la IL-2 y la progresión de las células T en el ciclo celular. CTLA-4 posee alta afinidad por las moléculas CD 80/CD 86 sustancialmente mayor que CD 28
Mientras que las células T expresan en forma constitutiva la molécula Fas, su activación conduce a la expresión de Fas. L. La interacción Fas. L-Fas desencadena la apoptosis de los linfocitos T efectores.
1. secuestro. El autoantígeno se oculta físicamente o funcionalmente (carece de APC) del sistema inmunitario. 2. Sitio privilegiado. El fas o las citocinas (TGFB, IL 10) impiden que las células T respondan al autoantígeno. 3. Homeostasis. El tamaño del reservorio de los linfocitos T está controlado por la apoptosis (muerte celular inducida por activación o muerte celular programada), la competencia por factores de crecimiento. 4. Células t reguladoras naturales e inducidas.
Puede inducirse tolerancia en neonatos y adultos administrnado antígenos solubles. . Las células T se hacen tolerantes desde el bazo y el timo después de dosis muy bajas del antígeno y en unas horas. . La tolerancia de las células B del bazo requiere mucho más tiempo y dosis más altas de antígeno
La exposición antigénica repetida puede estimular a todas las células que responden al antígeno para que se diferencien en células finales de vida corta, sin dejar células que puedan responder a una exposición posterior al antígeno
� Fainboim Geffner. Introducción a la Inmunología Humana 6 edición. Editorial Panamericana � Abbas AK, Lichtman AH. Basic Immunology. Functions and disorders of the immune system, 3 rd edition. Saunders (Elsevier); 2009