Faktori koji menjaju genetiku strukturu populacija evolutivni faktorimutacija
- Slides: 32
Faktori koji menjaju genetičku strukturu populacija -evolutivni faktorimutacija selekcija genetički drift protok gena
Mutacije n n Germinativne mutacije samo imaju efekat na genetičku strukturu populacije Genske, hromozomske, DNK polimorfizmi Slučajni dogadjaji Osnovni izvor varijabilnosti genofonda
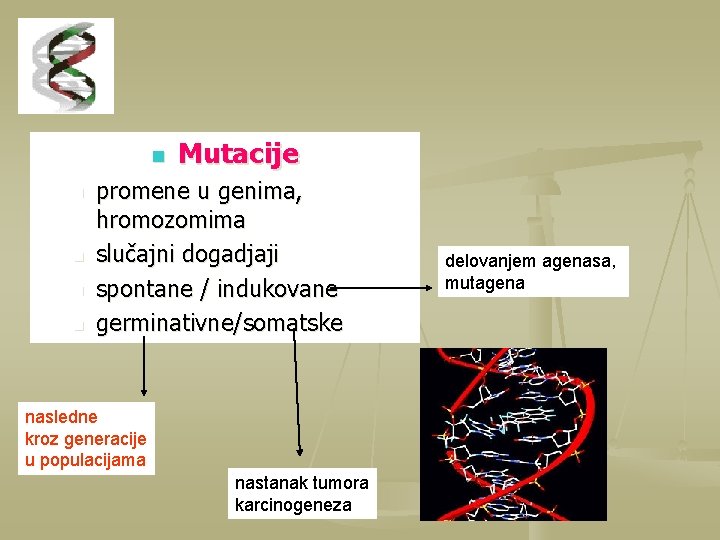
n n n Mutacije promene u genima, hromozomima slučajni dogadjaji spontane / indukovane germinativne/somatske nasledne kroz generacije u populacijama nastanak tumora karcinogeneza delovanjem agenasa, mutagena
n učestalost mutacija broj mutacija po gametu, spori, populaciji. . . n n stopa mutacija - promena učestalosti, po generaciji po ćelijskoj deobi po replikaciji stopa spontanih genskih mutacija je niska: 10 -4 -10 -8
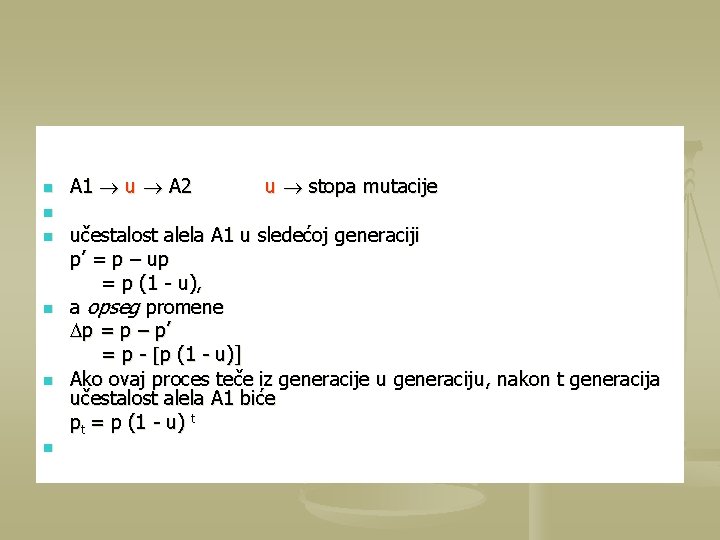
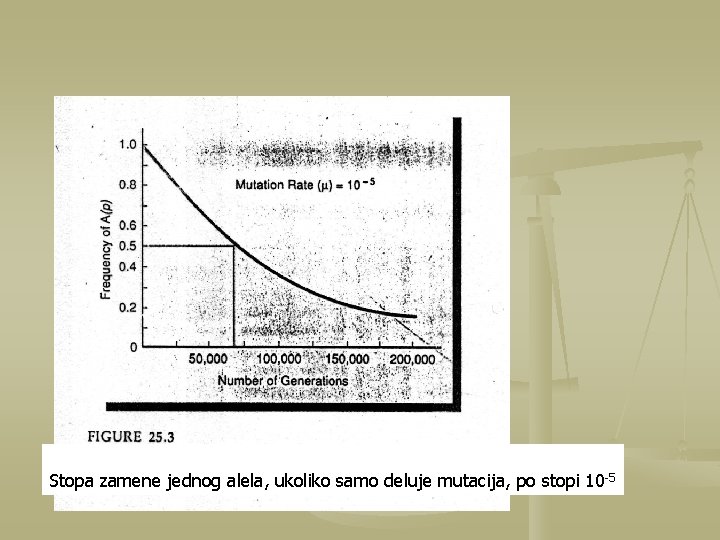
n A 1 u A 2 u stopa mutacije n n n učestalost alela A 1 u sledećoj generaciji p’ = p – up = p (1 - u), a opseg promene p = p – p ’ = p - p (1 - u)] Ako ovaj proces teče iz generacije u generaciju, nakon t generacija učestalost alela A 1 biće pt = p (1 - u) t
Stopa zamene jednog alela, ukoliko samo deluje mutacija, po stopi 10 -5
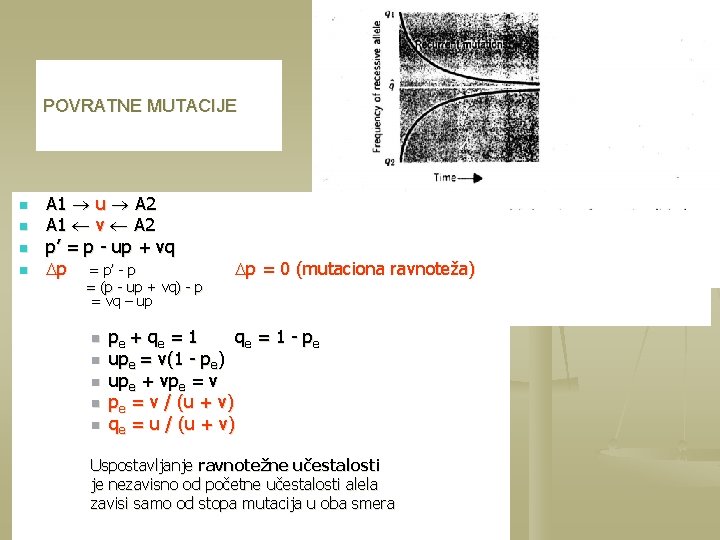
POVRATNE MUTACIJE n n A 1 u A 2 A 1 v A 2 p’ = p - up + vq p = p’ - p = (p - up + vq) - p = vq – up n n n p = 0 (mutaciona ravnoteža) upe = vqe pe + q e = 1 qe = 1 - p e upe = v(1 - pe) upe + vpe = v / (u + v) qe = u / (u + v) Uspostavljanje ravnotežne učestalosti je nezavisno od početne učestalosti alela zavisi samo od stopa mutacija u oba smera
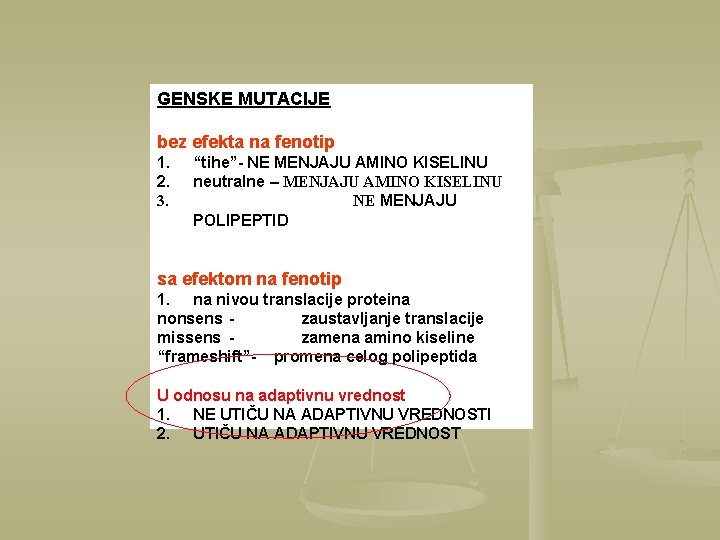
GENSKE MUTACIJE bez efekta na fenotip 1. 2. 3. “tihe”- NE MENJAJU AMINO KISELINU neutralne – MENJAJU AMINO KISELINU NE MENJAJU POLIPEPTID sa efektom na fenotip 1. na nivou translacije proteina nonsens zaustavljanje translacije missens zamena amino kiseline “frameshift”- promena celog polipeptida U odnosu na adaptivnu vrednost 1. NE UTIČU NA ADAPTIVNU VREDNOSTI 2. UTIČU NA ADAPTIVNU VREDNOST
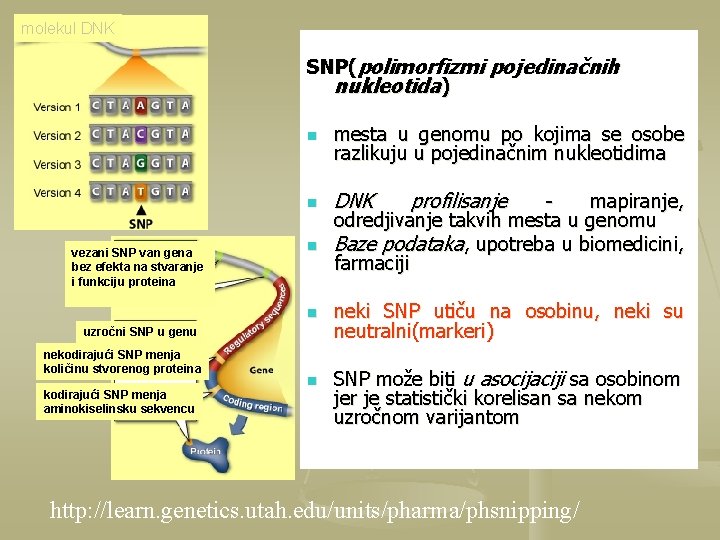
molekul DNK SNP(polimorfizmi pojedinačnih nukleotida) vezani SNP van gena bez efekta na stvaranje i funkciju proteina n mesta u genomu po kojima se osobe razlikuju u pojedinačnim nukleotidima n DNK n n uzročni SNP u genu nekodirajući SNP menja količinu stvorenog proteina kodirajući SNP menja aminokiselinsku sekvencu n profilisanje mapiranje, odredjivanje takvih mesta u genomu Baze podataka, upotreba u biomedicini, farmaciji neki SNP utiču na osobinu, neki su neutralni(markeri) SNP može biti u asocijaciji sa osobinom jer je statistički korelisan sa nekom uzročnom varijantom http: //learn. genetics. utah. edu/units/pharma/phsnipping/
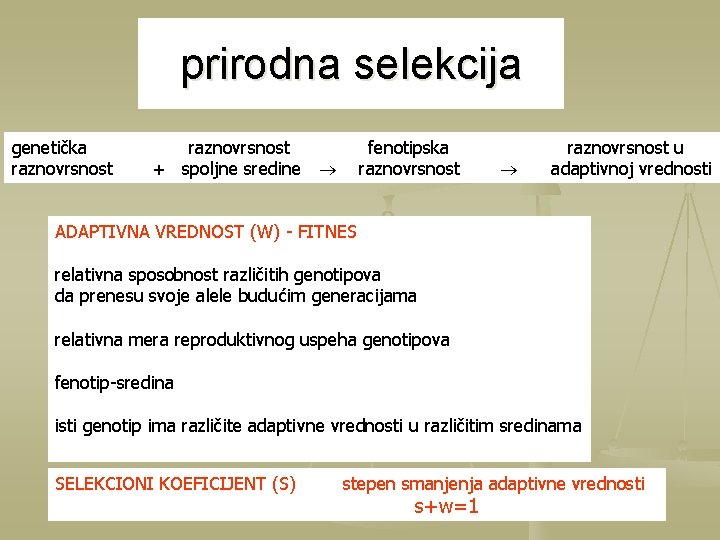
prirodna selekcija genetička raznovrsnost + spoljne sredine fenotipska raznovrsnost u adaptivnoj vrednosti ADAPTIVNA VREDNOST (W) - FITNES relativna sposobnost različitih genotipova da prenesu svoje alele budućim generacijama relativna mera reproduktivnog uspeha genotipova fenotip-sredina isti genotip ima različite adaptivne vrednosti u različitim sredinama SELEKCIONI KOEFICIJENT (S) stepen smanjenja adaptivne vrednosti s+w=1
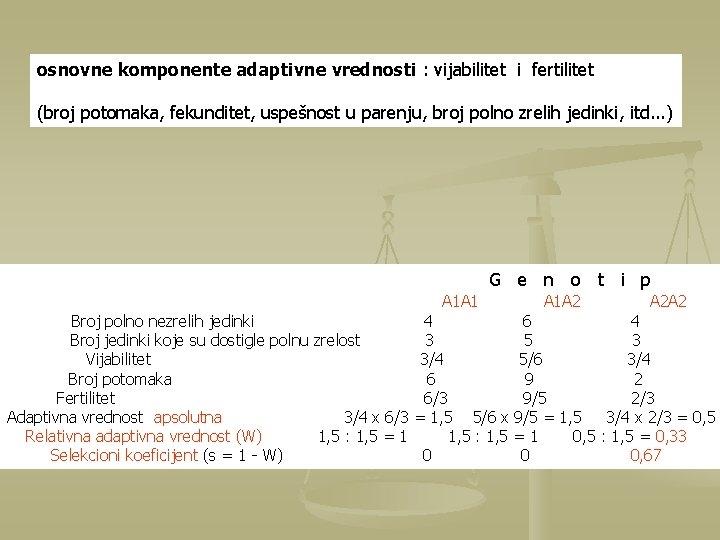
osnovne komponente adaptivne vrednosti : vijabilitet i fertilitet (broj potomaka, fekunditet, uspešnost u parenju, broj polno zrelih jedinki, itd. . . ) G e n o t i p A 1 A 1 Broj polno nezrelih jedinki Broj jedinki koje su dostigle polnu zrelost Vijabilitet Broj potomaka Fertilitet Adaptivna vrednost (apsolutna) 3/4 x 6/3 Relativna adaptivna vrednost (W) 1, 5 : 1, 5 = 1 Selekcioni koeficijent (s = 1 - W) A 1 A 2 A 2 A 2 4 6 4 3 5 3 3/4 5/6 3/4 6 9 2 6/3 9/5 2/3 = 1, 5 5/6 x 9/5 = 1, 5 3/4 x 2/3 = 0, 5 1, 5 : 1, 5 = 1 0, 5 : 1, 5 = 0, 33 0 0 0, 67
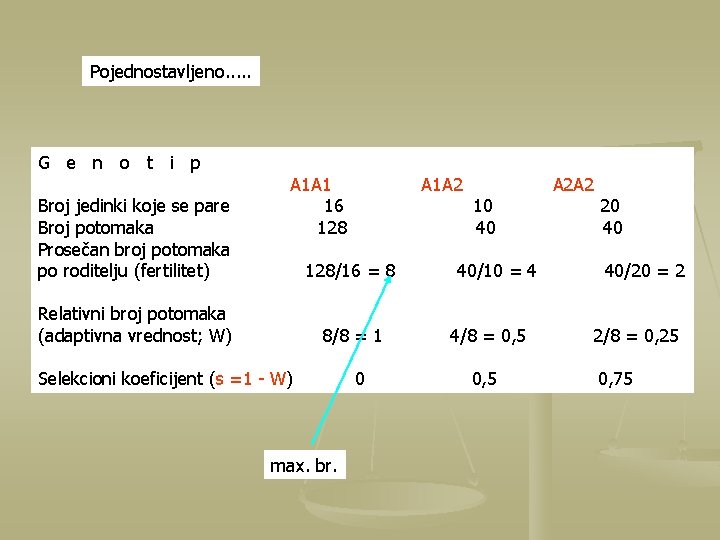
Pojednostavljeno. . . G e n o t i p Broj jedinki koje se pare Broj potomaka Prosečan broj potomaka po roditelju (fertilitet) A 1 A 1 16 128 A 1 A 2 128/16 = 8 Relativni broj potomaka (adaptivna vrednost; W) 8/8 = 1 Selekcioni koeficijent (s =1 - W) max. br. 0 10 40 40/10 = 4 4/8 = 0, 5 A 2 A 2 20 40 40/20 = 2 2/8 = 0, 25 0, 75
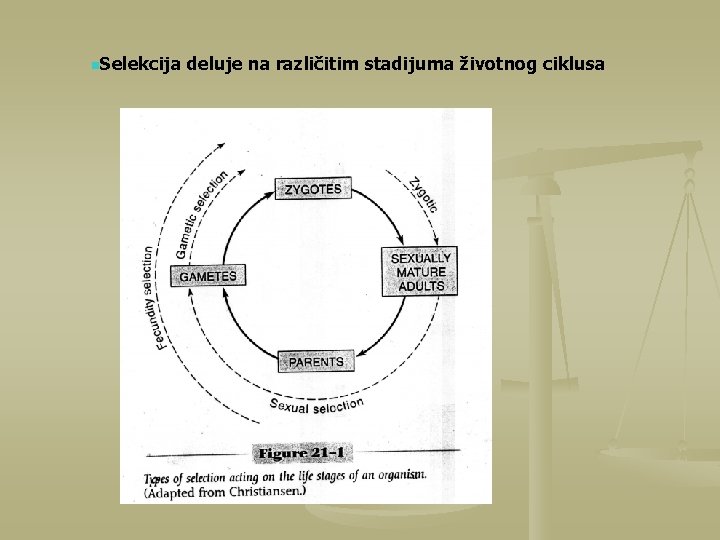
n. Selekcija deluje na različitim stadijuma životnog ciklusa
n n Prirodna selekcija je odraz razlika u adaptivnoj vrednosti medju jedinkama populacije Prednost pojedinih genotipova Povećanje adaptivne vrednosti pojedinih genotipova Veći doprinos pojedinih alela adaptivnoj vrednosti – viša učestalost u narednoj generaciji
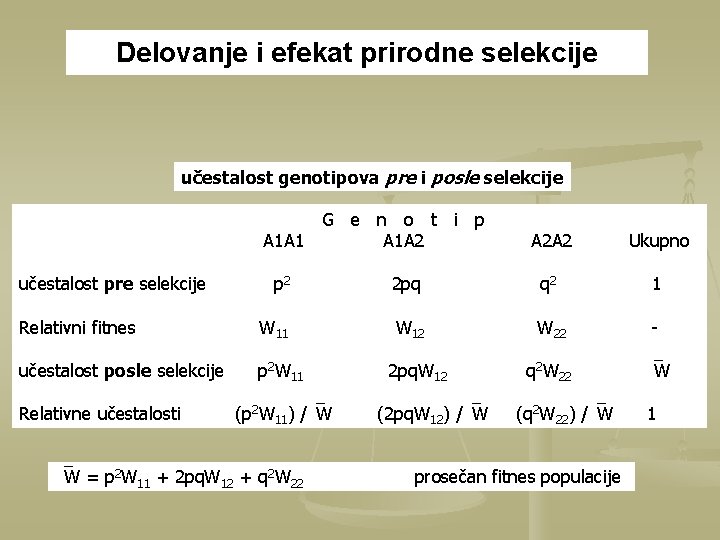
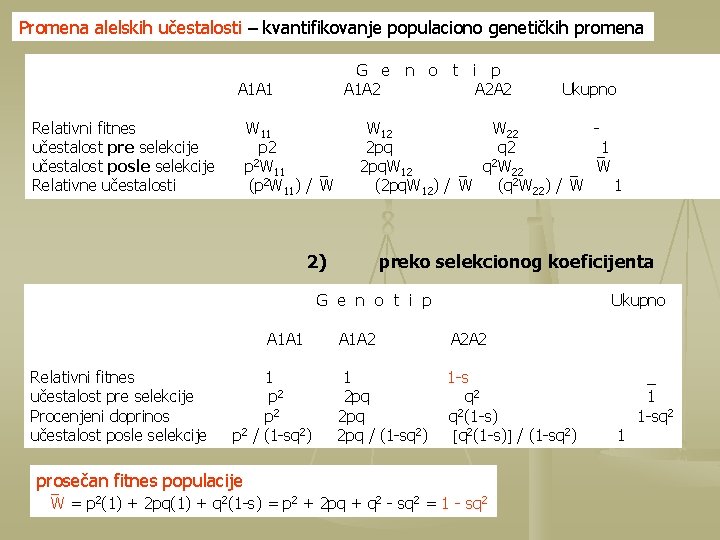
Delovanje i efekat prirodne selekcije učestalost genotipova pre i posle selekcije G e n o t i p A 1 A 1 A 1 A 2 učestalost pre selekcije A 2 A 2 Ukupno p 2 2 pq q 2 1 Relativni fitnes W 11 W 12 W 22 - učestalost posle selekcije p 2 W 11 q 2 W 22 W Relativne učestalosti (p 2 W 11) / W W = p 2 W 11 + 2 pq. W 12 + q 2 W 22 2 pq. W 12 (2 pq. W 12) / W (q 2 W 22) / W prosečan fitnes populacije 1
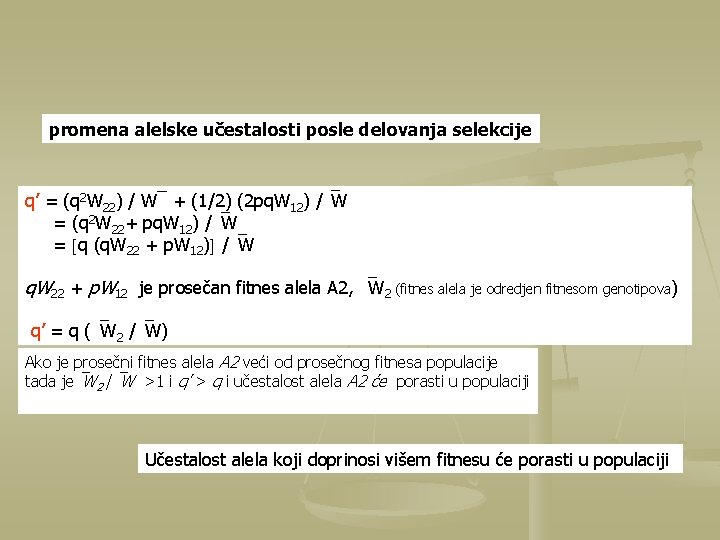
promena alelske učestalosti posle delovanja selekcije q’ = (q 2 W 22) / W¯ + (1/2) (2 pq. W 12) / W = (q 2 W 22+ pq. W 12) / W = q (q. W 22 + p. W 12) / W q. W 22 + p. W 12 je prosečan fitnes alela A 2, W 2 (fitnes alela je odredjen fitnesom genotipova) q’ = q ( W 2 / W) Ako je prosečni fitnes alela A 2 veći od prosečnog fitnesa populacije tada je W 2 / W >1 i q’ > q i učestalost alela A 2 će porasti u populaciji Učestalost alela koji doprinosi višem fitnesu će porasti u populaciji
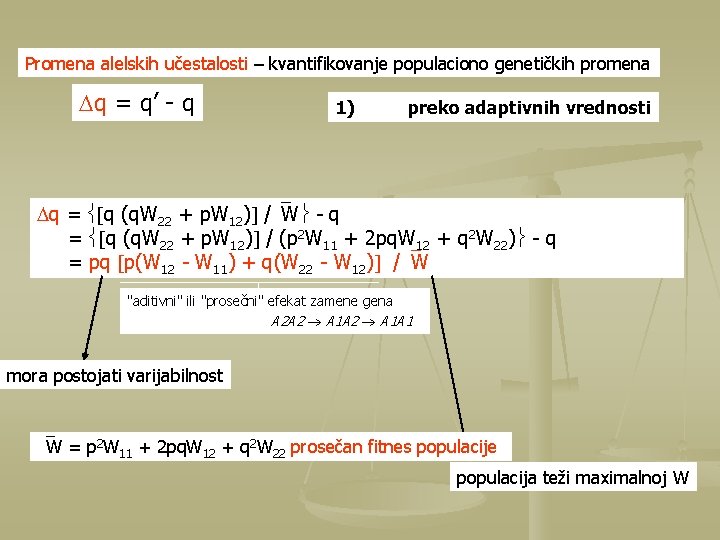
Promena alelskih učestalosti – kvantifikovanje populaciono genetičkih promena q = q’ - q 1) preko adaptivnih vrednosti q = q (q. W 22 + p. W 12) / W - q = q (q. W 22 + p. W 12) / (p 2 W 11 + 2 pq. W 12 + q 2 W 22) - q = pq p(W 12 - W 11) + q(W 22 - W 12) / W "aditivni" ili "prosečni" efekat zamene gena A 2 A 2 A 1 A 1 mora postojati varijabilnost W = p 2 W 11 + 2 pq. W 12 + q 2 W 22 prosečan fitnes populacije populacija teži maximalnoj W
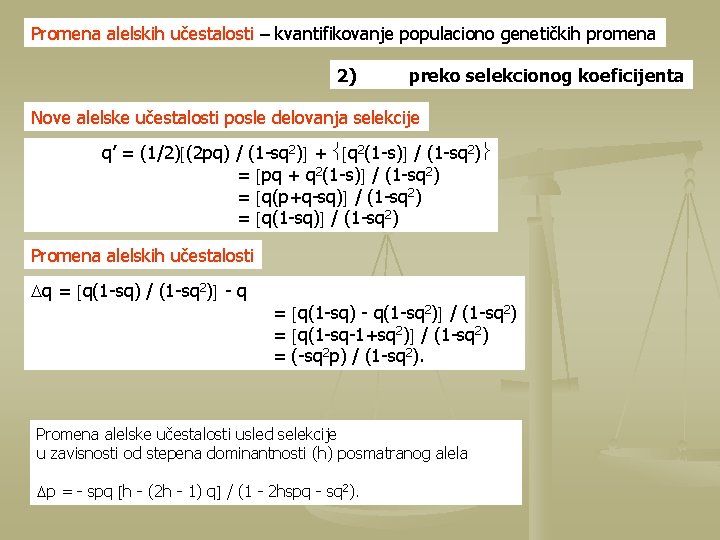
Promena alelskih učestalosti – kvantifikovanje populaciono genetičkih promena G e n o t i p A 1 A 2 A 2 A 2 A 1 A 1 Relativni fitnes učestalost pre selekcije učestalost posle selekcije Relativne učestalosti W 11 p 2 2 p W 11 (p 2 W 11) / W Ukupno W 12 W 22 2 pq q 2 1 2 2 pq. W 12 q W 22 W (2 pq. W 12) / W (q 2 W 22) / W 1 2) preko selekcionog koeficijenta G e n o t i p A 1 A 1 Relativni fitnes učestalost pre selekcije Procenjeni doprinos učestalost posle selekcije 1 p 2 p 2 / (1 -sq 2) Ukupno A 1 A 2 A 2 A 2 1 2 pq 2 pq / (1 -sq 2) 1 -s q 2(1 -s) / (1 -sq 2) prosečan fitnes populacije W = p 2(1) + 2 pq(1) + q 2(1 -s) = p 2 + 2 pq + q 2 - sq 2 = 1 - sq 2 1 _ 1 1 -sq 2
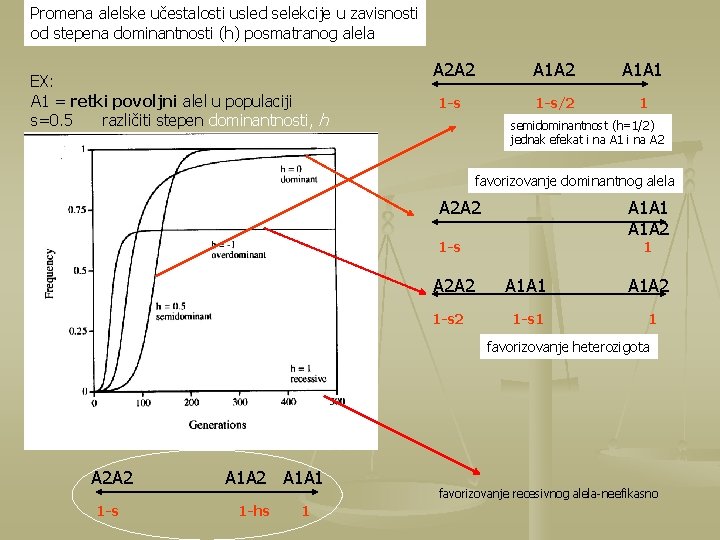
Promena alelskih učestalosti – kvantifikovanje populaciono genetičkih promena 2) preko selekcionog koeficijenta Nove alelske učestalosti posle delovanja selekcije q’ = (1/2) (2 pq) / (1 -sq 2) + q 2(1 -s) / (1 -sq 2) = pq + q 2(1 -s) / (1 -sq 2) = q(p+q-sq) / (1 -sq 2) = q(1 -sq) / (1 -sq 2) Promena alelskih učestalosti q = q(1 -sq) / (1 -sq 2) - q = q(1 -sq) - q(1 -sq 2) / (1 -sq 2) = q(1 -sq-1+sq 2) / (1 -sq 2) = (-sq 2 p) / (1 -sq 2). Promena alelske učestalosti usled selekcije u zavisnosti od stepena dominantnosti (h) posmatranog alela p = - spq h - (2 h - 1) q / (1 - 2 hspq - sq 2).
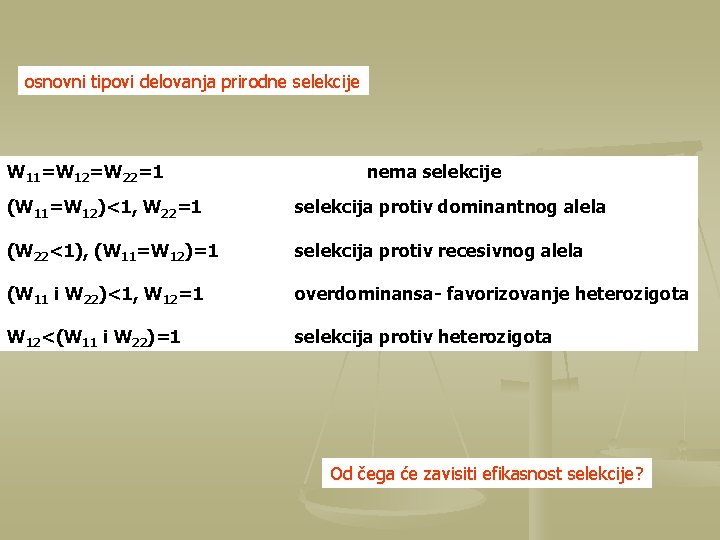
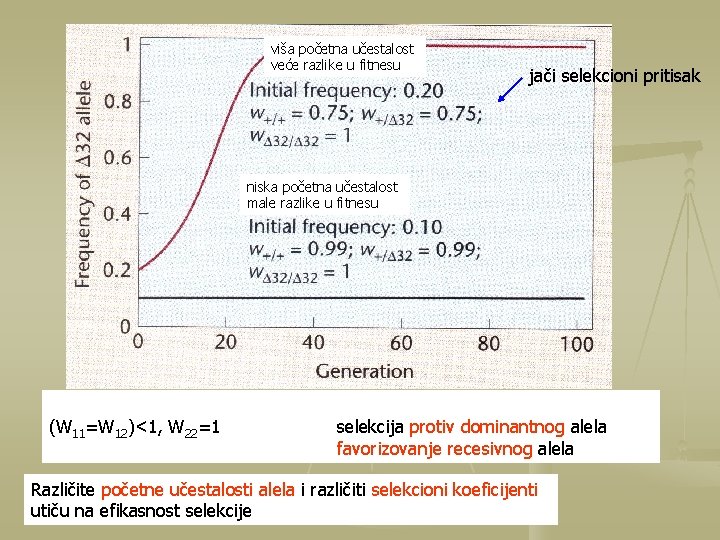
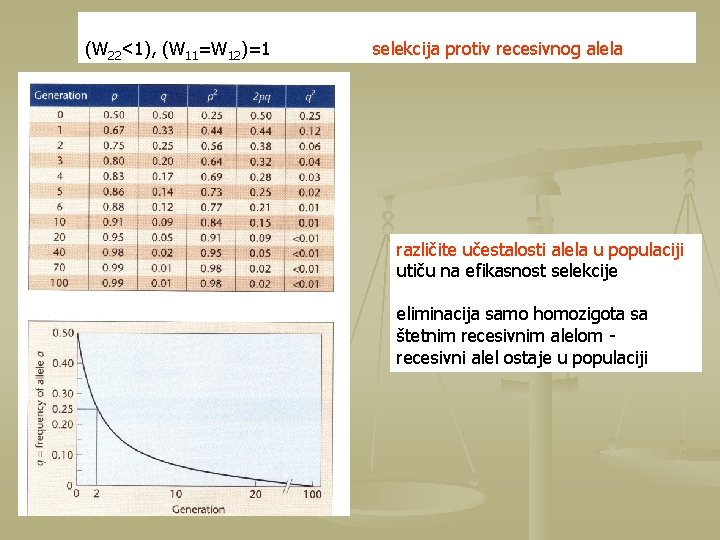
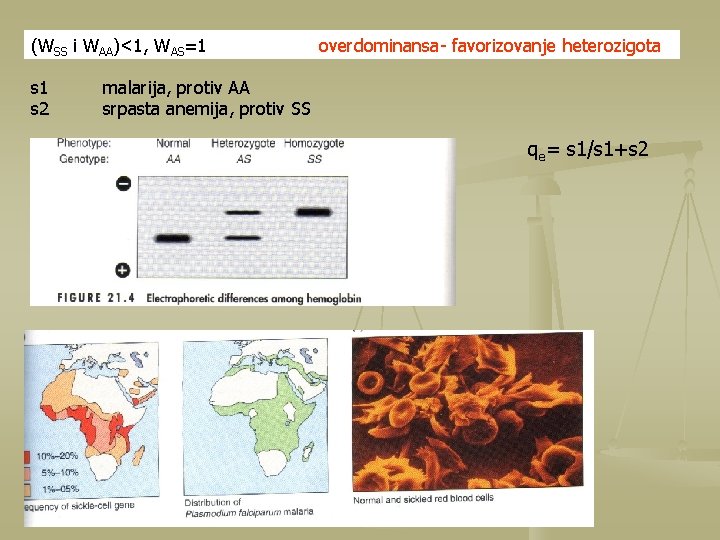
osnovni tipovi delovanja prirodne selekcije W 11=W 12=W 22=1 nema selekcije (W 11=W 12)<1, W 22=1 selekcija protiv dominantnog alela (W 22<1), (W 11=W 12)=1 selekcija protiv recesivnog alela (W 11 i W 22)<1, W 12=1 overdominansa- favorizovanje heterozigota W 12<(W 11 i W 22)=1 selekcija protiv heterozigota Od čega će zavisiti efikasnost selekcije?
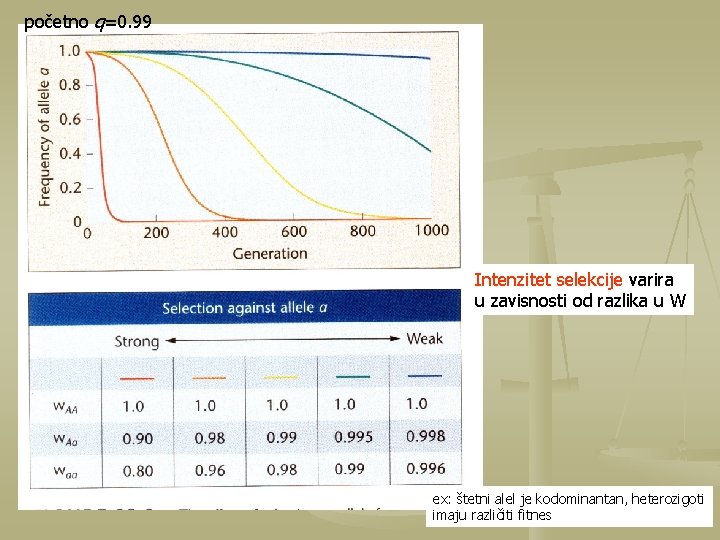
početno q=0. 99 Intenzitet selekcije varira u zavisnosti od razlika u W ex: štetni alel je kodominantan, heterozigoti imaju različiti fitnes
viša početna učestalost veće razlike u fitnesu jači selekcioni pritisak niska početna učestalost male razlike u fitnesu (W 11=W 12)<1, W 22=1 selekcija protiv dominantnog alela favorizovanje recesivnog alela Različite početne učestalosti alela i različiti selekcioni koeficijenti utiču na efikasnost selekcije
(W 22<1), (W 11=W 12)=1 selekcija protiv recesivnog alela različite učestalosti alela u populaciji utiču na efikasnost selekcije eliminacija samo homozigota sa štetnim recesivnim alelom recesivni alel ostaje u populaciji
Promena alelske učestalosti usled selekcije u zavisnosti od stepena dominantnosti (h) posmatranog alela EX: A 1 = retki povoljni alel u populaciji s=0. 5 različiti stepen dominantnosti, h A 2 A 2 A 1 A 1 1 -s/2 1 semidominantnost (h=1/2) jednak efekat i na A 1 i na A 2 favorizovanje dominantnog alela A 2 A 2 A 1 A 1 A 1 A 2 1 -s A 2 A 2 1 -s 2 1 A 1 A 1 1 -s 1 A 1 A 2 1 favorizovanje heterozigota A 2 A 2 1 -s A 1 A 2 A 1 A 1 1 -hs 1 favorizovanje recesivnog alela-neefikasno
(WSS i WAA)<1, WAS=1 s 2 overdominansa- favorizovanje heterozigota malarija, protiv AA srpasta anemija, protiv SS qe= s 1/s 1+s 2
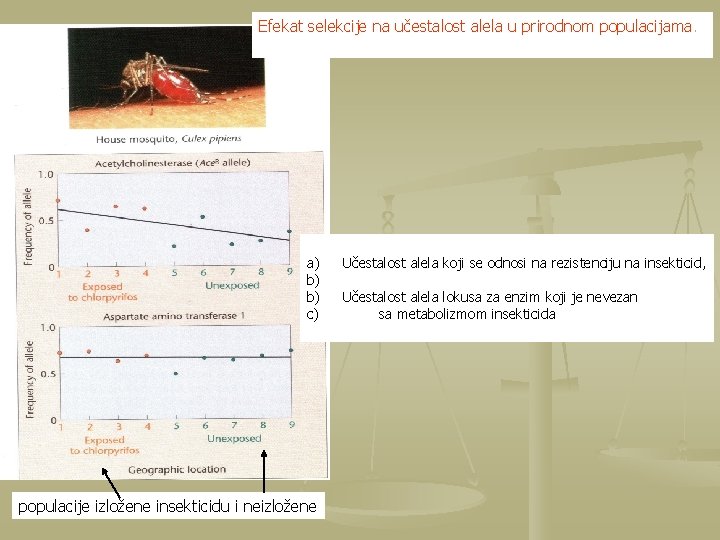
Efekat selekcije na učestalost alela u prirodnom populacijama. a) b) b) c) populacije izložene insekticidu i neizložene Učestalost alela koji se odnosi na rezistenciju na insekticid, Učestalost alela lokusa za enzim koji je nevezan sa metabolizmom insekticida
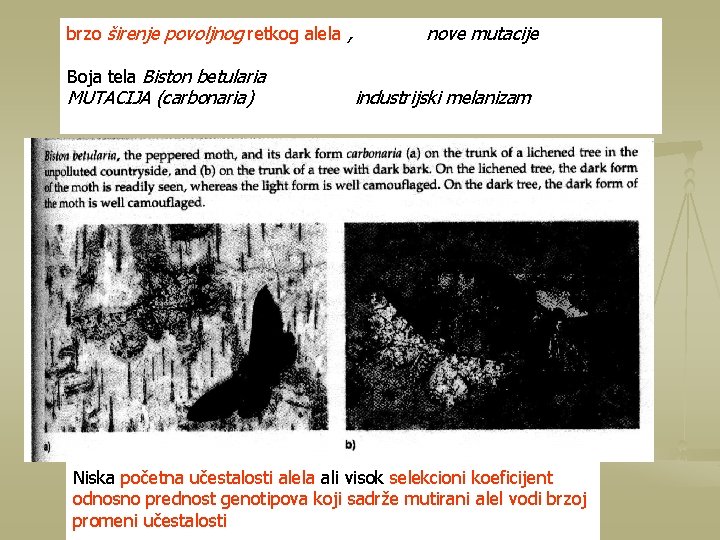
brzo širenje povoljnog retkog alela , Boja tela Biston betularia MUTACIJA (carbonaria) nove mutacije industrijski melanizam Niska početna učestalosti alela ali visok selekcioni koeficijent odnosno prednost genotipova koji sadrže mutirani alel vodi brzoj promeni učestalosti
Favorizovanje alela prirodnom selekcijom - primer selekcije ka povećanju učestalosti dominantnog alela n n n n Enzim laktaza je lociran u ćelijama tankog creva i služi da razgradi laktozu iz mleka Postoji varijabilnost u sposobnosti (odraslih) ljudi da vare laktozu iz mleka (posebno drugih vrsta) Osobina – netolerancija na laktozu, selektivna hipolaktazija, se nasledjuje autozomalno recesivno. I pretranskripciona i posttranskripciona regulacija su uključene u nisku ekspresiju enzima. Osobina - tolerancija na laktozu se nasledjuje dominantno i visoka učestalost u nekim populacijama je rezultat najjačeg poznatog selekcionog pritiska, favorizovanja dominantne mutacije Tolerancija uključuje izmene u regulaciji ekspresije gena za enzim laktazu i uzrokovana je višesturkim nezavisnim mutacijama koje su dostigle visoku učestalost u različitim populacijama, zbog koristi od konzumiranja mleka Entero bakterije mogu modifikovati netoleranciju ka toleranciji Primer biokulturološke evolucije
n n Istorijski, mleka (sopstvene vrste) nema nakon dojenja i laktaza postaje beskorisna, čak i problematična u varenju, pa je najpre evolutivno-genetički bilo favorizovano smanjenje produkcije laktaze i netolerancija je održavana Istorijsko ekonomski uzroci nastanka tolerancije - oslanjanje na stočarstvo, čime se omogućava konzumiranje mleka i posle dojenja , i uslovi čuvanja svežeg mleka n Sa razvijanjem stočarstva, u tim populacijama javila se prednost alela ka toleranciji Potomci ovih naroda su uglavnom evropske grupe i one imaju češću toleranciju na laktozu (i hladnija je klima i razvijenije čuvanje mleka pa su tolerantni imali još veću prednost) n u Africi je učestalija netolerancija, osim onih grupa koje se oslanjaju na stočarstvo, kao Fulani i Tutsi koji su tolerantni na laktozu n
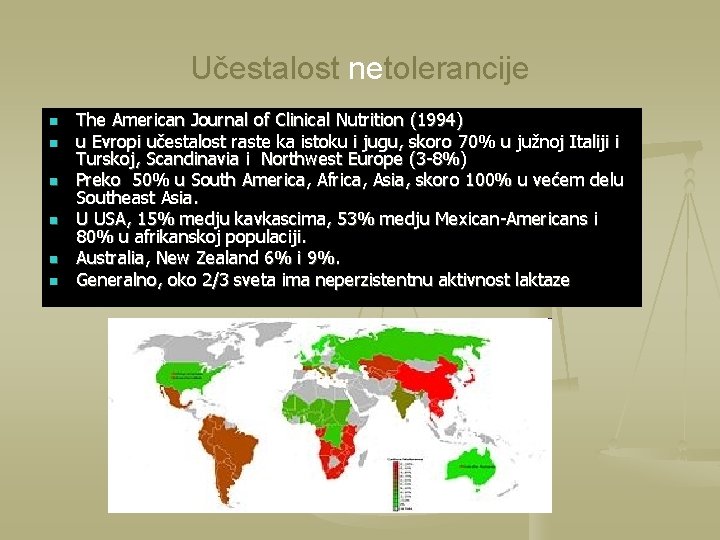
Učestalost netolerancije n n n The American Journal of Clinical Nutrition (1994) u Evropi učestalost raste ka istoku i jugu, skoro 70% u južnoj Italiji i Turskoj, Scandinavia i Northwest Europe (3 -8%) Preko 50% u South America, Africa, Asia, skoro 100% u većem delu Southeast Asia. U USA, 15% medju kavkascima, 53% medju Mexican-Americans i 80% u afrikanskoj populaciji. Australia, New Zealand 6% i 9%. Generalno, oko 2/3 sveta ima neperzistentnu aktivnost laktaze
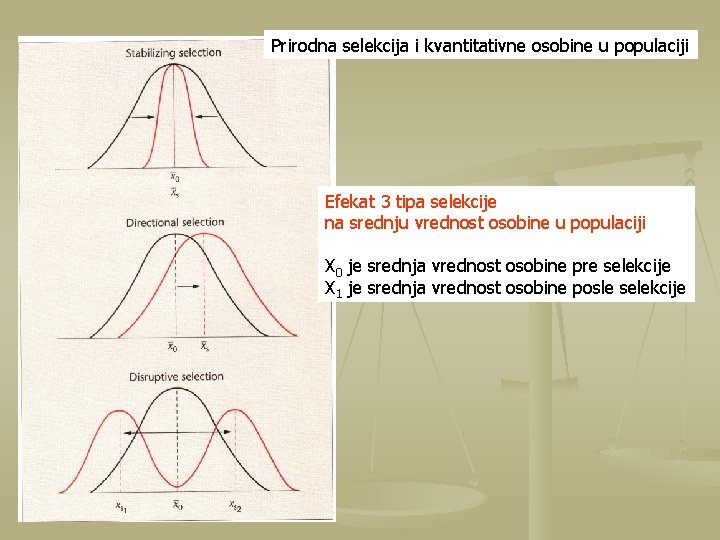
Prirodna selekcija i kvantitativne osobine u populaciji Efekat 3 tipa selekcije na srednju vrednost osobine u populaciji X 0 je srednja vrednost osobine pre selekcije X 1 je srednja vrednost osobine posle selekcije
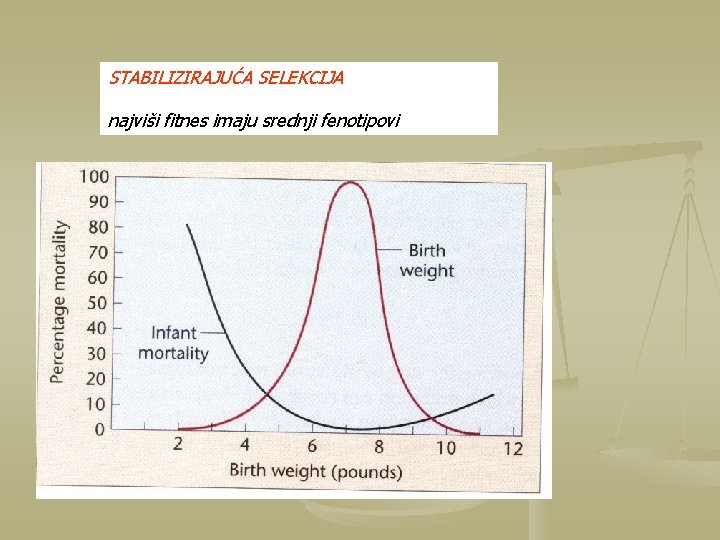
STABILIZIRAJUĆA SELEKCIJA najviši fitnes imaju srednji fenotipovi