Cosa ci rende umani Homo sapiens e scimpanz
- Slides: 59
Cosa ci rende umani? • Homo sapiens e scimpanzè si sono separati da un progenitore comune circa 5 -7 milioni di anni fa. Malgrado ciò, la percentuale di identità a livello della sequenza di DNA tra esseri umani e scimpanzè è elevatissima, oscilla tra 98% and 99% • Cosa ci rende umani? Obiettivo: identificare le differenze genetiche responsabili delle differenziamento fisio-morfologico delle due specie • Variazioni alleliche, geni deleti o diventati inattivi per mutazione (gene MYH 16) • Differenze nella regolazione dei geni? King e Wilson (1975) • Nel 2009, Katja Nowick e collaboratori mediante tecniche di analisi genomica comparativa hanno identificato 90 geni codificanti fattori di trascrizione la cui espressione è diversa tra specie umana e scimpanzè. Particolarmente significative nel tessuto cerebrale (differenze neurologiche e cognitive). • Due reti di regolazione che controllano trascrizione, metabolismo energetico, trasporto vescicolare e modificazione post-traduzionale delle proteine
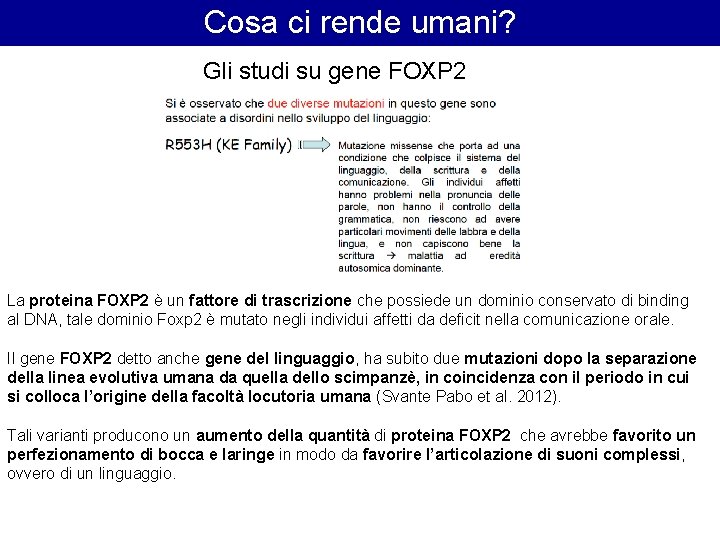
Cosa ci rende umani? Gli studi su gene FOXP 2 La proteina FOXP 2 è un fattore di trascrizione che possiede un dominio conservato di binding al DNA, tale dominio Foxp 2 è mutato negli individui affetti da deficit nella comunicazione orale. Il gene FOXP 2 detto anche gene del linguaggio, ha subito due mutazioni dopo la separazione della linea evolutiva umana da quella dello scimpanzè, in coincidenza con il periodo in cui si colloca l’origine della facoltà locutoria umana (Svante Pabo et al. 2012). Tali varianti producono un aumento della quantità di proteina FOXP 2 che avrebbe favorito un perfezionamento di bocca e laringe in modo da favorire l’articolazione di suoni complessi, ovvero di un linguaggio.
Il controllo dell’espressione genica negli eucarioti
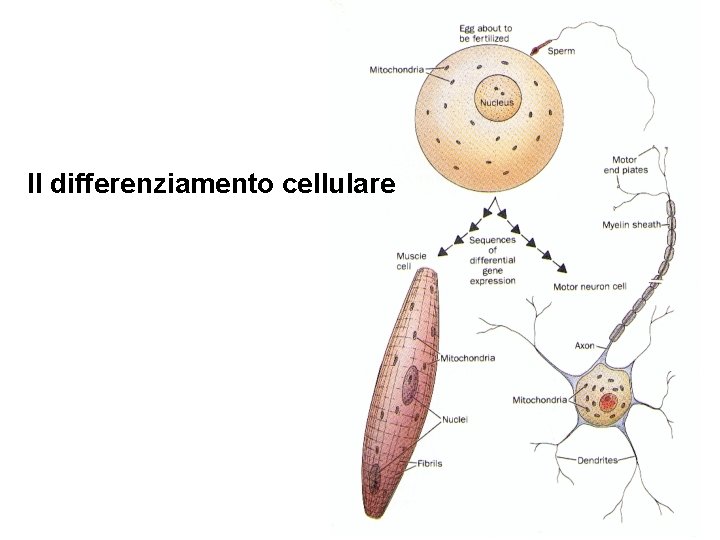
Il differenziamento cellulare
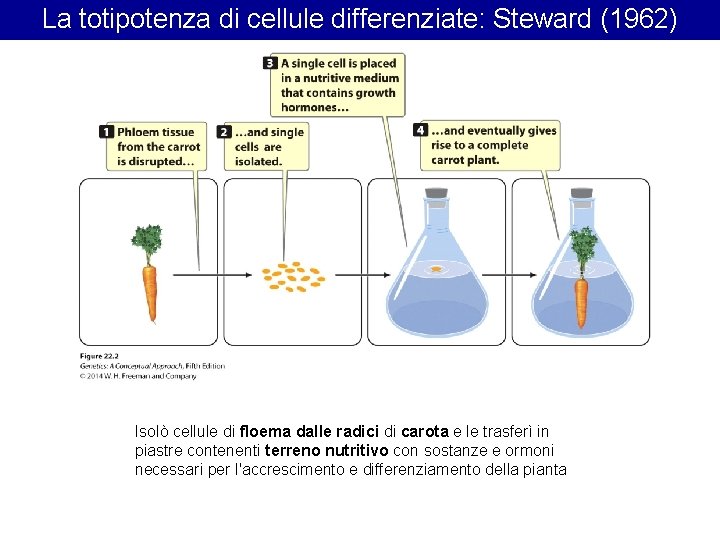
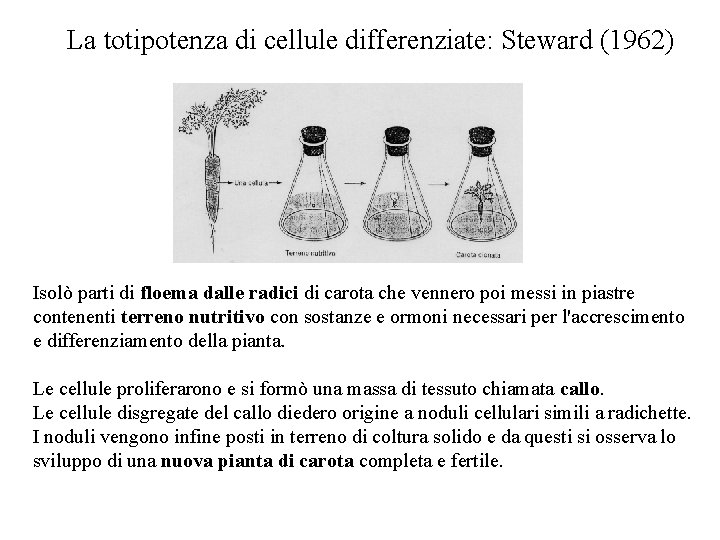
La totipotenza di cellule differenziate: Steward (1962) Isolò cellule di floema dalle radici di carota e le trasferì in piastre contenenti terreno nutritivo con sostanze e ormoni necessari per l'accrescimento e differenziamento della pianta
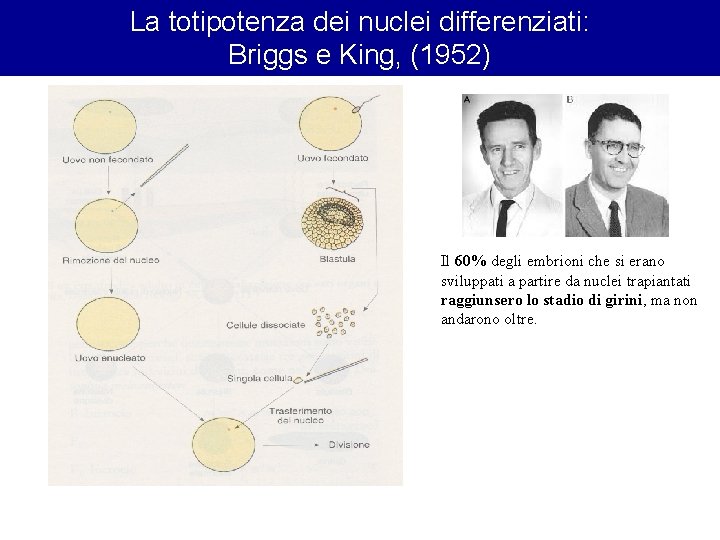
La totipotenza dei nuclei differenziati: Briggs e King, (1952) Il 60% degli embrioni che si erano sviluppati a partire da nuclei trapiantati raggiunsero lo stadio di girini, ma non andarono oltre.
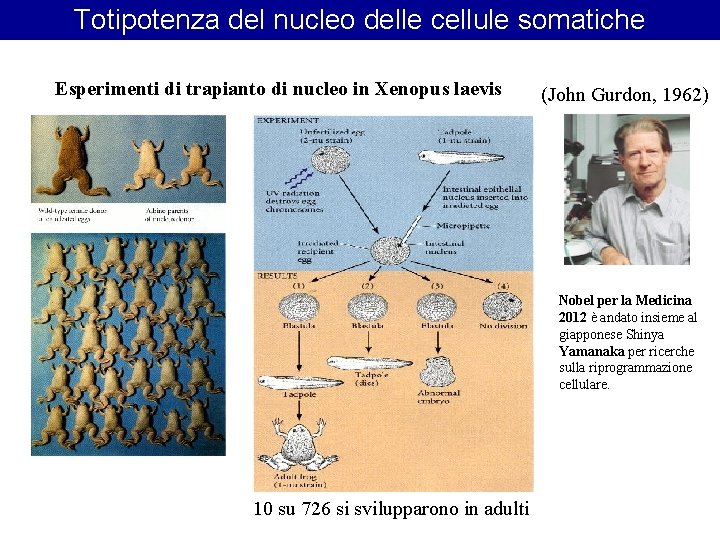
Totipotenza del nucleo delle cellule somatiche Esperimenti di trapianto di nucleo in Xenopus laevis (John Gurdon, 1962) Nobel per la Medicina 2012 è andato insieme al giapponese Shinya Yamanaka per ricerche sulla riprogrammazione cellulare. 10 su 726 si svilupparono in adulti
E più recentemente…. .
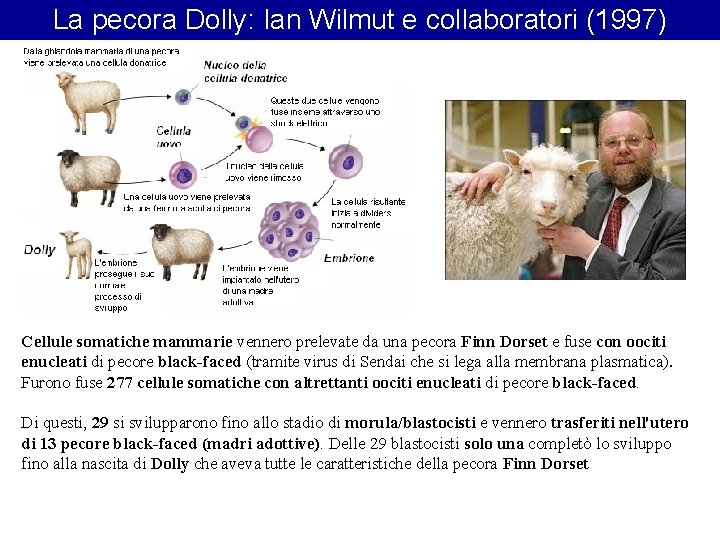
La pecora Dolly: Ian Wilmut e collaboratori (1997) Cellule somatiche mammarie vennero prelevate da una pecora Finn Dorset e fuse con oociti enucleati di pecore black-faced (tramite virus di Sendai che si lega alla membrana plasmatica). Furono fuse 277 cellule somatiche con altrettanti oociti enucleati di pecore black-faced. Di questi, 29 si svilupparono fino allo stadio di morula/blastocisti e vennero trasferiti nell'utero di 13 pecore black-faced (madri adottive). Delle 29 blastocisti solo una completò lo sviluppo fino alla nascita di Dolly che aveva tutte le caratteristiche della pecora Finn Dorset
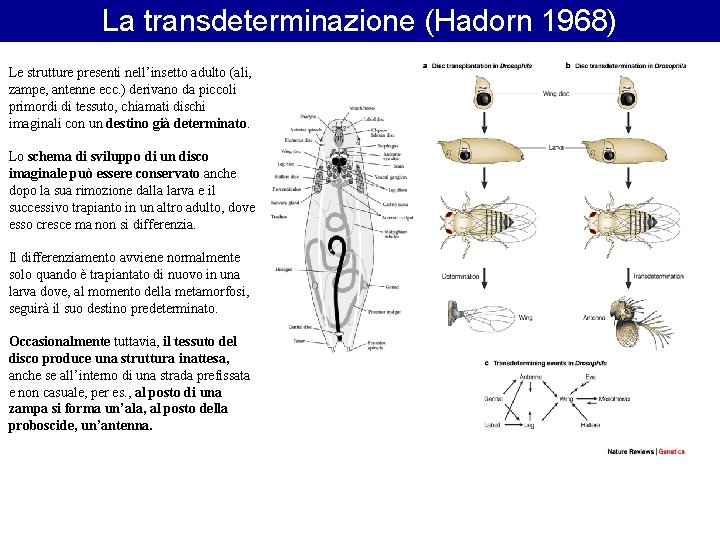
La transdeterminazione (Hadorn 1968) Le strutture presenti nell’insetto adulto (ali, zampe, antenne ecc. ) derivano da piccoli primordi di tessuto, chiamati dischi imaginali con un destino già determinato. Lo schema di sviluppo di un disco imaginale può essere conservato anche dopo la sua rimozione dalla larva e il successivo trapianto in un altro adulto, dove esso cresce ma non si differenzia. Il differenziamento avviene normalmente solo quando è trapiantato di nuovo in una larva dove, al momento della metamorfosi, seguirà il suo destino predeterminato. Occasionalmente tuttavia, il tessuto del disco produce una struttura inattesa, anche se all’interno di una strada prefissata e non casuale, per es. , al posto di una zampa si forma un’ala, al posto della proboscide, un’antenna.
Reversibilità del differenziamento • Il differenziamento cellulare non è necessariamente irreversibile • Le potenzialità differenziative di un nucleo cellulare possono essere riprogrammate • La riprogrammazione consiste in cambiamenti del pattern di espressione genica • Le modificazioni epigenetiche possono innescare cambiamenti dei pattern di espressione genica
I diversi livelli di controllo dell’espressione dei geni
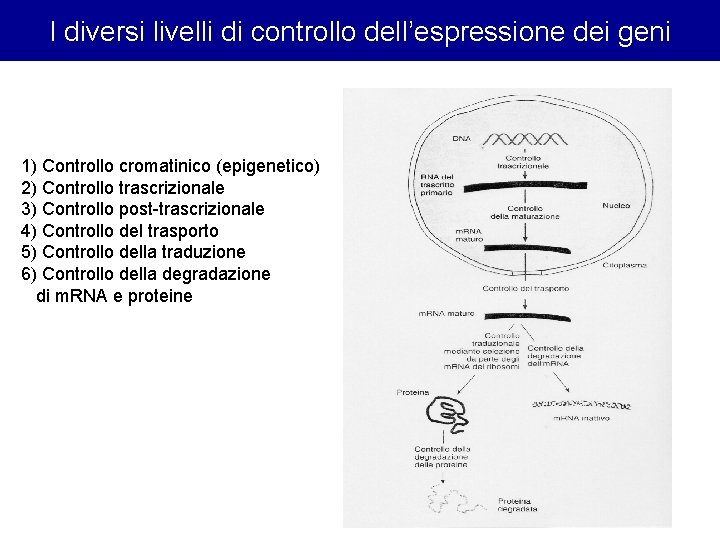
I diversi livelli di controllo dell’espressione dei geni 1) Controllo cromatinico (epigenetico) 2) Controllo trascrizionale 3) Controllo post-trascrizionale 4) Controllo del trasporto 5) Controllo della traduzione 6) Controllo della degradazione di m. RNA e proteine
Primi evidenze sperimentali sull’esistenza di un controllo dell’espressione genica negli eucarioti • I puffs dei cromosomi politenici sono siti di attiva trascrizione • L’espressione differenziale dei geni globinici
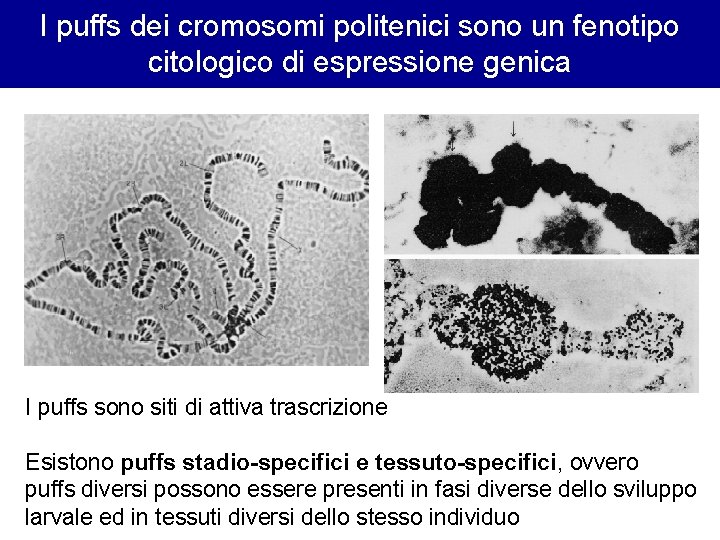
I puffs dei cromosomi politenici sono un fenotipo citologico di espressione genica I puffs sono siti di attiva trascrizione Esistono puffs stadio-specifici e tessuto-specifici, ovvero puffs diversi possono essere presenti in fasi diverse dello sviluppo larvale ed in tessuti diversi dello stesso individuo
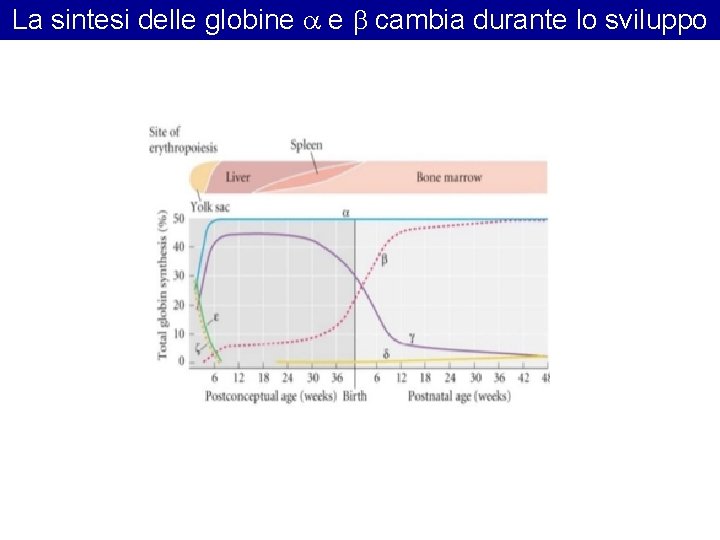
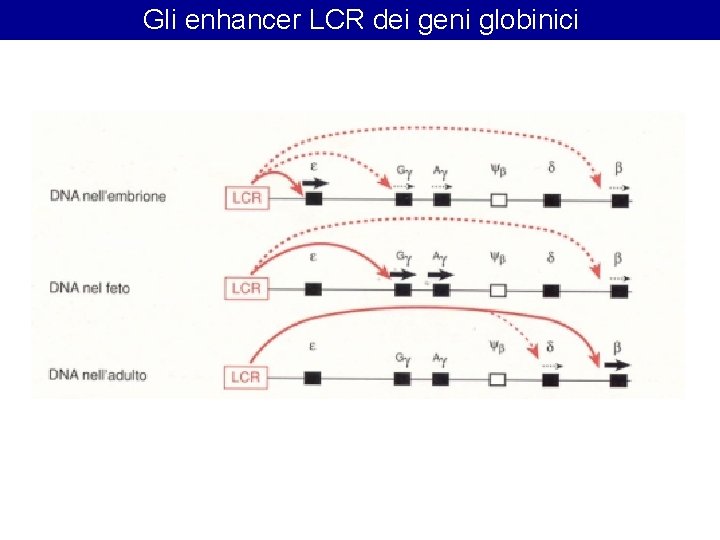
La sintesi delle globine a e b cambia durante lo sviluppo
Organizzazione della cromatina ed espressione genica
Controllo a livello della croamtina (epigenetico) Modificazioni cromatiniche determinano i pattern di l’espressione genica – Cambiamenti dei pattern di metilazione del DNA – Modificazioni istoniche (acetilazione, metilazione ecc) – Complessi di imodellamento della cromatina – Piccoli RNA che contribiscono a modificare la struttura cromatinica e l’espressione genica
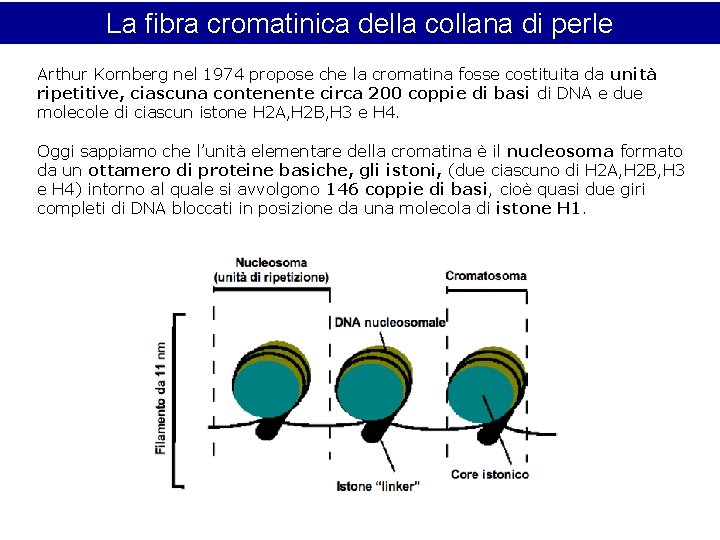
La fibra cromatinica della collana di perle Arthur Kornberg nel 1974 propose che la cromatina fosse costituita da unità ripetitive, ciascuna contenente circa 200 coppie di basi di DNA e due molecole di ciascun istone H 2 A, H 2 B, H 3 e H 4. Oggi sappiamo che l’unità elementare della cromatina è il nucleosoma formato da un ottamero di proteine basiche, gli istoni, (due ciascuno di H 2 A, H 2 B, H 3 e H 4) intorno al quale si avvolgono 146 coppie di basi, cioè quasi due giri completi di DNA bloccati in posizione da una molecola di istone H 1.
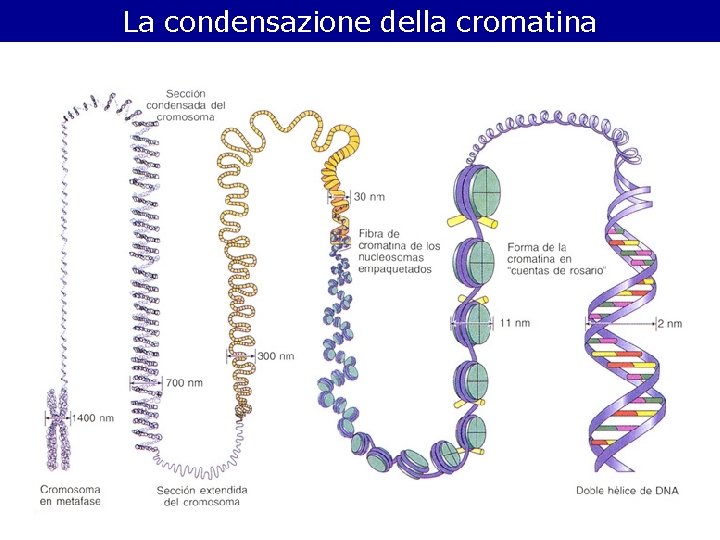
La condensazione della cromatina
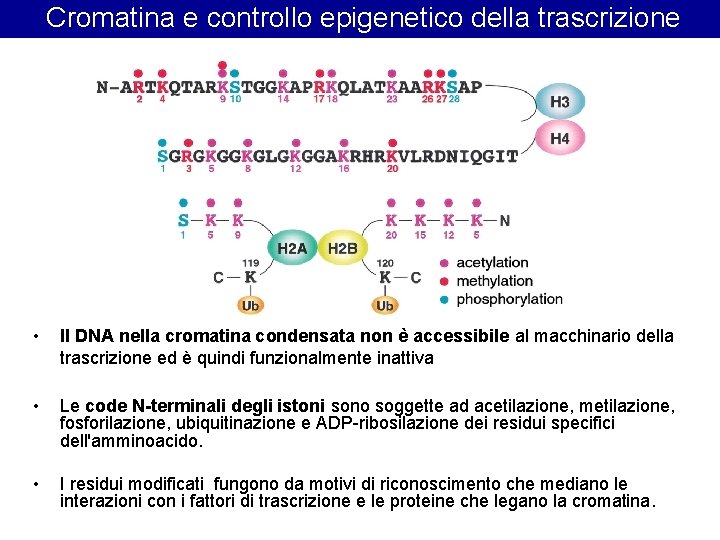
Cromatina e controllo epigenetico della trascrizione • Il DNA nella cromatina condensata non è accessibile al macchinario della trascrizione ed è quindi funzionalmente inattiva • Le code N-terminali degli istoni sono soggette ad acetilazione, metilazione, fosforilazione, ubiquitinazione e ADP-ribosilazione dei residui specifici dell'amminoacido. • I residui modificati fungono da motivi di riconoscimento che mediano le interazioni con i fattori di trascrizione e le proteine che legano la cromatina.
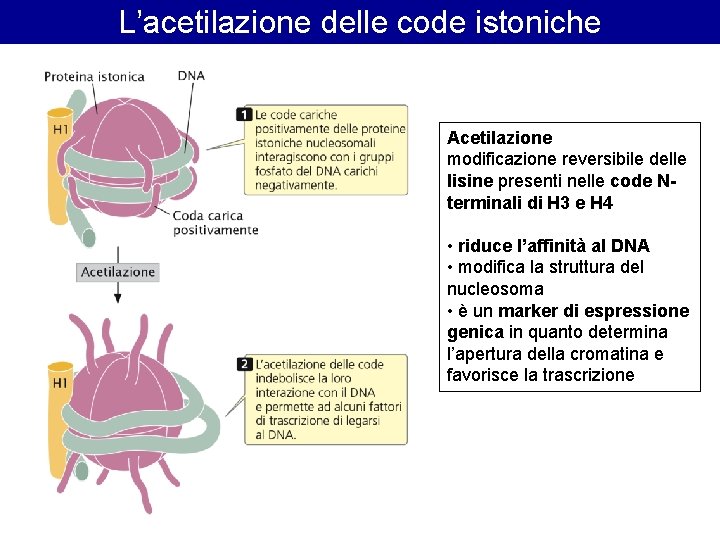
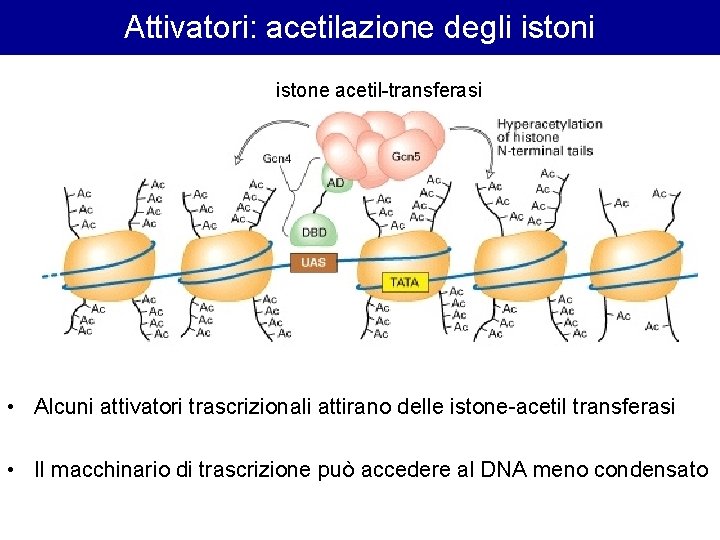
L’acetilazione delle code istoniche Acetilazione modificazione reversibile delle lisine presenti nelle code Nterminali di H 3 e H 4 • riduce l’affinità al DNA • modifica la struttura del nucleosoma • è un marker di espressione genica in quanto determina l’apertura della cromatina e favorisce la trascrizione
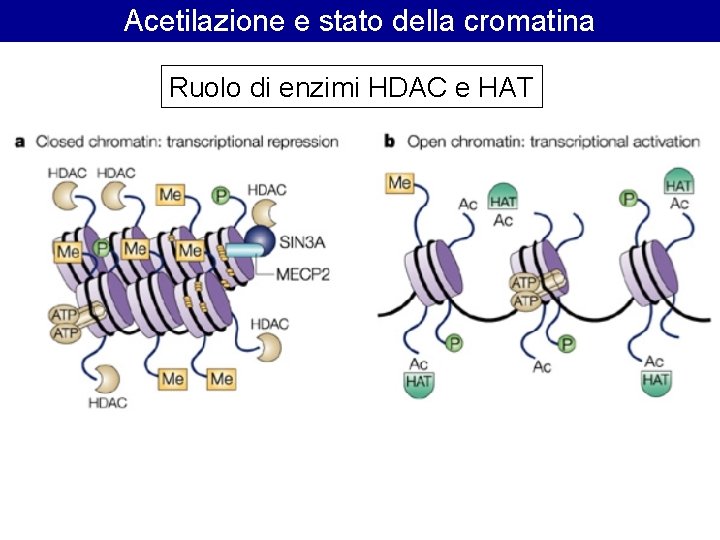
Acetilazione e stato della cromatina Ruolo di enzimi HDAC e HAT
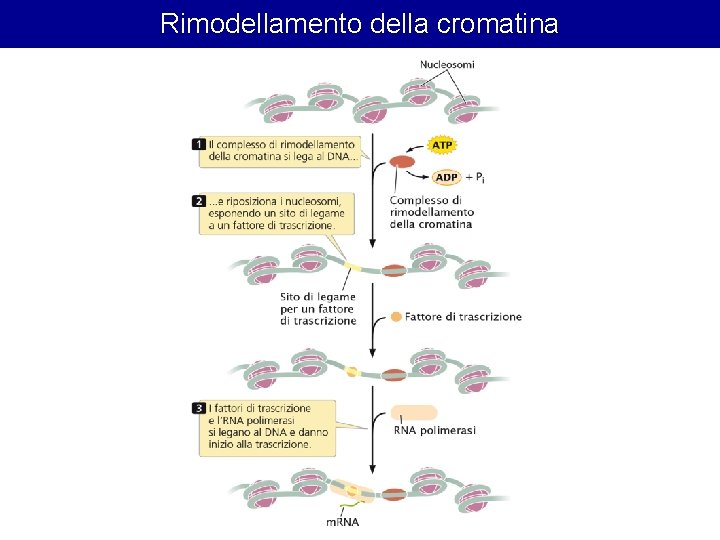
Rimodellamento della cromatina
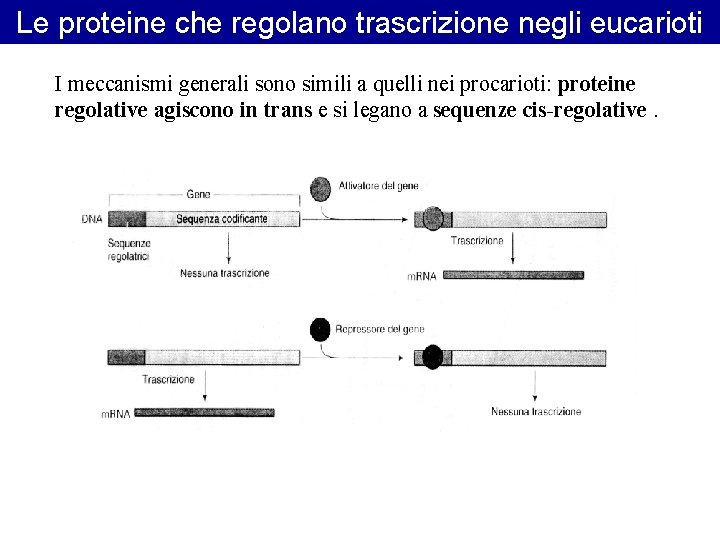
Le proteine che regolano trascrizione negli eucarioti I meccanismi generali sono simili a quelli nei procarioti: proteine regolative agiscono in trans e si legano a sequenze cis-regolative.
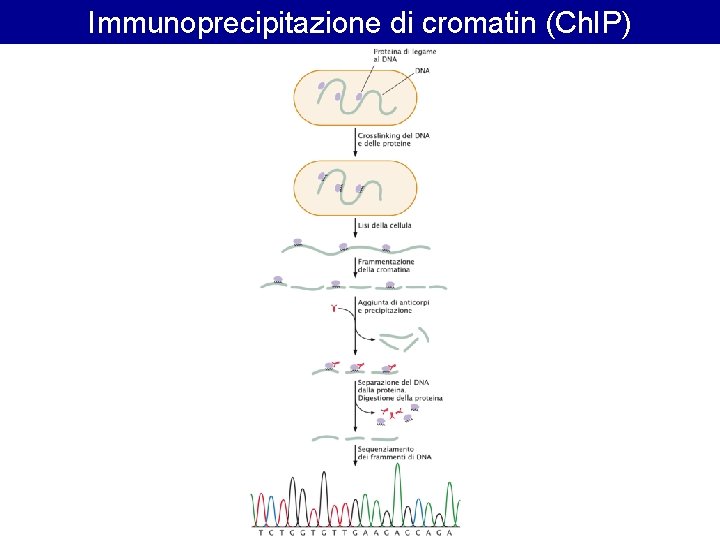
Immunoprecipitazione di cromatin (Ch. IP)
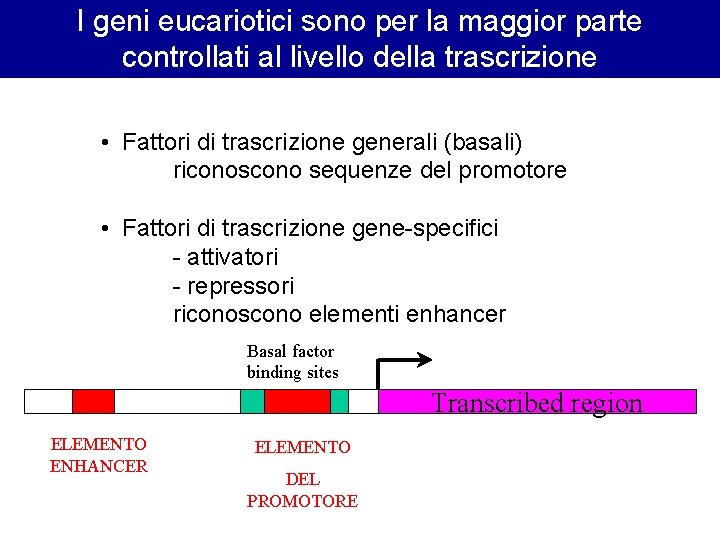
I geni eucariotici sono per la maggior parte controllati al livello della trascrizione • Fattori di trascrizione generali (basali) riconoscono sequenze del promotore • Fattori di trascrizione gene-specifici - attivatori - repressori riconoscono elementi enhancer Basal factor binding sites Transcribed region ELEMENTO ENHANCER ELEMENTO DEL PROMOTORE
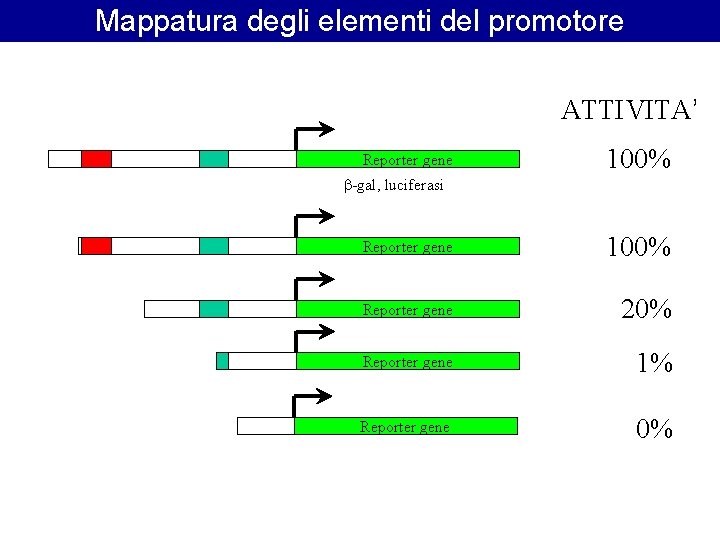
Mappatura degli elementi del promotore ATTIVITA’ Reporter gene 100% b-gal, luciferasi Reporter gene 100% Reporter gene 20% Reporter gene 1% Reporter gene 0%
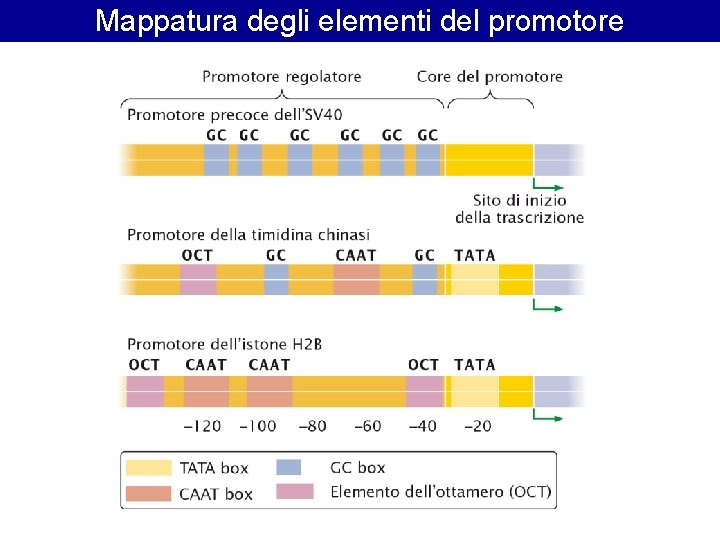
Mappatura degli elementi del promotore
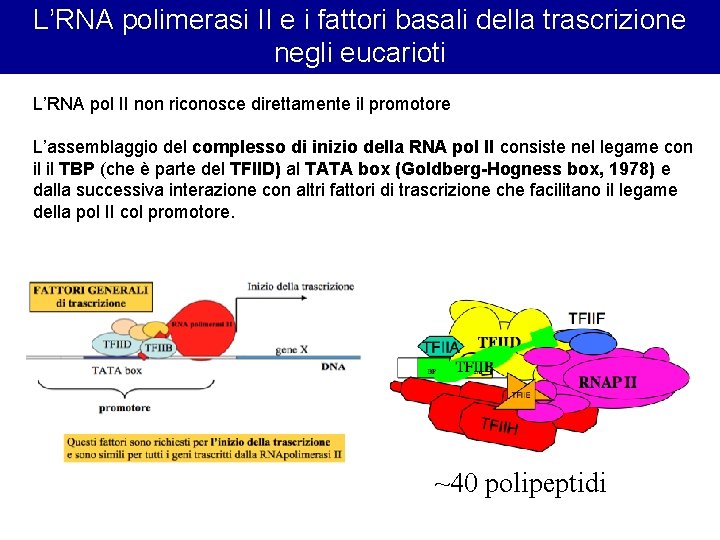
L’RNA polimerasi II e i fattori basali della trascrizione negli eucarioti L’RNA pol II non riconosce direttamente il promotore L’assemblaggio del complesso di inizio della RNA pol II consiste nel legame con il il TBP (che è parte del TFIID) al TATA box (Goldberg-Hogness box, 1978) e dalla successiva interazione con altri fattori di trascrizione che facilitano il legame della pol II col promotore. ~40 polipeptidi
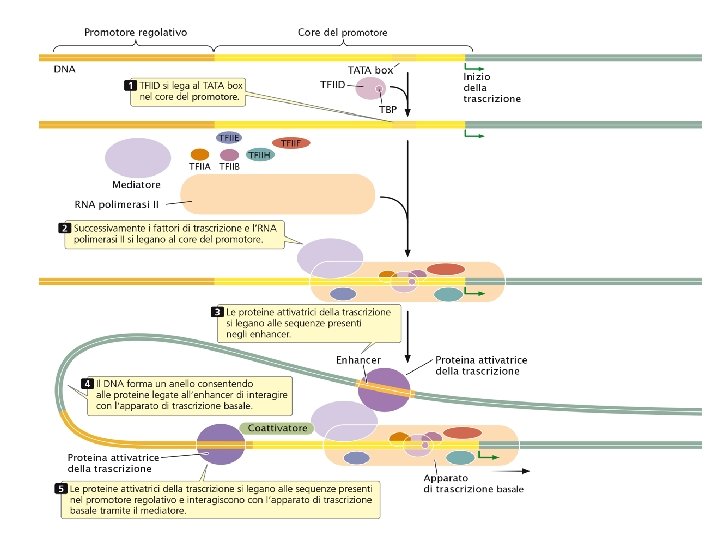
Fattori di trascrizione gene-specifici Negli eucarioti sono state identificati fattori di trascrizione che si legano a sequenze cis-regolative presenti anche a distanze notevoli a monte o a valle del promotore (fino a 50 kb), le sequenze enhancer e silencer. Le sequenze enhancer sono i determinanti spazio-temporali dell’espressione di un gene. I fattori di trascrizione legati alle enhancer, o intensificatori sono in grado di aumentare notevolmente i livelli di trascrizione di un gene Le sequenze silencer hanno l’effetto contrario, sono sequenze a cui si legano repressori trascrizionali che riducono l’efficienza di trascrizione di un gene
Come fanno gli attivatori legandosi all’enhancer a regolare la trascrizione di un gene distante diverse migliaia di nucleotidi?
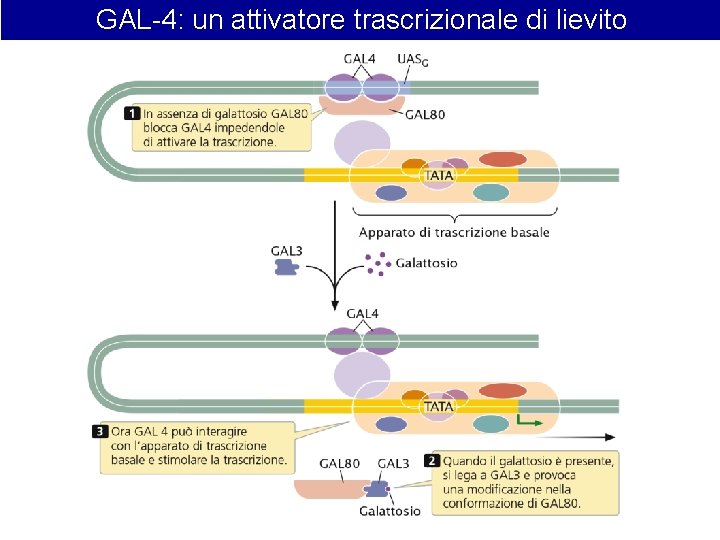
GAL-4: un attivatore trascrizionale di lievito
Gli enhancer LCR dei geni globinici
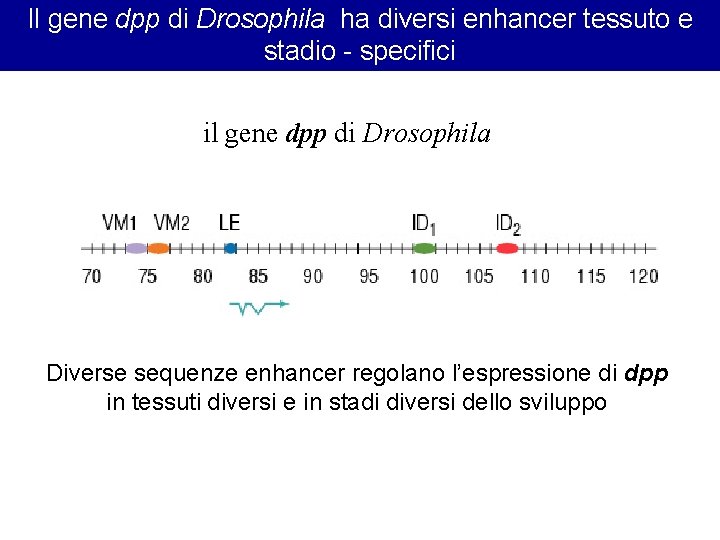
Il gene dpp di Drosophila ha diversi enhancer tessuto e stadio - specifici il gene dpp di Drosophila Diverse sequenze enhancer regolano l’espressione di dpp in tessuti diversi e in stadi diversi dello sviluppo
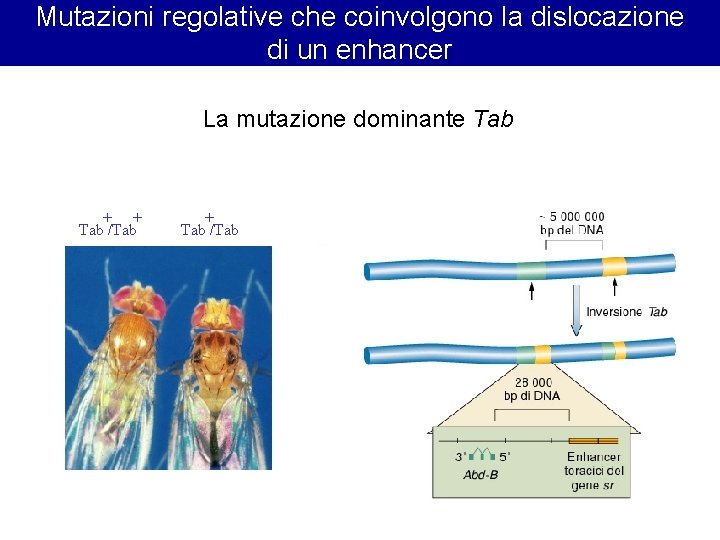
Mutazioni regolative che coinvolgono la dislocazione di un enhancer La mutazione dominante Tab + + Tab /Tab
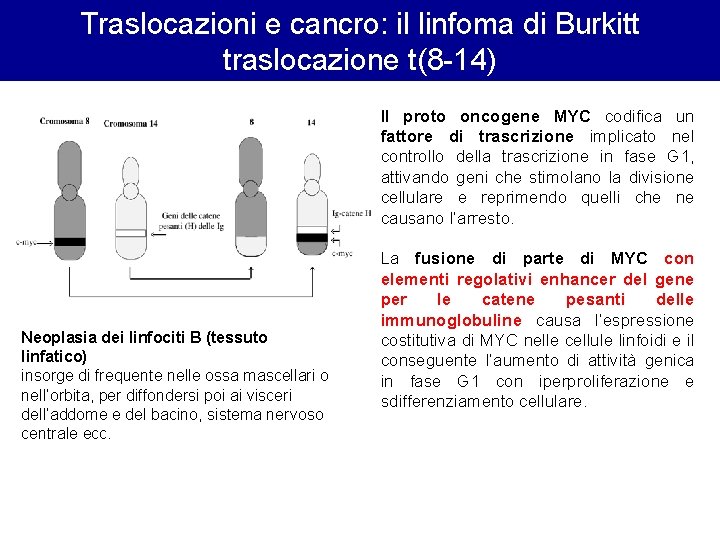
Traslocazioni e cancro: il linfoma di Burkitt traslocazione t(8 -14) Neoplasia dei linfociti B (tessuto linfatico) insorge di frequente nelle ossa mascellari o nell’orbita, per diffondersi poi ai visceri dell’addome e del bacino, sistema nervoso centrale ecc. Il proto oncogene MYC codifica un fattore di trascrizione implicato nel controllo della trascrizione in fase G 1, attivando geni che stimolano la divisione cellulare e reprimendo quelli che ne causano l’arresto. La fusione di parte di MYC con elementi regolativi enhancer del gene per le catene pesanti delle immunoglobuline causa l’espressione costitutiva di MYC nelle cellule linfoidi e il conseguente l’aumento di attività genica in fase G 1 con iperproliferazione e sdifferenziamento cellulare.
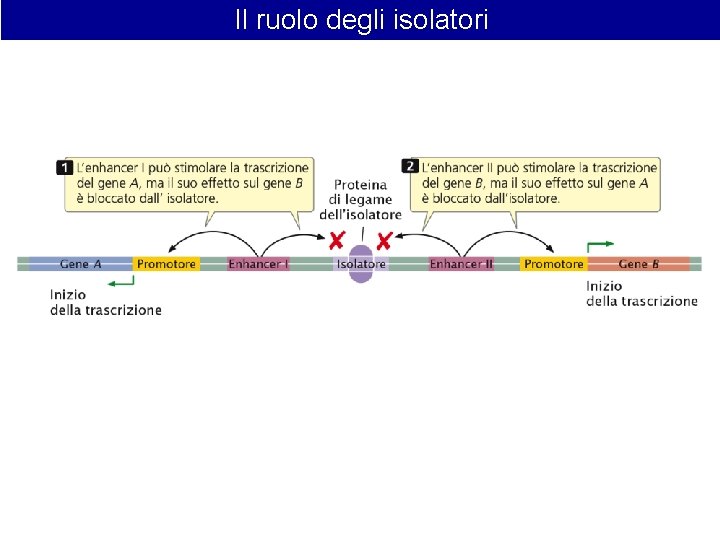
Il ruolo degli isolatori
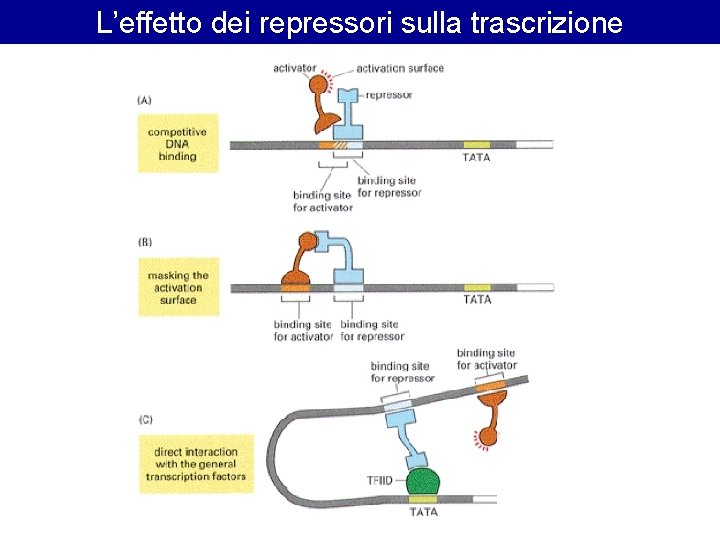
L’effetto dei repressori sulla trascrizione
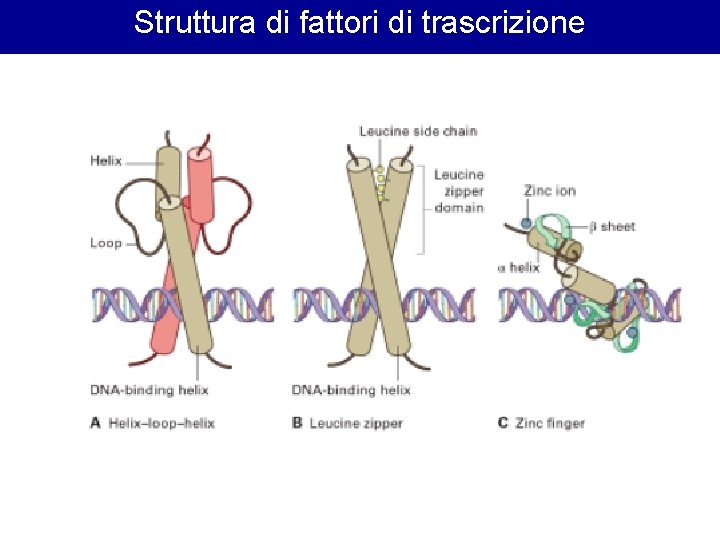
Struttura di fattori di trascrizione
Attivatori: acetilazione degli istone acetil-transferasi • Alcuni attivatori trascrizionali attirano delle istone-acetil transferasi • Il macchinario di trascrizione può accedere al DNA meno condensato
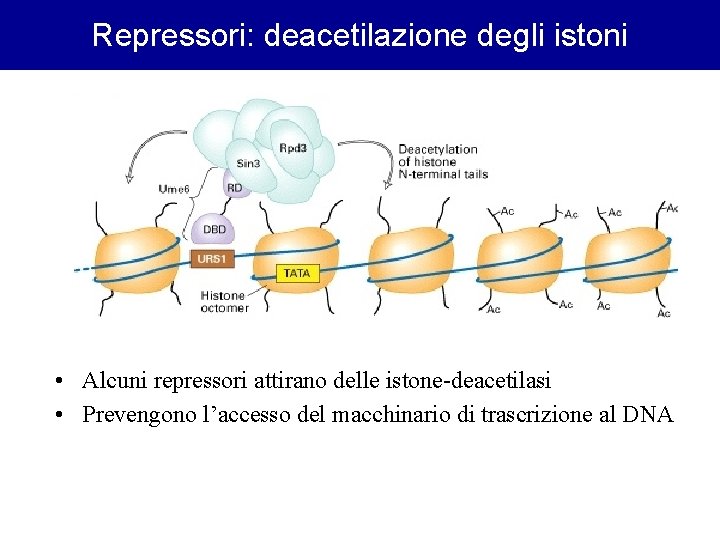
Repressori: deacetilazione degli istoni • Alcuni repressori attirano delle istone-deacetilasi • Prevengono l’accesso del macchinario di trascrizione al DNA
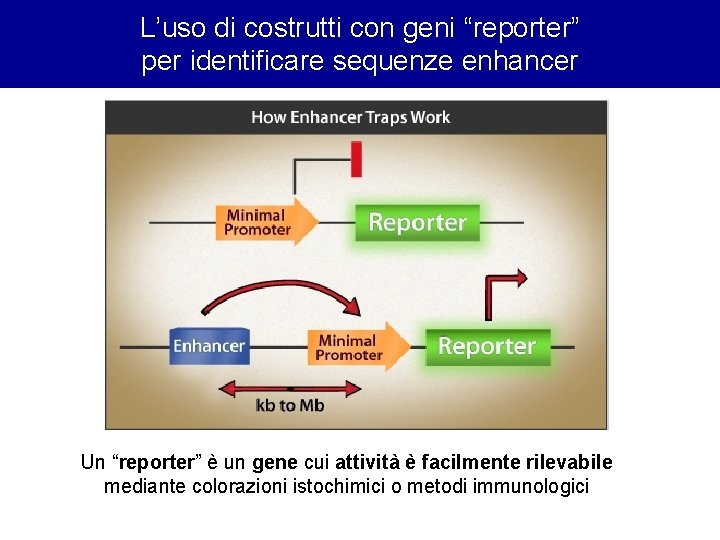
L’uso di costrutti con geni “reporter” per identificare sequenze enhancer Un “reporter” è un gene cui attività è facilmente rilevabile mediante colorazioni istochimici o metodi immunologici
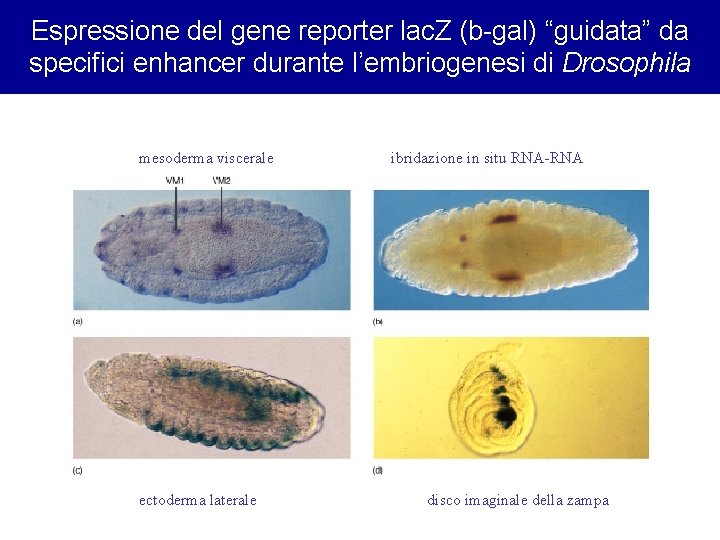
Espressione del gene reporter lac. Z (b-gal) “guidata” da specifici enhancer durante l’embriogenesi di Drosophila mesoderma viscerale ectoderma laterale ibridazione in situ RNA-RNA disco imaginale della zampa
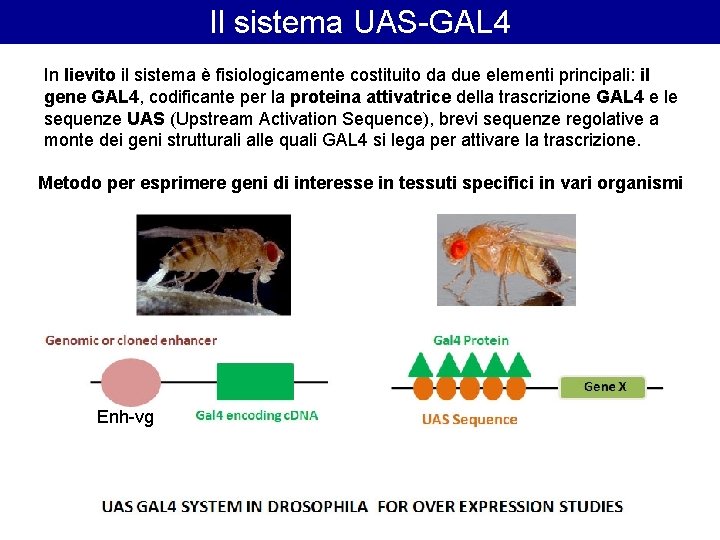
Il sistema UAS-GAL 4 In lievito il sistema è fisiologicamente costituito da due elementi principali: il gene GAL 4, codificante per la proteina attivatrice della trascrizione GAL 4 e le sequenze UAS (Upstream Activation Sequence), brevi sequenze regolative a monte dei geni strutturali alle quali GAL 4 si lega per attivare la trascrizione. Metodo per esprimere geni di interesse in tessuti specifici in vari organismi Enh-vg
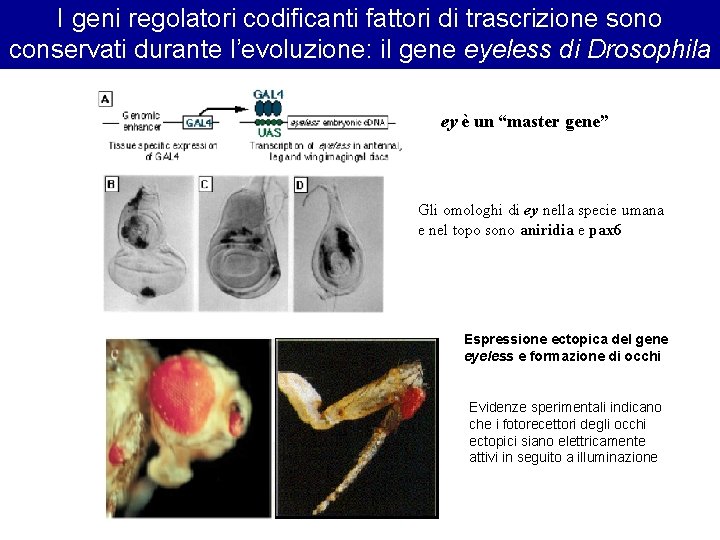
I geni regolatori codificanti fattori di trascrizione sono conservati durante l’evoluzione: il gene eyeless di Drosophila ey è un “master gene” Gli omologhi di ey nella specie umana e nel topo sono aniridia e pax 6 Espressione ectopica del gene eyeless e formazione di occhi Evidenze sperimentali indicano che i fotorecettori degli occhi ectopici siano elettricamente attivi in seguito a illuminazione
"The observation that mammals and insects, which have evolved separately for more than 500 million years, share the same master control gene for eye morphogenesis indicates that the genetic control mechanisms of development are much more universal than anticipated, ” Walter Ghering
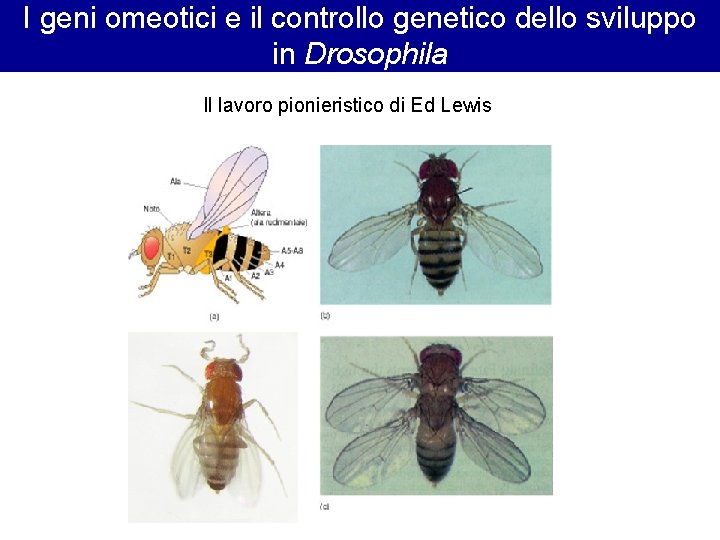
I geni omeotici e il controllo genetico dello sviluppo in Drosophila Il lavoro pionieristico di Ed Lewis
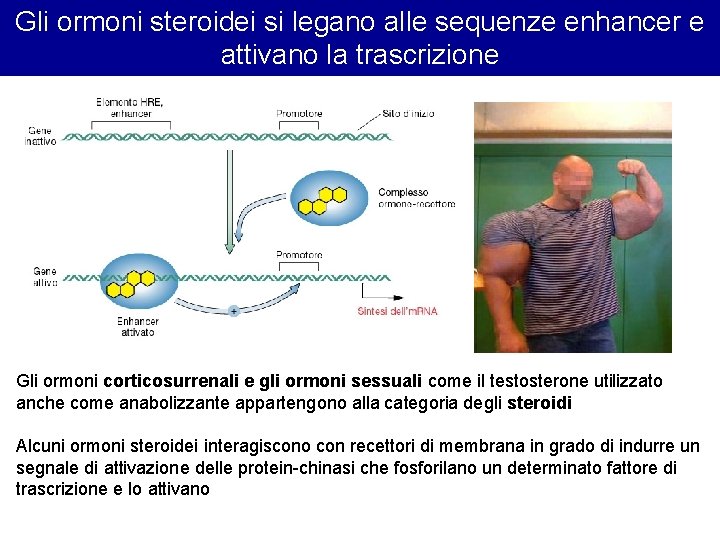
Gli ormoni steroidei si legano alle sequenze enhancer e attivano la trascrizione Gli ormoni corticosurrenali e gli ormoni sessuali come il testosterone utilizzato anche come anabolizzante appartengono alla categoria degli steroidi Alcuni ormoni steroidei interagiscono con recettori di membrana in grado di indurre un segnale di attivazione delle protein-chinasi che fosforilano un determinato fattore di trascrizione e lo attivano
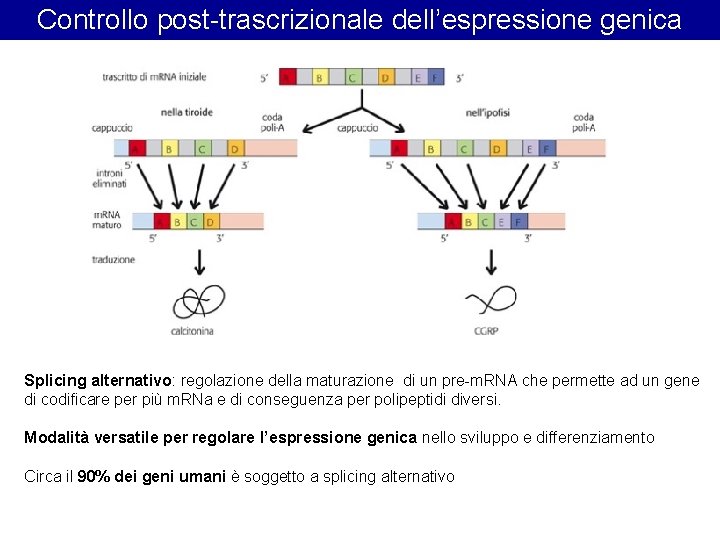
Controllo post-trascrizionale dell’espressione genica Splicing alternativo: regolazione della maturazione di un pre-m. RNA che permette ad un gene di codificare per più m. RNa e di conseguenza per polipeptidi diversi. Modalità versatile per regolare l’espressione genica nello sviluppo e differenziamento Circa il 90% dei geni umani è soggetto a splicing alternativo
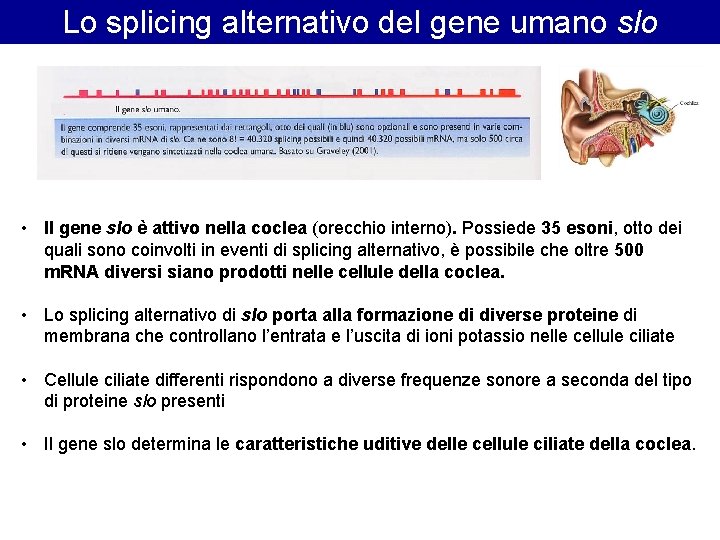
Lo splicing alternativo del gene umano slo • Il gene slo è attivo nella coclea (orecchio interno). Possiede 35 esoni, otto dei quali sono coinvolti in eventi di splicing alternativo, è possibile che oltre 500 m. RNA diversi siano prodotti nelle cellule della coclea. • Lo splicing alternativo di slo porta alla formazione di diverse proteine di membrana che controllano l’entrata e l’uscita di ioni potassio nelle cellule ciliate • Cellule ciliate differenti rispondono a diverse frequenze sonore a seconda del tipo di proteine slo presenti • Il gene slo determina le caratteristiche uditive delle cellule ciliate della coclea.
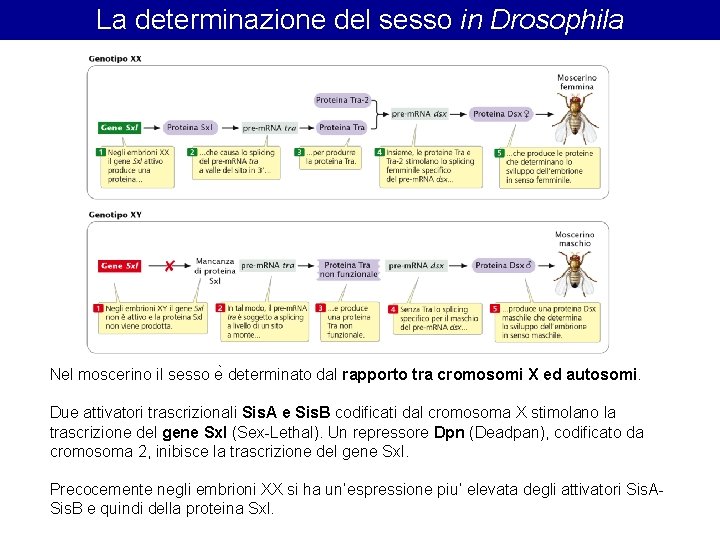
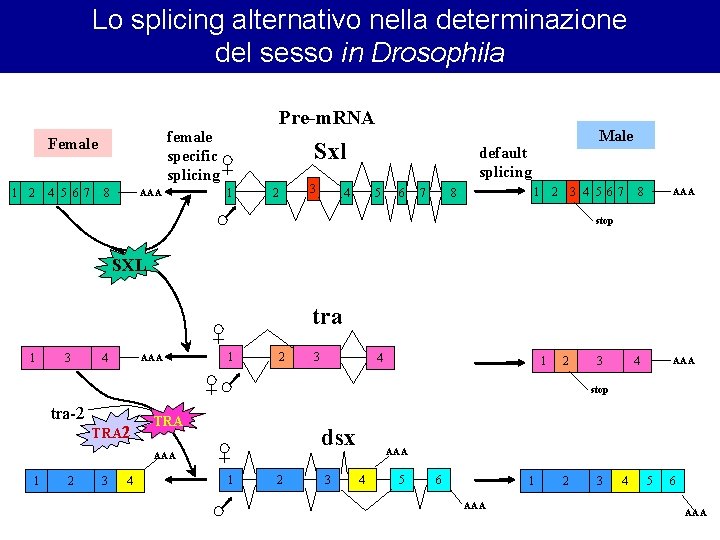
La determinazione del sesso in Drosophila Nel moscerino il sesso e determinato dal rapporto tra cromosomi X ed autosomi. Due attivatori trascrizionali Sis. A e Sis. B codificati dal cromosoma X stimolano la trascrizione del gene Sxl (Sex-Lethal). Un repressore Dpn (Deadpan), codificato da cromosoma 2, inibisce la trascrizione del gene Sxl. Precocemente negli embrioni XX si ha un’espressione piu’ elevata degli attivatori Sis. ASis. B e quindi della proteina Sxl.
Lo splicing alternativo nella determinazione del sesso in Drosophila female specific splicing Female 1 2 4 5 6 7 Pre-m. RNA 8 AAA Sxl 1 2 3 Male default splicing 4 5 6 7 1 2 8 3 4 5 6 7 8 AAA stop SXL tra 1 3 4 AAA 1 2 3 4 AAA stop tra-2 TRA dsx AAA 1 2 3 4 5 6 1 AAA 2 3 4 5 6 AAA
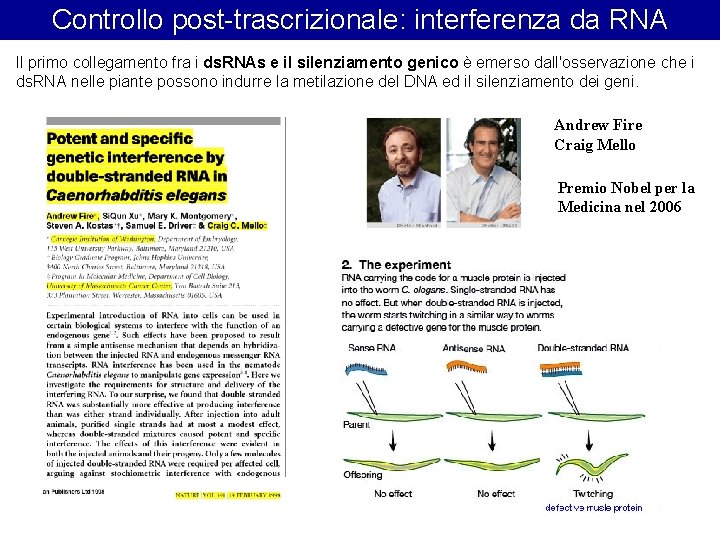
Controllo post-trascrizionale: interferenza da RNA Il primo collegamento fra i ds. RNAs e il silenziamento genico è emerso dall'osservazione che i ds. RNA nelle piante possono indurre la metilazione del DNA ed il silenziamento dei geni. Andrew Fire Craig Mello Premio Nobel per la Medicina nel 2006
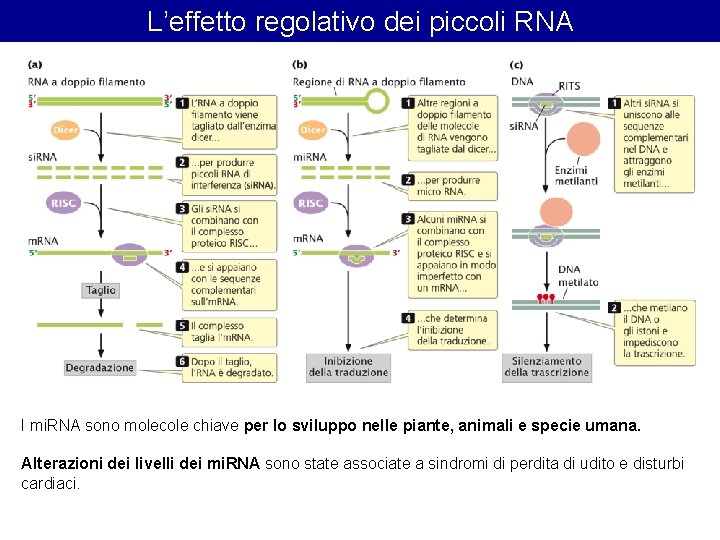
L’effetto regolativo dei piccoli RNA I mi. RNA sono molecole chiave per lo sviluppo nelle piante, animali e specie umana. Alterazioni dei livelli dei mi. RNA sono state associate a sindromi di perdita di udito e disturbi cardiaci.
La totipotenza di cellule differenziate: Steward (1962) Isolò parti di floema dalle radici di carota che vennero poi messi in piastre contenenti terreno nutritivo con sostanze e ormoni necessari per l'accrescimento e differenziamento della pianta. Le cellule proliferarono e si formò una massa di tessuto chiamata callo. Le cellule disgregate del callo diedero origine a noduli cellulari simili a radichette. I noduli vengono infine posti in terreno di coltura solido e da questi si osserva lo sviluppo di una nuova pianta di carota completa e fertile.