mirka rovenskalfmotol cuni cz Syntza a degradace mastnch
- Slides: 40
mirka. rovenska@lfmotol. cuni. cz Syntéza a degradace mastných kyselin
Mastné kyseliny (fatty acids, FA) n Alifatické karboxylové kyseliny, obsažené: n n ve formě esterů v přírodních lipidech neesterifikované v plasmě – transportované ovšem navázané na albumin! n FA obsažené v přírodních tucích jsou většinou nevětvené a mají sudý počet atomů uhlíku; mohou být: n nasycené n nenasycené – dvojné vazby jsou v konfiguraci cis
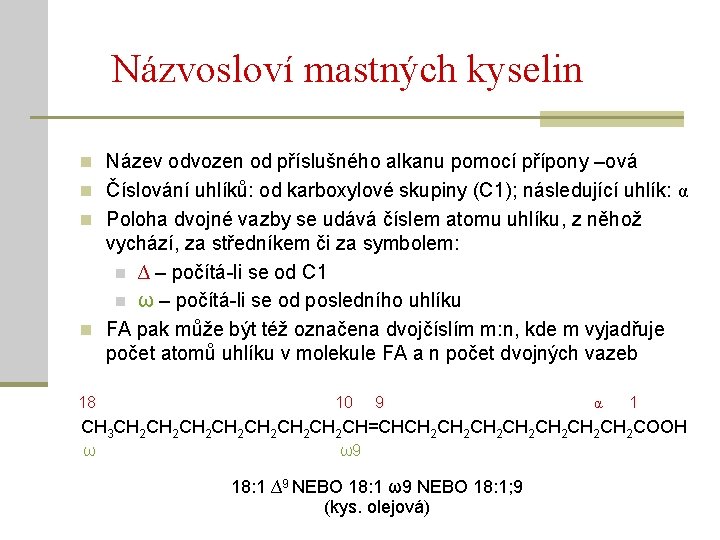
Názvosloví mastných kyselin n Název odvozen od příslušného alkanu pomocí přípony –ová n Číslování uhlíků: od karboxylové skupiny (C 1); následující uhlík: α n Poloha dvojné vazby se udává číslem atomu uhlíku, z něhož vychází, za středníkem či za symbolem: n ∆ – počítá-li se od C 1 n ω – počítá-li se od posledního uhlíku n FA pak může být též označena dvojčíslím m: n, kde m vyjadřuje počet atomů uhlíku v molekule FA a n počet dvojných vazeb 18 10 9 α 1 CH 3 CH 2 CH 2 CH=CHCH 2 CH 2 CH 2 CH 2 COOH ω ω9 18: 1 ∆9 NEBO 18: 1 ω9 NEBO 18: 1; 9 (kys. olejová)
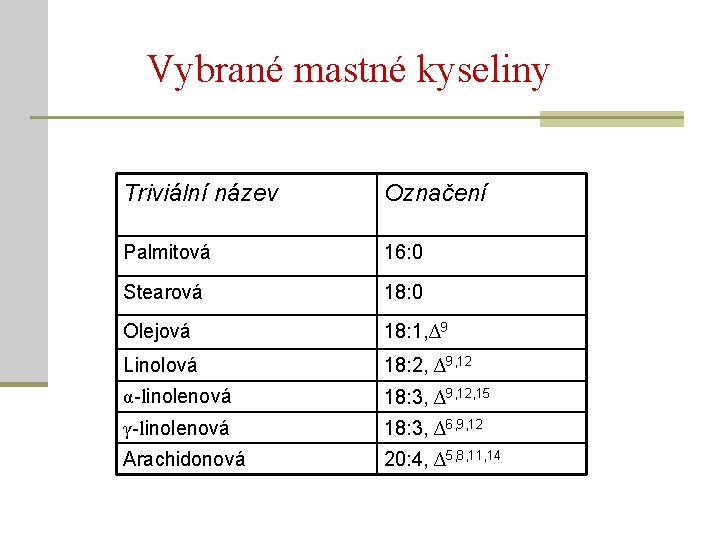
Vybrané mastné kyseliny Triviální název Označení Palmitová 16: 0 Stearová 18: 0 Olejová 18: 1, ∆9 Linolová 18: 2, ∆9, 12 α-linolenová 18: 3, ∆9, 12, 15 γ-linolenová 18: 3, ∆6, 9, 12 Arachidonová 20: 4, ∆5, 8, 11, 14
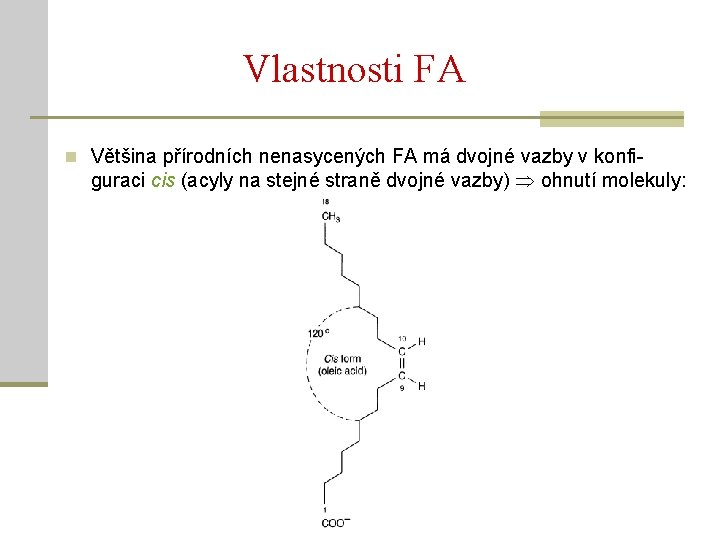
Vlastnosti FA n Většina přírodních nenasycených FA má dvojné vazby v konfi- guraci cis (acyly na stejné straně dvojné vazby) ohnutí molekuly:
n Teplota tání roste s délkou řetězce a klesá se stupněm desaturace (membránové lipidy, které musejí být tekuté za běžných teplot, jsou více nenasycené než lipidy sloužící k uložení energie). n Mastné kyseliny jsou amfipatické: mají polární (COO-) i nepolární (uhlíkatý „ocas“) část
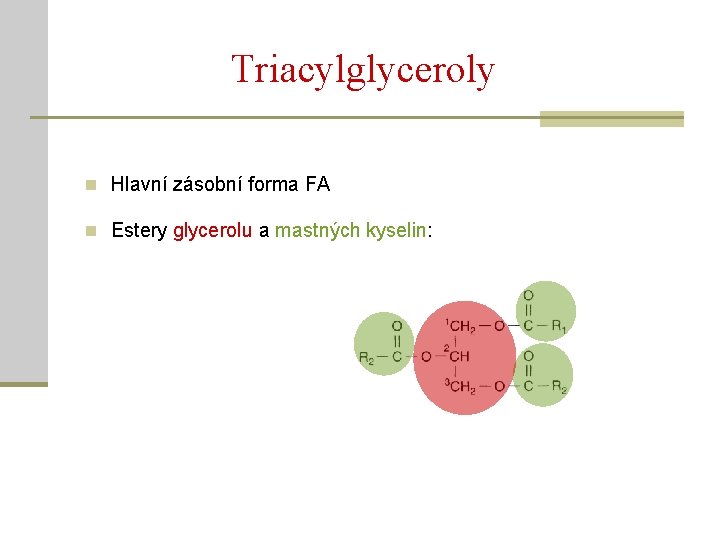
Triacylglyceroly n Hlavní zásobní forma FA n Estery glycerolu a mastných kyselin:
Syntéza mastných kyselin n Hlavně v játrech, dále v tukové tkáni, mléčné žláze – vždy při přebytku kalorií n Probíhá v cytoplasmě na multienzymovém polypeptidu FAS (Fatty Acid Synthase), který je aktivní jako dimer n V játrech jsou z acyl-Co. A a glycerol-3 -fosfátu syntetizovány triacylglyceroly. Ty jsou zabudovány do lipoproteinů VLDL, které vstupují do krve
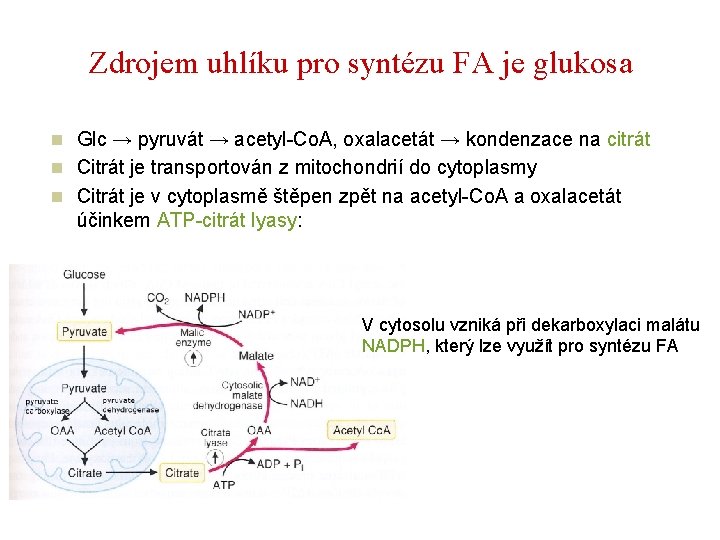
Zdrojem uhlíku pro syntézu FA je glukosa n Glc → pyruvát → acetyl-Co. A, oxalacetát → kondenzace na citrát n Citrát je transportován z mitochondrií do cytoplasmy n Citrát je v cytoplasmě štěpen zpět na acetyl-Co. A a oxalacetát účinkem ATP-citrát lyasy: V cytosolu vzniká při dekarboxylaci malátu NADPH, který lze využít pro syntézu FA
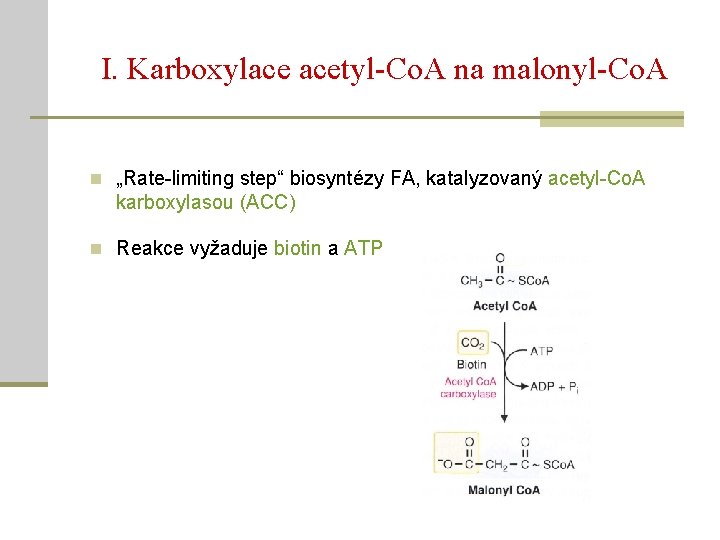
I. Karboxylace acetyl-Co. A na malonyl-Co. A n „Rate-limiting step“ biosyntézy FA, katalyzovaný acetyl-Co. A karboxylasou (ACC) n Reakce vyžaduje biotin a ATP
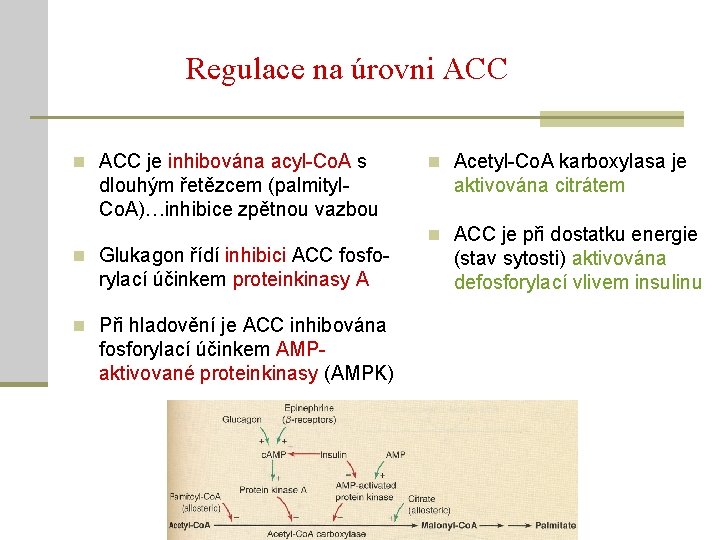
Regulace na úrovni ACC n ACC je inhibována acyl-Co. A s dlouhým řetězcem (palmityl. Co. A)…inhibice zpětnou vazbou n Glukagon řídí inhibici ACC fosfo- rylací účinkem proteinkinasy A n Při hladovění je ACC inhibována fosforylací účinkem AMPaktivované proteinkinasy (AMPK) n Acetyl-Co. A karboxylasa je aktivována citrátem n ACC je při dostatku energie (stav sytosti) aktivována defosforylací vlivem insulinu
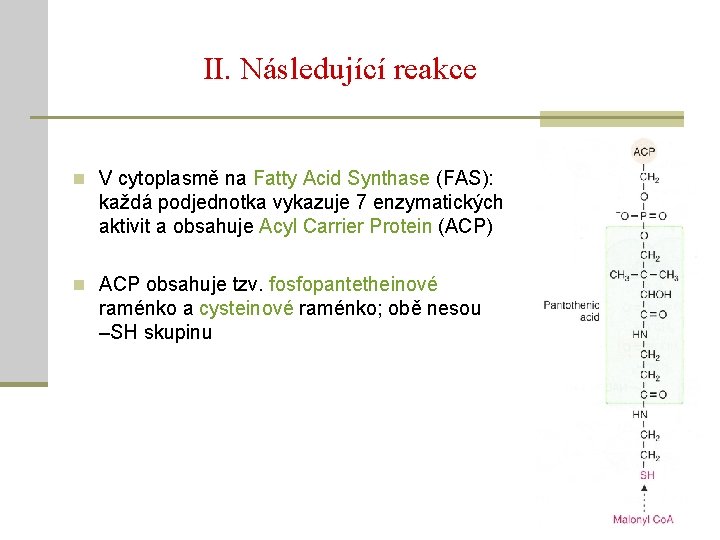
II. Následující reakce n V cytoplasmě na Fatty Acid Synthase (FAS): každá podjednotka vykazuje 7 enzymatických aktivit a obsahuje Acyl Carrier Protein (ACP) n ACP obsahuje tzv. fosfopantetheinové raménko a cysteinové raménko; obě nesou –SH skupinu
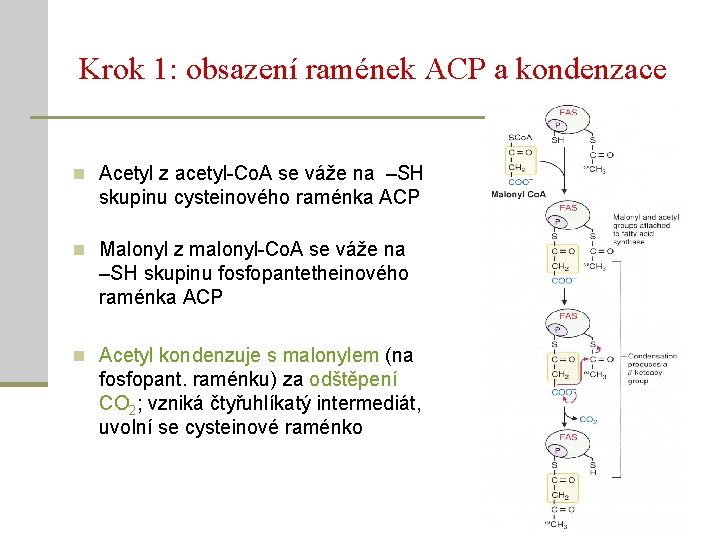
Krok 1: obsazení ramének ACP a kondenzace n Acetyl z acetyl-Co. A se váže na –SH skupinu cysteinového raménka ACP n Malonyl z malonyl-Co. A se váže na –SH skupinu fosfopantetheinového raménka ACP n Acetyl kondenzuje s malonylem (na fosfopant. raménku) za odštěpení CO 2; vzniká čtyřuhlíkatý intermediát, uvolní se cysteinové raménko
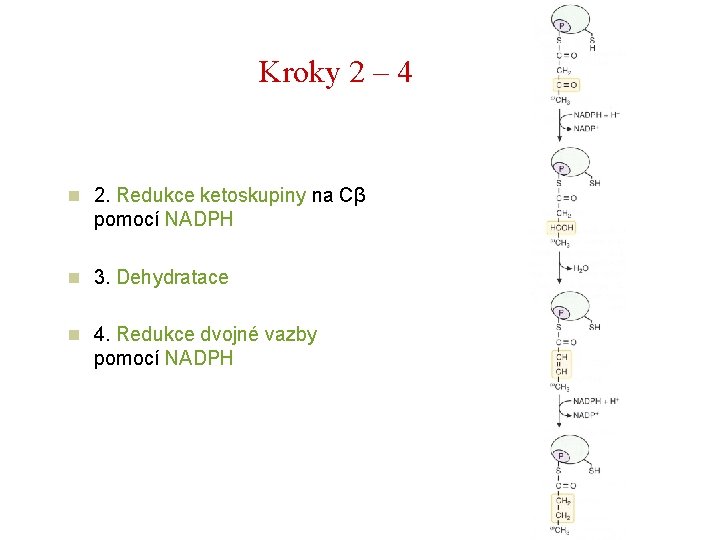
Kroky 2 – 4 n 2. Redukce ketoskupiny na Cβ pomocí NADPH n 3. Dehydratace n 4. Redukce dvojné vazby pomocí NADPH
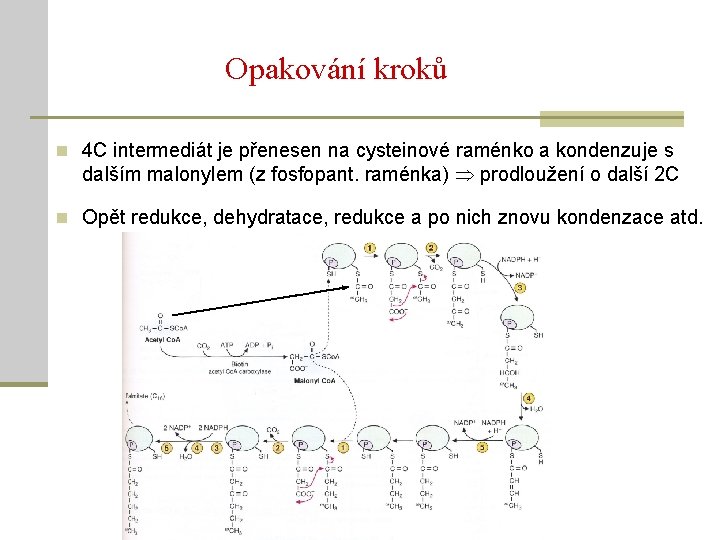
Opakování kroků n 4 C intermediát je přenesen na cysteinové raménko a kondenzuje s dalším malonylem (z fosfopant. raménka) prodloužení o další 2 C n Opět redukce, dehydratace, redukce a po nich znovu kondenzace atd.
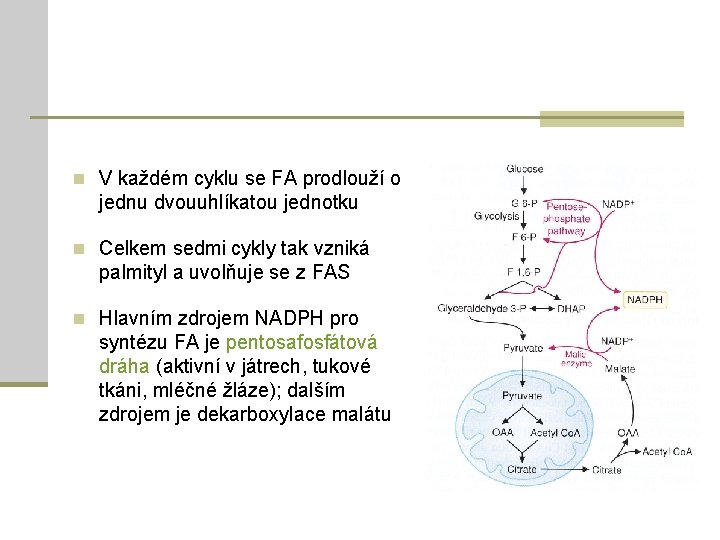
n V každém cyklu se FA prodlouží o jednu dvouuhlíkatou jednotku n Celkem sedmi cykly tak vzniká palmityl a uvolňuje se z FAS n Hlavním zdrojem NADPH pro syntézu FA je pentosafosfátová dráha (aktivní v játrech, tukové tkáni, mléčné žláze); dalším zdrojem je dekarboxylace malátu
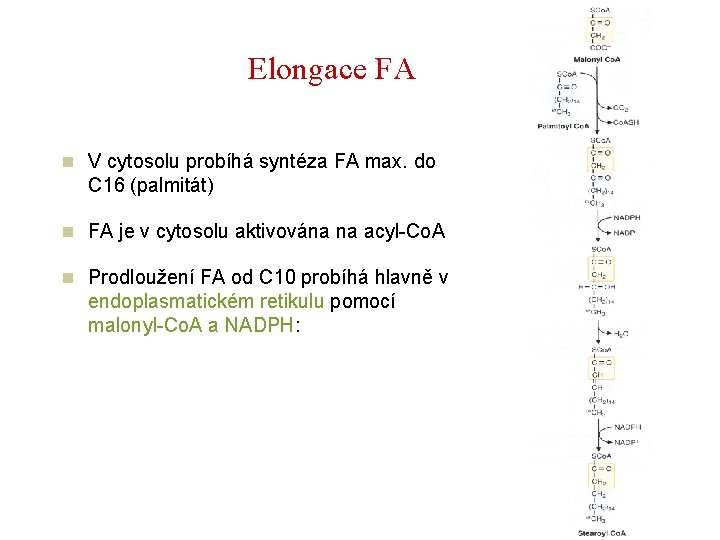
Elongace FA n V cytosolu probíhá syntéza FA max. do C 16 (palmitát) n FA je v cytosolu aktivována na acyl-Co. A n Prodloužení FA od C 10 probíhá hlavně v endoplasmatickém retikulu pomocí malonyl-Co. A a NADPH:
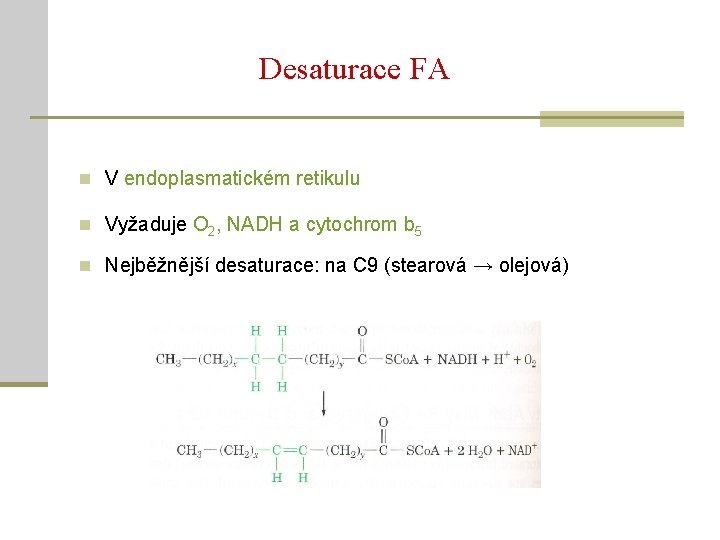
Desaturace FA n V endoplasmatickém retikulu n Vyžaduje O 2, NADH a cytochrom b 5 n Nejběžnější desaturace: na C 9 (stearová → olejová)
Degradace FA n FA = zásadní zdroj energie, zejména mezi jídly, v noci a při zvýšeném požadavku na přísun energie (cvičení) n Za těchto podmínek jsou FA uvolňovány z triacylglycerolů tukové tkáně, v krvi navázány na albumin a přeneseny ke tkáním n FA vstupují do cílových buněk a zde jsou aktivovány na acyl-Co. A, přeneseny pomocí karnitinu do mitochondrií a oxidovány n Produktem β-oxidace je acetyl-Co. A, který je oxidován v citrátovém cyklu resp. v játrech z velké části přeměněn na ketolátky
n Hlavní FA uvolňované z tukové tkáně pro získání energie: n n n palmitová olejová stearová n Tyto FA jsou nejhojnější v lipidech přijímaných potravou i syntetizované v lidském těle n Patří mezi tzv. mastné kyseliny s dlouhým řetězcem, LCFA (long-chain fatty acids), tj. FA s C 12 -C 20
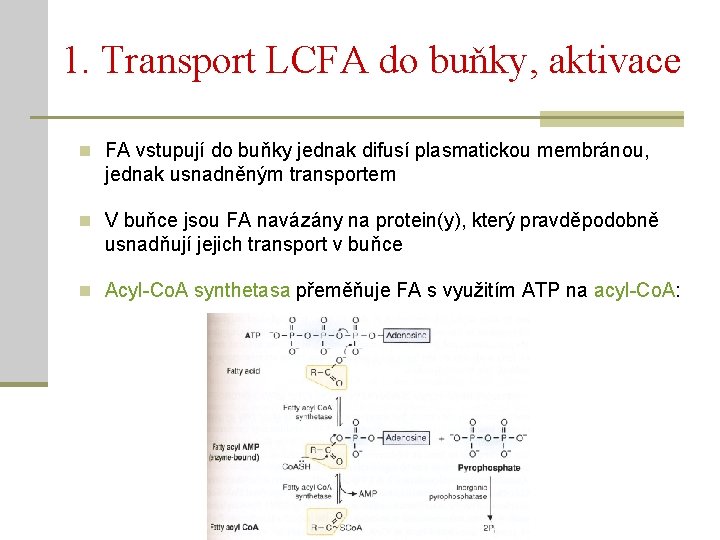
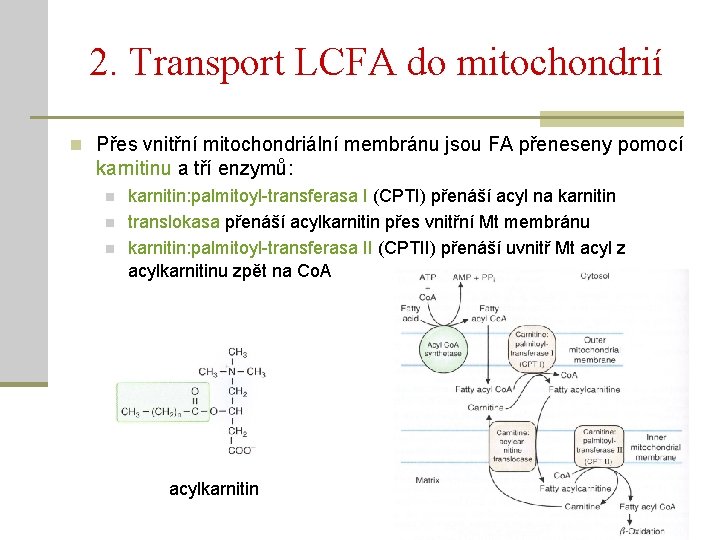
1. Transport LCFA do buňky, aktivace n FA vstupují do buňky jednak difusí plasmatickou membránou, jednak usnadněným transportem n V buňce jsou FA navázány na protein(y), který pravděpodobně usnadňují jejich transport v buňce n Acyl-Co. A synthetasa přeměňuje FA s využitím ATP na acyl-Co. A:
2. Transport LCFA do mitochondrií n Přes vnitřní mitochondriální membránu jsou FA přeneseny pomocí karnitinu a tří enzymů: n n n karnitin: palmitoyl-transferasa I (CPTI) přenáší acyl na karnitin translokasa přenáší acylkarnitin přes vnitřní Mt membránu karnitin: palmitoyl-transferasa II (CPTII) přenáší uvnitř Mt acyl z acylkarnitinu zpět na Co. A acylkarnitin
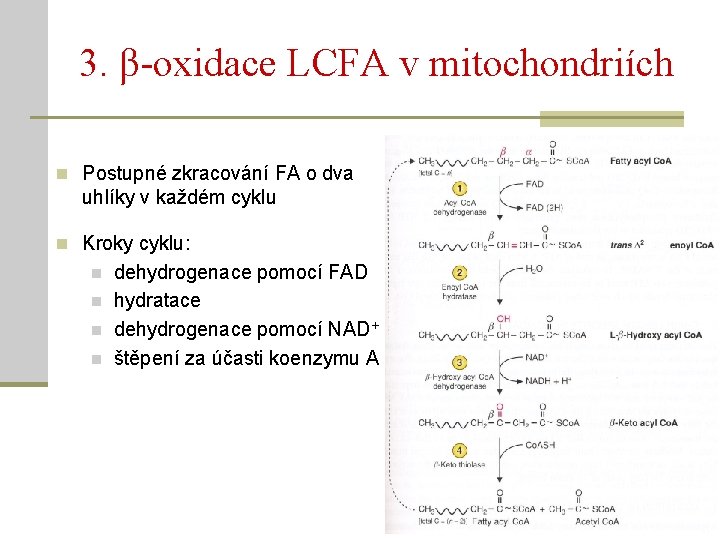
3. β-oxidace LCFA v mitochondriích n Postupné zkracování FA o dva uhlíky v každém cyklu n Kroky cyklu: n n dehydrogenace pomocí FAD hydratace dehydrogenace pomocí NAD+ štěpení za účasti koenzymu A
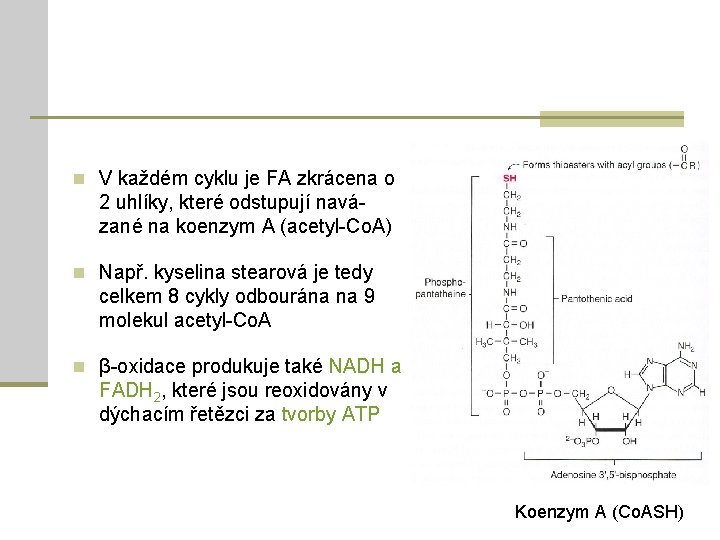
n V každém cyklu je FA zkrácena o 2 uhlíky, které odstupují navázané na koenzym A (acetyl-Co. A) n Např. kyselina stearová je tedy celkem 8 cykly odbourána na 9 molekul acetyl-Co. A n β-oxidace produkuje také NADH a FADH 2, které jsou reoxidovány v dýchacím řetězci za tvorby ATP Koenzym A (Co. ASH)
Modifikace schématu katabolismu FA n Popsané schéma plně vystihuje oxidaci LCFA (12 -20 C) n Změny se objevují u: n n nenasycených FA FA s lichým počtem atomů uhlíku FA se středně dlouhým řetězcem (6 -12 C) probíhá mitochondriální β-oxidace peroxisomální oxidace – FA s velmi dlouhým (> 20 C) a větveným řetězcem ω-oxidace FA probíhá jiný typ oxidace
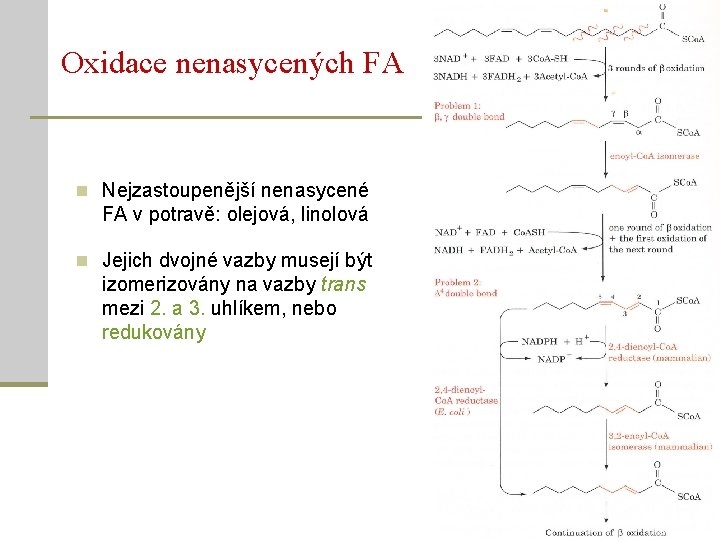
Oxidace nenasycených FA n Nejzastoupenější nenasycené FA v potravě: olejová, linolová n Jejich dvojné vazby musejí být izomerizovány na vazby trans mezi 2. a 3. uhlíkem, nebo redukovány
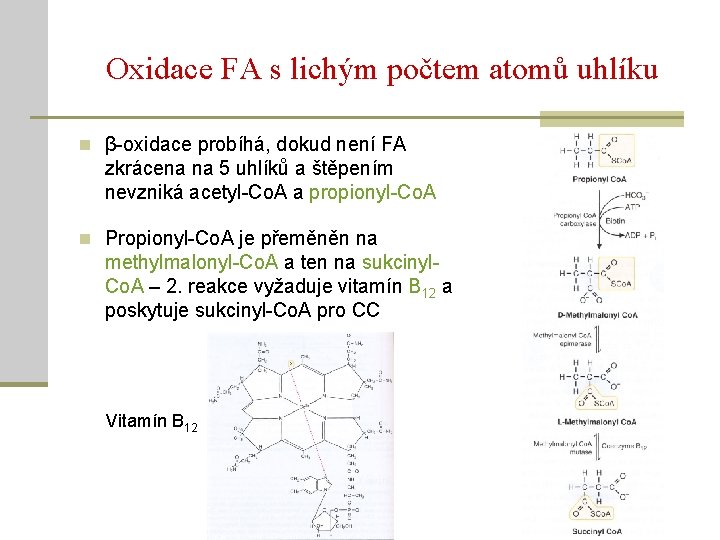
Oxidace FA s lichým počtem atomů uhlíku n β-oxidace probíhá, dokud není FA zkrácena na 5 uhlíků a štěpením nevzniká acetyl-Co. A a propionyl-Co. A n Propionyl-Co. A je přeměněn na methylmalonyl-Co. A a ten na sukcinyl. Co. A – 2. reakce vyžaduje vitamín B 12 a poskytuje sukcinyl-Co. A pro CC Vitamín B 12
FA se středně dlouhým řetězcem (C 6 -C 12) n Tyto FA jsou rozpustnější než LCFA a nejsou skladovány v triacylglycerolech tukové tkáně n Po jídle se dostávají do krve a portální žilou do jater n V játrech jsou monokarboxylátovým přenašečem transportovány do mitochondrií, kde jsou aktivovány na acyl-Co. A n Poté vstupují do β-oxidace
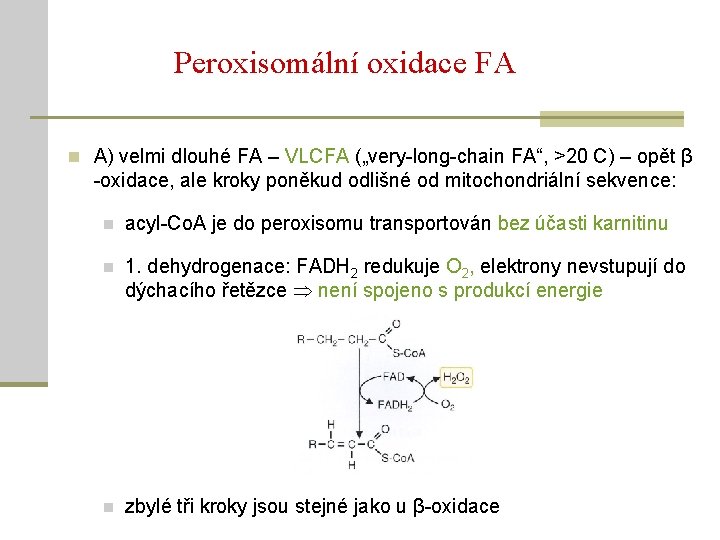
Peroxisomální oxidace FA n A) velmi dlouhé FA – VLCFA („very-long-chain FA“, >20 C) – opět β -oxidace, ale kroky poněkud odlišné od mitochondriální sekvence: n acyl-Co. A je do peroxisomu transportován bez účasti karnitinu n 1. dehydrogenace: FADH 2 redukuje O 2, elektrony nevstupují do dýchacího řetězce není spojeno s produkcí energie n zbylé tři kroky jsou stejné jako u β-oxidace
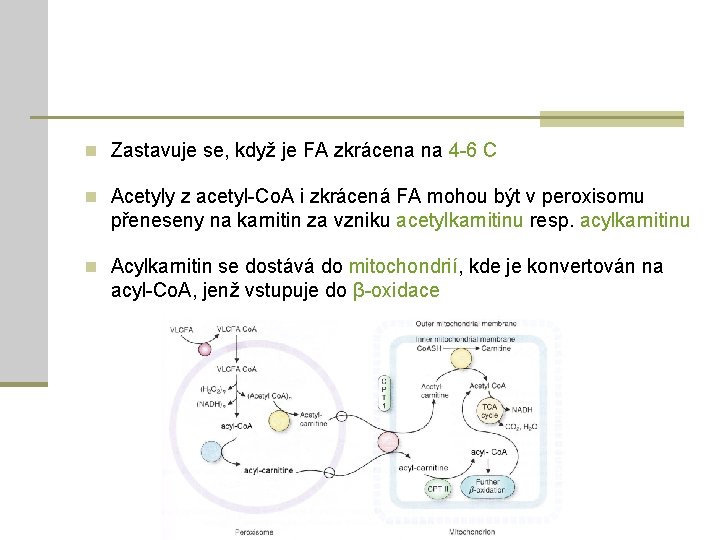
n Zastavuje se, když je FA zkrácena na 4 -6 C n Acetyly z acetyl-Co. A i zkrácená FA mohou být v peroxisomu přeneseny na karnitin za vzniku acetylkarnitinu resp. acylkarnitinu n Acylkarnitin se dostává do mitochondrií, kde je konvertován na acyl-Co. A, jenž vstupuje do β-oxidace
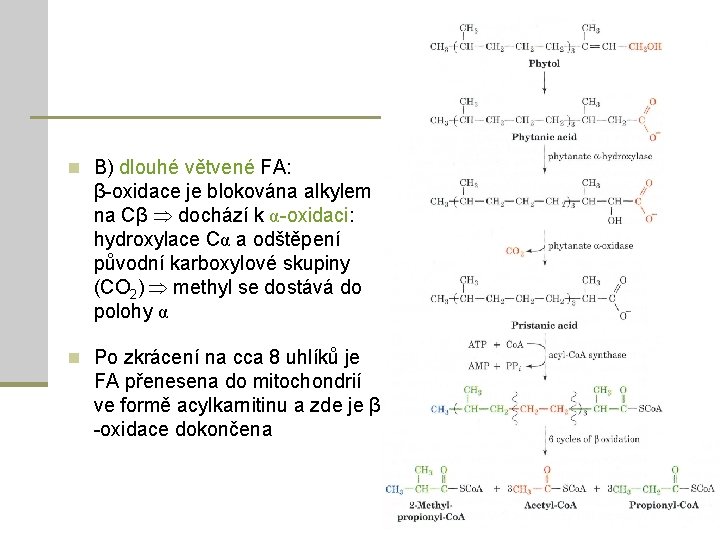
n B) dlouhé větvené FA: β-oxidace je blokována alkylem na Cβ dochází k α-oxidaci: hydroxylace Cα a odštěpení původní karboxylové skupiny (CO 2) methyl se dostává do polohy α n Po zkrácení na cca 8 uhlíků je FA přenesena do mitochondrií ve formě acylkarnitinu a zde je β -oxidace dokončena
Refsumova nemoc n Fytanová kyselina, produkt metabolismu fytolu, je obsažena v mléce a živočišných tucích n U pacientů je snížena aktivita peroxisomální α-hydroxylasy a kys. fytanová se akumuluje v tkáních a séru n To má za následek neurologické problémy: třes, poruchy sluchu, chabé noční vidění, ataxie. n Intervence: omezení příjmu mléčných produktů a masa z přežvýkavců v potravě
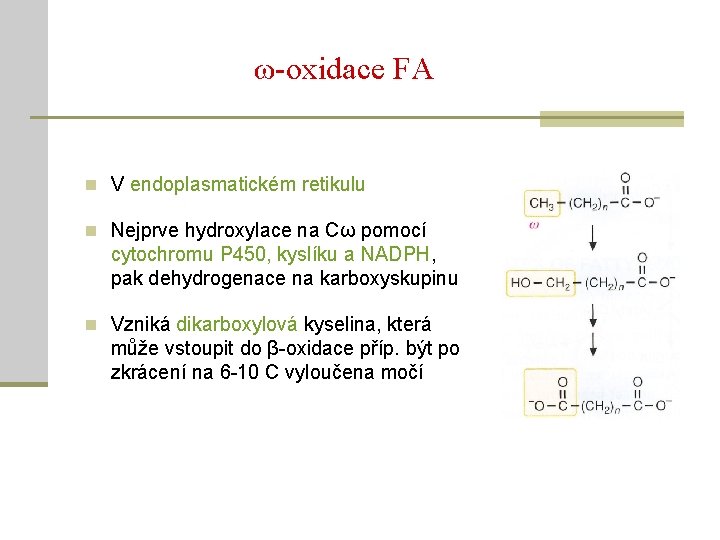
ω-oxidace FA n V endoplasmatickém retikulu n Nejprve hydroxylace na Cω pomocí cytochromu P 450, kyslíku a NADPH, pak dehydrogenace na karboxyskupinu n Vzniká dikarboxylová kyselina, která může vstoupit do β-oxidace příp. být po zkrácení na 6 -10 C vyloučena močí
n Peroxisomální a mikrosomální oxidace FA slouží ke: n zkrácení dlouhých FA a přeměně větvených FA na produkty, které mohou být degradovány (mitochondriální β-oxidací) n snížení hladin nerozpustných FA a xenobiotik s podobnou strukturou
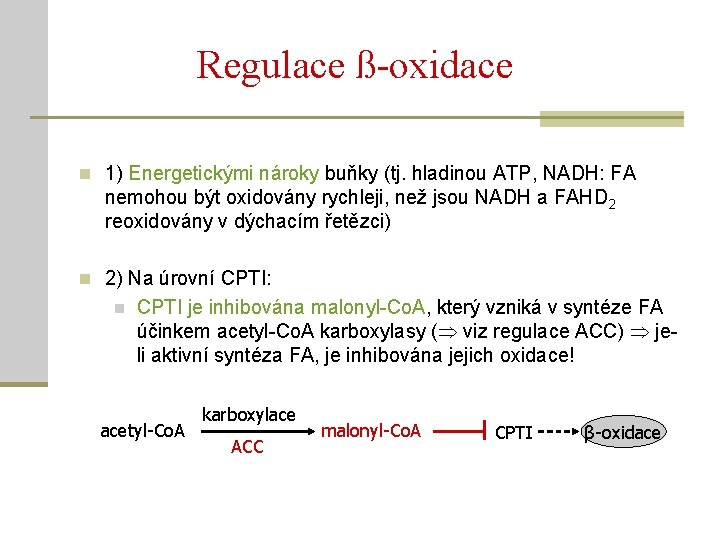
Regulace ß-oxidace n 1) Energetickými nároky buňky (tj. hladinou ATP, NADH: FA nemohou být oxidovány rychleji, než jsou NADH a FAHD 2 reoxidovány v dýchacím řetězci) n 2) Na úrovní CPTI: n CPTI je inhibována malonyl-Co. A, který vzniká v syntéze FA účinkem acetyl-Co. A karboxylasy ( viz regulace ACC) jeli aktivní syntéza FA, je inhibována jejich oxidace! acetyl-Co. A karboxylace ACC malonyl-Co. A CPTI β-oxidace
Ketolátky n V játrech je acetyl-Co. A buď oxidován v citrátovém cyklu, nebo v mitochondriích přeměněn na ketolátky, které jsou uvolněny do krve a tou se dostávají ke tkáním n Ketolátky: n n n acetoacetát β-D-hydroxybutyrát n Ketolátky jsou rozpustnými ekvivalenty FA
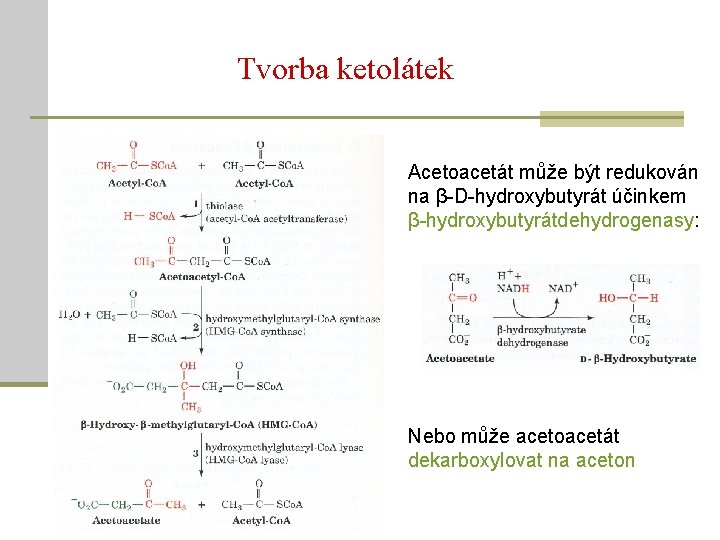
Tvorba ketolátek Acetoacetát může být redukován na β-D-hydroxybutyrát účinkem β-hydroxybutyrátdehydrogenasy: Nebo může acetoacetát dekarboxylovat na aceton
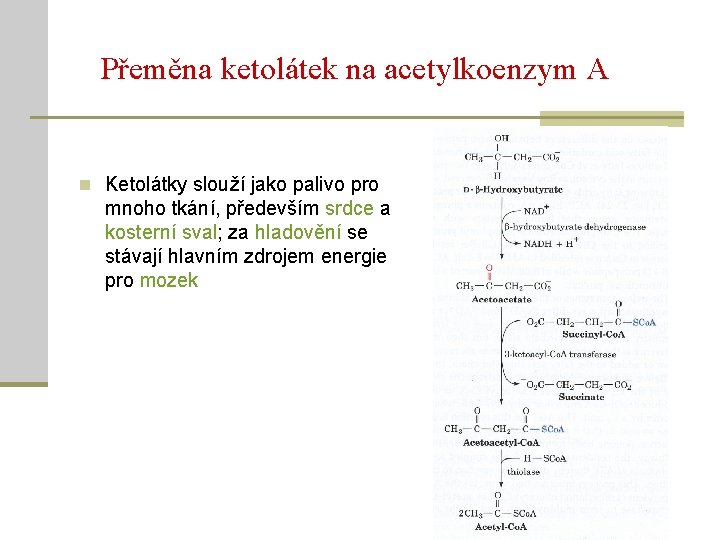
Přeměna ketolátek na acetylkoenzym A n Ketolátky slouží jako palivo pro mnoho tkání, především srdce a kosterní sval; za hladovění se stávají hlavním zdrojem energie pro mozek
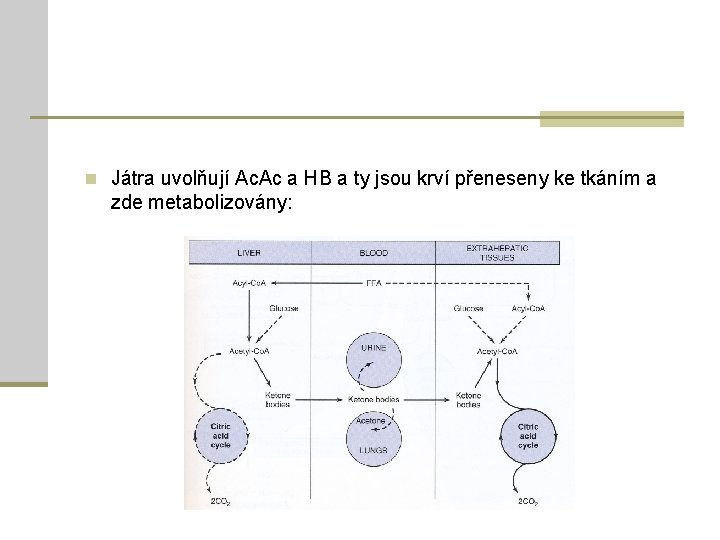
n Játra uvolňují Ac. Ac a HB a ty jsou krví přeneseny ke tkáním a zde metabolizovány:
n Syntéza ketolátek se zvyšuje, když roste přísun FA: n n n hladovění delší cvičení vysokotuková nebo nízkosacharidová dieta n Za těchto stavů jsou ketolátky některými tkáněmi oxidovány přednostně (kosterní sval, buňky střevní mukosy, adipocyty, mozek, srdce…) s cílem šetřit glukosu a svalové proteiny n Diabetes mellitus I, dlouhodobé hladovění výrazný nárůst produkce ketolátek ketonemie, ketonurie, ketoacidosa