Looduslik valik LV toimimise tingimused eri vormid uued

































- Slides: 107
Looduslik valik (LV) • • toimimise tingimused eri vormid uued variandid ja LV LV teooria ühelookuselises populatsioonibioloogias
Looduslik valik (LV) järgeb automaatselt, kui esinevad kõik 4: 1) Reproduktiivsus 2) Pärilikkus - järglaskond peab sarnanema vanematega 3) Varieeruvus indiviidide vahel 4) Varieeruvus järglaste arvus sõltuvalt varieeruvusest muudes tunnustes
kohasus, fitness – teatud tunnustega indiviidide suhteline järglaste arv (või ellujäämine) võrreldes populatsiooni keskmisega, suhteline LV võib põhjustada nii muutumist kui ühetaolisena püsimist. Kui keskkond muutub, soosib valik uusi vorme, mis on kohasemad. Kui keskkond ei muutu ja samale keskkonnale paremini kohastunud vorme ei teki, hoiab valik populatsiooni muutumatuna (puhastav valik).
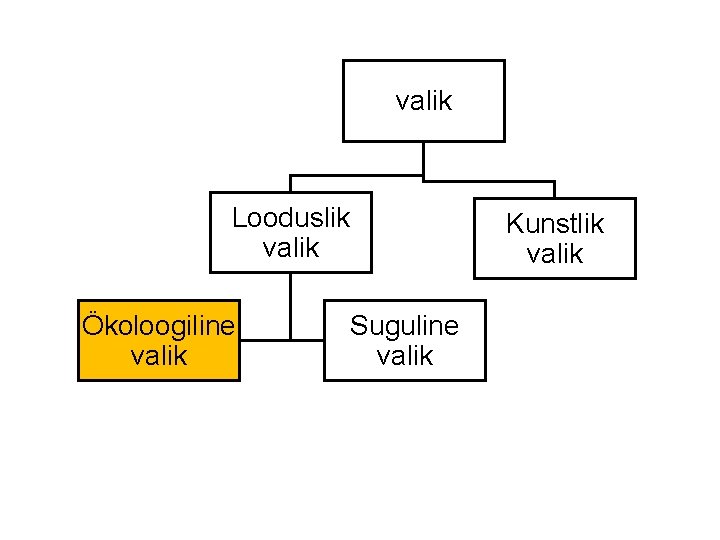
valik Looduslik valik Ökoloogiline valik Kunstlik valik Suguline valik
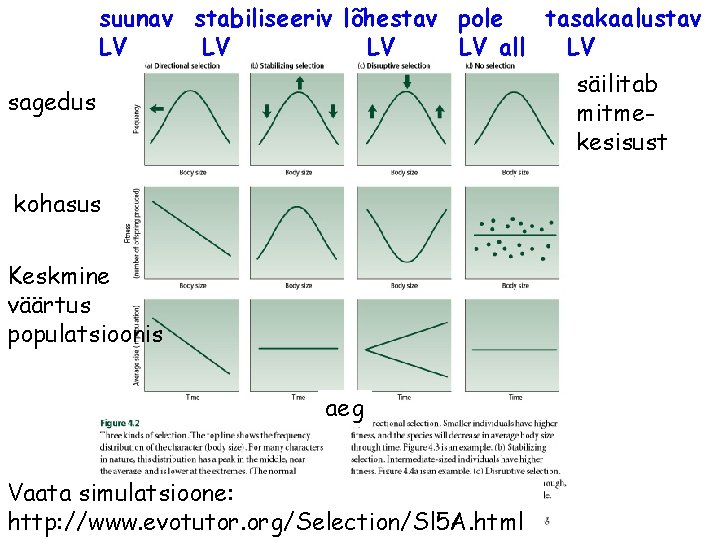
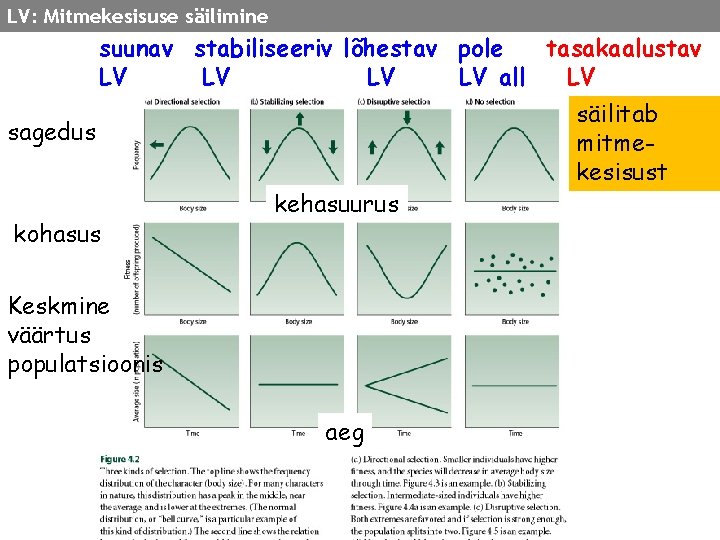
suunav stabiliseeriv lõhestav pole tasakaalustav LV LV all LV säilitab mitmekesisust sagedus kohasus Keskmine väärtus populatsioonis aeg Vaata simulatsioone: http: //www. evotutor. org/Selection/Sl 5 A. html
Hobuse evolutsiooniline liin kujunes metsas, mis muutus avatud rohumaaks
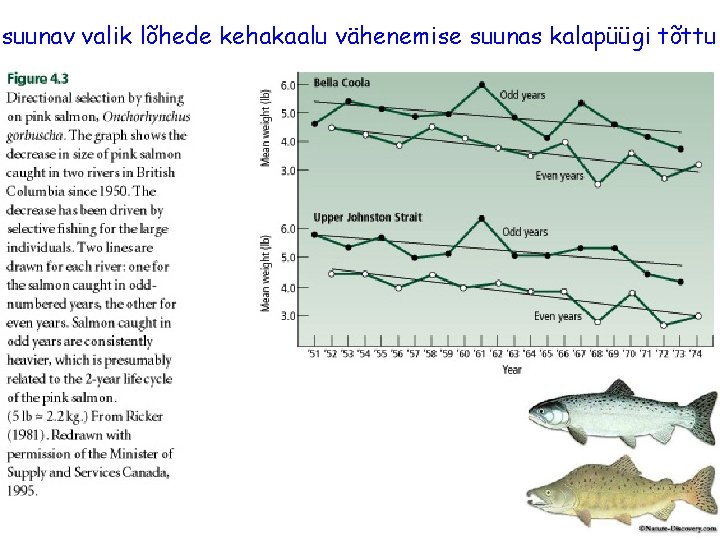
suunav valik lõhede kehakaalu vähenemise suunas kalapüügi tõttu
Stabiliseeriv valik kahepaiksete pulmahüüule. Emased väldivad äärmusliku hüüuga isaseid, et vältida teise liigi isenditega (viljatut) ristumist. selektsiooni surve paaritumisedukus hüüu sagedus
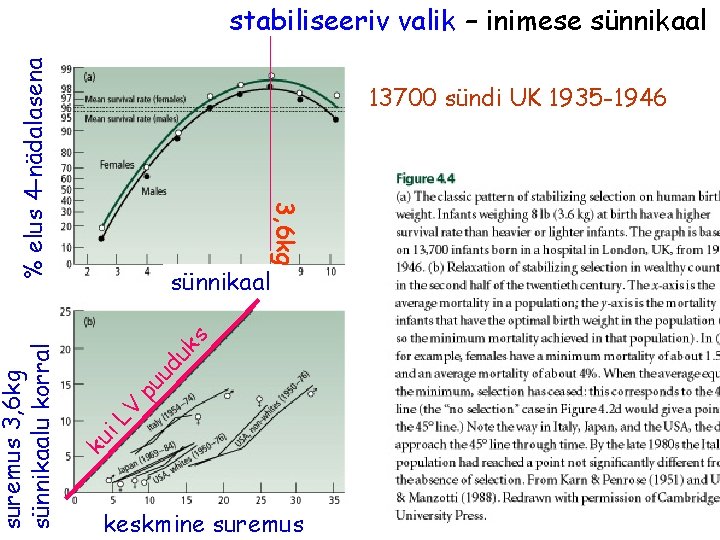
13700 sündi UK 1935 -1946 3, 6 kg i. L V pu ud uk s sünnikaal ku suremus 3, 6 kg sünnikaalu korral % elus 4 -nädalasena stabiliseeriv valik – inimese sünnikaal keskmine suremus
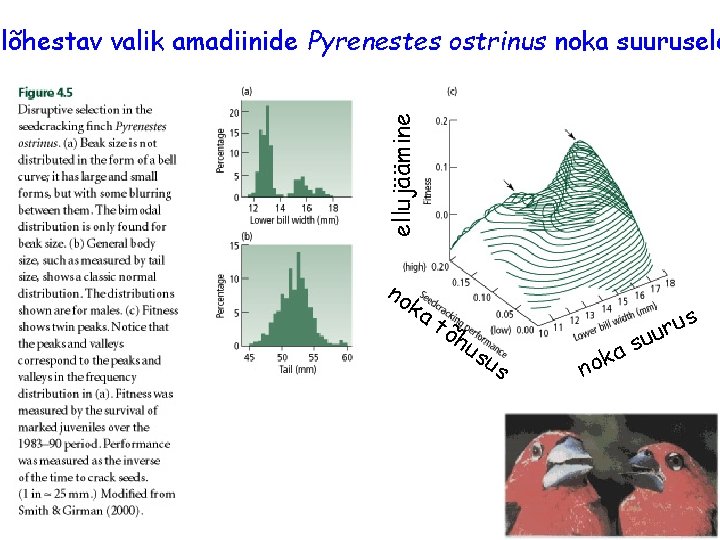
ellujäämine lõhestav valik amadiinide Pyrenestes ostrinus noka suurusele no ka tõ hu s us a k o n s s u r uu
Mutatsioonid on juhuslikud ega tüüri evolutsiooni mingis kindlas suunas. Suunavaks teguriks on valik, mitte mutatsioon. Mutatsioonide juhuslikkus ei tähenda seda, et kõik molekulaarsed muutused oleksid võrdväärselt tõenäolised. Mutatsioonid on juhuslikud kohasuse suhtes! Uut varieeruvust tekitab ka olemasolevate variantide rekombineerumine sugulise sigimise korral.
Äärmuslik näide mutatsioonilisest jõust uute variantide tekitamisel Keskmisel AIDSihaigel tekib umbes 1012 uut viirusvarianti päevas: HIV genoom on umbes 104 nukleotiidi pikk ja polümeraas teeb keskmiselt 1 vea 104 nukleotiidi kohta. Seega on igas uues viiruses keskmiselt üks uus mutatsioon. 3 TC Ravimresistentsuseks piisabki vaid ühest mutatsioonist. Ravi alustamisel rakendub sellele tugev selektiivne eelis ja 3 nädala pärast 100% resistentne.
Kokkuvõte 1 1. Organismid toodavad järglaskonda liias, toimub olelusvõitlus 2. LV toimib juhul kui organismid paljunevad, erinevad omavahel pärilikel põhjustel ja saavad selle tõttu erineva hulga järglasi 3. LV võib olla suunav, tasakaalustav, lõhestav, kui edamasti on puhastav (negative selection) 4. Mutatsioonid on kohasuse suhtes juhuslikud ega mõjuta alleelisageduse muutumise suunda populatsioonis
Loodusliku valiku teooria ühelookuselises populatsioonibioloogias • lõpmata suur vabalt ristuv ehk panmiktiline populatsioon • mendellik pärilikkus • genotüübisageduste muutumine põlvkondade lõikes
Pärilikkust võib jagada: 1. Mendellik e. geneetiline pärilikkus kitsas mõttes, mis põhineb tuuma DNA replikatsioonil ja rakkude jagunemisel 2. Epigeneetiline pärilikkus, sõltuvalt DNA modifikatsioonidest, mis mõjutavad geeniekspressiooni 3. Mitte-mendellik pärilikkus hõlmab tsütoplasmaatilist pärilikkust (mitokondriaalne DNA, plastiidide DNA)
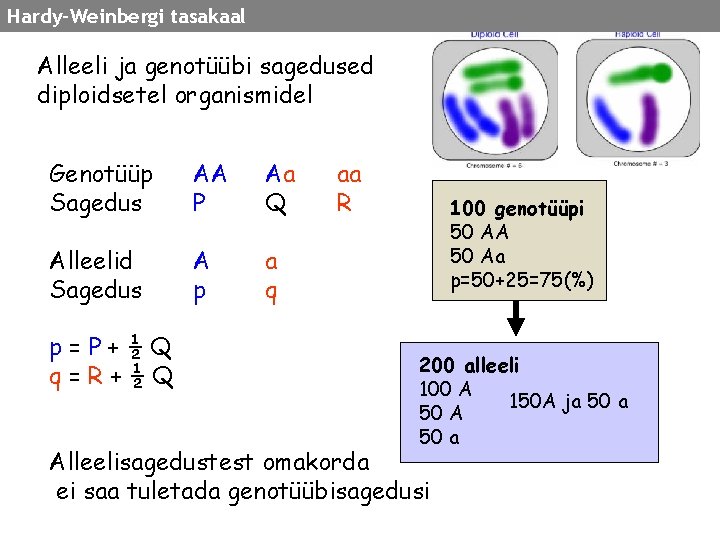
Hardy-Weinbergi tasakaal Alleeli ja genotüübi sagedused diploidsetel organismidel Genotüüp Sagedus AA P Aa Q Alleelid Sagedus A p a q p=P+½Q q=R+½Q aa R 100 genotüüpi 50 AA 50 Aa p=50+25=75(%) 200 alleeli 100 A 150 A ja 50 A 50 a Alleelisagedustest omakorda ei saa tuletada genotüübisagedusi
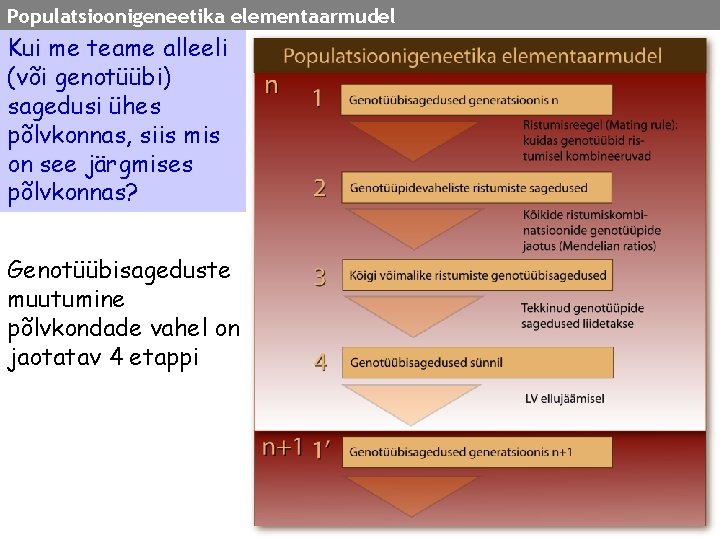
Populatsioonigeneetika elementaarmudel Kui me teame alleeli (või genotüübi) sagedusi ühes põlvkonnas, siis mis on see järgmises põlvkonnas? Genotüübisageduste muutumine põlvkondade vahel on jaotatav 4 etappi
Populatsioonigeneetika elementaarmudel Elementaarmudeli eeldused ehk erinevused reaalsest olukorrast lihtsustamise eesmärgil: 1. Käsitletakse ainult kohasuse “ellujäämise” komponenti, arvestamata erinevusi genotüüpide viljakuses 2. Eeldatakse juhuslikku ristumist = panmiksis 3. Geenivoolu (migratsiooni teistest populatsioonidest) ei ole 4. Uusi alleele (mutatsioone) ei teki
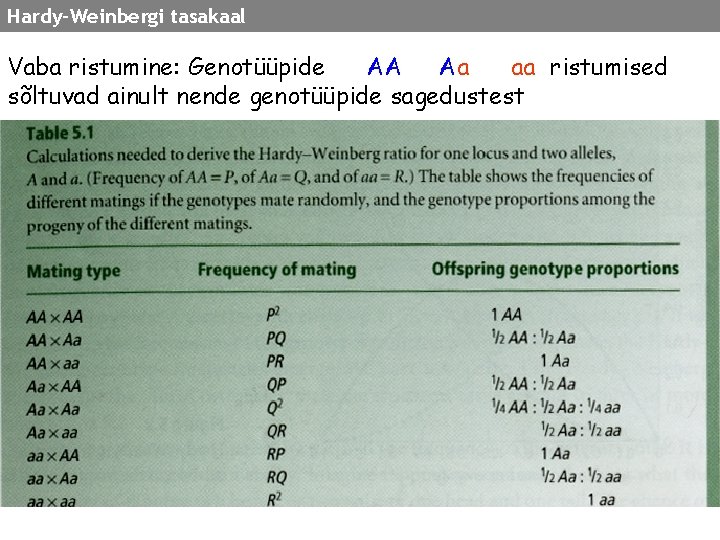
Hardy-Weinbergi tasakaal Vaba ristumine: Genotüüpide AA Aa aa ristumised sõltuvad ainult nende genotüüpide sagedustest
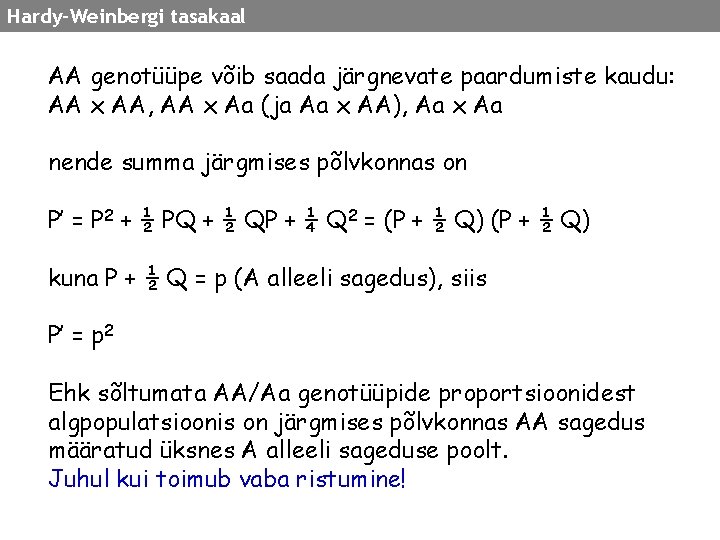
Hardy-Weinbergi tasakaal AA genotüüpe võib saada järgnevate paardumiste kaudu: AA x AA, AA x Aa (ja Aa x AA), Aa x Aa nende summa järgmises põlvkonnas on P’ = P 2 + ½ PQ + ½ QP + ¼ Q 2 = (P + ½ Q) kuna P + ½ Q = p (A alleeli sagedus), siis P’ = p 2 Ehk sõltumata AA/Aa genotüüpide proportsioonidest algpopulatsioonis on järgmises põlvkonnas AA sagedus määratud üksnes A alleeli sageduse poolt. Juhul kui toimub vaba ristumine!
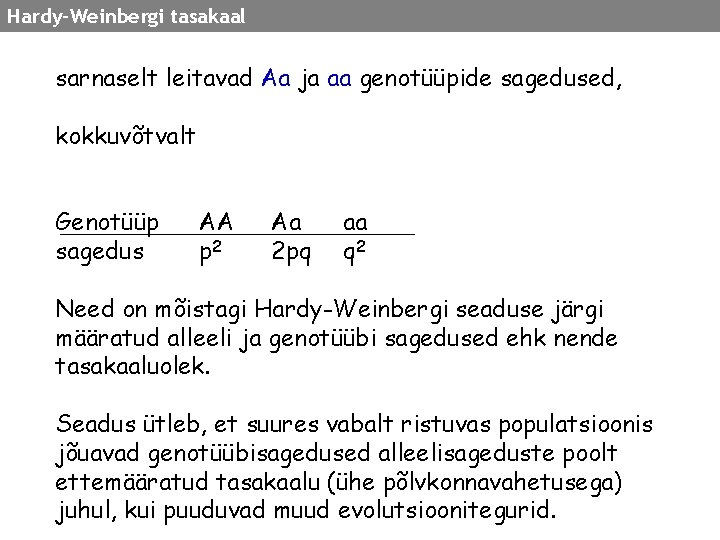
Hardy-Weinbergi tasakaal sarnaselt leitavad Aa ja aa genotüüpide sagedused, kokkuvõtvalt Genotüüp sagedus AA p 2 Aa 2 pq aa q 2 Need on mõistagi Hardy-Weinbergi seaduse järgi määratud alleeli ja genotüübi sagedused ehk nende tasakaaluolek. Seadus ütleb, et suures vabalt ristuvas populatsioonis jõuavad genotüübisagedused alleelisageduste poolt ettemääratud tasakaalu (ühe põlvkonnavahetusega) juhul, kui puuduvad muud evolutsioonitegurid.
Hardy-Weinbergi tasakaal
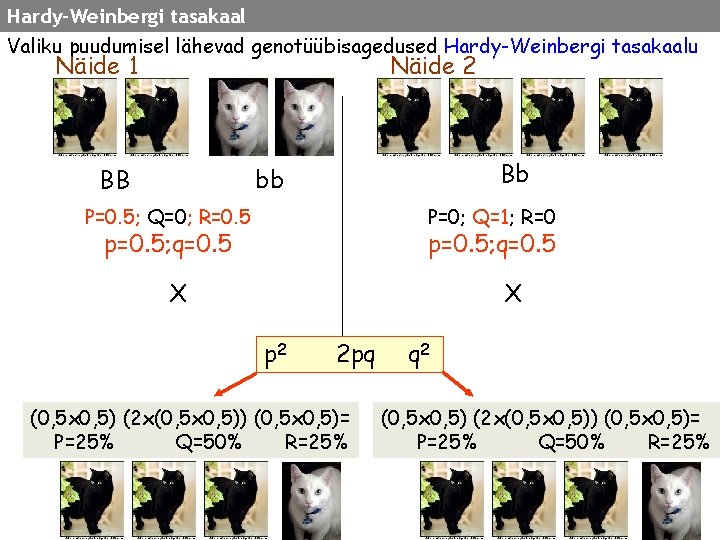
Hardy-Weinbergi tasakaal Valiku puudumisel lähevad genotüübisagedused Hardy-Weinbergi tasakaalu Näide 1 Näide 2 BB Bb bb P=0. 5; Q=0; R=0. 5 P=0; Q=1; R=0 p=0. 5; q=0. 5 X X p 2 2 pq (0, 5 x 0, 5) (2 x(0, 5 x 0, 5)) (0, 5 x 0, 5)= P=25% Q=50% R=25% q 2 (0, 5 x 0, 5) (2 x(0, 5 x 0, 5)) (0, 5 x 0, 5)= P=25% Q=50% R=25%
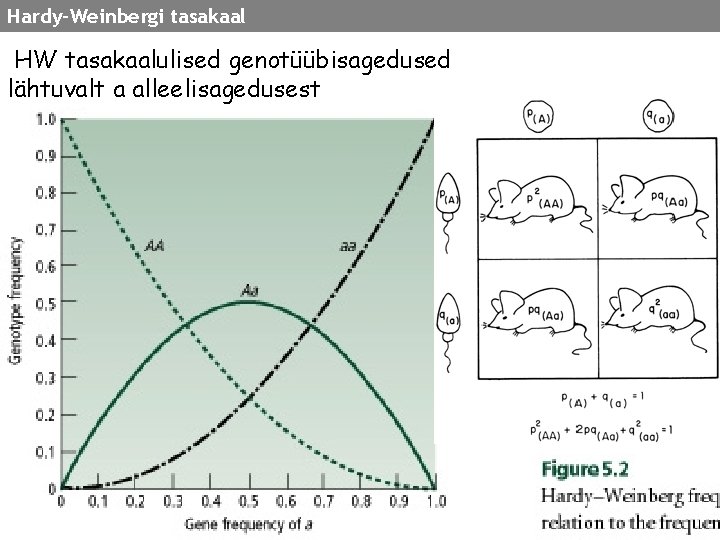
Hardy-Weinbergi tasakaal HW tasakaalulised genotüübisagedused lähtuvalt a alleelisagedusest
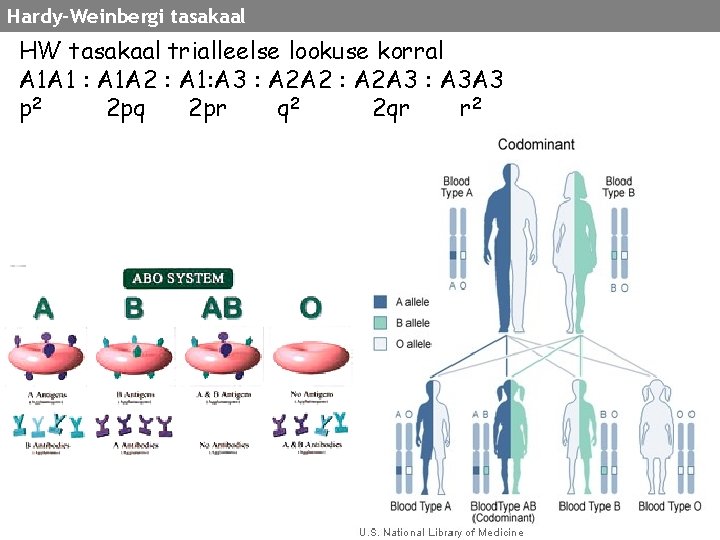
Hardy-Weinbergi tasakaal HW tasakaal trialleelse lookuse korral A 1 A 1 : A 1 A 2 : A 1: A 3 : A 2 A 2 : A 2 A 3 : A 3 A 3 p 2 2 pq 2 pr q 2 2 qr r 2
Hardy-Weinbergi tasakaal • Genotüübisagedustest saab alati arvutada alleelisagedused • Vastupidine on võimalik vaid ennustusena, mis on täpne kui populatsioon on HW tasakaalus.
Hardy-Weinbergi tasakaalu olulisus • • • Ajalooliselt: HWga tuldi välja 20. saj esimesel kümnendil, just siis kui debatt mendelismi ja seguneva pärandumise üle oli kõige kuumem. Näidati kvantitatiivselt kuidas mendelliku pärilikkuse korral mitmekesisus säilib (samas kui seguneva mudeli puhul kadus). Hüpoteesi püstitusel: Kui näeme, et mingi populatsioon ei ole mingis lookuses HW tasakaalus on põhjust uurida miks (kas on LV või mittejuhuslik ristumine) Teoreetiline: neljaastmelisest pop. gen. mudelist jäävad alles vaid 1. ja 4. aste ja ainsaks arvutuseks nende vahele HW tasakaal. Sealt edasi mõjub LV ellujäämisel ja tulemuseks on genotüübisagedused generatsioonis n+1.
Hardy-Weinbergi tasakaal
LV: heterosügootne eelis Sirprakuline aneemia AA, AS SS a (S) hemoglobiini variant blokeerivad kapillaare ja põhjustavad aneemia SS peaaegu letaalne genotüüp 80% surevad ilma järglasteta
Hardy-Weinbergi tasakaal Kasutame HW tasakaalu reaalses populatsioonis Küsimus. 9% mingist Aafrika populatsioonist põeb sirprakulist aneemiat (‘ss’). Kui suur osa populatsioonist on resistentne malaariale, eeldades, et ‘s’ alleel heterosügootidel tagab resistentsuse. Vastus. 9% on homosügoodid (ss) q 2=0. 09 -> q = 0. 3 p = 1 – q = 0. 7 Q = 2 pq = 0. 42 -> 42% populatsioonist eeldusel, et populatsioon on HW tasakaalus
Hardy-Weinbergi tasakaal Kontrollime HW tasakaalu reaalses populatsioonis võrdle vaadelduid ja oodatuid
Hardy-Weinbergi tasakaal Kontrollime HW tasakaalu reaalses populatsioonis võrdle vaadeldud ja oodatud sagedusi Populatsioonid on HW tasakaalus, kuigi populatsioonide vaheliselt on olulisi erinevusi alleelisagedustes
Ülesanne Millised populatsioonid on HW tasakaalus? Nende puhul mis ei ole tasakaalus, mõistata miks. Populatsioon 1 2 3 4 5 AA 25 10 40 0 2 Aa 50 80 20 150 16 aa 25 10 40 100 32 Vaatlustulemus mitte %
Hardy-Weinbergi tasakaal Kui populatsioon ei ole HWs, siis kas - valik - mittejuhuslik ristumine
mittejuhuslik ristumine Positiivne valikuline paardumine – sarnane otsib sarnast (Assortative mating) • Inbreeding • Stabiliseeriv valik Negatiivne valikuline paardumine – erinevate fenotüüpidega isendite paardumine (Disassortative mating) • inbriidingut välditakse lõhnadega (odoorsed mehhanismid sõltuvalt immuunsüsteemist) Vaata videot: http: //www. pbs. org/wgbh/evolution/library/01/6/l_016_08. html
Looduslik valik: populatsioonigeneetika mudelid • valik retsessiivse alleeli vastu • mutatsiooni ja valiku tasakaal: kahjulik dominantne allee • heterosügootne eelis • sagedusest sõltuv kohasus: negatiivne/positiivne tagasis • mitmekesisuse püsimine heterogeenses keskkonnas • Wahlundi efekt • geenivool: Island model • valiku ja geenivoolu tasakaal
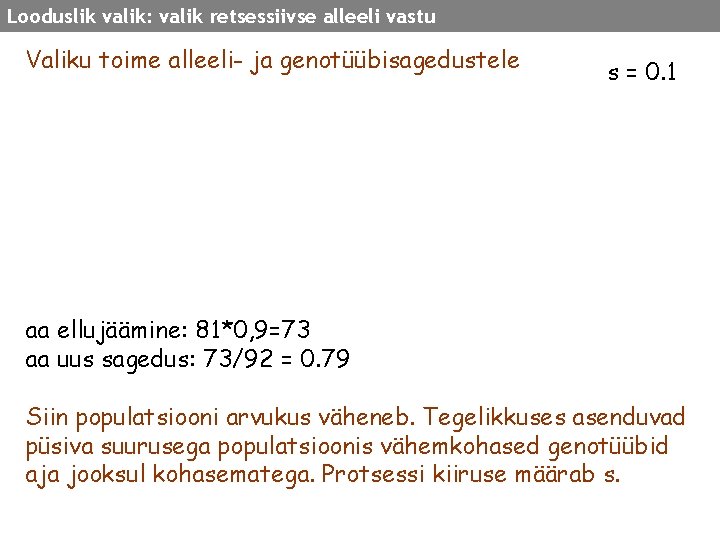
Looduslik valik: valik retsessiivse alleeli vastu Loodusliku valiku lihtsaim mudel: genotüüp AA, Aa aa ellujäämise tõenäosus (kohasus) 1 1 -s s – selektsiooni (valiku) koefitsient, mida väljendatakse edukaima genotüübi suhtes Kui s on 0. 1 siis aa ellujäämise tõenäosus on 90% AA ja Aa omast
Looduslik valik: valik retsessiivse alleeli vastu Valiku toime alleeli- ja genotüübisagedustele s = 0. 1 aa ellujäämine: 81*0, 9=73 aa uus sagedus: 73/92 = 0. 79 Siin populatsiooni arvukus väheneb. Tegelikkuses asenduvad püsiva suurusega populatsioonis vähemkohased genotüübid aja jooksul kohasematega. Protsessi kiiruse määrab s.
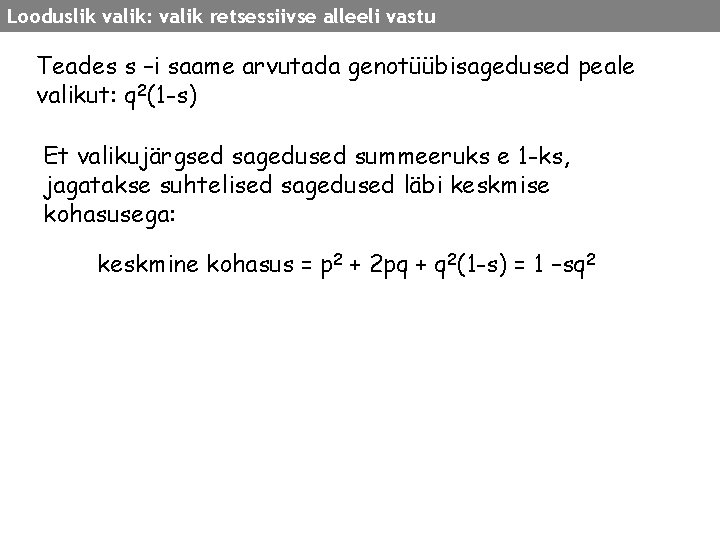
Looduslik valik: valik retsessiivse alleeli vastu Teades s –i saame arvutada genotüübisagedused peale valikut: q 2(1 -s) Et valikujärgsed sagedused summeeruks e 1 -ks, jagatakse suhtelised sagedused läbi keskmise kohasusega: keskmine kohasus = p 2 + 2 pq + q 2(1 -s) = 1 –sq 2
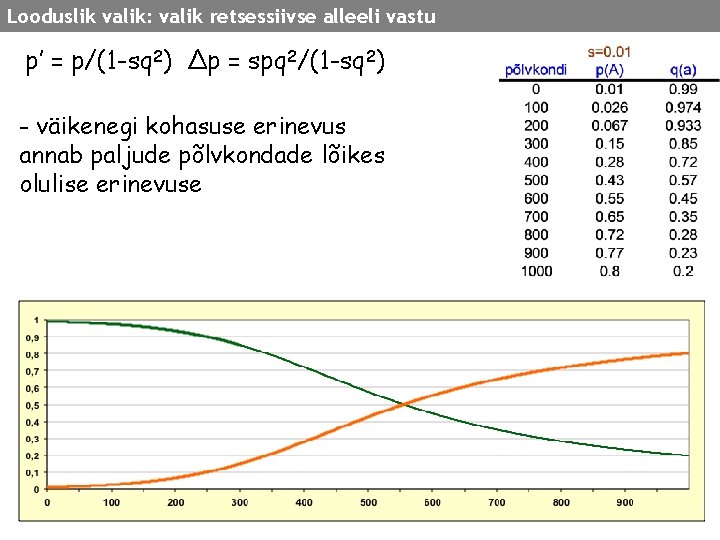
Looduslik valik: valik retsessiivse alleeli vastu seega uus alleelisagedus: p’ = (p 2+pq)/(1 -sq 2) = p/(1 -sq 2) Ja sageduse muutus: p = p’ – p = spq 2/(1 -sq 2) vastupidi, kui me teame kuidas alleelisagedused muutuvad, võime arvutada selektsioonikoefitsienti: s = p/p’q 2
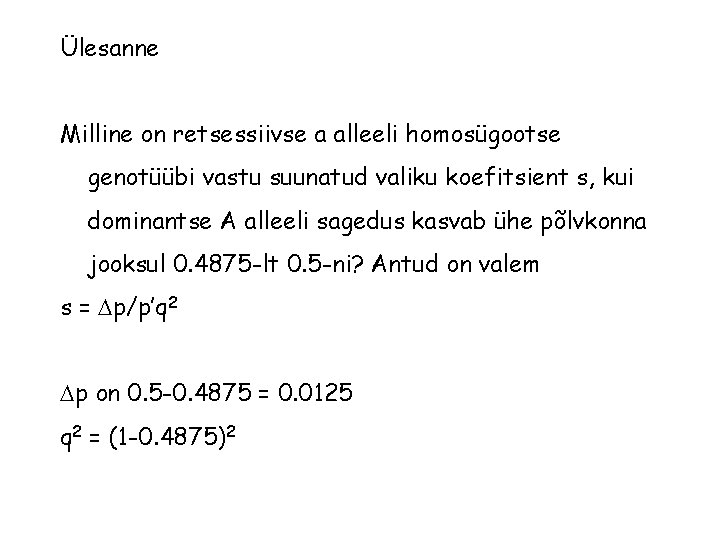
Ülesanne Milline on retsessiivse a alleeli homosügootse genotüübi vastu suunatud valiku koefitsient s, kui dominantse A alleeli sagedus kasvab ühe põlvkonna jooksul 0. 4875 -lt 0. 5 -ni? Antud on valem s = p/p’q 2 p on 0. 5 -0. 4875 = 0. 0125 q 2 = (1 -0. 4875)2
Looduslik valik: valik retsessiivse alleeli vastu p’ = p/(1 -sq 2) ∆p = spq 2/(1 -sq 2) - väikenegi kohasuse erinevus annab paljude põlvkondade lõikes olulise erinevuse
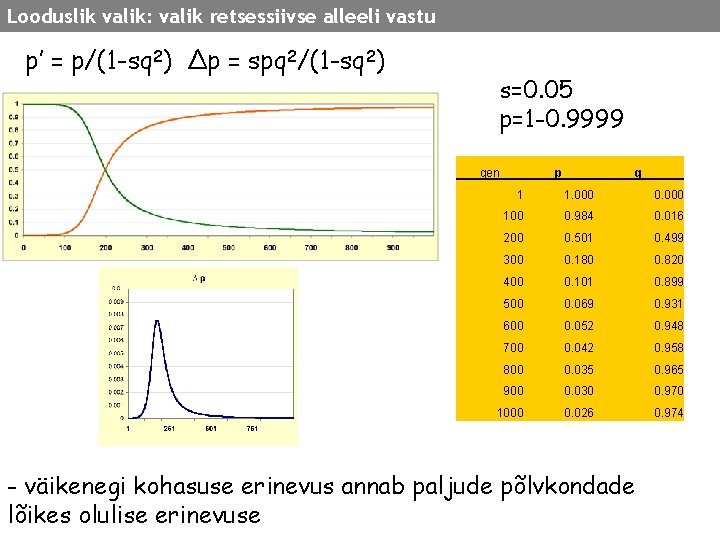
Looduslik valik: valik retsessiivse alleeli vastu p’ = p/(1 -sq 2) ∆p = spq 2/(1 -sq 2) s=0. 05 p=1 -0. 9999 gen p q 1 1. 000 0. 000 100 0. 984 0. 016 200 0. 501 0. 499 300 0. 180 0. 820 400 0. 101 0. 899 500 0. 069 0. 931 600 0. 052 0. 948 700 0. 042 0. 958 800 0. 035 0. 965 900 0. 030 0. 970 1000 0. 026 0. 974 - väikenegi kohasuse erinevus annab paljude põlvkondade lõikes olulise erinevuse
Looduslik valik: valik retsessiivse alleeli vastu Kas valik suudab madalama kohasusega retsessiivse alleeli populatsioonist kaotada? • enamik kahjulikke retsessiivseid alleele leidub heterosügootsetes genotüüpides: kui q=10 -3, siis q 2= 10 -6, aga 2 pq=2*10 -3 ehk 1: 2000 • Kahjulik alleel taastekib juhusliku muteerumise käigus
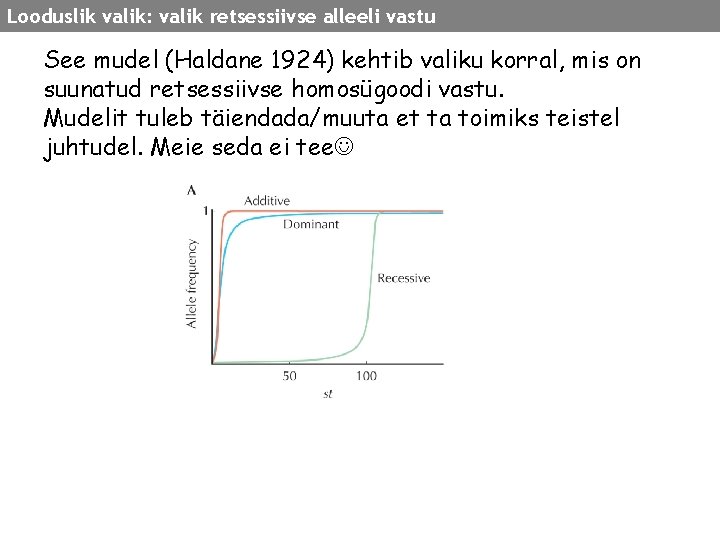
Looduslik valik: valik retsessiivse alleeli vastu See mudel (Haldane 1924) kehtib valiku korral, mis on suunatud retsessiivse homosügoodi vastu. Mudelit tuleb täiendada/muuta et ta toimiks teistel juhtudel. Meie seda ei tee
Looduslik valik: mutatsiooni ja valiku tasakaalumudel mittekohane genotüüp tekib korduvmutatsiooni teel valik ei saa geeni muteerumist, seega mutante lõplikult ära kaotada Siin ja edaspidi: mutatsioon on sellelaadses arutelus mitte konkreetne asendus DNAs vaid suvaline muutus mis viib - siin näites vähem kohase alleeli tekkeni.
LV: mutatsiooni ja valiku tasakaal -> kahjulik dominantne alleel Oletame, et meil on alleel a (sagedusega q), mis muteerub dominantseks alleeliks A (sagedus p), millel on kohasus aa genotüübiga võrreldes 1 -s A alleele tekib iga põlvkond sagedusega m(1 -p), kus m on mutatsioonikiirus A alleelide kadumise kiirus on ps Tasakaaluline p tähistatakse p* tasakaalulises populatsioonis on teke=kadu, ehk m(1 -p*)=p*s -> m-mp*=p*s -> p*=m/(s+m), . . . kui m<<s, siis p*=m/s
LV: mutatsiooni ja valiku tasakaal -> kahjulik dominantne alleel Oletades, et kahjulik dominantne alleel püsib populatsioonis tänu p*=m/s tasakaalule, saame m-i alleelisagedustest arvutada. Näide: kääbuslus 1. Kondrodüstroofne 2. Kromosomaalne 3. hormonaalne 4. mittehormonaalne 1. Kahjustunud on ainult osad kõhrkoed. Tavaliselt on neil väiksed siis kas selgroog või käed-jalad.
LV: mutatsiooni ja valiku tasakaal -> kahjulik dominantne alleel Kuidas määrata mutatsioonikiirust: p*=m/s Kondrodüstroofne kääbuslus, dominantne kahjulik alleel ca 10 sündi 94 -st tuhandest, a. A sagedus ~10. 6 x 10 -5, ehk siis p = 5. 3 x 10 -5 = m, eeldades, et s=1 m= p*s Aga täpsustame s: Ühes uurimuses vaadeldi 108 kondrodüstroofset kääbust, kes said kokku 27 last. Arvestades, et nende 457 mittekääbusest õde-venda andsid kokku 582 last, siis kääbuste suhteline kohasus on (27 x 108)/(457 x 582)=0. 196 ja s=0. 804. Seda arvesse võttes, on m= 4. 3 x 10 -5. NB! Mutatsioonikiirus sellelaadses kirjanduses tähendab kõigi selliste mutatsioonide teket, mis annavad vastava fenotüübi e. kahjuliku alleeli tekkesagedus mitte mingi konkreetse asenduse (taas)teke DNA ahelas.
LV: mutatsiooni ja valiku tasakaal -> kahjulik dominantne alleel Järjekordne kitsendus! p*=m/s Töötab vaid siis kui tekkiv kahjulik mutatsioon on dominantne. Retsessiivse ja semidominantsuse korral teised valemid. Siin jälle selleks, et illustreerida üldist mehhanismi mutatsiooni/valiku tasakaalust.
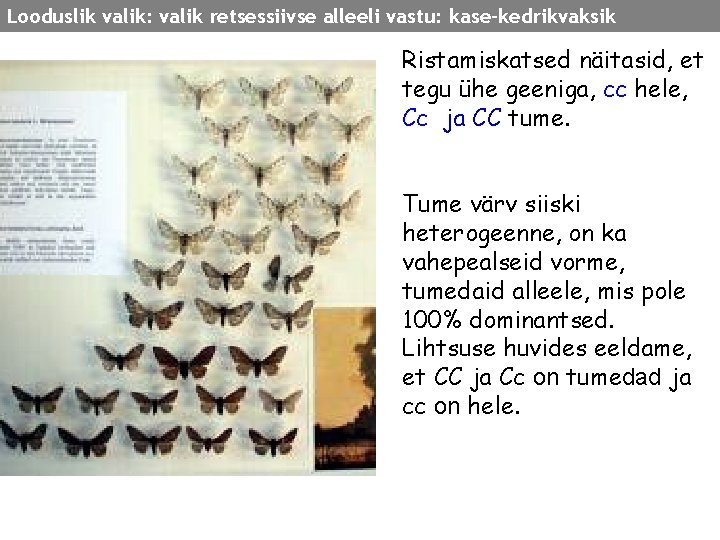
Looduslik valik: valik retsessiivse alleeli vastu: kase-kedrikvaksik Biston Betularia: klassikaline näide LVst kase-kedrikvaksik Tume ja hele vorm. Tumedat nähti esmakordselt 1848 Manchesteri lähedal, ilmselt harv enne seda, tõenäoliselt kergelt kahjulik. Saastunud aladel tõusis tumeda vormi sagedus kiiresti 90%. Kui 20 saj keskel läks õhk puhtamaks hakkas ka heleda vormi sagedus taas tõusma. Kettlewell fotografeeris ja näitas, et linnud söövad erineva edukusega tumedaid või heledaid vorme vastavalt keskkonnale (samblikuga kaetud hele puu saastamata alal ja vastupidi)
Looduslik valik: valik retsessiivse alleeli vastu: kase-kedrikvaksik Miks ikkagi on tume vorm eelistatud saastatud piirkonnas? Saastatud õhk tappis tumeda koorega puudel heledad samblikud misjärel osutusid heledad liblikad lindudele paremini märgatavaks. Tumeda vormi kahanev sagedus Manchesteri ümbruses viimasel 50 aastal – õhk taas puhtam
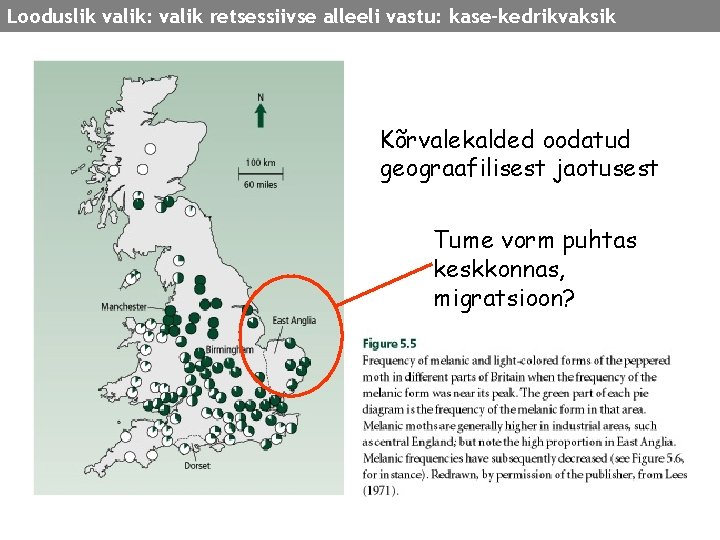
Looduslik valik: valik retsessiivse alleeli vastu: kase-kedrikvaksik Kõrvalekalded oodatud geograafilisest jaotusest Tume vorm puhtas keskkonnas, migratsioon?
Looduslik valik: valik retsessiivse alleeli vastu: kase-kedrikvaksik Ristamiskatsed näitasid, et tegu ühe geeniga, cc hele, Cc ja CC tume. Tume värv siiski heterogeenne, on ka vahepealseid vorme, tumedaid alleele, mis pole 100% dominantsed. Lihtsuse huvides eeldame, et CC ja Cc on tumedad ja cc on hele.
Looduslik valik: kohasuse mõõtmine Genotüübi kohasus sõltub ellujäämisest täiskasvanueani ja viljakusest ja sellega on määratud alleelisageduste muutumine põlvkonniti. Siit kaks võimalust kohasust mõõta (kolmas on ka ). 1) Kettlewell’i märkimise-tagasipüüdmise meetod ühe põlvkonna kestel, aga jätab välja - muna-vastse järgu mõju kohasusele - kõik erinevused viljakuses 2) alleelisageduste mõõtmine põlvkonniti, et tuvastada muutusi 3) kui alleelisagedused ei muutu, vaid ainult genotüübisagedused, siis saab kasutada kõrvalekaldeid HW tasakaalust
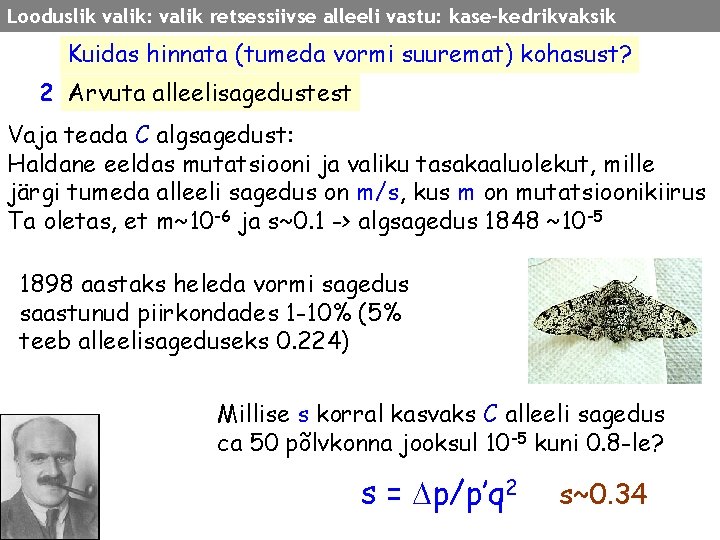
Looduslik valik: valik retsessiivse alleeli vastu: kase-kedrikvaksik Kuidas hinnata (tumeda vormi suuremat) kohasust? 2 Arvuta alleelisagedustest Vaja teada C algsagedust: Haldane eeldas mutatsiooni ja valiku tasakaaluolekut, mille järgi tumeda alleeli sagedus on m/s, kus m on mutatsioonikiirus Ta oletas, et m~10 -6 ja s~0. 1 -> algsagedus 1848 ~10 -5 1898 aastaks heleda vormi sagedus saastunud piirkondades 1 -10% (5% teeb alleelisageduseks 0. 224) Millise s korral kasvaks C alleeli sagedus ca 50 põlvkonna jooksul 10 -5 kuni 0. 8 -le? s = p/p’q 2 s~0. 34
Looduslik valik: valik retsessiivse alleeli vastu: kase-kedrikvaksik Kuidas hinnata tumeda vormi suuremat kohasust? 1 Eksperimentaalselt: lase eri vormid loodusesse ja vaata palju ellu jääb Kettlewelli märkimise-tagasipüüdmise katsed (1973) HENRY KETTLEWELL (1907 -1979)
Looduslik valik: valik retsessiivse alleeli vastu: kase-kedrikvaksik Millest erinevused? Kettlewell s=0. 57, Haldane s=0. 34 - valimiviga - varieeruvus pärilikkustüübis (erinevad alleelid erinevate kohasuskoefitsientidega, erinevad dominantsussuhted) - migratsioon - ebatäpne algsagedus (10 -5) Haldane’il -? Sellest järeldub, et oluline on: • suured valimid • teada genotüübi-fenotüübi suhteid • muude tegurite arvestamine/välistamine Selektsiooni mõõtmine pole lihtne!
Looduslik valik: ühe bialleelse lookuse mudel on lihtsustatud mudel Esitatud mudel on kõige lihtsam, arvesse tuleks võtta veel: - erinevused viljakuses, vaja mõõta järglaste arvu - mitte-juhuslik paardumine: populatsioonid jagunevad alampopulatsioonideks, liituvad, vahetavad geene, see kõik mõjutab alleelisagedusi - genotüübi kohasus muutub ajas/ruumis
Kokkuvõte 2 1. LV puudumisel ja juhusliku ristumise korral lähevad alleelisagedused 1 põlvkonna jooksul HW tasakaalu Võimalik vaadelda kõrvalekaldeid sellest tasakaalust 2. Genotüüpide kohasust saab mõõta: • alleelisageduste muutumise läbi põlvkondades • ühe põlvkonna jooksul sünnist täiskasvanuteni Sellised rehkendused on keerukad, palju faktoreid. Mudelid on lihtsustatud. 3. Mutatsiooni-valiku tasakaal: vähemkohane genotüüp taastekib teatava sagedusega
LV: Mitmekesisuse säilimine suunav stabiliseeriv lõhestav pole tasakaalustav LV LV all LV sagedus kohasus kehasuurus Keskmine väärtus populatsioonis aeg säilitab mitmekesisust
LV: Tasakaalustav valik (balancing selection) Olukorda, kus ühe geeni kaks alleeli püsivad loodusliku valiku toimel populatsioonis mutatsiooni valiku tasakaalust kõrgematel sagedustel, nimetatakse tasakaalustavaks valikuks. • Valik heterogeenses keskkonnas • Sagedusest sõltuv kohasus • Heterosügootne eelis
LV: Mitmekesisuse säilimine heterogeenses keskkonnas Krüptiline eluviis (krüpsis) taotleb märkamatuks jäämist Varieeruvas keskkonnas säilitab see geneetilist mitmekesisust kollaste sagedus Keskkonnast sõltuv varieeruvus, s. t. fenotüübi/genotüübi kohasus on tinglik triipudeta sagedus
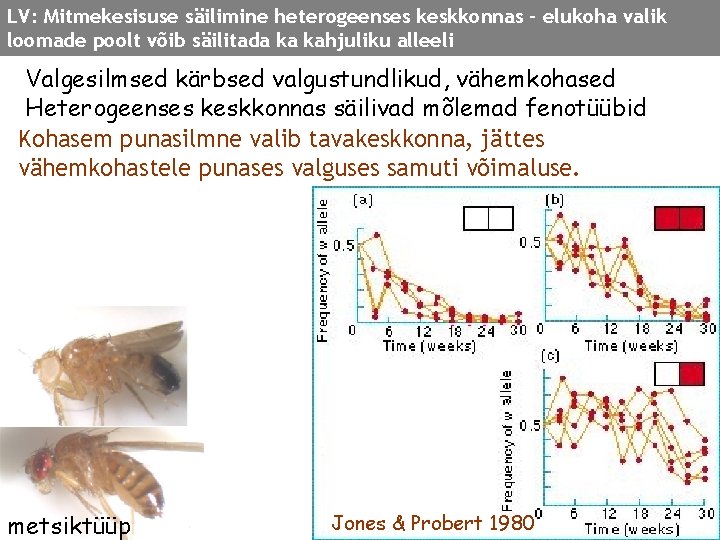
LV: Mitmekesisuse säilimine heterogeenses keskkonnas – elukoha valik loomade poolt võib säilitada ka kahjuliku alleeli Valgesilmsed kärbsed valgustundlikud, vähemkohased Heterogeenses keskkonnas säilivad mõlemad fenotüübid Kohasem punasilmne valib tavakeskkonna, jättes vähemkohastele punases valguses samuti võimaluse. metsiktüüp Jones & Probert 1980
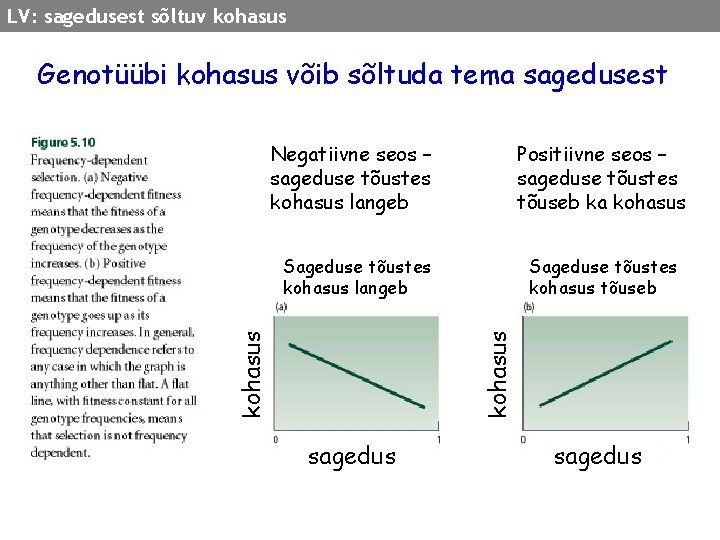
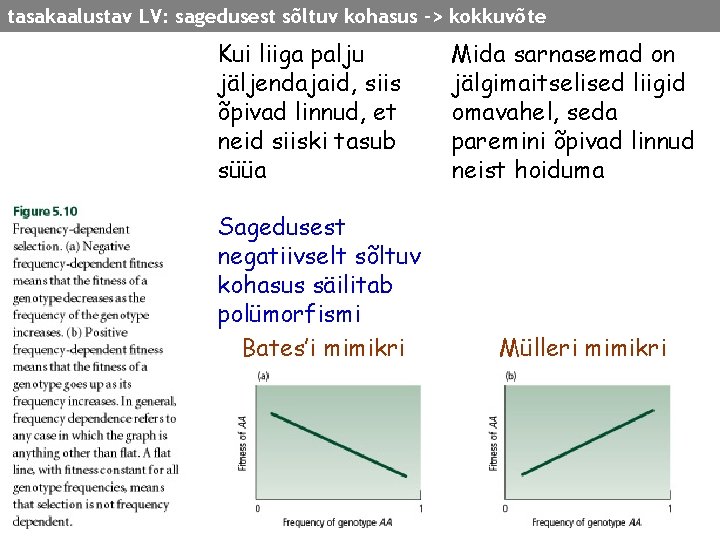
LV: sagedusest sõltuv kohasus Genotüübi kohasus võib sõltuda tema sagedusest Negatiivne seos – sageduse tõustes kohasus langeb Positiivne seos – sageduse tõustes tõuseb ka kohasus Sageduse tõustes kohasus tõuseb kohasus Sageduse tõustes kohasus langeb sagedus
LV: sagedusest sõltuv kohasus -> negatiivne seos: peremees-parasiidi koevolutsioon Mudatigu Uus Meremaal (Potamopyrgus antipodarum) parasiit termatood Microphallus nakatumine Poerua järve tigude kloone nakatati sama ja teise järve parasiitidega. 1) teise järve parasiitidega nakatumine harvem 2)sama järve haruldased kloonid nakatusid vähem sama järv teine järv Mudateo klooni kohasus langeb sageduse tõustes
LV: sagedusest sõltuv kohasus -> negatiivne seos: Bates’i mimikri Jälgimaitseliste liblikate tiivamustri jäljendamine maitsvate poolt. Selleks, et linnud õpiks teatud mustriga liblikatest hoiduma, peavad nad saama piisavalt negatiivset tagasisidet. Kui mimikri variandid on sagedased, siis linnud enam ei õpi. Liblika kohasus langeb petuskeemi kandva alleeli sageduse tõustes Henry Walter Bates (1825 -1892), putukakoguja
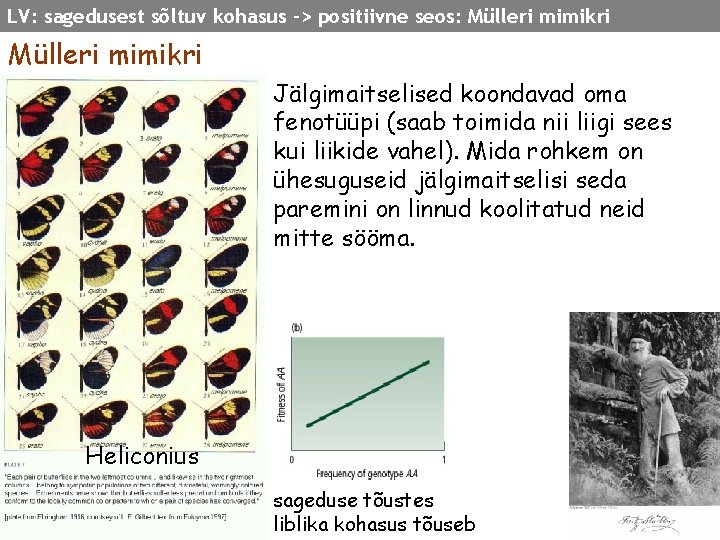
LV: sagedusest sõltuv kohasus -> positiivne seos: Mülleri mimikri Jälgimaitselised koondavad oma fenotüüpi (saab toimida nii liigi sees kui liikide vahel). Mida rohkem on ühesuguseid jälgimaitselisi seda paremini on linnud koolitatud neid mitte sööma. Heliconius sageduse tõustes liblika kohasus tõuseb
LV: sagedusest sõltuv kohasus -> positiivne seos: Mülleri mimikri http: //evolution-textbook. org/content/free/figures/17_EVOW_Art/23_EVOW_CH 17. jpg Tulemuseks on ainult ühe vormi püsimine, kuid eri piirkondades kujunevad niimoodi väga erinevad vormid. Siin kaks liiki Heliconius liblikaid, kes on mõlemad mürgised ja jäljendavad Mülleri mimikri üksteist.
tasakaalustav LV: sagedusest sõltuv kohasus -> kokkuvõte Kui liiga palju jäljendajaid, siis õpivad linnud, et neid siiski tasub süüa Sagedusest negatiivselt sõltuv kohasus säilitab polümorfismi Bates’i mimikri Mida sarnasemad on jälgimaitselised liigid omavahel, seda paremini õpivad linnud neist hoiduma Mülleri mimikri
tasakaalustav LV: heterosügootne eelis Olukorda, kus ühe geeni kaks alleeli püsivad loodusliku valiku toimel populatsioonis mutatsiooni valiku tasakaalust kõrgematel sagedustel, sest heterosügootne genotüüp on kohasem kui kumbki homosügoot, nimetatakse heterosügootseks eeliseks (üks tasakaalustava valikuku vorme). • Sirprakuline aneemia • Tsüstiline fibrioos • etc. .
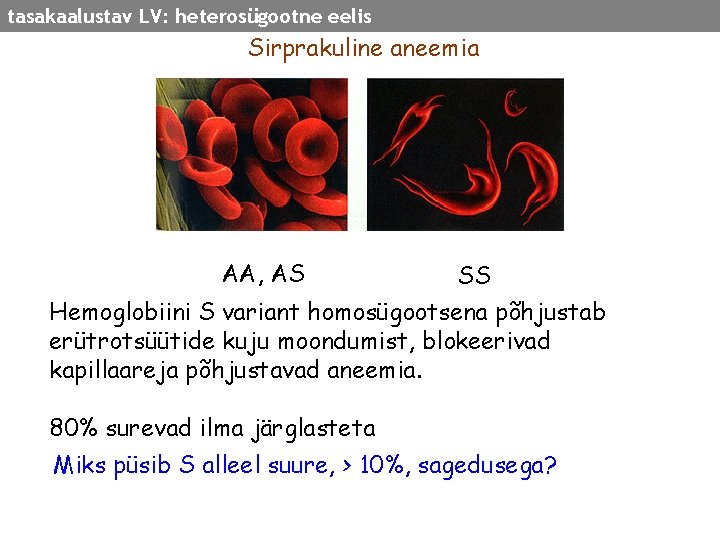
tasakaalustav LV: heterosügootne eelis Sirprakuline aneemia AA, AS SS Hemoglobiini S variant homosügootsena põhjustab erütrotsüütide kuju moondumist, blokeerivad kapillaareja põhjustavad aneemia. 80% surevad ilma järglasteta Miks püsib S alleel suure, > 10%, sagedusega?
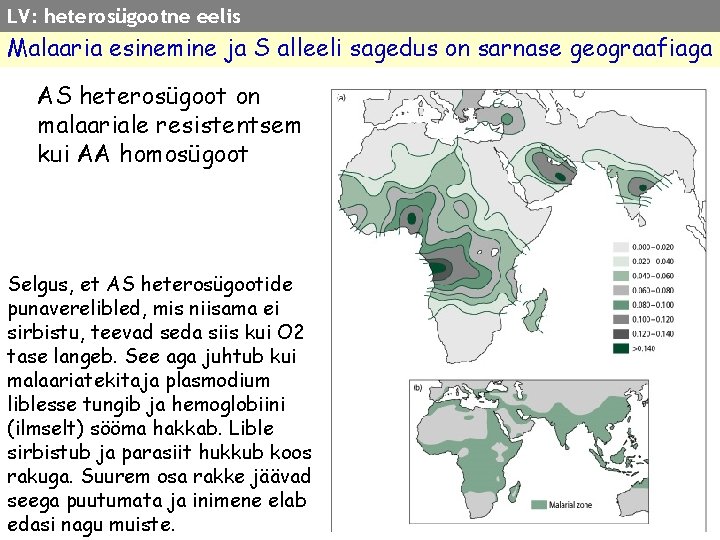
LV: heterosügootne eelis Malaaria esinemine ja S alleeli sagedus on sarnase geograafiaga AS heterosügoot on malaariale resistentsem kui AA homosügoot Selgus, et AS heterosügootide punaverelibled, mis niisama ei sirbistu, teevad seda siis kui O 2 tase langeb. See aga juhtub kui malaariatekitaja plasmodium liblesse tungib ja hemoglobiini (ilmselt) sööma hakkab. Lible sirbistub ja parasiit hukkub koos rakuga. Suurem osa rakke jäävad seega puutumata ja inimene elab edasi nagu muiste.
LV: heterosügootne eelis Genotüübi kohasus sõltub ellujäämisest täiskasvanueani ja viljakusest ja sellega on määratud alleelisageduste muutumine põlvkonniti. Siit kaks võimalust kohasust mõõta (kolmas on ka ). 1) Kettlewell’i märkimise-tagasipüüdmise meetod ühe põlvkonna kestel, aga jätab välja - muna-vastse järgu mõju kohasusele - kõik erinevused viljakuses 2) alleelisageduste mõõtmine põlvkonniti, et tuvastada muutusi 3) kui alleelisagedused ei muutu, muutuvad ainult genotüübisagedused, siis saab kohasuse hindamiseks kasutada kõrvalekaldeid HW tasakaalust
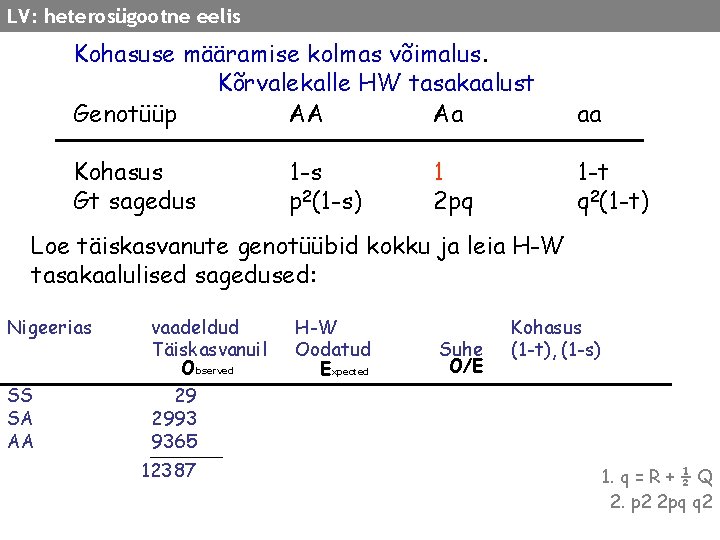
LV: heterosügootne eelis Kohasuse määramise kolmas võimalus. Kõrvalekalle HW tasakaalust Genotüüp AA Aa aa Kohasus Gt sagedus 1 -t q 2(1 -t) 1 -s p 2(1 -s) 1 2 pq Loe täiskasvanute genotüübid kokku ja leia H-W tasakaalulised sagedused: Nigeerias vaadeldud Täiskasvanuil Observed SS SA AA H-W Oodatud Expected Suhe O/E Kohasus (1 -t), (1 -s) 29 2993 9365 12387 1. q = R + ½ Q 2. p 2 2 pq q 2
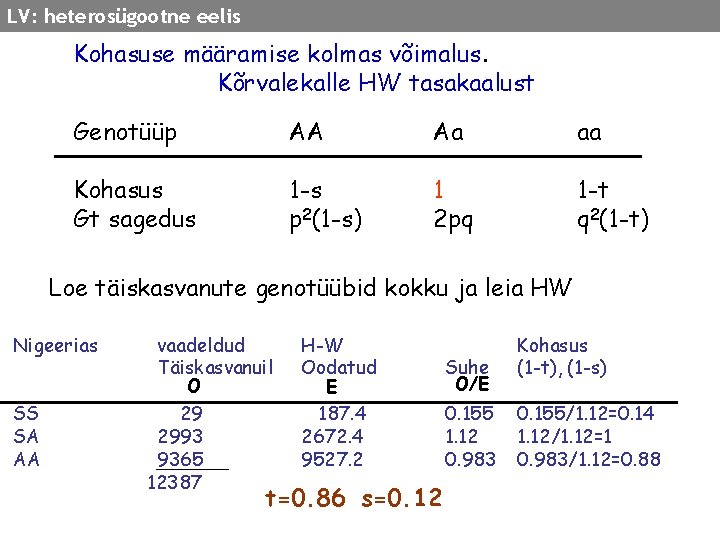
LV: heterosügootne eelis Kohasuse määramise kolmas võimalus. Kõrvalekalle HW tasakaalust Genotüüp AA Aa aa Kohasus Gt sagedus 1 -s p 2(1 -s) 1 2 pq 1 -t q 2(1 -t) Loe täiskasvanute genotüübid kokku ja leia HW Nigeerias vaadeldud Täiskasvanuil O SS SA AA 29 2993 9365 12387 H-W Oodatud Suhe Kohasus (1 -t), (1 -s) 187. 4 2672. 4 9527. 2 0. 155 1. 12 0. 983 0. 155/1. 12=0. 14 1. 12/1. 12=1 0. 983/1. 12=0. 88 E t=0. 86 s=0. 12 O/E
Heterosügootide eelis on haruldane ning ei ole peamine mitmekesisuse säilitaja populatsioonides: • haploidsetel seentel esineb populatsionides samuti palju geenivariante • heterosügootide eelise korral peab liik taluma vähemkohaste homosügootsete genotüüpide koormust. See kaob juhul, kui geen duplitseerub.
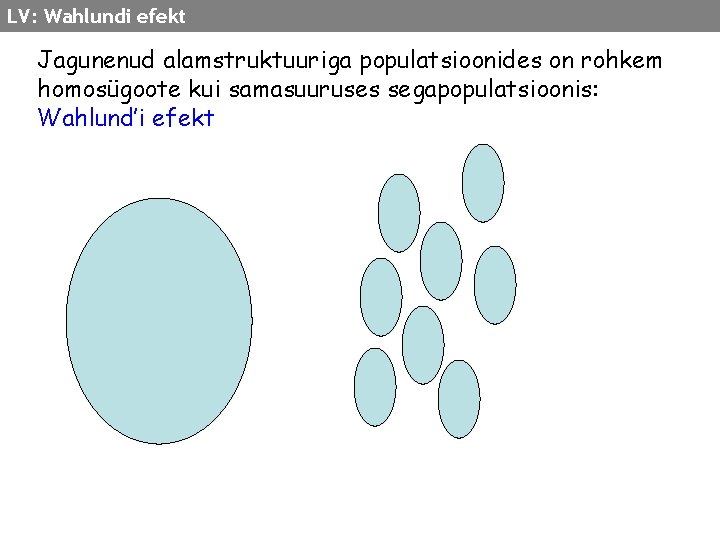
LV: Wahlundi efekt Jagunenud alamstruktuuriga populatsioonides on rohkem homosügoote kui samasuuruses segapopulatsioonis: Wahlund’i efekt
LV: Wahlundi efekt Näiteks, olgu meil kaks alampopulatsiooni, suurusega 100, kus A alleeli sagedus on vastavalt 0. 3 ja 0. 1. Heterosügootide arv kummaski (2 pq) vastavalt 0. 42 ja 0. 18, ehk kahe populatsiooni peale kokku 60 ((0. 42+0. 18)/2)x 200 Segades need kaks populatsiooni kokku on A alleeli sagedus 0. 2 ning heterosügootide sagedus 0. 32 (x 200) kokku 64.
LV: Wahlundi efekt See on üldine reegel ja teda on oluline arvesse võtta HWpõhistes rehkendustes. Kui me ei arvesta populatsiooni alamstruktuuriga näeme rohkem homosügoote kui eeldatud. Reaalsus on muidugi keerulisem – mittetäielikult isoleeritud alampopulatsioonid. Praktiline väljund: isoleeritud populatsioonide segunemisel, väheneb homosügootide arv ning sellega retsessiivsete haiguste osakaal.
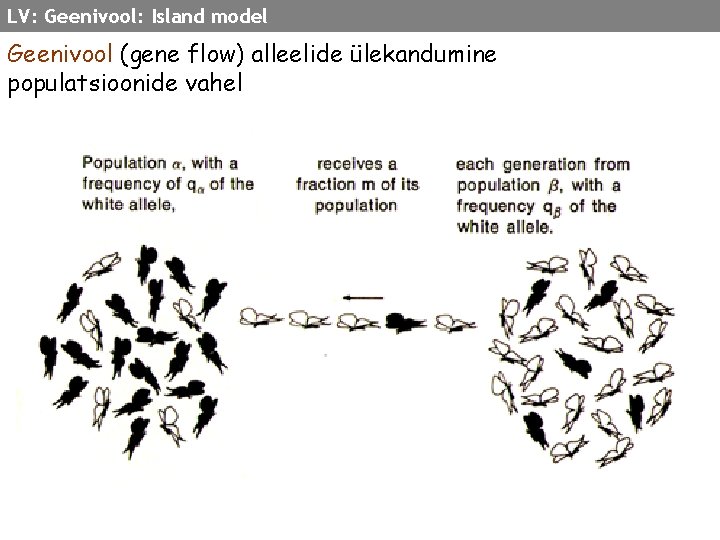
LV: Geenivool: Geenivool (gene flow) alleelide ülekandumine populatsioonide vahel Geenitriiv (random genetic drift) e. Juhuslik geneetiline triiv Alleelisageduste juhuslik muutumine põlvkondade vahel
LV: Geenivool: Island model Geenivool (gene flow) alleelide ülekandumine populatsioonide vahel
LV: Geenivool: Island model Geenivool (gene flow) alleelide ülekandumine populatsioonide vahel Doonorpopulatsioonis qm=0. 4 ja kahes aktseptorpopulatsioonides q vastavalt 0. 9 ja 0. 1. Migratsioonikiirus m=0. 1.
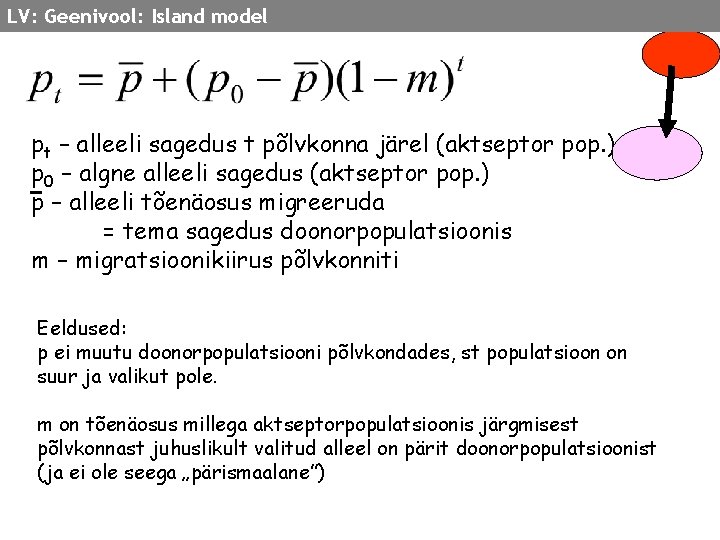
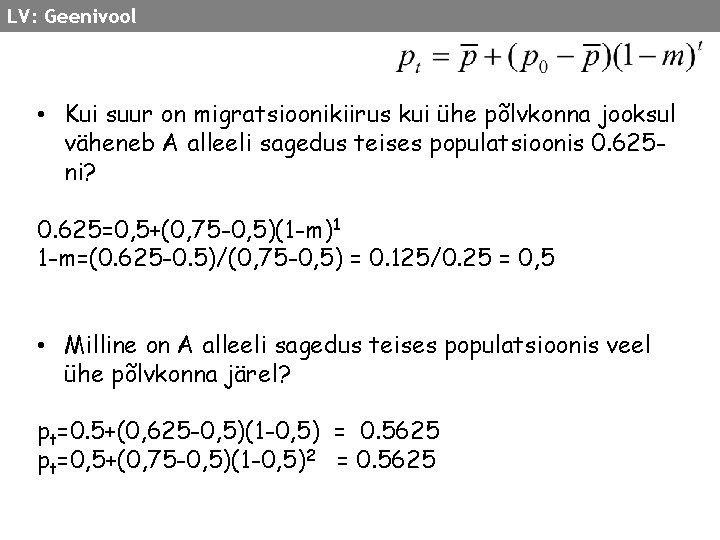
LV: Geenivool: Island model pt – alleeli sagedus t põlvkonna järel (aktseptor pop. ) p 0 – algne alleeli sagedus (aktseptor pop. ) p – alleeli tõenäosus migreeruda = tema sagedus doonorpopulatsioonis m – migratsioonikiirus põlvkonniti Eeldused: p ei muutu doonorpopulatsiooni põlvkondades, st populatsioon on suur ja valikut pole. m on tõenäosus millega aktseptorpopulatsioonis järgmisest põlvkonnast juhuslikult valitud alleel on pärit doonorpopulatsioonist (ja ei ole seega „pärismaalane”)
LV: Geenivool Alleelisageduste koondumine geenivoolus MN vererühm inimesel MN üks kahealleelne lookus f(M) on 0. 507 valgetel ameeriklastel f(M) on 0. 484 mustanahalistel f(M) on 0. 474 Lääne-Aafrikas Kuivõrd mustanahaline elanikkond on Ameerikas olnud valgetega kokkupuutes 200 -300 aastat, seega t = 10 põlvkonda ja pt = p + (p 0 - p)(1 -m)t 0. 484 = 0. 507 + (0. 474 - 0. 507) (1 -m)10 = (0. 484 -0. 507) / (0. 474 -0. 507) (1 -m)10 = 0. 6969697 m = 0. 035 ehk 3. 5% alleelidest MN lookuses põlvkonna kohta on levinud mustanahalistele valgetelt Ainult 10 põlvkonna jooksul 1/3 alleeli sageduste erinevustest kadunud geenivoolu tõttu. Olulisem faktor kui mutatsioon, üldiselt
LV: Geenivool Antud on kaks populatsiooni (1 ja 2), kaks alleeli (A ja a). Migratsioon (geenivool) toimub ainult suunas esimesest teise. Algselt on A alleeli sagedus 0. 5 esimeses ja 0. 75 teises. • Kui suur on migratsioonikiirus kui ühe põlvkonna jooksul väheneb A alleeli sagedus teises populatsioonis 0. 625 ni? • Milline on A alleeli sagedus teises populatsioonis veel ühe põlvkonna järel?
LV: Geenivool • Kui suur on migratsioonikiirus kui ühe põlvkonna jooksul väheneb A alleeli sagedus teises populatsioonis 0. 625 ni? 0. 625=0, 5+(0, 75 -0, 5)(1 -m)1 1 -m=(0. 625 -0. 5)/(0, 75 -0, 5) = 0. 125/0. 25 = 0, 5 • Milline on A alleeli sagedus teises populatsioonis veel ühe põlvkonna järel? pt=0. 5+(0, 625 -0, 5)(1 -0, 5) = 0. 5625 pt=0, 5+(0, 75 -0, 5)(1 -0, 5)2 = 0. 5625
LV: Geenivool ühtlustab alleelisageduste erinevust populatsioonide vahel -on liiki “kooshoidev” mehhanism
Kokkuvõte 3 Geneetilist mitmekesisust populatsioonides säilitab: • heterogeenses keskkonnas sõltub kohasus asukohast • Tasakaalustav valik: , sagedusest negatiivselt sõltuv kohasus - peremees-parasiidi koevolutsioon, Batesi mimikri • heterosügootide eelis - haruldane
Optimaalse kohasuse eeldus ei pruugi kehtida
1. Geneetilised piirangud Heterosügootide eelise korral on vähem kohased homosügoodid paratamatus. sirpraksus Defekt hemoglobiini geenis muudab kandja resistentsemaks malaariale. Homosügootidel kujuneb raske haigus sirprakuline aneemia. AA, AS SS
1. Geneetilised piirangud Harivesilik. Kõigil isenditel polümorfse pikkusega 1. kromosoom. Looduses esinevad ainult heterosügoodid, kõik homosügoodid ehk 50% embrüotest hukkuvad.
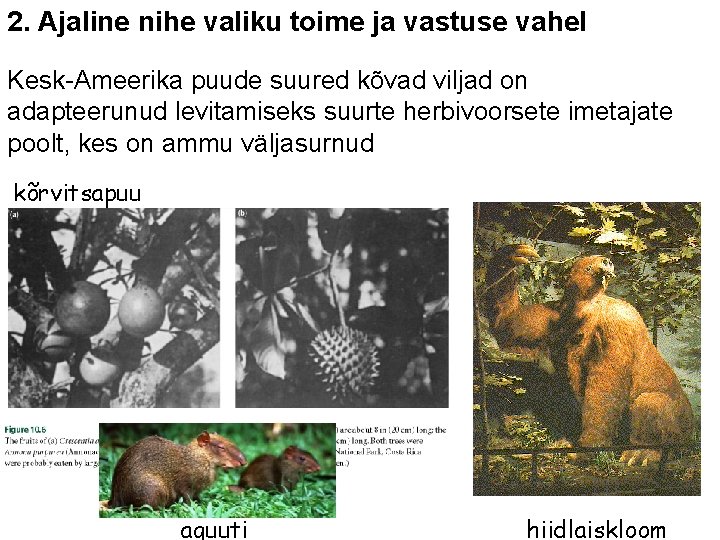
2. Ajaline nihe valiku toime ja vastuse vahel Kesk-Ameerika puude suured kõvad viljad on adapteerunud levitamiseks suurte herbivoorsete imetajate poolt, kes on ammu väljasurnud kõrvitsapuu aguuti hiidlaiskloom
3. Arengubioloogilised piirangud Väga paljud tunnused ei teki iialgi, kuigi võiksid kasulikud olla. Ilmselt ei saa need tunnused tekkida, sest nad rikuksid juba väljakujunenud arengumustrit • embrüonaalselt letaalsed • ülivähetõenäolised (kolmas käsi) • pleiotroopsed efektid ja asümmeetria – need võivad siiski olla vaid ajutised Näide: Kõigi tetrapoodide embrüotel tekib 5 varvast
Developmental asymetry pleiotroopia Austraalia farmerite nuhtlus, Lucilia cuprina Vastus erinevate putukamürkide kasutamisele – resistentsete vormide teke Resistentsel vormil tiibade ja tundlate ebasümmeetrilisus Mõne aja pärast valik taastab sümmeetrilisuse, resistentsus säilub. Geene, mis taastavad sümmeetrilisuse hoides alles resistentsuse, nimetatakse modifikaator-geenideks (modifier genes) - > kanaliseeritud valik (canalized selection)
Kas tunnus on kohastumuslik või on tegu arengulise piiranguga? • adaptiivne versus embrüoloogiline seletus • viia loodusesse puuduv vorm ja mõõta selektsiooni • mõõta tunnuse varieeruvust ja selle pärandumist • võrrelda tunnustevahelisi seoseid teistes liikides – nt allomeetria
Kas allomeetrilised tunnused viitavad arengubioloogilisele piirangule? aju suurus Allomeetria – kuidas mõne keha osa kuju/suurus/etc suhtub kogu keha mõõtmetesse. Darwin “kasvukorrelatsioon” keha suurus
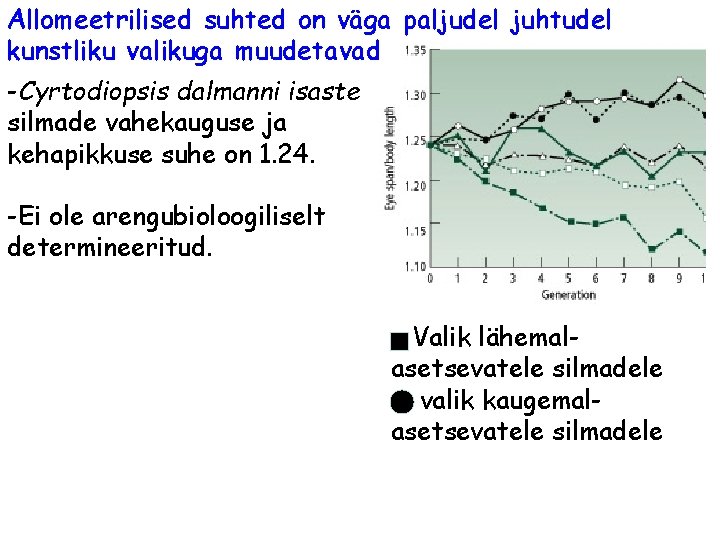
Allomeetrilised suhted on väga paljudel juhtudel kunstliku valikuga muudetavad -Cyrtodiopsis dalmanni isaste silmade vahekauguse ja kehapikkuse suhe on 1. 24. -Ei ole arengubioloogiliselt determineeritud. § Valik lähemalasetsevatele silmadele § valik kaugemalasetsevatele silmadele
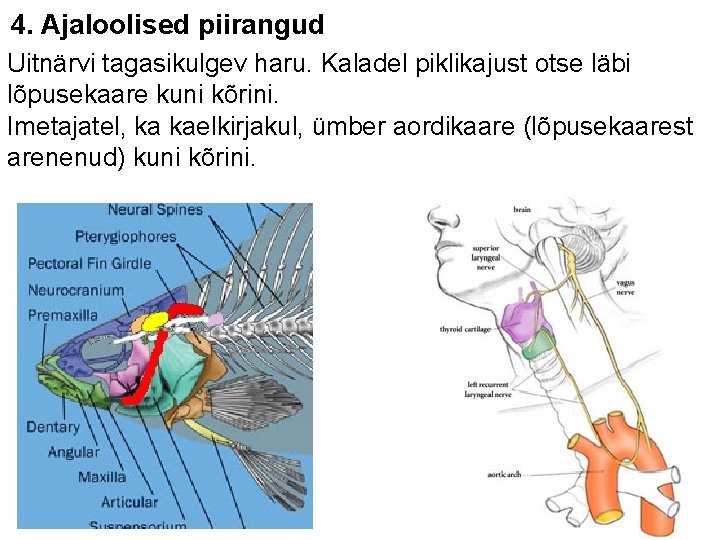
4. Ajaloolised piirangud Uitnärvi tagasikulgev haru. Kaladel piklikajust otse läbi lõpusekaare kuni kõrini. Imetajatel, ka kaelkirjakul, ümber aordikaare (lõpusekaarest arenenud) kuni kõrini.
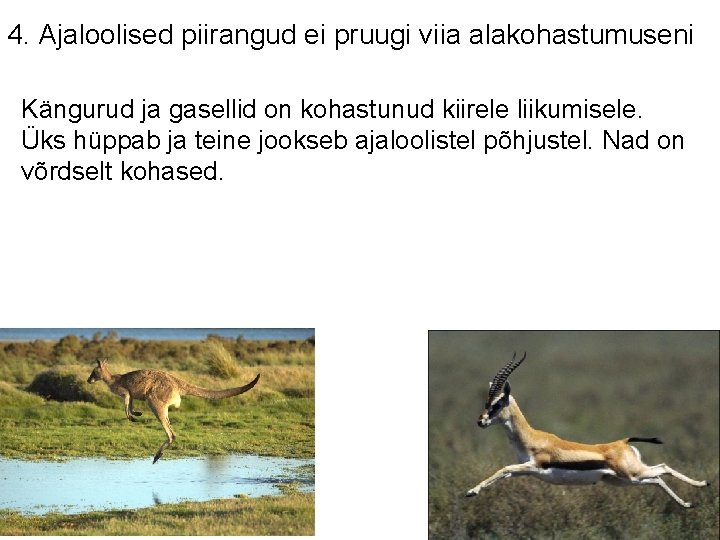
4. Ajaloolised piirangud ei pruugi viia alakohastumuseni Kängurud ja gasellid on kohastunud kiirele liikumisele. Üks hüppab ja teine jookseb ajaloolistel põhjustel. Nad on võrdselt kohased.
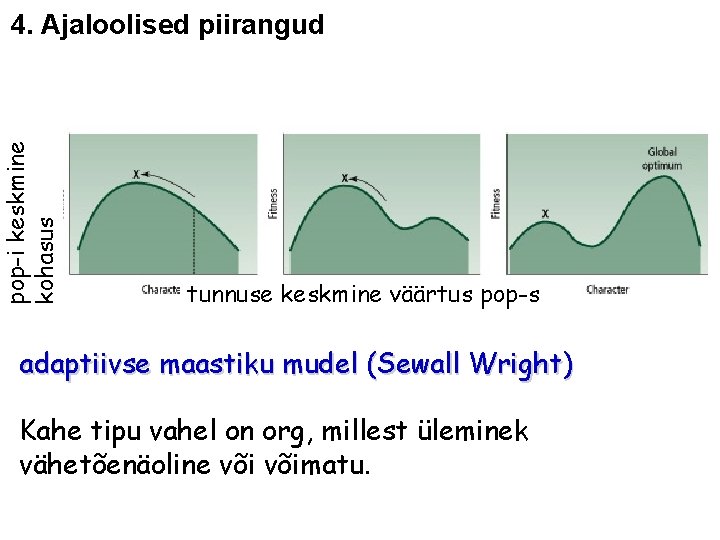
pop-i keskmine kohasus 4. Ajaloolised piirangud tunnuse keskmine väärtus pop-s adaptiivse maastiku mudel (Sewall Wright) Kahe tipu vahel on org, millest üleminek vähetõenäoline võimatu.
5. Lõivsuhted (trade-off) Esinevad, kui on vaja ressursse jagada erinevate funktsioonide, tegevuste ja oleviku ning tuleviku võimaluste vahel. Adaptatsiooni tuleb hinnata indiviidi kohasuse seisukohalt kaasates kõik funktsioonid, funktsioonid mida antud tunnus mõjutab, ja võttes arvesse indiviidi kogu eluperioodi
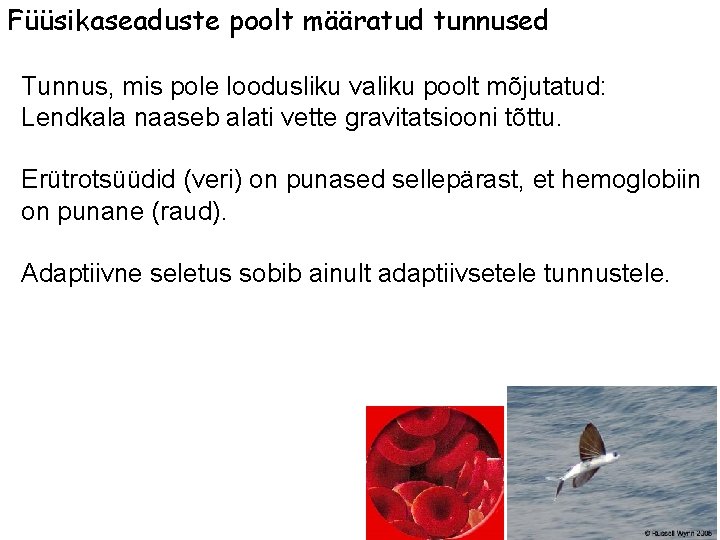
Füüsikaseaduste poolt määratud tunnused Tunnus, mis pole loodusliku valiku poolt mõjutatud: Lendkala naaseb alati vette gravitatsiooni tõttu. Erütrotsüüdid (veri) on punased sellepärast, et hemoglobiin on punane (raud). Adaptiivne seletus sobib ainult adaptiivsetele tunnustele.
Kumb on looduslikes populatsioonides olulisem, kas a) adaptatsioon või b) allub varieeruvus peamiselt juhuslikule geneetilisele triivile? diskussioon jätkub
Kokkuvõte 4 Adaptatsioonid on mittetäielikud, piirangud: 1. ajalised nihked 2. geneetilised 3. ajaloolised 4. arengubioloogilised 5. multifunktsionaalsed Mitte kõik head tunnusseisundid pole adaptatsioonid Adaptatsioonide osatähtsust looduslikes populatsioonides on raske määrata
Lisalugu Vastamata küsimusi evolutsioonibioloogias: • Kuidas toimub tasakaalustav valik, vältides harvaksjäänud alleelide kaotsiminekut? • Kui suur osa liigisisesest varieeruvusest on tasakaalustava valiku all? • Kas valikukoefitsiendid on pigem 10% või 0. 1% ? • Kui suur osa varieeruvusest järglaste arvus on põhjustatud geneetilistest erinevustest? • Mil määral on mittekodeerivad järjestused LV all ja miks? • Kui suur osa liikidevahelistest erinevustest funktsionaalsetes järjestustes on LV tulemus? • Miks liigisisese geneetilise mitmekesisuse määr varieerub vähe ja on sarnane väga erinevate liigide jaoks?