TERMINLIS OXIDCI A koenzimek hidrognatomjai leveg oxignje VZ
- Slides: 32
TERMINÁLIS OXIDÁCIÓ
Ø A koenzimek hidrogénatomjai + levegő oxigénje VÍZ ATP keletkezése közben Ø THUNBERG, WIELAND: az enzim anyagcsere folyamán a tápanyagból hidrogént von el molekuláris oxigénben égeti el Ø 1913. WARBURG : sejtlégzést a sejt „oldhatatlan szemcséjéhez” mitokondrium kapcsolta Ø SZENT-GYÖRGYI ALBERT: hidrogénelvonás és oxidáció közötti kapocs az elektronáramlás
Ø KLEILIN: azonosította a citokrómokat Ø MORTON: ubikinon felfedezése Ø ATP jelentőségének elismerése Ø LEHNINGER és GREEN (’ 40 -es évek): terminális oxidáció a mitokondriumban játszódik le Ø TERMINÁLIS OXIDÁCIÓ 2 része: 1. hidrogéntranszport (oxidoreduktáz koenzimek között) 2. elektronáramlás ( citokrómokon keresztül)
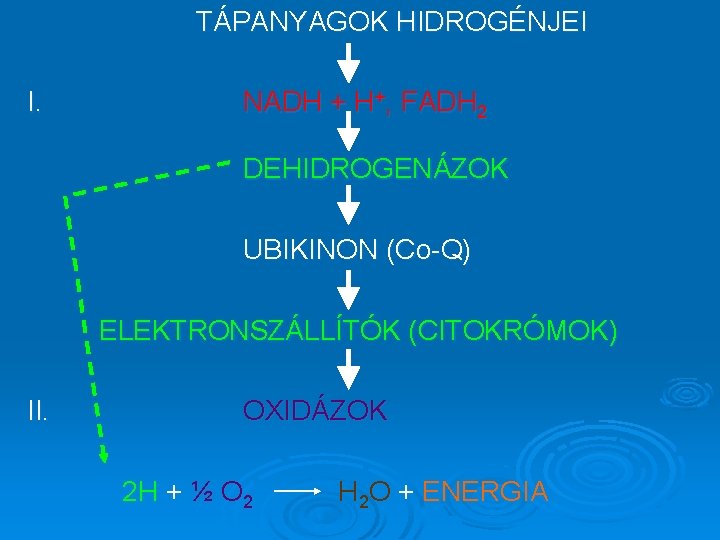
TÁPANYAGOK HIDROGÉNJEI I. NADH + H+, FADH 2 DEHIDROGENÁZOK UBIKINON (Co-Q) ELEKTRONSZÁLLÍTÓK (CITOKRÓMOK) II. OXIDÁZOK 2 H + ½ O 2 H 2 O + ENERGIA
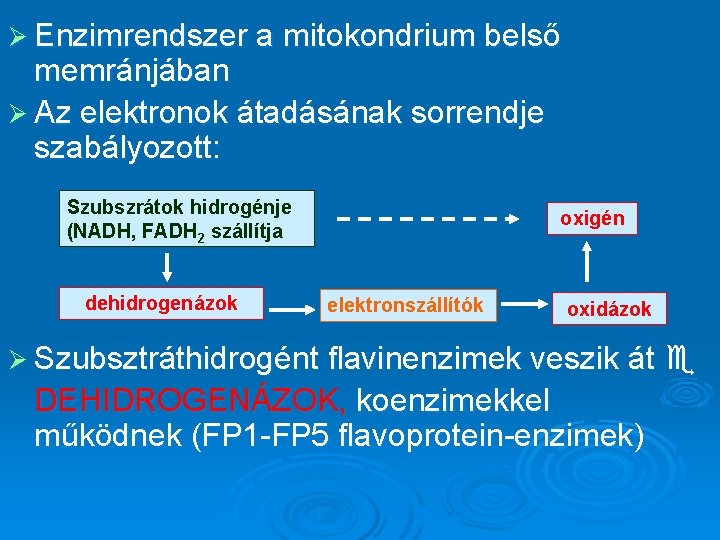
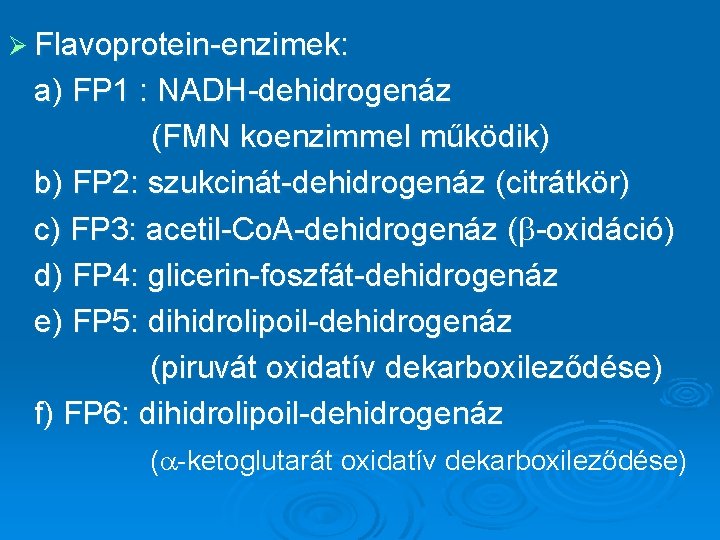
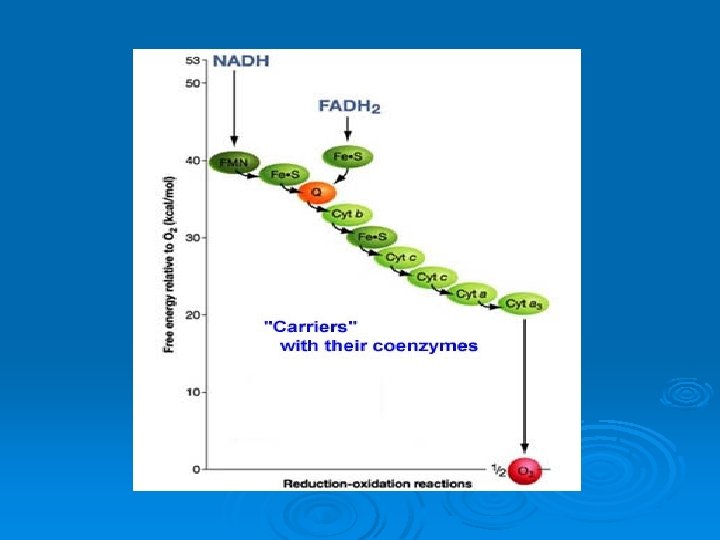
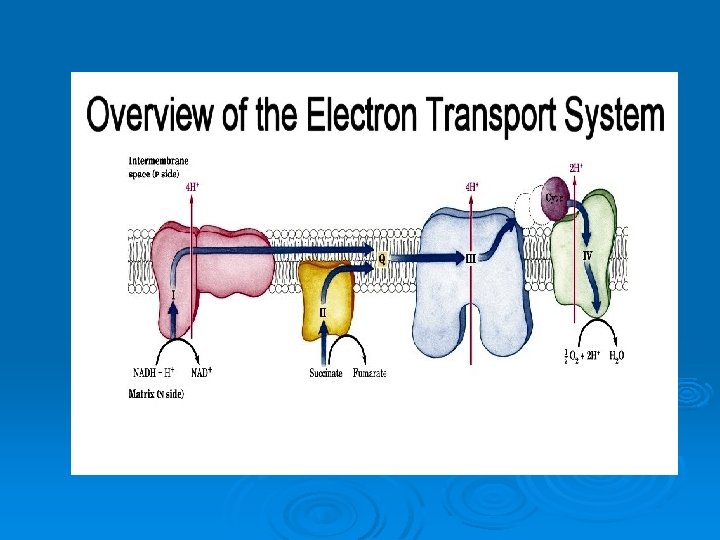
Ø Enzimrendszer a mitokondrium belső memránjában Ø Az elektronok átadásának sorrendje szabályozott: Szubszrátok hidrogénje (NADH, FADH 2 szállítja dehidrogenázok oxigén elektronszállítók oxidázok Ø Szubsztráthidrogént flavinenzimek veszik át DEHIDROGENÁZOK, koenzimekkel működnek (FP 1 -FP 5 flavoprotein-enzimek)
Ø Flavoprotein-enzimek: a) FP 1 : NADH-dehidrogenáz (FMN koenzimmel működik) b) FP 2: szukcinát-dehidrogenáz (citrátkör) c) FP 3: acetil-Co. A-dehidrogenáz ( -oxidáció) d) FP 4: glicerin-foszfát-dehidrogenáz e) FP 5: dihidrolipoil-dehidrogenáz (piruvát oxidatív dekarboxileződése) f) FP 6: dihidrolipoil-dehidrogenáz ( -ketoglutarát oxidatív dekarboxileződése)
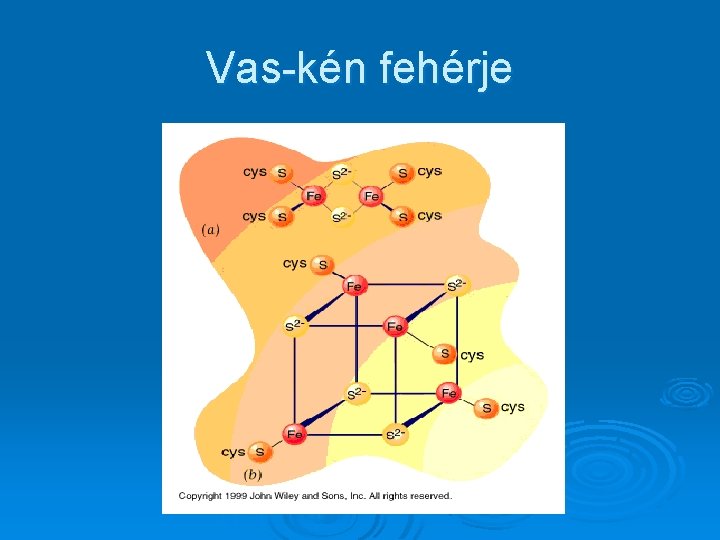
Vas-kén fehérje
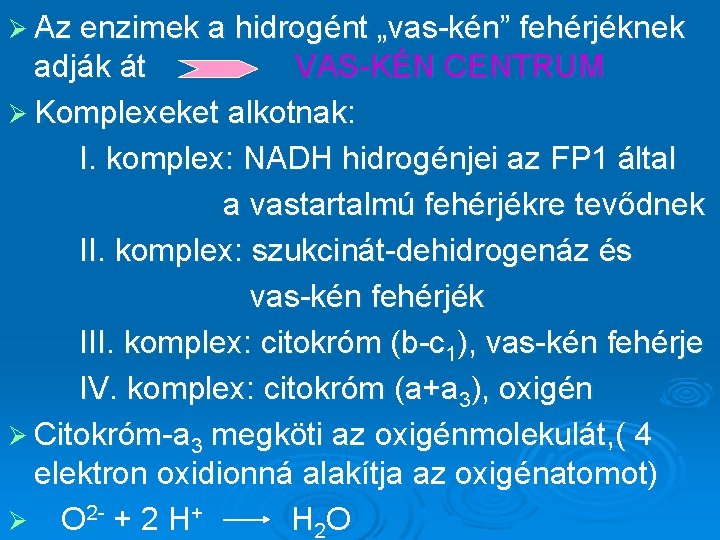
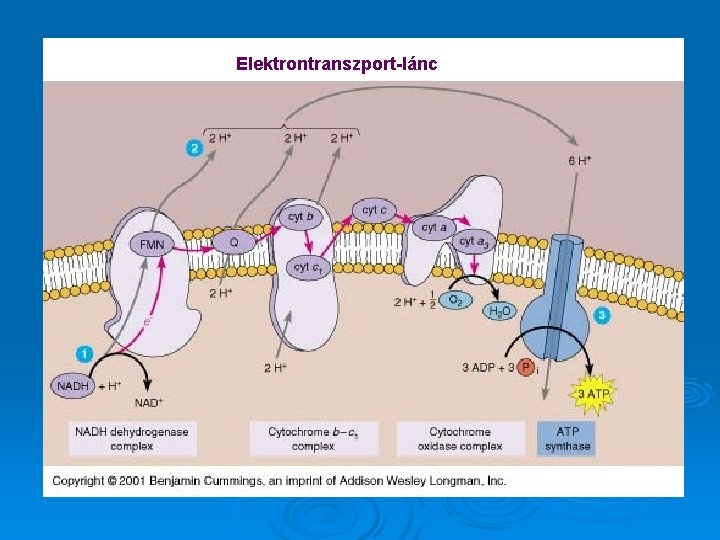
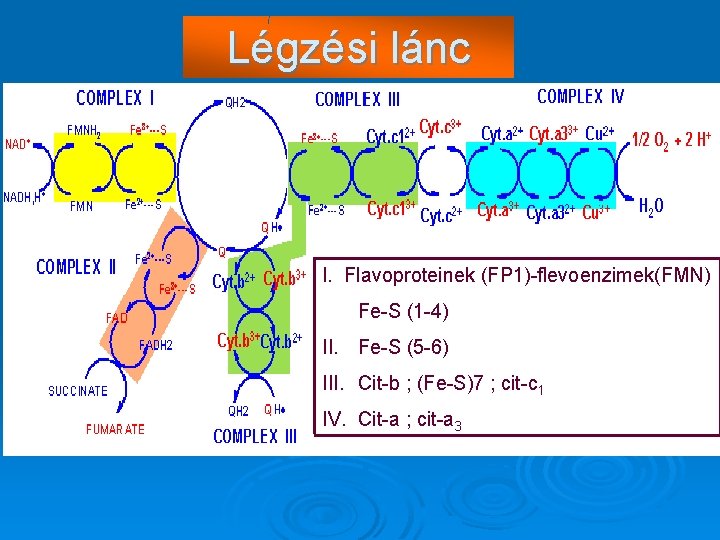
Ø Az enzimek a hidrogént „vas-kén” fehérjéknek adják át VAS-KÉN CENTRUM Ø Komplexeket alkotnak: I. komplex: NADH hidrogénjei az FP 1 által a vastartalmú fehérjékre tevődnek II. komplex: szukcinát-dehidrogenáz és vas-kén fehérjék III. komplex: citokróm (b-c 1), vas-kén fehérje IV. komplex: citokróm (a+a 3), oxigén Ø Citokróm-a 3 megköti az oxigénmolekulát, ( 4 elektron oxidionná alakítja az oxigénatomot) Ø O 2 - + 2 H+ H 2 O
Elektrontranszport-lánc
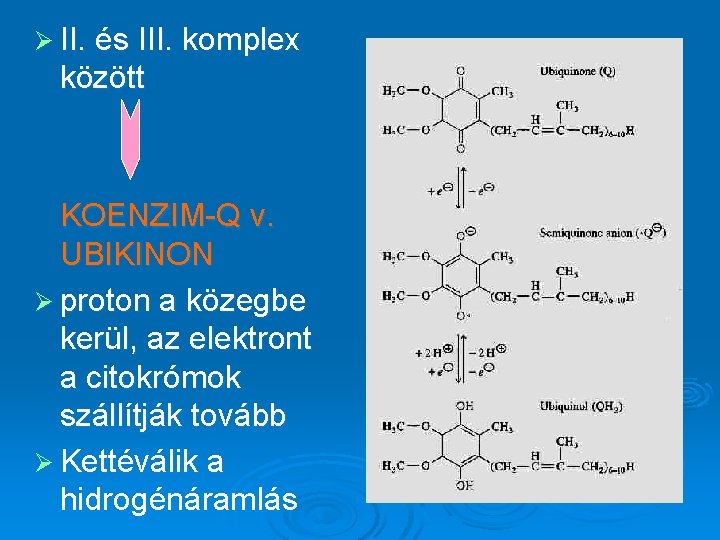
Ø II. és III. komplex között KOENZIM-Q v. UBIKINON Ø proton a közegbe kerül, az elektront a citokrómok szállítják tovább Ø Kettéválik a hidrogénáramlás
Légzési lánc I. Flavoproteinek (FP 1)-flevoenzimek(FMN) Fe-S (1 -4) II. Fe-S (5 -6) III. Cit-b ; (Fe-S)7 ; cit-c 1 IV. Cit-a ; cit-a 3
Ø Flavoproteinek beépülnek a membránba Ø Co-Q a lipid kettősréteg zsírsav oldalláncaiba kapaszkodik Ø cit-b, cit-a integráns fehérjék Ø cit-c periférikus fehérje
OXIDATÍV FOSZFORILÁCIÓ Ø Terminális oxidáció célja: szubsztrát- hidrogének elégetésével energiaszolgáltatás Ø Az energia a párhuzamosan zajló oxidatív foszforiláció során raktározódik ATP-ben ADP + Pi ATP + H 2 O Ø P/O hányadost v. P/O arányt igazolták ~ 3 P/O = beépített szervetlen foszfátcsoportok száma fogyott oxigénatom száma
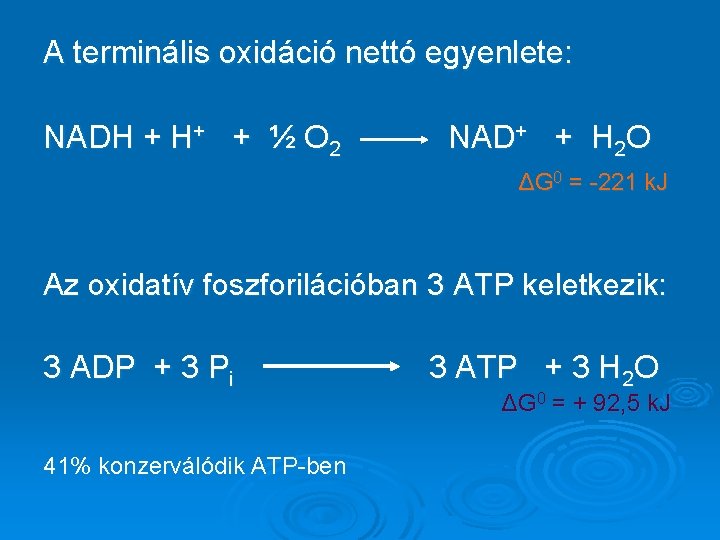
A terminális oxidáció nettó egyenlete: NADH + H+ + ½ O 2 NAD+ + H 2 O ΔG 0 = -221 k. J Az oxidatív foszforilációban 3 ATP keletkezik: 3 ADP + 3 Pi 41% konzerválódik ATP-ben 3 ATP + 3 H 2 O ΔG 0 = + 92, 5 k. J
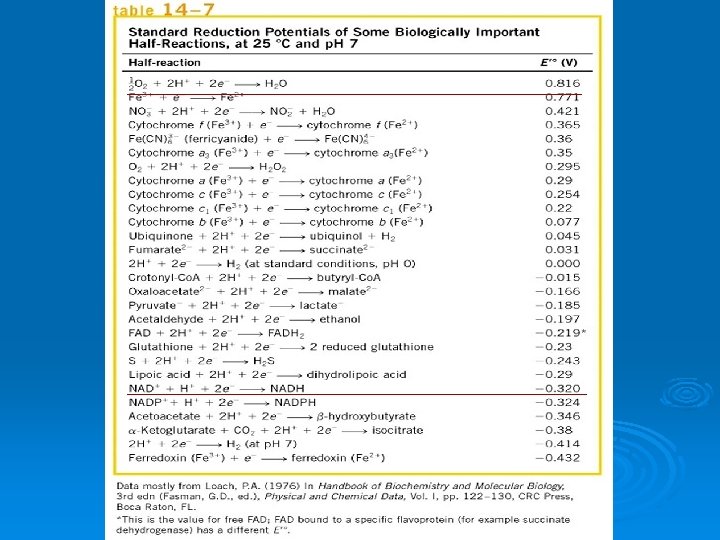
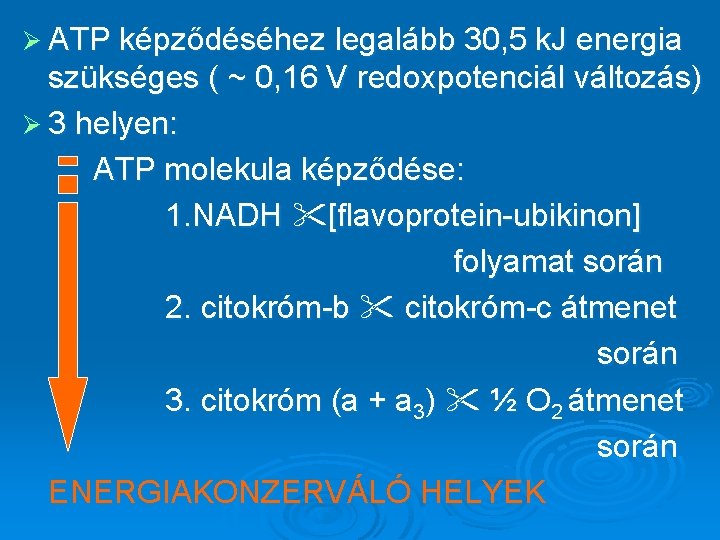
Ø ATP képződéséhez legalább 30, 5 k. J energia szükséges ( ~ 0, 16 V redoxpotenciál változás) Ø 3 helyen: ATP molekula képződése: 1. NADH [flavoprotein-ubikinon] folyamat során 2. citokróm-b citokróm-c átmenet során 3. citokróm (a + a 3) ½ O 2 átmenet során ENERGIAKONZERVÁLÓ HELYEK
Az energiakapcsolás mechanizmusa a) KONFORMÁCIÓS MODELL - nagy ADP koncentráció a mitokondrium belső mátrixát összezsugorítja térfogata fele lesz KONDENZÁLT ÁLLAPOT - a nyugalmi (ortodox) állapothoz képest nő az ADP + Pi ATP átalakulás - feltételezés: membránkonformáció változik a szabadentalpia csökkenés hatására aktiválódnak aktiválási energia kedvez a foszfátcsoport beépülésének
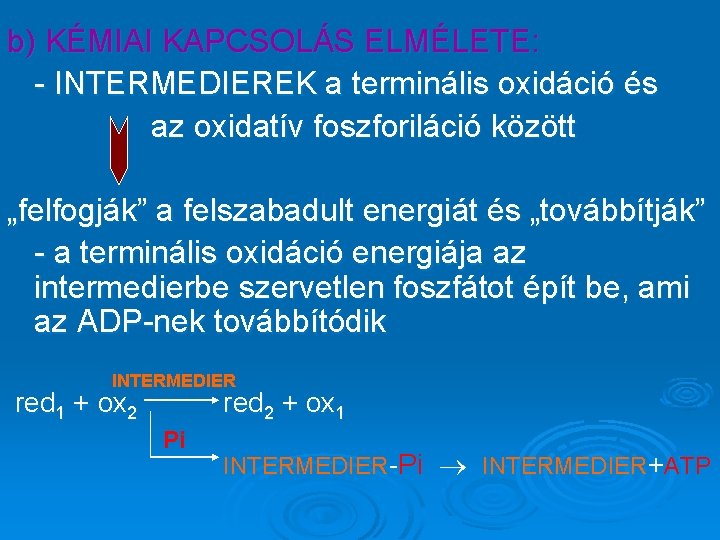
b) KÉMIAI KAPCSOLÁS ELMÉLETE: - INTERMEDIEREK a terminális oxidáció és az oxidatív foszforiláció között „felfogják” a felszabadult energiát és „továbbítják” - a terminális oxidáció energiája az intermedierbe szervetlen foszfátot épít be, ami az ADP-nek továbbítódik INTERMEDIER red 1 + ox 2 red 2 + ox 1 Pi INTERMEDIER-Pi INTERMEDIER+ATP
c) KEMIOZMOTIKUS HIPOTÉZIS - az elektrontranszport-lánc működése során szabadentalpia –csökkenés energiája hidrogéntranszportot is végez protongrádiens a mitokondrium belső membránjának két oldala között energiája szolgál az ATP képződésére - H+ felvétele a membrán belső, leadása a külső oldalon - energiakonzerváló helyen 2 H+ jut át - grádiens megszűnése: a H+ ATP-áz segítségével visszajut a mit. belsejébe ADP foszforileződés ATP képződés
Oxidatív foszforilációt befolyásoló anyagok Ø Minden vegyület, effektus befolyásol, mely megváltoztatja a membrán szerkezetét Ø ATP-szintetázról leválasztjuk a F 1 -fejecskét oxidatív foszforiláció leáll, légzési lánc folytatódik F 1 -fejecske nélkül ATP nem képződik kapcsolófaktor Ø SZÉTKAPCSOLÓSZEREK: terminális oxidációt és oxidatív foszforilációt választják el
Szétkapcsolószerek Ø Zsíroldékony, aromás gyenge savak Ø Elektrontranszportot nem befolyásolja, de foszforiláció nem történik Ø Hatása: protonokat juttat át a mitokondrium membránján nem alakul ki a megfelelő grádiens az ATP képződéshez
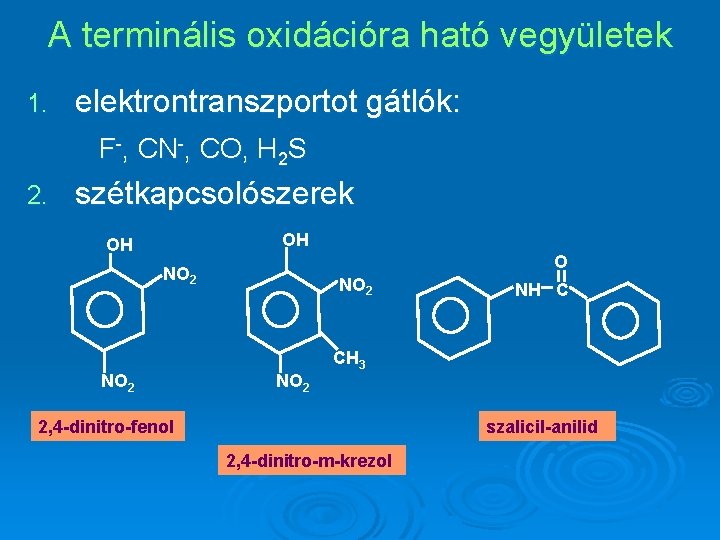
A terminális oxidációra ható vegyületek 1. elektrontranszportot gátlók: F-, CN-, CO, H 2 S 2. szétkapcsolószerek OH OH O NO 2 NH C CH 3 2, 4 -dinitro-fenol szalicil-anilid 2, 4 -dinitro-m-krezol
Ionofórok Ø Hatása analóg a szétkapcsolószerekével Ø Kationnal speciális komplexet képeznek, mely áthatol a membránon Ø A légzési lánc ezeket a komplexeket transzportálja Ø Pl: antibiotikumok ( valinomicin, gramicidin)
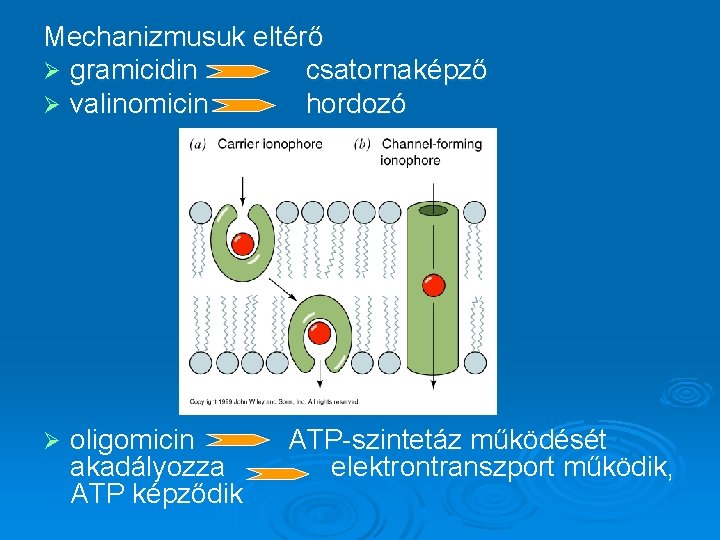
Mechanizmusuk eltérő Ø gramicidin csatornaképző Ø valinomicin hordozó Ø oligomicin akadályozza ATP képződik ATP-szintetáz működését elektrontranszport működik,
MITOKONDRIÁLIS MEMBRÁNTRANSZPORT Ø glikolízis a citoplazmában, citrátkör a mitokondriumban, terminális oxidáció és oxidatív foszforiláció a mit. belső membránjában Ø A mitokondrium külső membránja majdnem szemipermeábilis, a belső csak kisebb molekulák számára átjárható Ø TRANSZLOKÁZOK oda-vissza szállítanak (ATP-transzlokáz) Ø Egyirányú szállítás KARNITIN
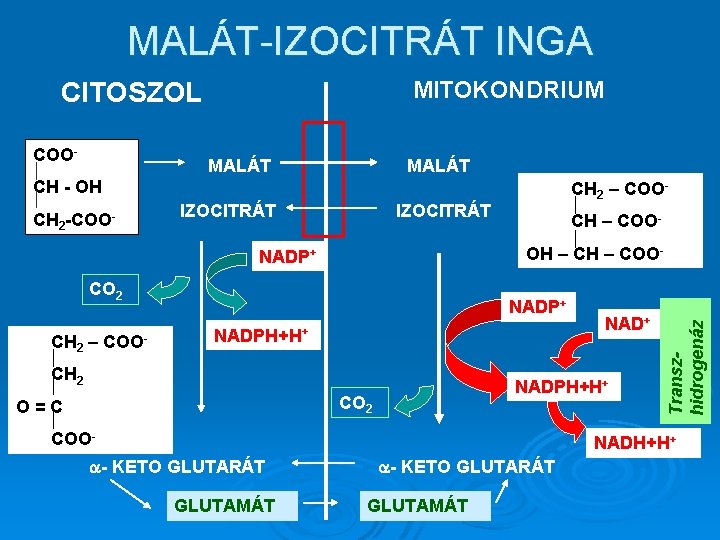
Redoxingák Ø A redukált NAD+ koenzimnek aerob oxidációhoz a mitokondriumba kell jutnia Ø Speciális rendszer segítségével történik, mivel nem diffundál REDOXINGÁK
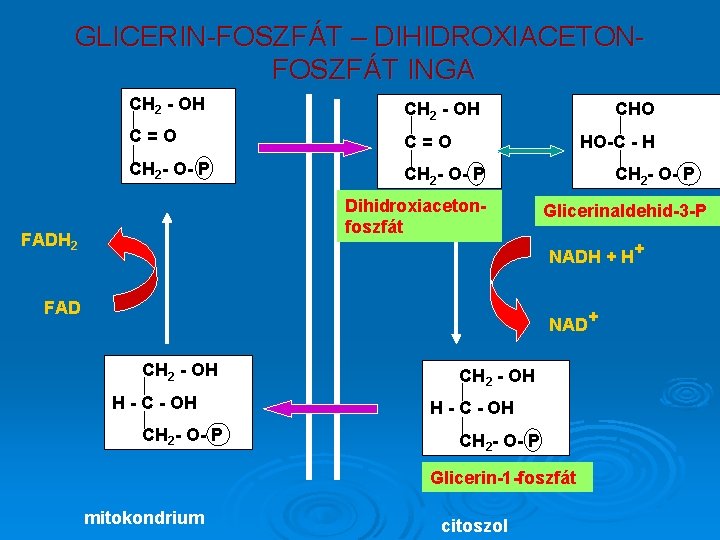
GLICERIN-FOSZFÁT – DIHIDROXIACETONFOSZFÁT INGA CH 2 - OH C=O CH 2 - O- P HO-C - H Dihidroxiacetonfoszfát FADH 2 CHO CH 2 - O- P Glicerinaldehid-3 -P NADH + H+ FAD NAD+ CH 2 - OH H - C - OH CH 2 - O- P Glicerin-1 -foszfát mitokondrium citoszol
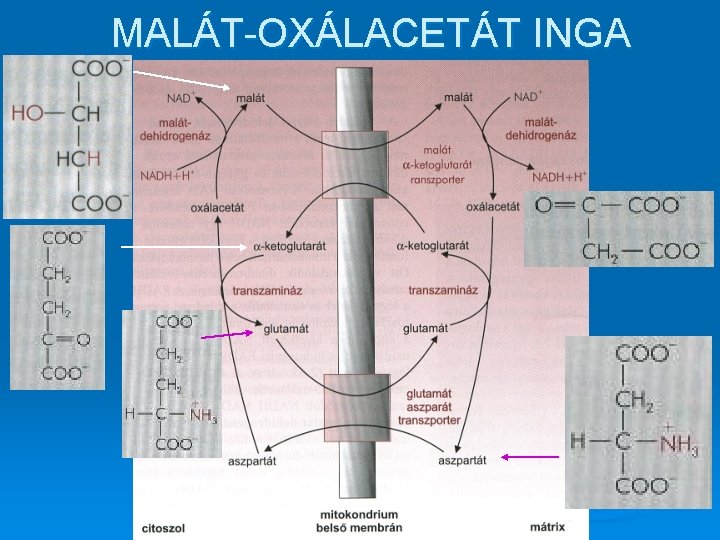
MALÁT-OXÁLACETÁT INGA
MALÁT-IZOCITRÁT INGA MITOKONDRIUM CITOSZOL MALÁT CH - OH CH 2 -COO- IZOCITRÁT CH – COOOH – COO- NADP+ CO 2 CH 2 – COO- NADP+ NADPH+H+ CH 2 NADPH+H+ CO 2 O=C NAD+ COO- Transzhidrogenáz COO- NADH+H+ - KETO GLUTARÁT GLUTAMÁT
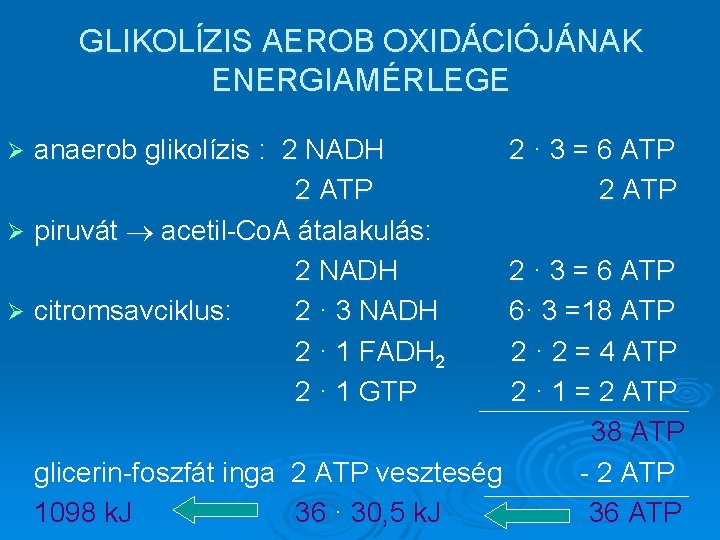
GLIKOLÍZIS AEROB OXIDÁCIÓJÁNAK ENERGIAMÉRLEGE anaerob glikolízis : 2 NADH 2 ATP Ø piruvát acetil-Co. A átalakulás: 2 NADH Ø citromsavciklus: 2 · 3 NADH 2 · 1 FADH 2 2 · 1 GTP Ø 2 · 3 = 6 ATP 6· 3 =18 ATP 2 · 2 = 4 ATP 2 · 1 = 2 ATP 38 ATP glicerin-foszfát inga 2 ATP veszteség - 2 ATP 1098 k. J 36 · 30, 5 k. J 36 ATP