
WNT YOLAI SUNUM PLANI 1 Wnt Geni Genel
- Slides: 20
WNT YOLAĞI
SUNUM PLANI 1. Wnt Geni Genel Bilgi 2. Wnt Sinyal Yolak Çeşitleri 3. Wnt Sinyal Proteini Oluşumu ve Hedef Hücreleri Etkileme Mekanizmaları 4. Wnt Sinyal Yolağı Aktivasyonu ve İnaktivasyonu 5. Wnt Sinyal Yolağının Kanserle İlişkisi
• Wnt proteinleri; ühücre büyümesini, ühücre adezyonunu, ühücre hareketini, ühücre polaritesi ve farklılaşmasını düzenler, ükök hücrelerinin özelleşmesinde ve değişimlerinde, üpek çok dokunun embriyonik gelişiminde (özellikle merkezi sinir sistemi, böbrek, meme bezleri ve dokusu ve ekstremitelerde) önemli rol oynarlar. • Günümüze kadar insanda tanımlanmış olan Wnt gen ailesine ait birbirine temel yapı olarak benzeyen 19 adet protein vardır. • Wnt faktörleri ve yolaklar, diğer yolaklarla ör. ekstremitelerin gelişiminde Hedgehog bağlı yolaklar ile etkileşime girerler.
• Wnt sinyal ileti yolunun embriyonik dönemdeki aktivasyonu T hücre ve B hücre normal gelişiminde rol oynarken, postnatal dönemdeki aktivasyonu birçok kanser türünün patogenezine (kolon, endometriyum, hepatosellüler vb) neden olur. • Temel olarak 3 çeşit Wnt sinyal yolağı tanımlanmıştır; 1. Wnt/β-katenin (Kanonik/Klasik) sinyal yolağı 2. Wnt/Ca+2 (Kanonik olmayan) sinyal yolağı 3. Wnt/Planar Hücre Polaritesi (PCP) (Kanonik olmayan) sinyal yolağı • Bu yolaklardan kanser gelişiminde rol oynayan tipi Wnt/ β-katenin yolağıdır. • Kanonik olmayan yolakların kanser gelişimindeki rolü tam olarak bilinmemektedir. Ancak bunların, Wnt/β-katenin sinyal yolağının antagonisti gibi davranabildiği veya başka bir fikre göre de Wnt’lerin aktivasyonunun bu iki yolak aracılığı ile tümör progresyonunu sağlayabileceği düşünülmektedir.
• Wnt genleri kodladıkları proteinlerin görev aldığı sinyal yolaklarına yani biyolojik aktivitelerine göre 2 gruba ayrılmıştır; 1 -β-katenin sinyal yolağını aktifleştirme özelliğine sahip Wnt genleri; Wnt 1, Wnt 2 A, Wnt 2, Wnt 3 A, Wnt 7 A, Wnt 8 B, Wnt 10 A, Wnt 10 B 2 - Diğer sinyal yolaklarını aktifleştirme özelliğine sahip Wnt genleri; Wnt 4, Wnt 5 A, Wnt 5 B, Wnt 6, Wnt 7 B ve Wnt 11
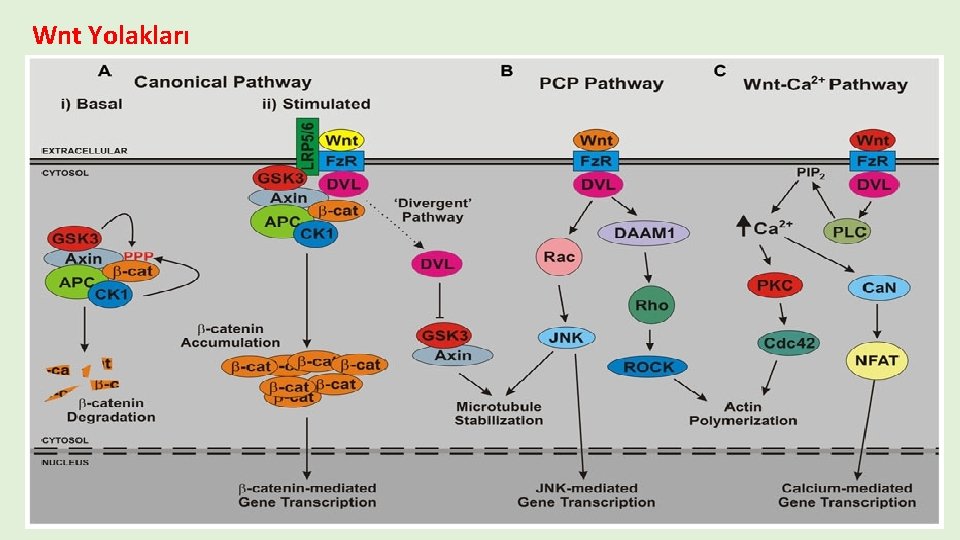
Wnt Yolakları
Wnt Sinyal Proteininin Oluşumu ve Hedef Hücreleri Etkileme Mekanizmaları • Hücreye bir Wnt sinyali geldiğinde, Wnt polipeptid zinciri oluşur ve zincirin N terminalinde bulunan hidrofobik sinyal dizileri ile endoplazmik retikulum (ER)’a yönelir. • Wnt proteininin son şeklini almasında ER lümeni içinde bulunan Bi. P (immunoglobulinheavy-chain-binding protein) proteininin rolü büyüktür. • Bu protein, "heat-shock" protein (Hsp 70) ailesinin bir üyesidir ve Wnt ile ER içinde birleşerek, Wnt’nin doğru katlanmasını etkiler ve böylelikle üç boyutlu yapı kazanmasını sağlamış olur. • İşlev yapabilecek durumda olan Wnt proteini, daha sonra ER’nin tomurcuklanarak oluşturduğu taşıyıcı veziküller (transfer veziküller) içerisinde sitozole verilir ve sitozolden Golgi kompleksine taşınır. • Buradan ayrılan Wnt’nin etki mekanizması iki yolla gerçekleşir. üBunlardan biri uzaktaki hedef hücreyi, üdiğeri de yakındaki hedef hücreyi etkileme yoludur.
Wnt’nin uzaktaki bir hedef hücreyi etkileme mekanizmasında; 1. Wnt proteini daha Golgi kompleksinde iken, Golgi kompleksinin trans yüzündeki zarında bulunan ve bir transmembran proteini olan kargo reseptörüne Wntless(Wls)/Evennes (Evi ) tutunur. 2. Tutunma sonucu “Wnt-kargo reseptör komplesini” oluşur. 3. Sitozolde bulunan ve retromer kompleksi denilen bir multiprotein, Golgi’nin trans yüz zarında bulunan Wnt-kargo reseptör kompleksine bağlanır. 4. Bu “Wnt kargo reseptör-retromer kompleks” üçlüsü Golgi zarından tomurcuklanarak ayrılır ve sitozole verilir. 5. Bu üçlü yapıyı taşıyan Wnt vezikülü, içinde lipoprotein biyomolekülleri bulunan bir endozoma taşınır. 6. Bu vezikül zarı ile endozom zarı kaynaşır ve Wnt endozom içine verilir. 7. Bu arada, retromer kompleksi sitozole verilirken, kargo reseptör endozom zarında kalır. Zarda tutulan kargo reseptörü tekrar retromer kompleksi ile ilişki kurar ve tomurcuklanarak, yeniden kullanılmak üzere Golgi kompleksine gönderilir.
8. Endozom içinde, Wnt lipoproteinlerle birleşir ve endozom zarının tomurcuklanmasıyla oluşmuş bir vezikül içinde sitozole verilir. 9. Sitozolden hücre zarına gönderilen bu vezikül, ekzositoz ile içeriğini hücre dışına bırakır. 10. Ekstraselüler sıvıya geçen “lipoprotein-Wnt” bileşiği uzaktaki bir hedef hücreyi etkileme yeteneğine sahiptir. Wnt’nin yakındaki bir hedef hücreyi etkileme mekanizmasında; • Yapılan çalışmalarda Golgi kompleksinde bulunan Wnt’nin retromer kompleksinin yokluğunda endozoma gidemediği görülmüştür. • Böyle bir durumda, Wnt direkt olarak Golgi kompleksinden sitozole, oradan da endozomla birleşmeksizin hücre zarına gönderilip, ekzositoz ile dışarı verilmektedir. Bu özellikteki bir Wnt ise ancak yakındaki bir hedef hücreyi etkileyebilmektedir. • Wnt sentezlenip, ekzositozla hücrelerarası boşluklara verilerek glikozaminoglikanlar ile ilişki kurar ve hedef hücre zarına ulaşır.
Wnt/ β-Katenin (Kanonik/Klasik) Yolağı • Kanser gelişiminde rol oynayan en temel yolaktır. • Bu yolağın anlaşılmasında merkez rolü β-katenin oynar. • β-katenin sitoplazmada bulunur, Wnt sinyal aktivasyonu ile çekirdeğe taşınır. Böylelikle hücre proliferasyonunu düzenleyen ve gelişimi kontrol eden çok sayıda genin transkripsiyonunu aktive eder. • Bu genlerin çoğu, bilinen onkogenler olup kanser tedavisinde güçlü birer hedeftirler. • Bu yolak çok sıkı bir şekilde kontrol edilir, ancak ihtiyaç duyulduğu zaman aktive olur. • Bu yolağın en temel komponentleri; ümultiprotein kompleksini (yıkım kompleksini) oluşturan Axin-APC (Adenomatous Polyposis Coli)- GSK 3β (Glikojen Sentez Kinaz 3β) ve übu yıkım kompleksinin antagonistleri olan Dvl (Dishevelled)-CKIε (Kazein kinaz. Iε)GBP/Frat ve de β-katenin’dir.
Wnt Yolağının Aktivasyonu • Wnt, hedef hücre zarında bulunan, Frizzled (Fz) ve LRP 5/6 (Low-density lipoprotein receptor-related protein) reseptörlerine bağlanır. • Fz reseptörü; üG protein ailesinin üyesidir ve bir transmembran proteinidir. üHücre dışında bulunan kısmı, 10 adet sisteince zengin rezidü içerir. üBu proteinlerin bir ucu ekstraselüler matrikse (ECM) uzanırken, diğer ucu ise zarın bir ucundan diğerine 7 kez kat ederek sitozol içine uzanır. Oluşturdukları bu kıvrımlar nedeniyle Fz proteinleri ′′ 7 kıvrımlı reseptör proteinler′′ olarak da nitelendirilebilir. üGünümüzde insanlarda tanımlanmış 10 adet Fz reseptörü bulunmaktadır. üFarklı Wnt ligandları farklı Fz reseptörlere bağlanır. • LRP 5/6 düşük yoğunluklu lipoprotein ailesinin üyesi olan bir transmembran proteinidir ve Fz’nin koreseptörü olarak görev yapmaktadır.
• Wnt proteini sistein rezidülerinin bulunduğu uç kısmı ile Fz proteininin CRD bölgesine yüksek afinite ile bağlanırken, diğer ucu ile de LRP 5/6 proteinine bağlanır. • Böylece, Wnt sinyal mekanizmasının başlatılabilmesi için gerekli olan bu üçlü yapı (Wnt-Fz-LRP 5/6) birbirleriyle bağlantı kurmuş olur.
• Wnt sinyali sonrasında hücre yüzeyine gelen Wnt sinyal proteini, hedef hücre zarında bulunan Fz reseptörü ve LRP 5/6 koreseptörüne bağlanması sonucunda, Wnt 2 önemli fosforillenme reaksiyonunu uyarır. 1. LRP 5/6’nın sitozol içinde kalan kısmının GSK 3β ve CKI (Kazein kinaz. I) enzimleri tarafından fosforillenmesi • Bu kısmın fosforillenmesi, sitozol içerisinde bulunan ve Axin-APC GSK 3β’dan oluşan yıkım kompleksini etkiler. Bu fosforillenmenin etkisi sonucu bu kompleksi bir arada tutan Axin ile ona bağlı bulunan GSK 3β bu kompleksten ayrılarak, LRP 5/6’nın sitozol içindeki fosforillenmiş kısmına bağlanır. 2. Sitozolde bulunan CKI, CKII ve Par-1 enzimleri ile Dvl/Dsh proteininin fosforillenmesidir. • Dvl/Dsh, Axin’e bağlanarak, Axin proteininde konformasyonel bir değişiklik meydana getiririr. Bu değişiklik, GSK 3β’nın Axin’den ayrılmasını sağlar. • Dvl, bir ucu ile zarda bulunan Fz’nin hücre içi kısmına bağlanırken, diğer ucu ile fosforillenmiş LRP 5/6’ya bağlı halde bulunan Axin’e bağlanır.
• Axin’den ayrılan GSK 3β, hücredeki inhibitör bir protein olan Frat-1(frequently rearranged in advanced T-cell lymphoma-1) tarafından inhibe edilir. Bu sayede GSK 3β’nın β-katenini fosforilleme etkisi ortadan kalkar ve hücre içinde ''β-katenin'' konsantrasyonu artar. Hücre içinde biriken bu β-katenin başlıca iki mekanizmayı tetikler: üβ-katenin hücre membranındaki N-kaderinin hücre içi bölümüne bağlanarak, hücreler arası bağlantıyı güçlendirici ve stabilize edici rol oynar. ühücre çekirdeği içine girerek ''Tcf/Lef‘’ transkripsiyon faktörlerine bağlanır ve Wnt sinyal yolunun hedef aldığı genlerin transkripsiyonlarına olanak sağlar. • β-katenin proteinin amino ucu GSK-3β için fosforilasyon bölgelerini içerirken, karboksi ucu hedef genlerin aktivasyonu için gerekli transaktivasyon bölgesini içermektedir.
• Axin proteini; üyıkım kompleksinin merkezinde yer alan, yapının iskeletini oluşturan ve Wnt sinyal yolağında negatif regülatör olarak görev yapan bir proteindir. üGSK 3 -β–CKI-APC-PP 2 A-β-katenin ile multiprotein kompleksini (yıkım kompleksi) oluşturur. Bu kompleksin oluşumu sayesinde Axin, β-kateninin fosforilasyonunu koordine eder. • CKI enziminin Wnt/β-katenin sinyal yolağındaki en önemli görevi, yıkım kompleksinin yapısına katılarak, hem bu komplekste bulunan Axin ve APC’yi hem de β-katenini fosforillemesidir. • Bu fosforillenmeler, GSK 3β enzimi tarafından gerçekleştirilecek fosforillenme reaksiyonları için bir hazırlık niteliğindedir, çünkü GSK 3β enziminin kinaz aktivitesi gösterebilmesi için CKIα enzimine ihtiyacı vardır. • Bu iki kinaz, β-katenin miktarının ayarlanmasında büyük öneme sahiptir. • APC (adenomatöz polipozis koli) proteini, β-katenini parçalayarak sitoplazmadaki miktarını azaltır ve nükleusa geçişini engelleyerek büyüme sinyalini durdurur. Axin gibi β-katenin’in GSK 3 -β ile fosforilasyonunu hızlandırır.
Wnt Sinyali Yokluğunda; • Wnt, hücre zarındaki Fz ve LRP 5/6 reseptörlerine bağlanamaz. • • Dolayısıyla sinyal mekanizmasının aktivasyonunda rol oynayan 2 fosforillenme işlemi gerçekleşemez. Fosforillenme reaksiyonları gerçekleşmediği için, yıkım kompleksi aktif durumdadır. Bu yıkım kompleksi üyeleri olan GSK-3β ve beraberindeki Axin ve tümör baskılayıcı faktör olan APC, β-kateninin fosforilasyonunu Nucunda yer alan serin ve treonin amino asitlerinden (kodon 33, 37, 41) ; kazein kinaz-1 (CKI) ise Ser 45’den yapmaktadır. Bu fosfoaminoasitler β-katenine 2. bir protein kompleksi (ubikutin ligaz kompleksi) için bağlanma bölgesi oluştururlar ve ubikutinasyonu başlatırlar. Ubikutin proteozom yolu 3 enzim içerir: ubikutin aktivasyon enzimi (E 1), ubikutin-konjuge eden enzim (E 2) ve ubikutin ligaz (E 3) Böylelikle β-TRCP (β-transducin repeat containing protein), proteozomal degredasyon için proteini hedefler ve β-kateninin degradasyonu sağlanır. ‘'β-katenin'' in degredasyonu da, hücre çekirdeğinde ''Tcf/Lef'' grubu transkripsiyon faktörlerinin DNA’ya bağlanarak Wnt sinyal yolunun hedefi olan genlerin transkripsiyonlarını baskılamalarına imkan sağlar. GSK-3β sadece β-katenini fosforlamakla kalmaz, ayrıca Axin ve APC’yi de fosforile eder. Böylelikle Axin ve APC’nin, β-katenin ile olan ilişkisinin artmasına ve β-kateninin fosforilasyonunun/degradasyonunun hızlanmasına öncülük eder.
Wnt Yolağının İnhibe Edilmesi • Wnt proteinlerinin, Fz/LRP reseptör kompleksine bağlanmasını önleyerek, sinyal yolağının kontrollü şekilde inhibe edilmesi ekstraselüler matrikste (ECM) bulunan çeşitli inhibitör moleküller tarafından gerçekleştirilir. • Bu inhibitörler 2 fonksiyonel gruba ayrılmaktadır: 1. s. FRP Ailesi (Secreted Frizzled-Related Proteins) ü s. FRP 1, s. FRP 2, s. FRP 3, s. FRP 4, s. FRP 5, WIF-1 (Wnt inhibitory factor-1) ve Cerberus ü Bu proteinler ya direkt olarak Wnt ligandlarına bağlanarak, ya da Wnt reseptörlerine bağlanarak Wnt’nin reseptörleri ile ilişki kurmasına engel olurlar. 2. Dickkopf (Dkk) ailesi ü Dkk 1, Dkk 2, Dkk 3 ve Dkk 4 olmak üzere 4 adet protein içerir. ü Bu proteinler direkt Wnt’ye bağlanmazlar, Wnt’nin ilişki kurduğu koreseptör olan LRP 5/6’ya bağlanarak LRP-Fz-Wnt kompleksi oluşumunu engelleyerek, Wnt sinyalini inhibe ederler. ü Her iki durumda da sinyal yolağı inhibe edilmiş olur.
Wnt Yolağının Kanserle İlişkisi • WNT/ β-katenin (standart WNT) yolağının postnatal dönemde aktivasyonu, kolon kanserinin gelişimi için elzemdir. • Diğer kanserlerde özellikle hepatoselüler karsinomlarda da önemlidir. • APC veya Axin gibi negatif regülatörlerin fonksiyon kaybı veya β-katenini aktive eden onkogenik mutasyonlar kanser oluşumuna neden olur. Bu nedenle APC ve CTNNB 1 (β-katenini kodlayan gen) tümör süpresör ve onkogen olarak davranırlar. • APC geninde mutasyon var olduğu zaman β-kateninin sitoplazmada birikimine, sonrasında çekirdeğe geçerek hedef genlerin transkripsiyonuna neden olur ve bu durum kolorektal tümörlerin %80’ninde görülmektedir. • Çeşitli kanser türlerinde, onkogenik aktivasyon için en temel bölgelerden biri olan β-katenin’de yer alan yıkım kutusu sıklıkla mutasyona (CTNNB 1 mutasyonu) uğramaktadır. • Bu bölgede yer alan 4 Ser/Tyr rezidüsünden birinde meydana gelecek bir mutasyon daha sonraki fosforilasyonları da engeller. Mutant protein fosforilasyona dirençlidir ve ubikutin aracılı yıkımdan kaçar. Böylelikle β-katenin stabil bir konuma gelir, sitoplazmik ve nükleer seviyeleri artar. • Wnt, etkisini beta katenin üzerinden gösterebilmektedir. Ancak son zamanlarda yapılan kanser araştırmalarında beta katenin düzeylerini Wnt sinyalinden bağımsız olarak artıran birçok faktör bulunduğu belirtilmiştir.
üs. FRP ailesi üyelerinin gen ifade düzeylerindeki değişimler göğüs, servikal, gastrik, kolon ve deri gibi çok çeşitli kanser türlerinde gözlenmektedir. üs. FRP’nin epigenetik olarak inaktivasyonun kolorektal kanserlerde ortaya çıktığı bulunmuştur. üWIF-1 ise çeşitli kanser türlerinde özellikle akciğer kanserinde promotor bölgesindeki Cp. G adacıklarının hipermetile olmasıyla ifade düzeylerinin azaldığı gösterilmiştir.
Kaynaklar 1. AKUT MYELOİD LÖSEMİDE WNT SİNYAL YOLAĞINDAKİ GENLERİN DNA MİKROARRAY ANALİZİ İLE TANIMLANMASI ANKARA ÜNİVERSİTESİ BİYOTEKNOLOJİ ENSTİTÜSÜ DOKTORA TEZİ Buket ALTINOK 2011 2. Kanser Yolakları Doç. Dr. Ayfer PAZARBAŞI*Prof. Dr. Mülkiye KASAP*Prof. Dr. Halil KASAP* ARŞİV 2011; 20: 187 *Çukurova Üniversitesi Tıp Fakültesi, Tıbbi Biyoloji ve Genetik Anabilim Dalı, ADANA