
Unidad I Fundamentos neurales de la percepcin visual
- Slides: 26
Unidad I Fundamentos neurales de la percepción visual La retina y el LGN
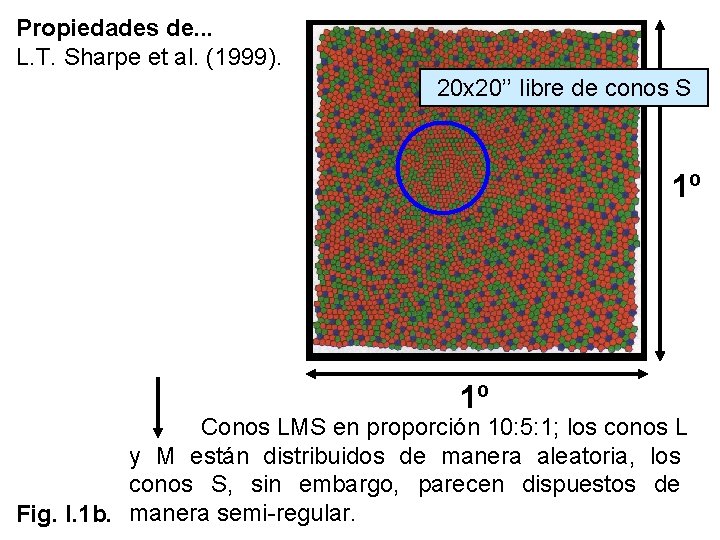
Propiedades de. . . L. T. Sharpe et al. (1999). 20 x 20’’ libre de conos S 1º 1º Conos LMS en proporción 10: 5: 1; los conos L y M están distribuidos de manera aleatoria, los conos S, sin embargo, parecen dispuestos de Fig. I. 1 b. manera semi-regular.
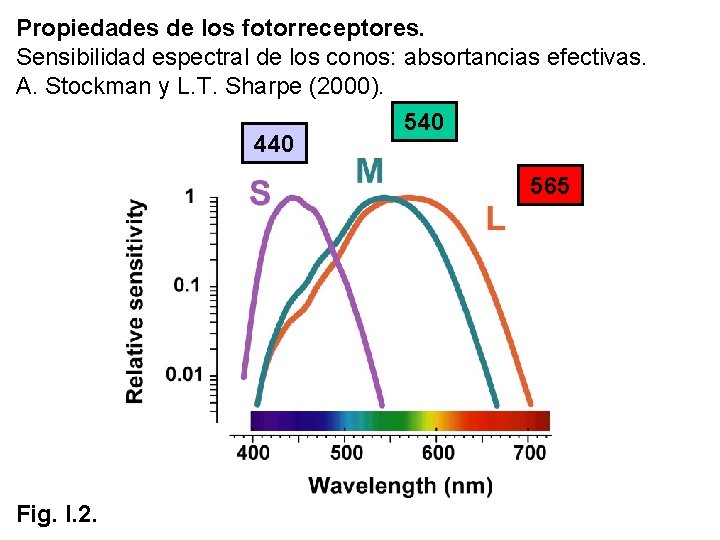
Propiedades de los fotorreceptores. Sensibilidad espectral de los conos: absortancias efectivas. A. Stockman y L. T. Sharpe (2000). 440 565 Fig. I. 2.
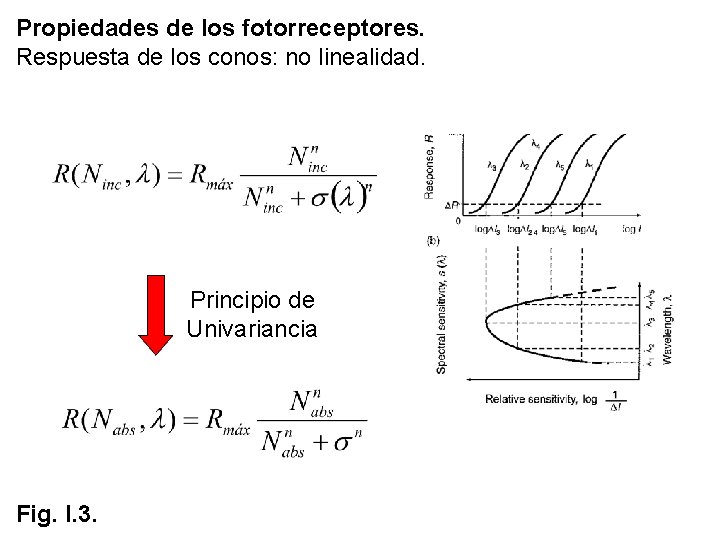
Propiedades de los fotorreceptores. Respuesta de los conos: no linealidad. Principio de Univariancia Fig. I. 3.
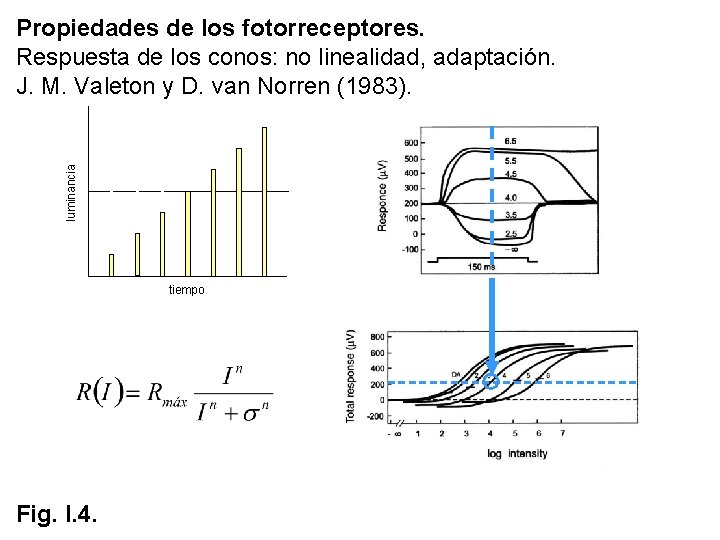
luminancia Propiedades de los fotorreceptores. Respuesta de los conos: no linealidad, adaptación. J. M. Valeton y D. van Norren (1983). tiempo Fig. I. 4.
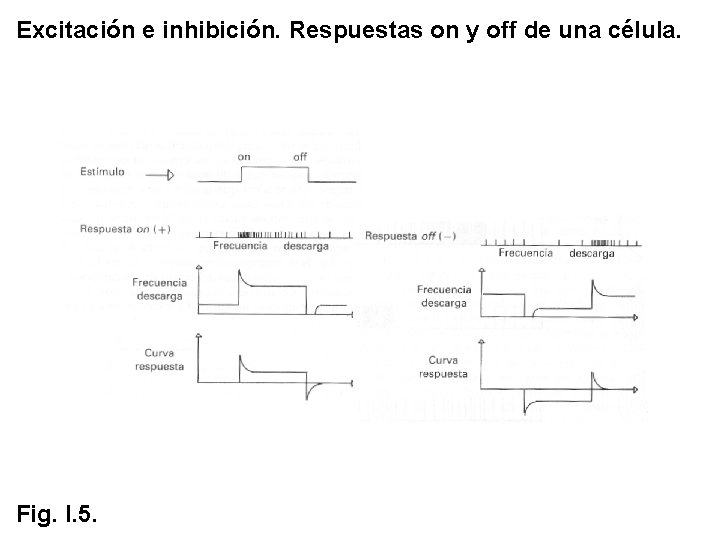
Excitación e inhibición. Respuestas on y off de una célula. Fig. I. 5.
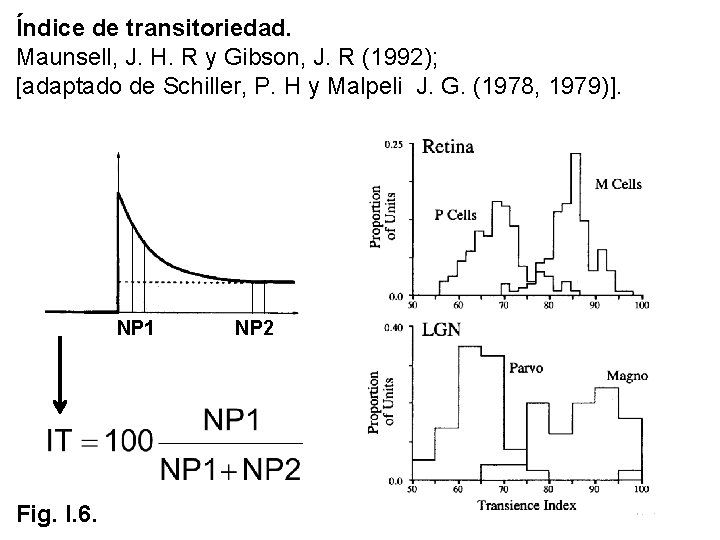
Índice de transitoriedad. Maunsell, J. H. R y Gibson, J. R (1992); [adaptado de Schiller, P. H y Malpeli J. G. (1978, 1979)]. NP 1 Fig. I. 6. NP 2
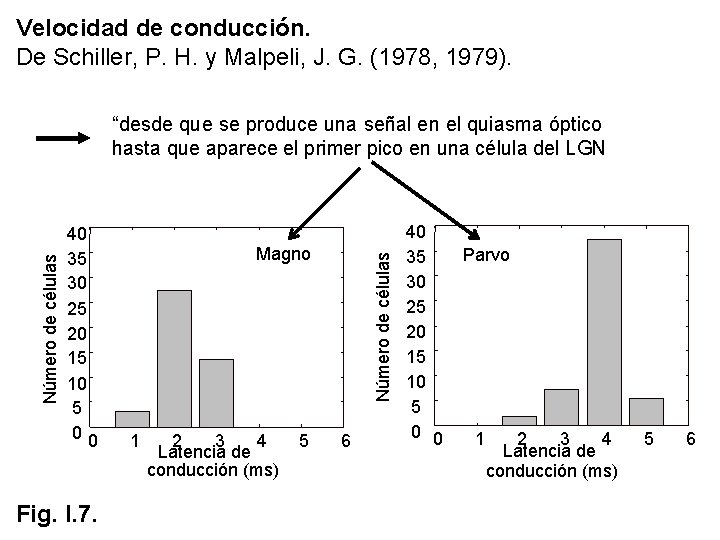
Velocidad de conducción. De Schiller, P. H. y Malpeli, J. G. (1978, 1979). 40 35 30 25 20 15 10 5 00 Fig. I. 7. Magno 1 2 3 4 Latencia de conducción (ms) 5 Número de células “desde que se produce una señal en el quiasma óptico hasta que aparece el primer pico en una célula del LGN 6 40 35 30 25 20 15 10 5 0 0 Parvo 1 2 3 4 Latencia de conducción (ms) 5 6
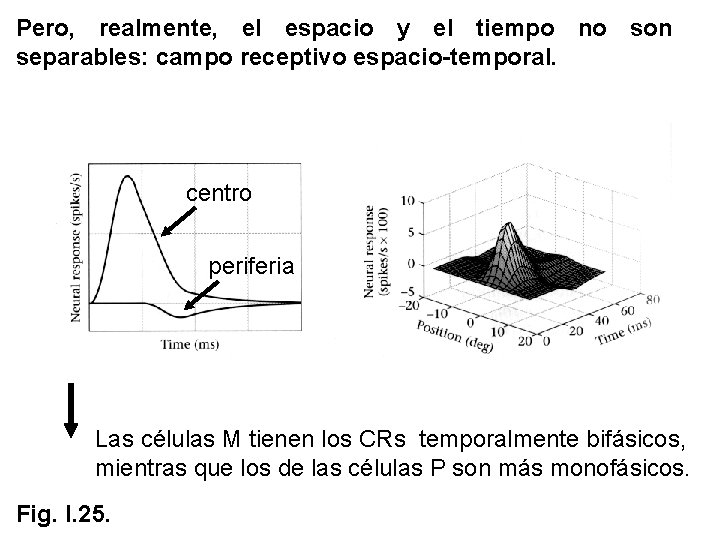
Propiedades temporales de M y P. Índice de transitoriedad: Magno mayores, Parvo menores Latencia: Magno cortas, Parvo más largas Velocidad de conducción (del axón): Magno altas, Parvo menores. Campo receptivo temporal (ver más adelante): Magno bifásicos, Parvo más monofásicos
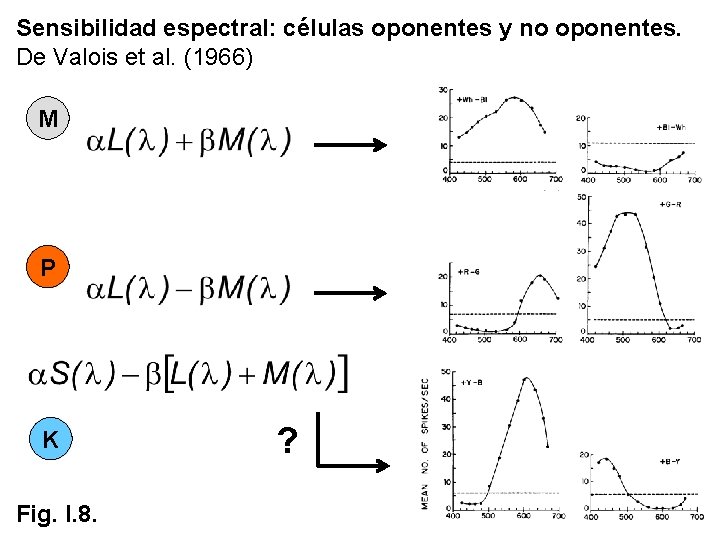
Sensibilidad espectral: células oponentes y no oponentes. De Valois et al. (1966) M P K Fig. I. 8. ?
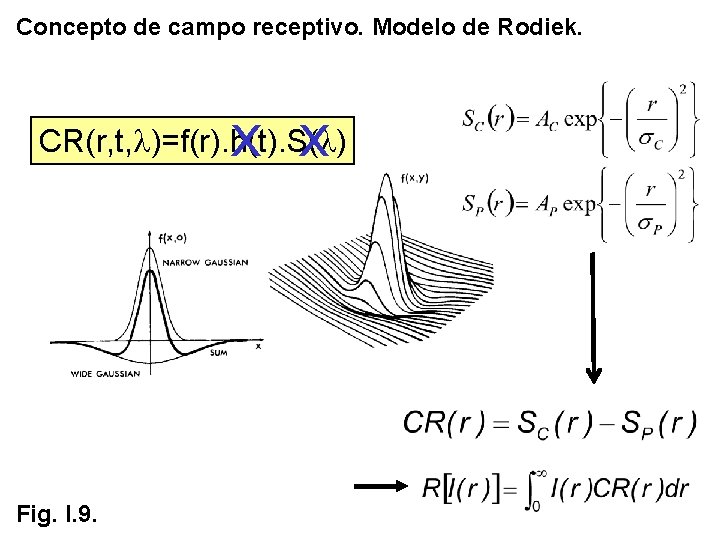
Concepto de campo receptivo. Modelo de Rodiek. x x CR(r, t, l)=f(r). h(t). S(l) Fig. I. 9.
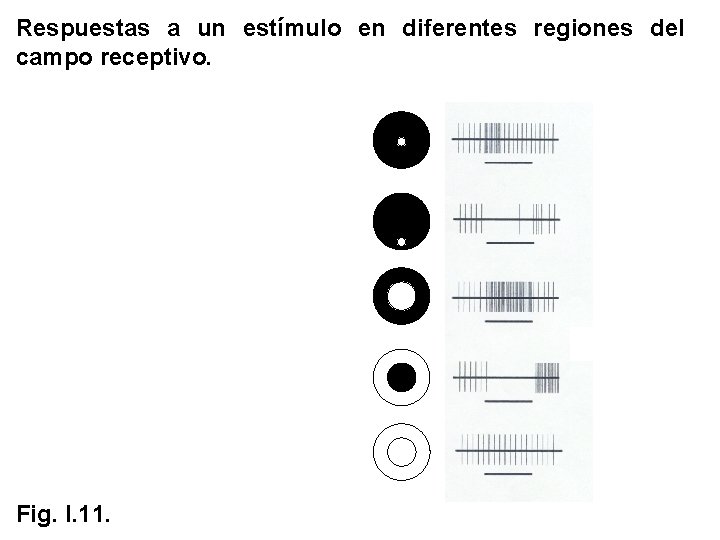
Respuestas a un estímulo en diferentes regiones del campo receptivo. Fig. I. 11.
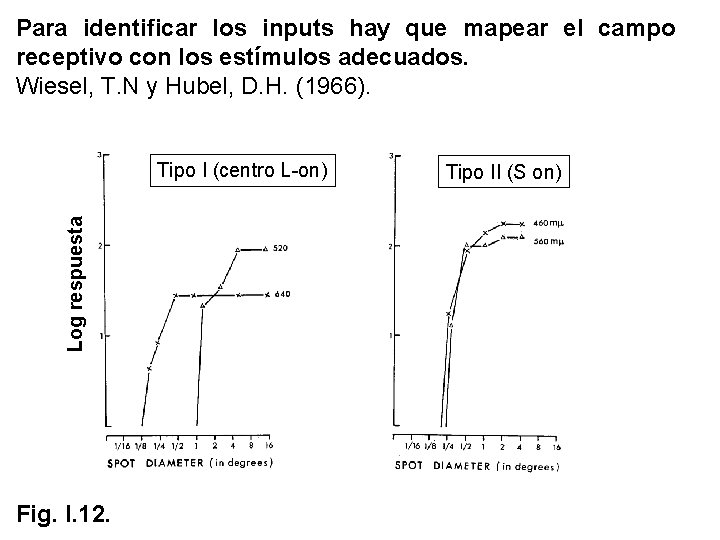
Para identificar los inputs hay que mapear el campo receptivo con los estímulos adecuados. Wiesel, T. N y Hubel, D. H. (1966). Log respuesta Tipo I (centro L-on) Fig. I. 12. Tipo II (S on)
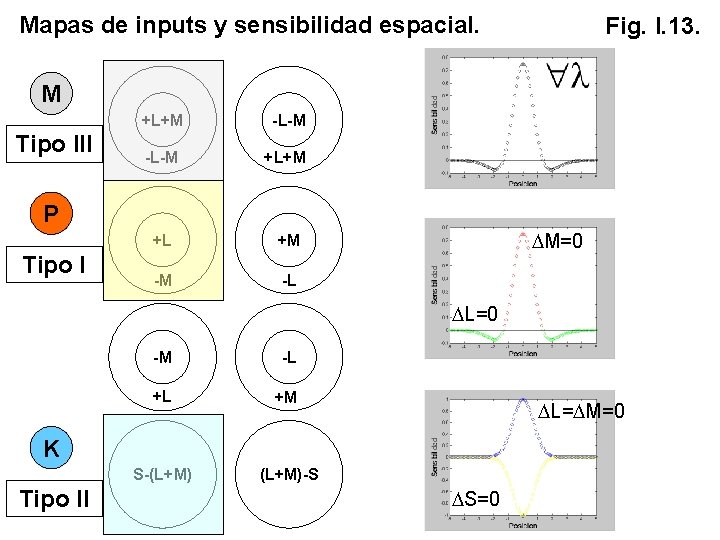
Mapas de inputs y sensibilidad espacial. Fig. I. 13. M Tipo III +L+M -L-M +L+M +L +M -M -L P Tipo I DM=0 DL=0 -M -L +L +M S-(L+M)-S DL=DM=0 K Tipo II DS=0
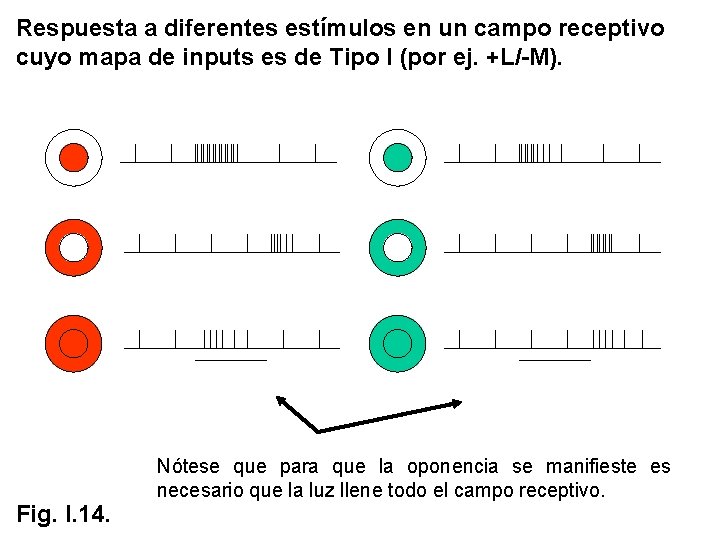
Respuesta a diferentes estímulos en un campo receptivo cuyo mapa de inputs es de Tipo I (por ej. +L/-M). Fig. I. 14. Nótese que para que la oponencia se manifieste es necesario que la luz llene todo el campo receptivo.
Campo receptivo de una célula oponente en la fovea. P. Lennie (2001). Al menos en la fovea, el centro del campo receptivo recibe señal de un sólo cono. Fig. I. 15.
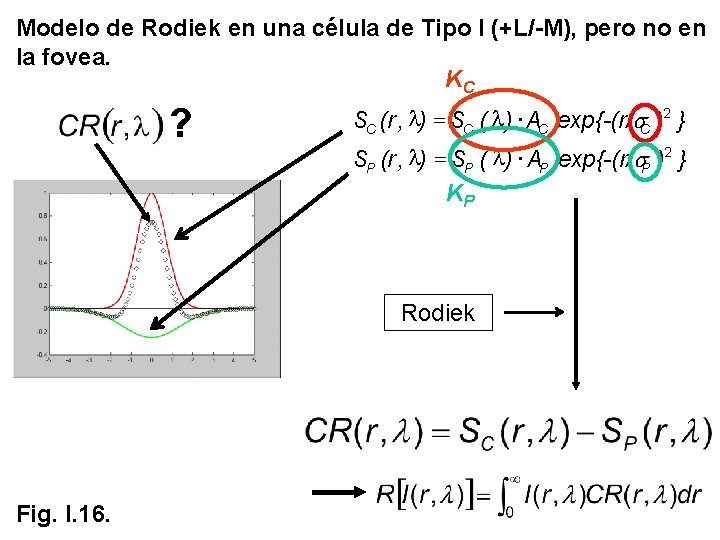
Modelo de Rodiek en una célula de Tipo I (+L/-M), pero no en la fovea. KC ? SC (r , l) = SC ( l ) × AC exp{-(r/s. C )2 } SP (r , l) = SP ( l ) × AP exp{-(r/s. P )2 } KP Rodiek Fig. I. 16.
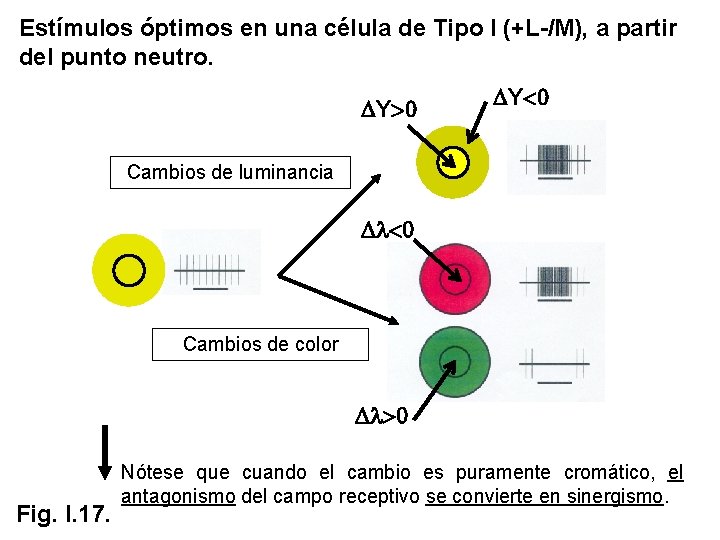
Estímulos óptimos en una célula de Tipo I (+L-/M), a partir del punto neutro. DY>0 DY<0 Cambios de luminancia Dl<0 Cambios de color Dl>0 Fig. I. 17. Nótese que cuando el cambio es puramente cromático, el antagonismo del campo receptivo se convierte en sinergismo.
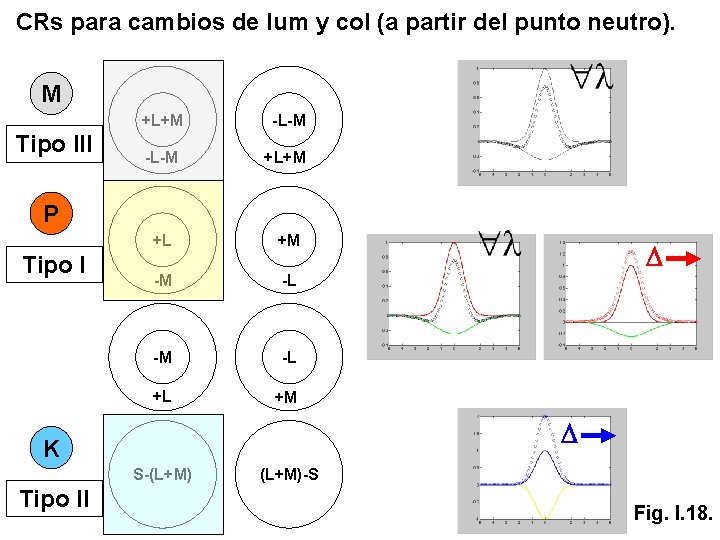
CRs para cambios de lum y col (a partir del punto neutro). M Tipo III +L+M -L-M +L+M +L +M -M -L +L +M P Tipo I D K S-(L+M) Tipo II D (L+M)-S Fig. I. 18.
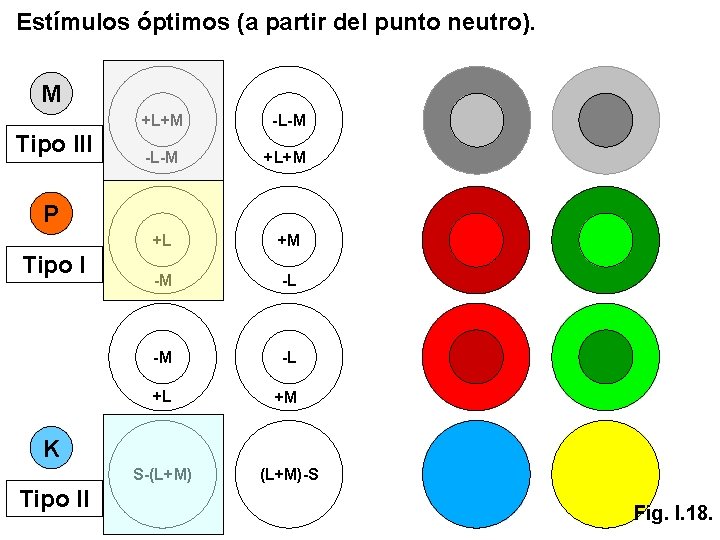
Estímulos óptimos (a partir del punto neutro). M Tipo III +L+M -L-M +L+M +L +M -M -L +L +M S-(L+M)-S P Tipo I K Tipo II Fig. I. 18.
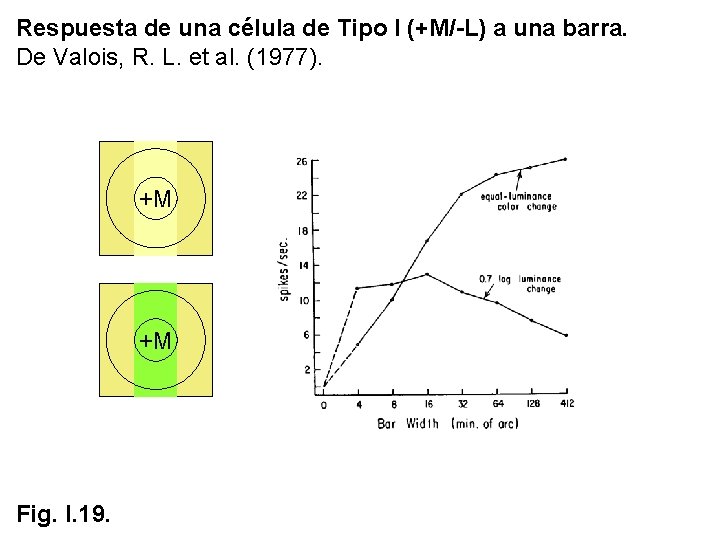
Respuesta de una célula de Tipo I (+M/-L) a una barra. De Valois, R. L. et al. (1977). +M +M Fig. I. 19.
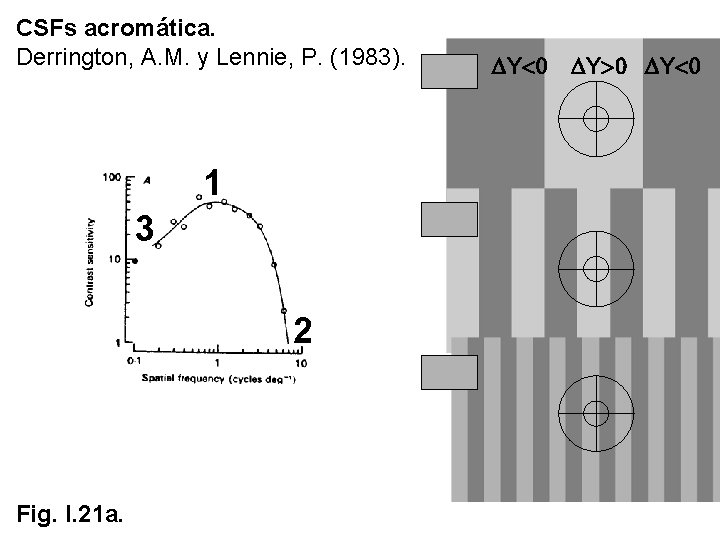
CSFs acromática. Derrington, A. M. y Lennie, P. (1983). DY<0 DY>0 DY<0 3 1 3 2 1 2 Fig. I. 21 a.
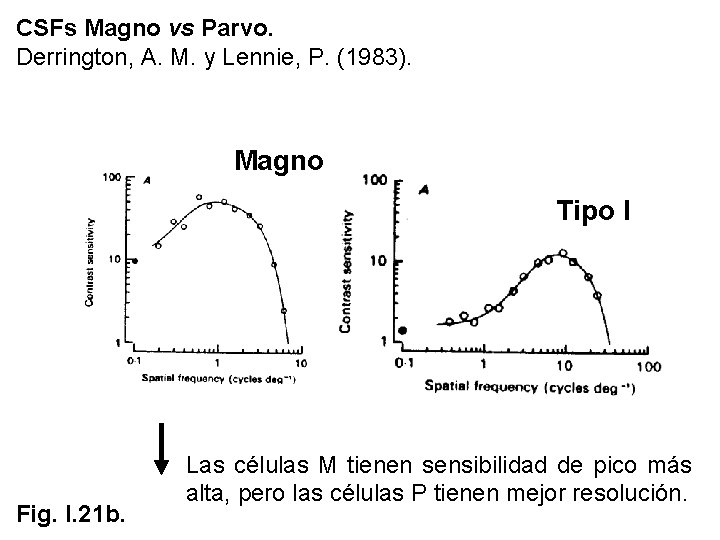
CSFs Magno vs Parvo. Derrington, A. M. y Lennie, P. (1983). Magno Tipo I Fig. I. 21 b. Las células M tienen sensibilidad de pico más alta, pero las células P tienen mejor resolución.
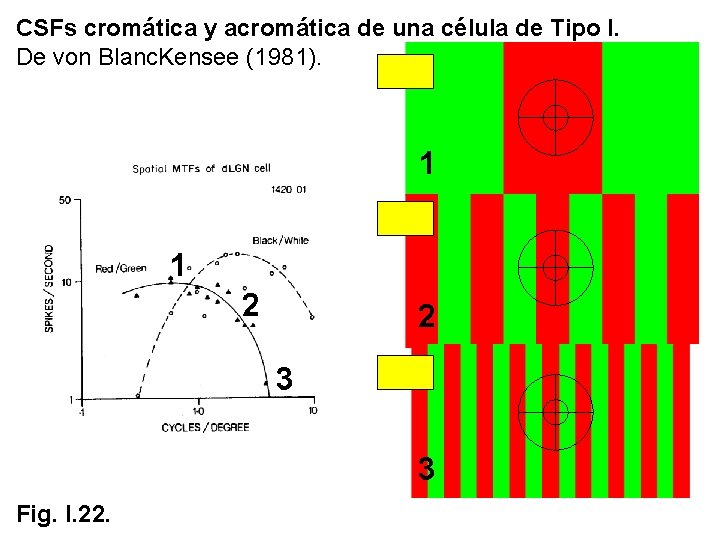
CSFs cromática y acromática de una célula de Tipo I. De von Blanc. Kensee (1981). 1 1 2 2 3 3 Fig. I. 22.
Pero, realmente, el espacio y el tiempo no son separables: campo receptivo espacio-temporal. centro periferia Las células M tienen los CRs temporalmente bifásicos, mientras que los de las células P son más monofásicos. Fig. I. 25.
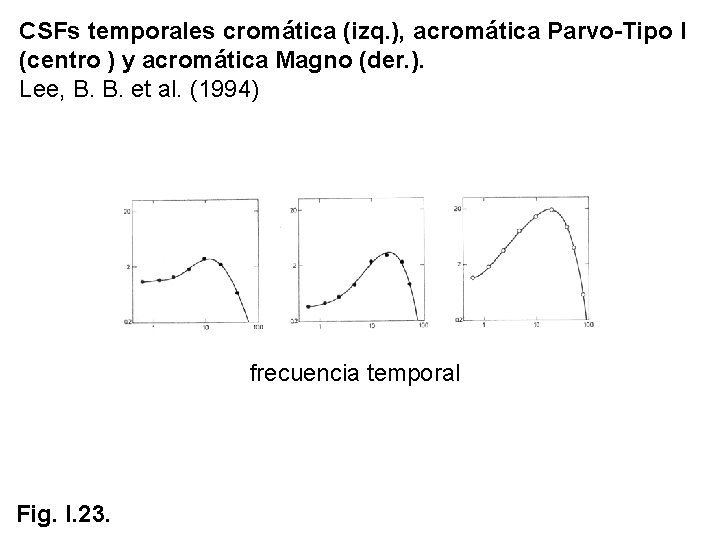
CSFs temporales cromática (izq. ), acromática Parvo-Tipo I (centro ) y acromática Magno (der. ). Lee, B. B. et al. (1994) frecuencia temporal Fig. I. 23.