
SVILUPPO di Drosophila melanogaster PERCHE DROSOPHILA n Ciclo
- Slides: 32
SVILUPPO di Drosophila melanogaster
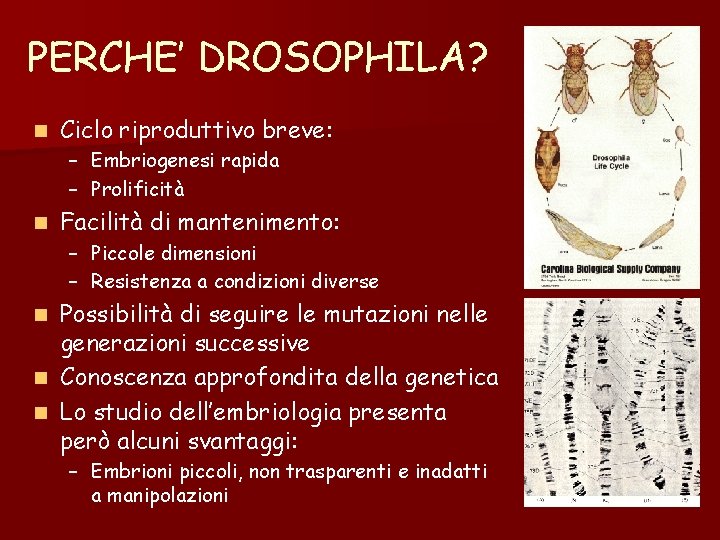
PERCHE’ DROSOPHILA? n Ciclo riproduttivo breve: – Embriogenesi rapida – Prolificità n Facilità di mantenimento: – Piccole dimensioni – Resistenza a condizioni diverse Possibilità di seguire le mutazioni nelle generazioni successive n Conoscenza approfondita della genetica n Lo studio dell’embriologia presenta però alcuni svantaggi: n – Embrioni piccoli, non trasparenti e inadatti a manipolazioni
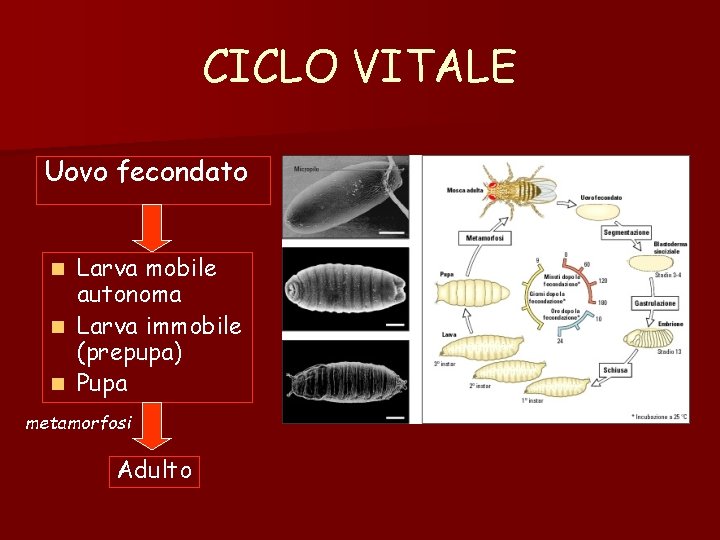
CICLO VITALE Uovo fecondato Larva mobile autonoma n Larva immobile (prepupa) n Pupa n metamorfosi Adulto
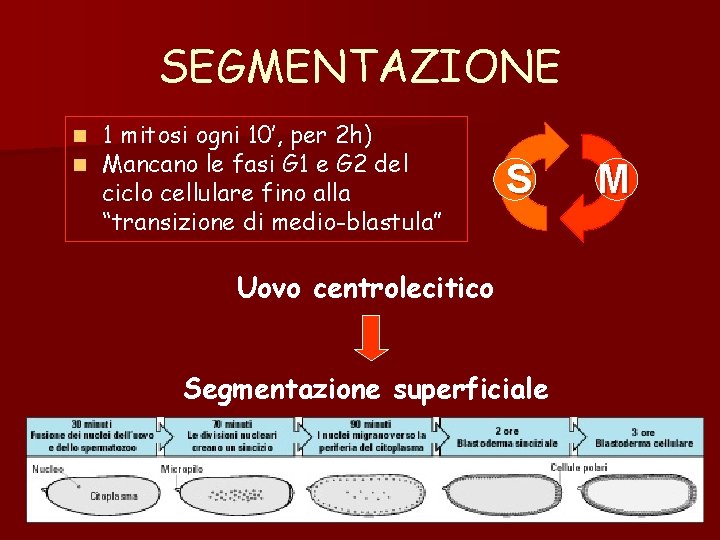
SEGMENTAZIONE n n 1 mitosi ogni 10’, per 2 h) Mancano le fasi G 1 e G 2 del ciclo cellulare fino alla “transizione di medio-blastula” S Uovo centrolecitico Segmentazione superficiale M
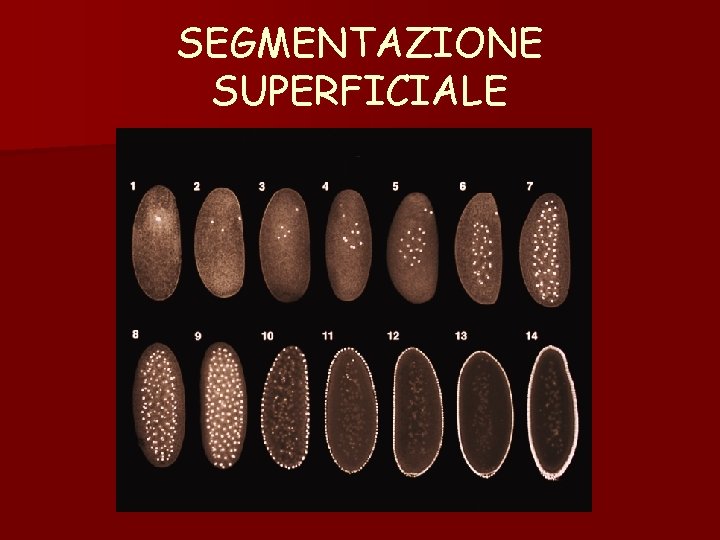
SEGMENTAZIONE SUPERFICIALE
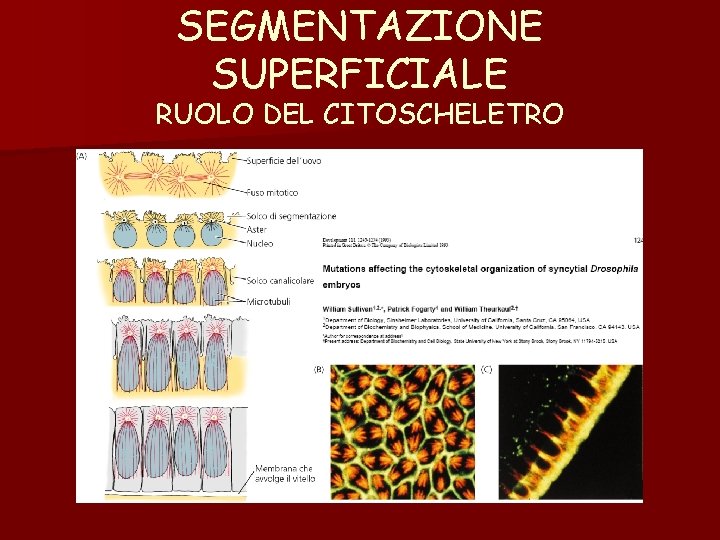
SEGMENTAZIONE SUPERFICIALE RUOLO DEL CITOSCHELETRO
SEGMENTAZIONE SUPERFICIALE Divisioni nucleari non seguite da citocinesi nella porzione centrale dell’uovo (T dip. , 1 h 30’) n Migrazione dei nuclei circondati da masserelle di citoplasma (energidi) alla periferia, con mitosi rallentate BLASTODERMA SINCIZIALE n n Separazione cellule somatiche/cellule germinali n Cellularizzazione delle cellule somatiche (invaginazioni n Aumento trascrizione (ciclo 14) (formazione al polo posteriore delle cellule polari) membrana dell’oocita, complessi actina-membrana al polo basale) BLASTODERMA CELLULARE
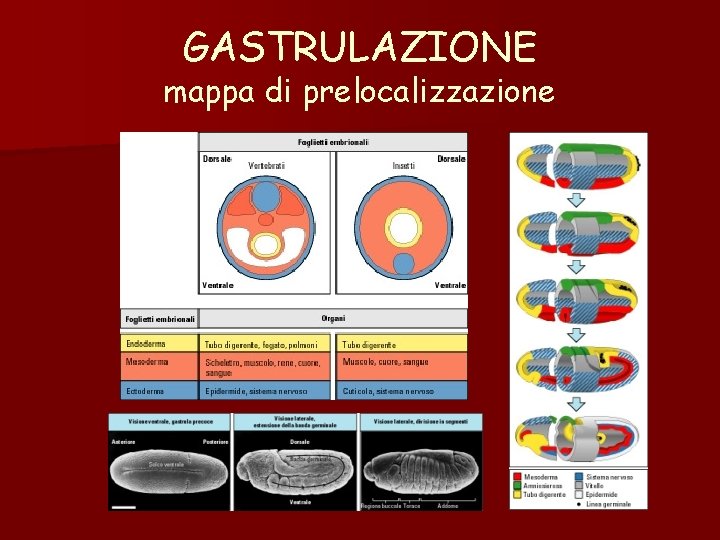
GASTRULAZIONE mappa di prelocalizzazione
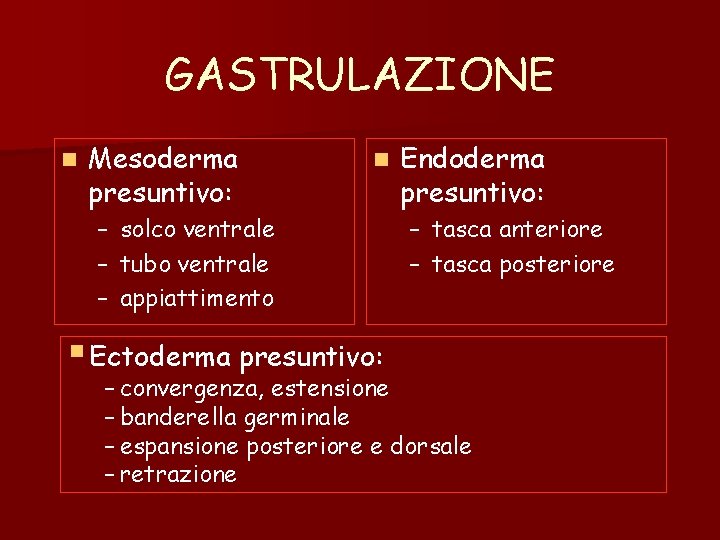
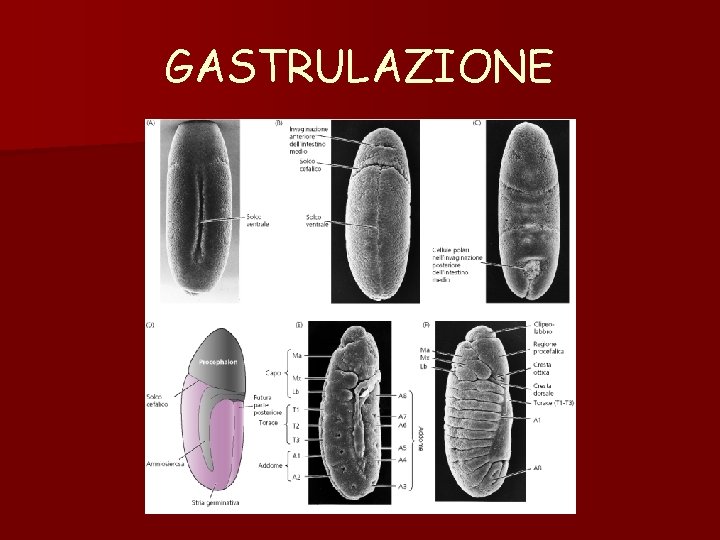
GASTRULAZIONE n Mesoderma presuntivo: – – – n solco ventrale tubo ventrale appiattimento § Ectoderma presuntivo: Endoderma presuntivo: – tasca anteriore – tasca posteriore – convergenza, estensione – banderella germinale – espansione posteriore e dorsale – retrazione
GASTRULAZIONE
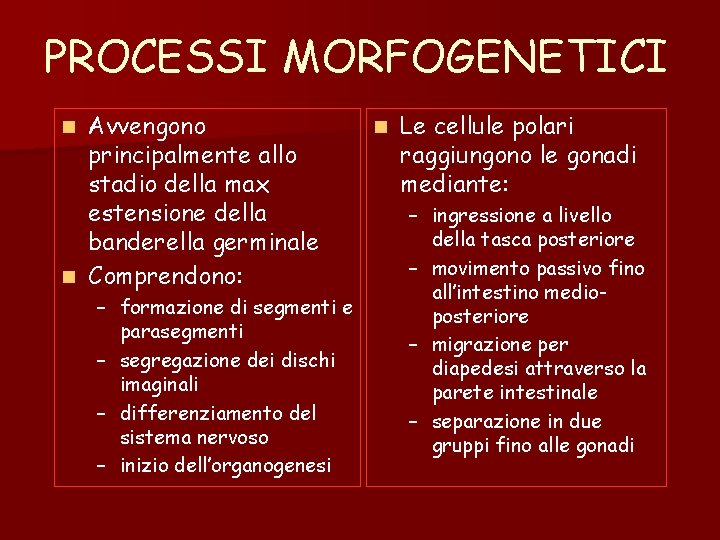
PROCESSI MORFOGENETICI Avvengono principalmente allo stadio della max estensione della banderella germinale n Comprendono: n – formazione di segmenti e parasegmenti – segregazione dei dischi imaginali – differenziamento del sistema nervoso – inizio dell’organogenesi n Le cellule polari raggiungono le gonadi mediante: – ingressione a livello della tasca posteriore – movimento passivo fino all’intestino medioposteriore – migrazione per diapedesi attraverso la parete intestinale – separazione in due gruppi fino alle gonadi
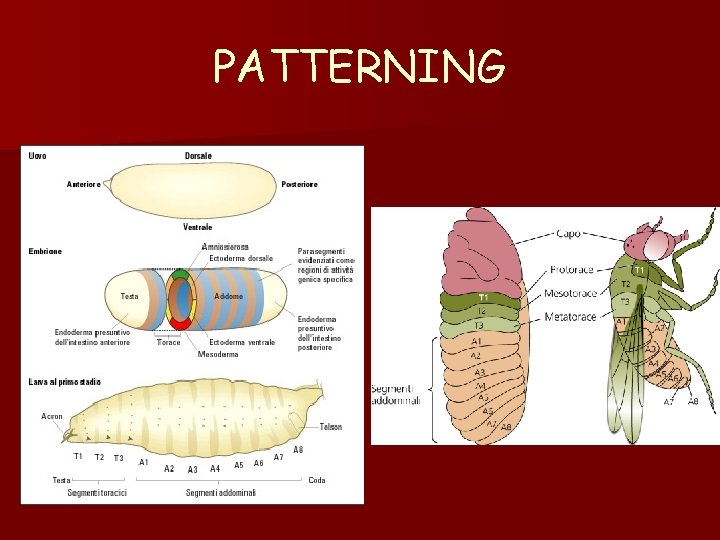
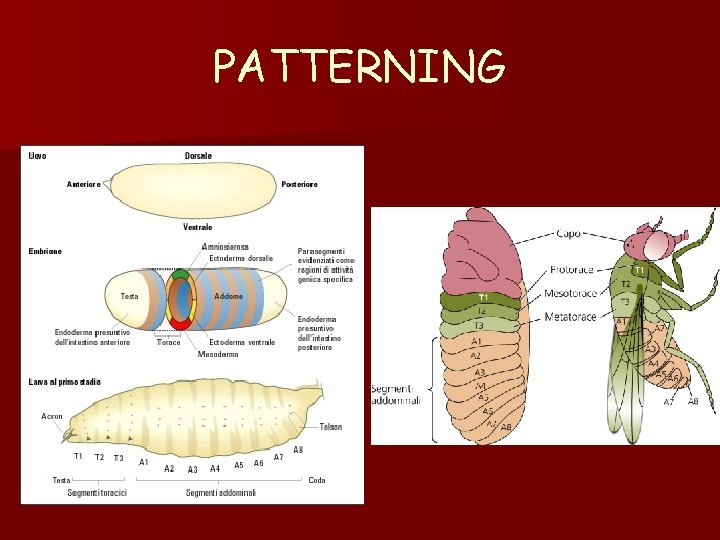
PATTERNING
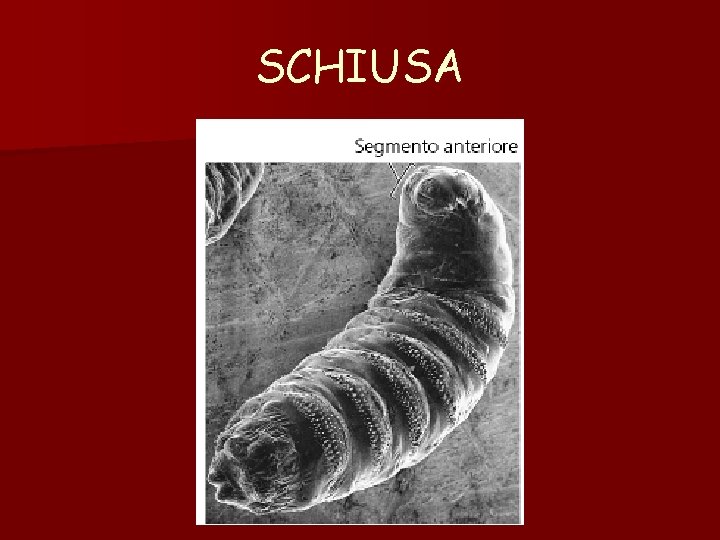
SCHIUSA
PATTERNING
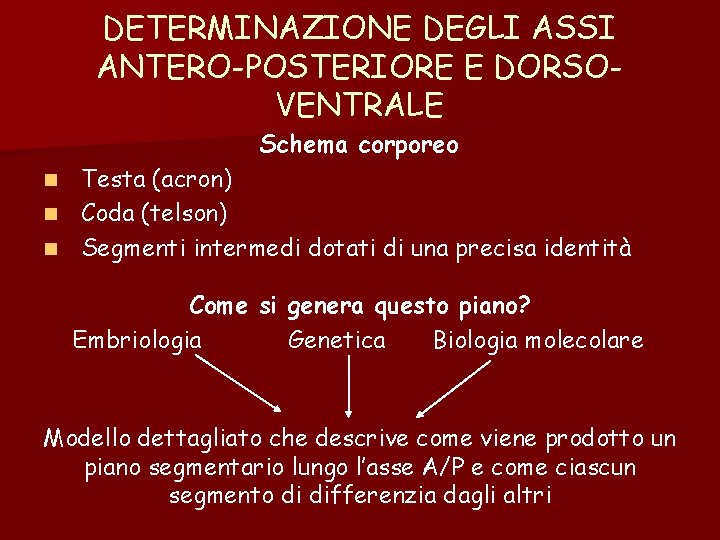
DETERMINAZIONE DEGLI ASSI ANTERO-POSTERIORE E DORSOVENTRALE Schema corporeo Testa (acron) n Coda (telson) n Segmenti intermedi dotati di una precisa identità n Come si genera questo piano? Embriologia Genetica Biologia molecolare Modello dettagliato che descrive come viene prodotto un piano segmentario lungo l’asse A/P e come ciascun segmento di differenzia dagli altri
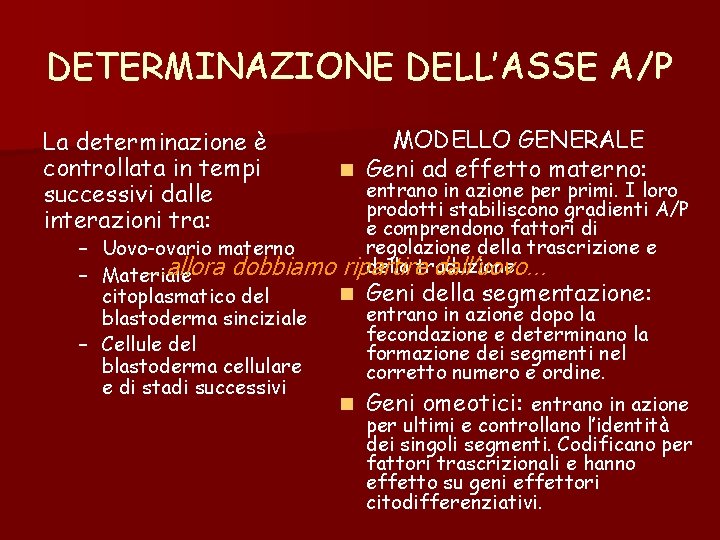
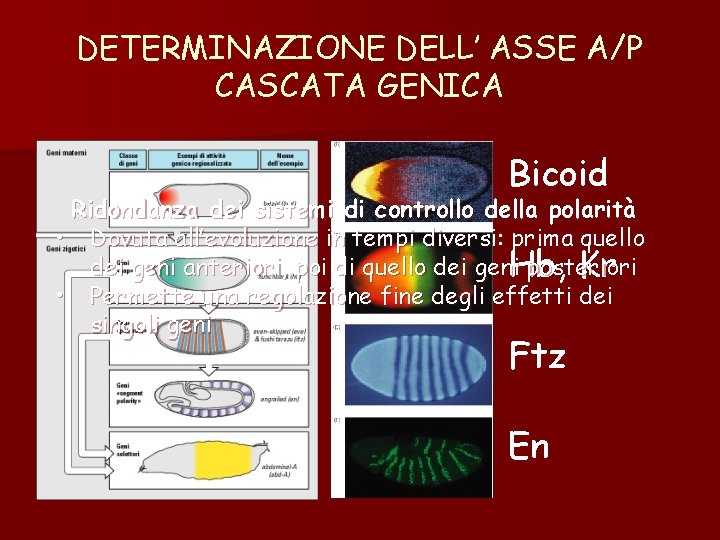
DETERMINAZIONE DELL’ASSE A/P La determinazione è controllata in tempi successivi dalle interazioni tra: – – – MODELLO GENERALE n Geni ad effetto materno: entrano in azione per primi. I loro prodotti stabiliscono gradienti A/P e comprendono fattori di regolazione della trascrizione e Uovo-ovario materno della traduzione …allora dobbiamo ripartire dall’uovo… Materiale n Geni della segmentazione: citoplasmatico del entrano in azione dopo la blastoderma sinciziale fecondazione e determinano la Cellule del formazione dei segmenti nel blastoderma cellulare corretto numero e ordine. e di stadi successivi n Geni omeotici: entrano in azione per ultimi e controllano l’identità dei singoli segmenti. Codificano per fattori trascrizionali e hanno effetto su geni effettori citodifferenziativi.
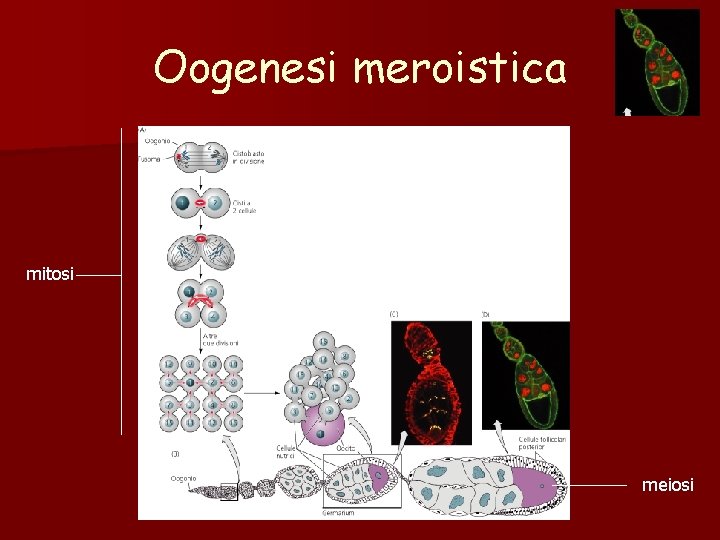
Oogenesi meroistica mitosi meiosi
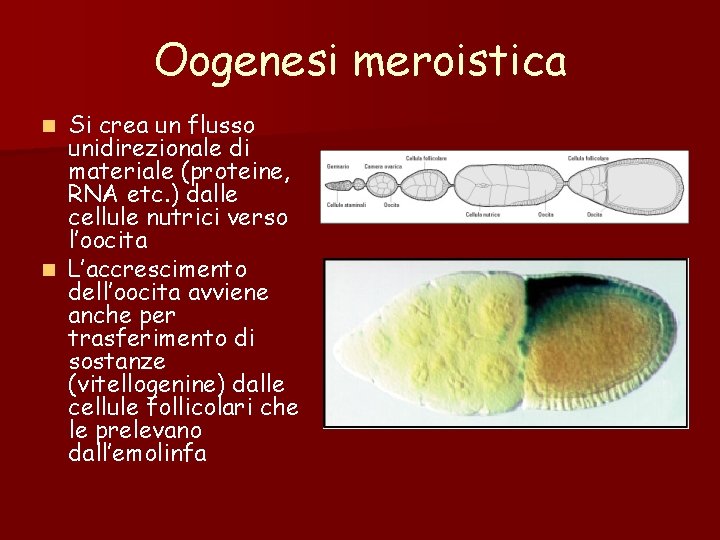
Oogenesi meroistica Si crea un flusso unidirezionale di materiale (proteine, RNA etc. ) dalle cellule nutrici verso l’oocita n L’accrescimento dell’oocita avviene anche per trasferimento di sostanze (vitellogenine) dalle cellule follicolari che le prelevano dall’emolinfa n
DETERMINAZIONE DELL’ ASSE A/P CASCATA GENICA Bicoid Ridondanza dei sistemi di controllo della polarità • Dovuta all’evoluzione in tempi diversi: prima quello dei geni anteriori, poi di quello dei geni. Hb, posteriori Kr • Permette una regolazione fine degli effetti dei singoli geni Ftz En
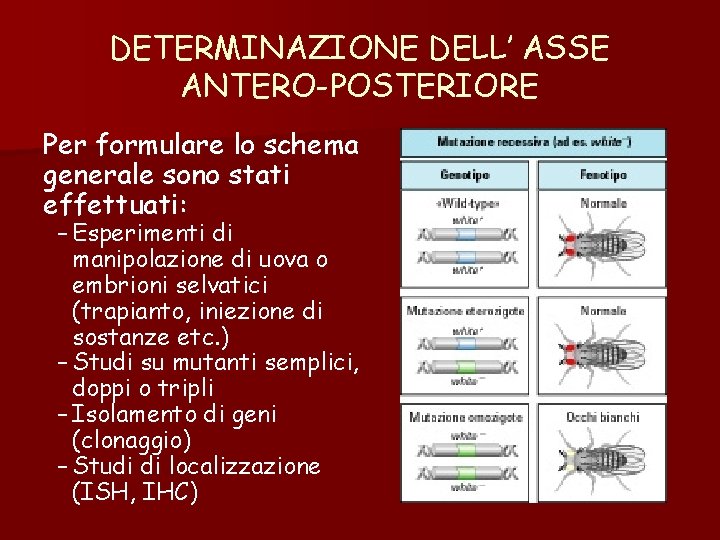
DETERMINAZIONE DELL’ ASSE ANTERO-POSTERIORE Per formulare lo schema generale sono stati effettuati: – Esperimenti di manipolazione di uova o embrioni selvatici (trapianto, iniezione di sostanze etc. ) – Studi su mutanti semplici, doppi o tripli – Isolamento di geni (clonaggio) – Studi di localizzazione (ISH, IHC)
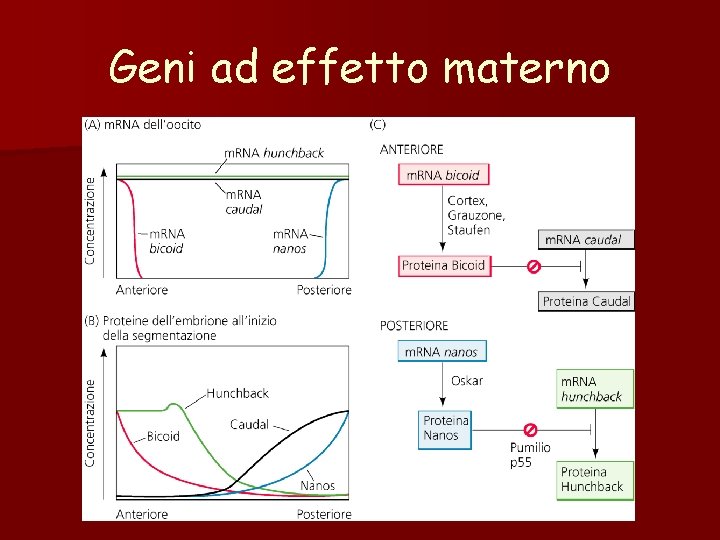
Geni ad effetto materno n Dimostrazione dell’esistenza nell’oocita di sostanze anteriorizzanti e posteriorizzanti (ipotesi dei gradienti) n Studio di embrioni di madri mutanti danni strutturali e funzionali morte precoce.
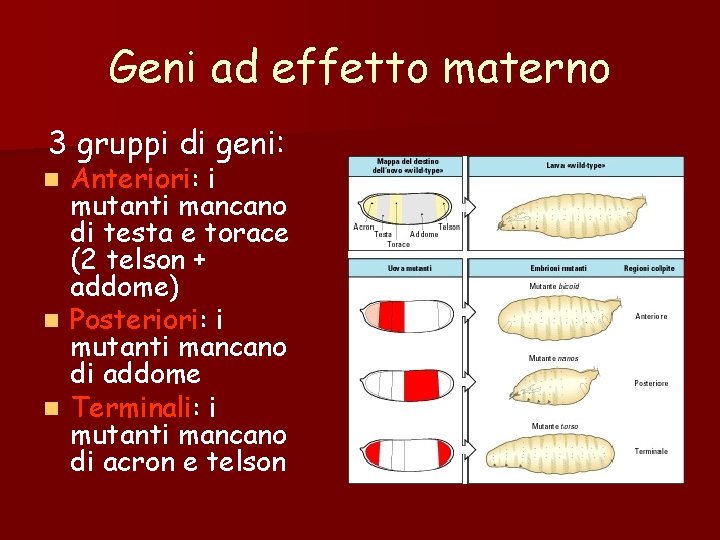
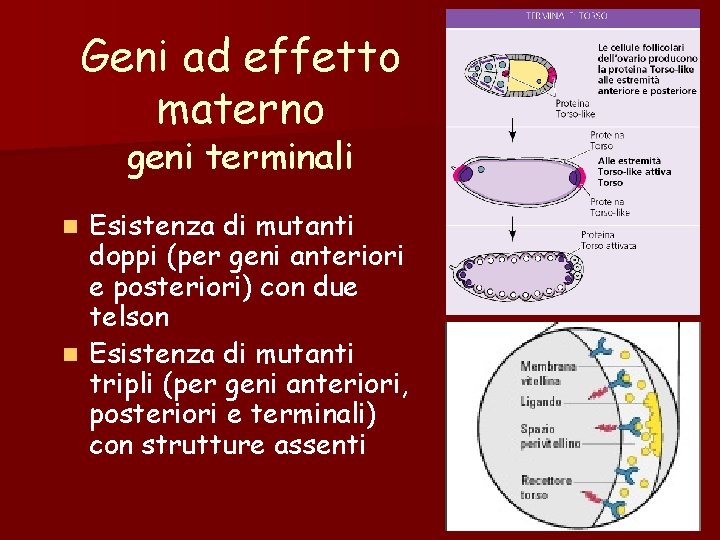
Geni ad effetto materno 3 gruppi di geni: Anteriori: i mutanti mancano di testa e torace (2 telson + addome) n Posteriori: i mutanti mancano di addome n Terminali: i mutanti mancano di acron e telson n
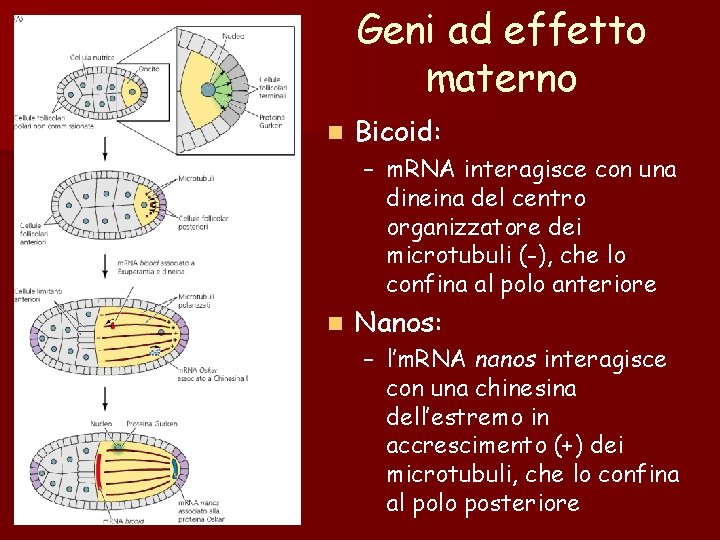
Geni ad effetto materno n Bicoid: – m. RNA interagisce con una dineina del centro organizzatore dei microtubuli (-), che lo confina al polo anteriore n Nanos: – l’m. RNA nanos interagisce con una chinesina dell’estremo in accrescimento (+) dei microtubuli, che lo confina al polo posteriore
Geni ad effetto materno geni anteriori: Bicoid
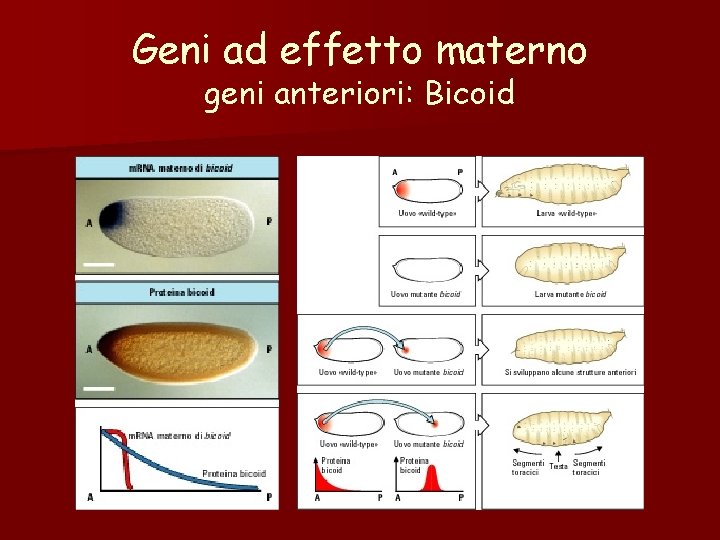
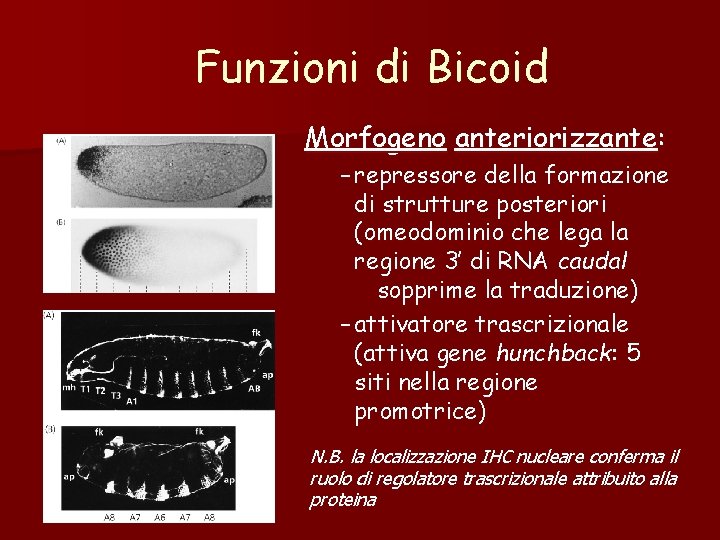
Funzioni di Bicoid Morfogeno anteriorizzante: – repressore della formazione di strutture posteriori (omeodominio che lega la regione 3’ di RNA caudal sopprime la traduzione) – attivatore trascrizionale (attiva gene hunchback: 5 siti nella regione promotrice) N. B. la localizzazione IHC nucleare conferma il ruolo di regolatore trascrizionale attribuito alla proteina
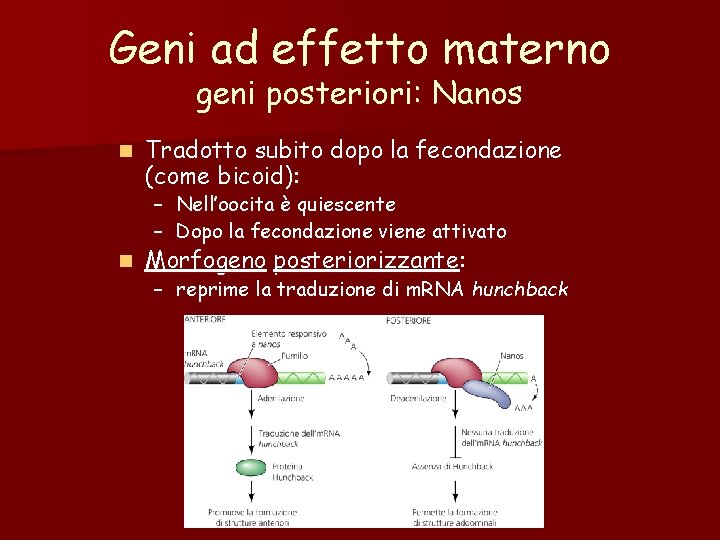
Geni ad effetto materno geni posteriori: Nanos n Tradotto subito dopo la fecondazione (come bicoid): – Nell’oocita è quiescente – Dopo la fecondazione viene attivato n Morfogeno posteriorizzante: – reprime la traduzione di m. RNA hunchback
Geni ad effetto materno
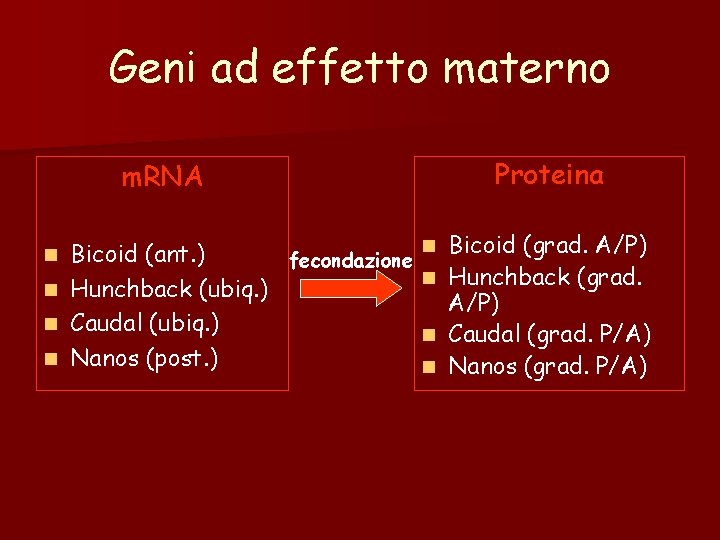
Geni ad effetto materno m. RNA Proteina n Bicoid (grad. A/P) Bicoid (ant. ) fecondazione n Hunchback (grad. n Hunchback (ubiq. ) A/P) n Caudal (ubiq. ) n Caudal (grad. P/A) n Nanos (post. ) n Nanos (grad. P/A) n
Geni ad effetto materno geni terminali Esistenza di mutanti doppi (per geni anteriori e posteriori) con due telson n Esistenza di mutanti tripli (per geni anteriori, posteriori e terminali) con strutture assenti n
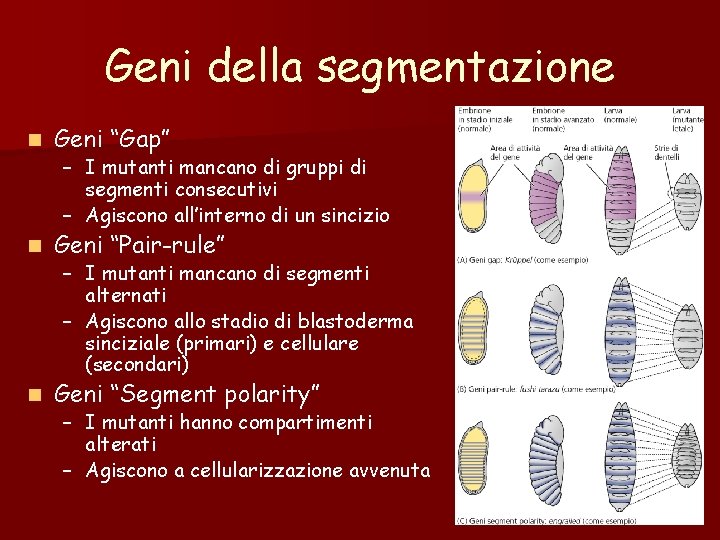
Geni della segmentazione n Geni “Gap” n Geni “Pair-rule” n Geni “Segment polarity” – I mutanti mancano di gruppi di segmenti consecutivi – Agiscono all’interno di un sincizio – I mutanti mancano di segmenti alternati – Agiscono allo stadio di blastoderma sinciziale (primari) e cellulare (secondari) – I mutanti hanno compartimenti alterati – Agiscono a cellularizzazione avvenuta
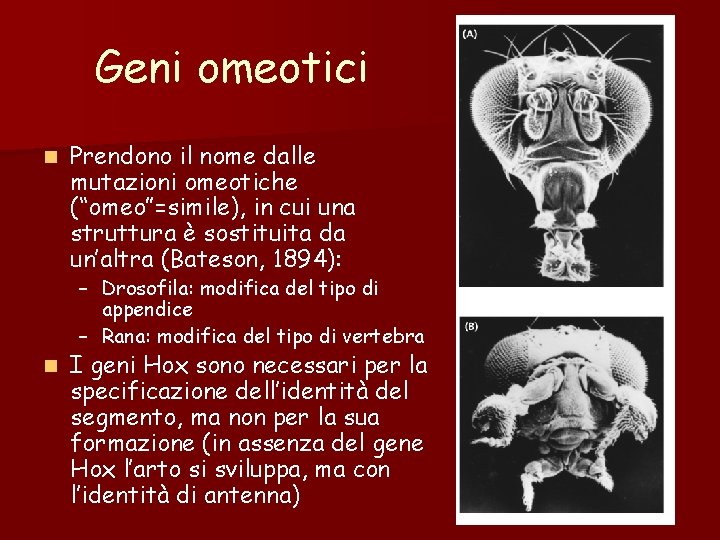
Geni omeotici n Prendono il nome dalle mutazioni omeotiche (“omeo”=simile), in cui una struttura è sostituita da un’altra (Bateson, 1894): – Drosofila: modifica del tipo di appendice – Rana: modifica del tipo di vertebra n I geni Hox sono necessari per la specificazione dell’identità del segmento, ma non per la sua formazione (in assenza del gene Hox l’arto si sviluppa, ma con l’identità di antenna)
Geni omeotici Espressi durante la gastrulazione nelle cellule del blastoderma che hanno già ricevuto le informazioni di posizione rispetto all’asse A/P n Confine di espressione anteriore molto netto e posteriore “sfumato” n Pattern di espressione raggiunto attraverso un processo dinamico, corrispondente alle fasi di espansione e retrazione della stria germinativa (Es: Antp espresso in: ps 4, poi ps 4 -5, poi n ps 4 -12, infine in ps 4 -5) n Espressione mantenuta mediante modificazioni conformazionali della cromatina anche in porzioni dei dischi imaginali – Proteine Polycomb mantengono lo stato “chiuso” – Proteine Trithorax mantengono lo stato “aperto”