
Sitronsyresyklusen Winnie Eskild IMBV 2004 Sitronsyresyklus Felles sluttpunkt
Sitronsyresyklusen Winnie Eskild, IMBV 2004
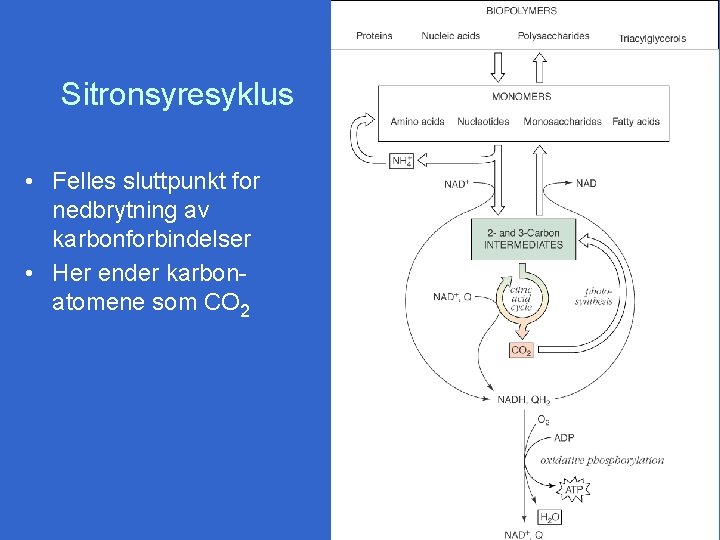
Sitronsyresyklus • Felles sluttpunkt for nedbrytning av karbonforbindelser • Her ender karbonatomene som CO 2
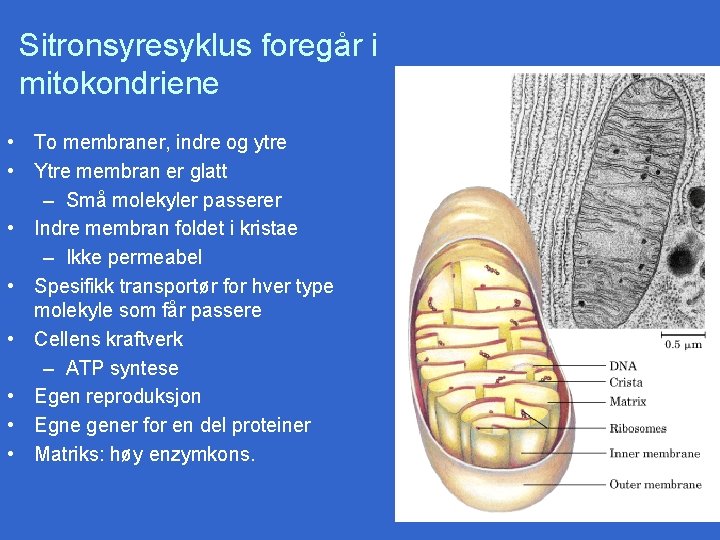
Sitronsyresyklus foregår i mitokondriene • To membraner, indre og ytre • Ytre membran er glatt – Små molekyler passerer • Indre membran foldet i kristae – Ikke permeabel • Spesifikk transportør for hver type molekyle som får passere • Cellens kraftverk – ATP syntese • Egen reproduksjon • Egne gener for en del proteiner • Matriks: høy enzymkons. DNA Kristae Matriks Ribosomer Indre membran Ytre membran
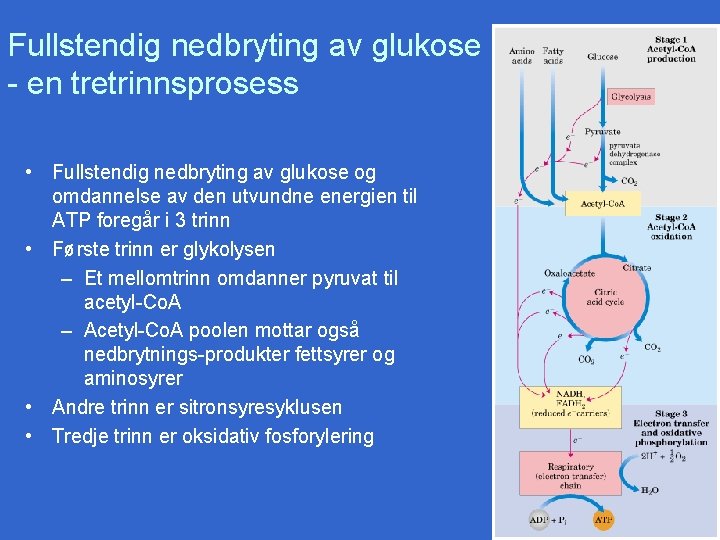
Fullstendig nedbryting av glukose - en tretrinnsprosess • Fullstendig nedbryting av glukose og omdannelse av den utvundne energien til ATP foregår i 3 trinn • Første trinn er glykolysen – Et mellomtrinn omdanner pyruvat til acetyl-Co. A – Acetyl-Co. A poolen mottar også nedbrytnings-produkter fettsyrer og aminosyrer • Andre trinn er sitronsyresyklusen • Tredje trinn er oksidativ fosforylering
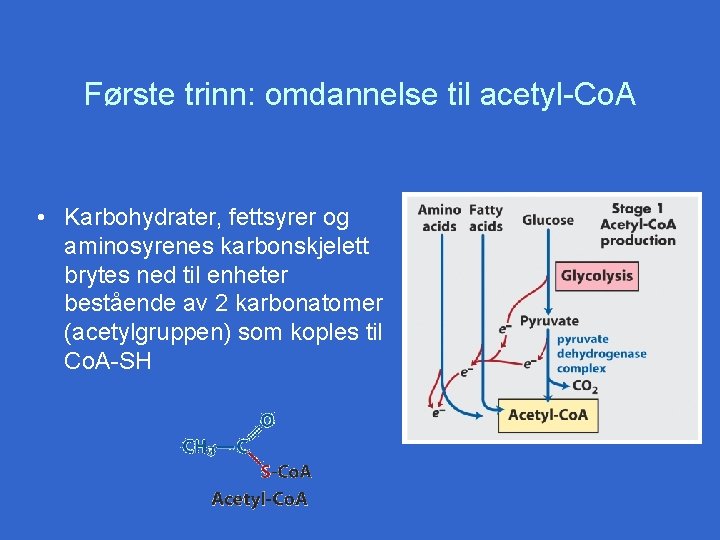
Første trinn: omdannelse til acetyl-Co. A • Karbohydrater, fettsyrer og aminosyrenes karbonskjelett brytes ned til enheter bestående av 2 karbonatomer (acetylgruppen) som koples til Co. A-SH
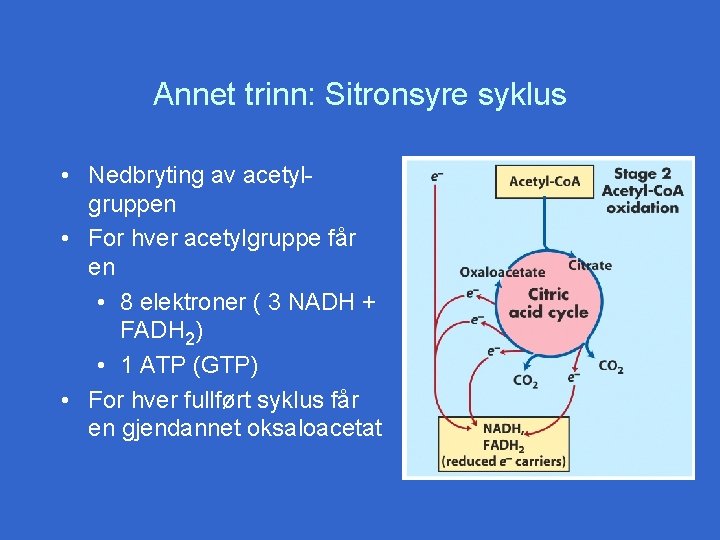
Annet trinn: Sitronsyre syklus • Nedbryting av acetylgruppen • For hver acetylgruppe får en • 8 elektroner ( 3 NADH + FADH 2) • 1 ATP (GTP) • For hver fullført syklus får en gjendannet oksaloacetat
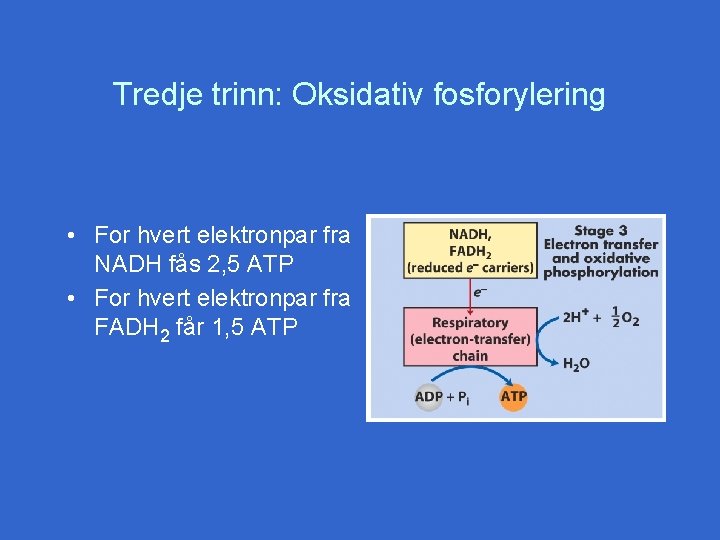
Tredje trinn: Oksidativ fosforylering • For hvert elektronpar fra NADH fås 2, 5 ATP • For hvert elektronpar fra FADH 2 får 1, 5 ATP
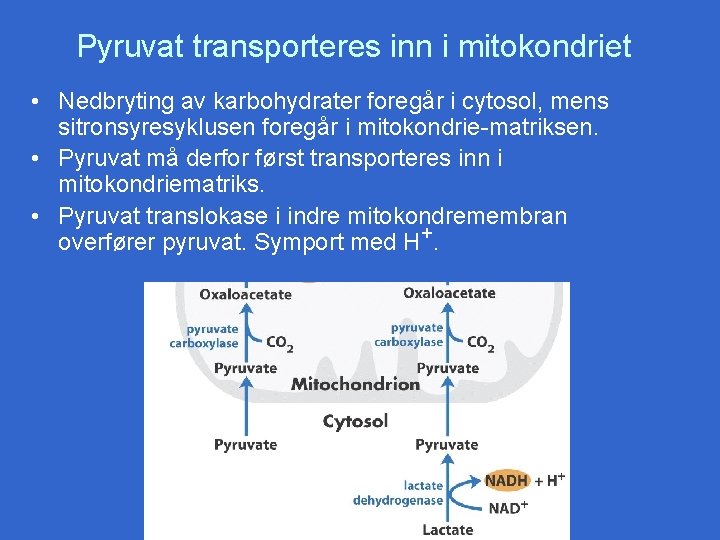
Pyruvat transporteres inn i mitokondriet • Nedbryting av karbohydrater foregår i cytosol, mens sitronsyresyklusen foregår i mitokondrie-matriksen. • Pyruvat må derfor først transporteres inn i mitokondriematriks. • Pyruvat translokase i indre mitokondremembran overfører pyruvat. Symport med H+.
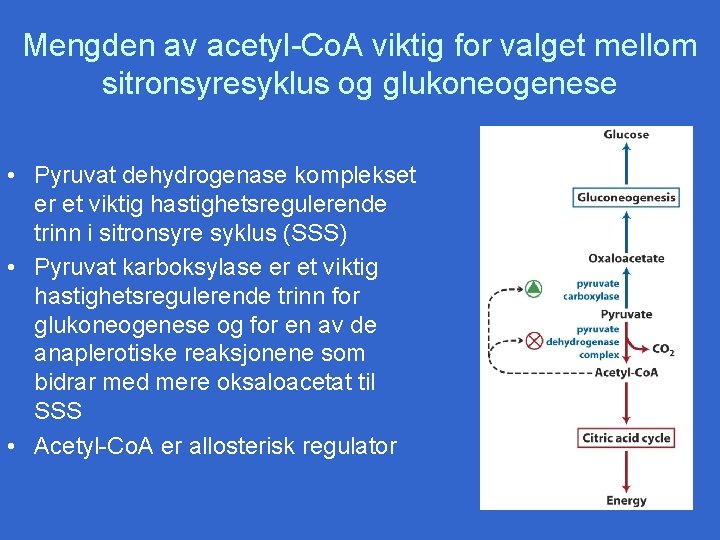
Mengden av acetyl-Co. A viktig for valget mellom sitronsyresyklus og glukoneogenese • Pyruvat dehydrogenase komplekset er et viktig hastighetsregulerende trinn i sitronsyre syklus (SSS) • Pyruvat karboksylase er et viktig hastighetsregulerende trinn for glukoneogenese og for en av de anaplerotiske reaksjonene som bidrar med mere oksaloacetat til SSS • Acetyl-Co. A er allosterisk regulator
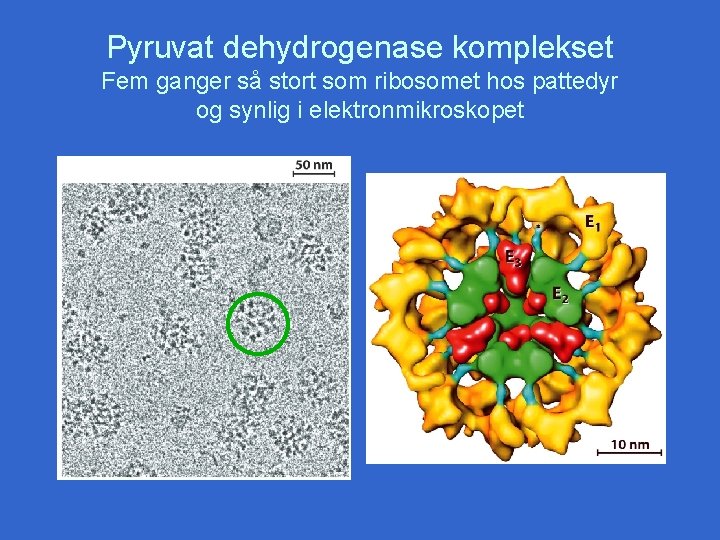
Pyruvat dehydrogenase komplekset Fem ganger så stort som ribosomet hos pattedyr og synlig i elektronmikroskopet
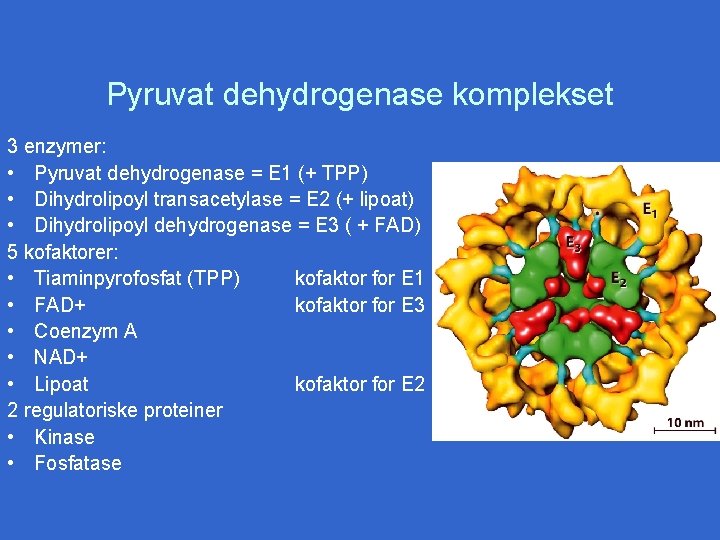
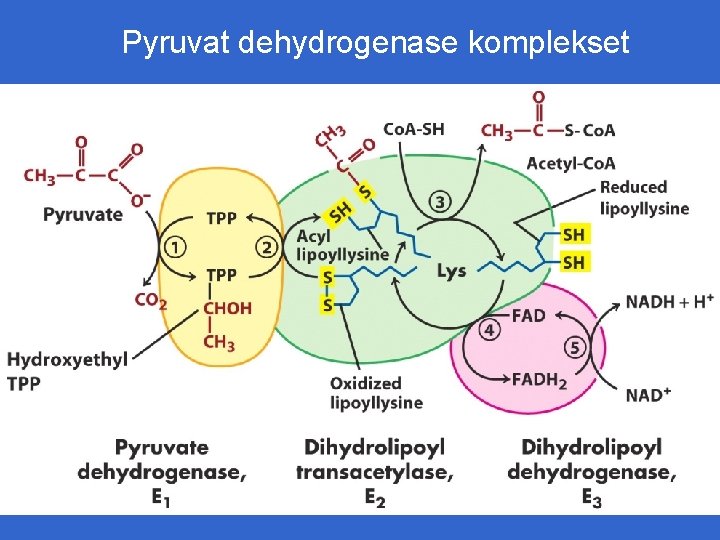
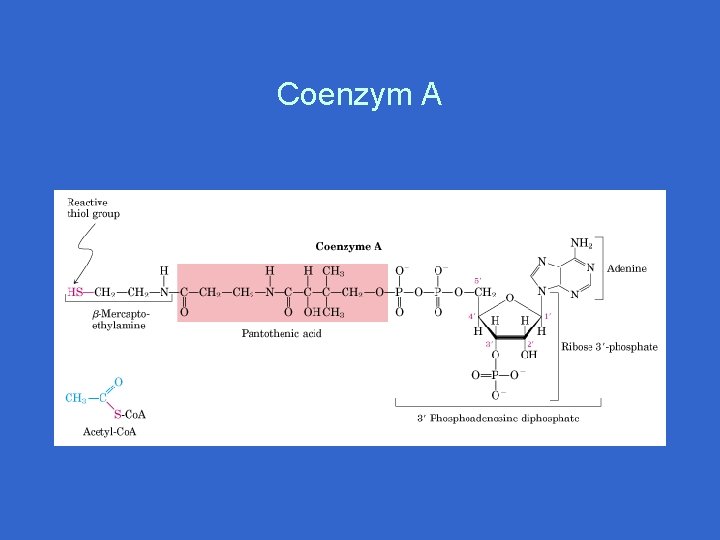
Pyruvat dehydrogenase komplekset 3 enzymer: • Pyruvat dehydrogenase = E 1 (+ TPP) • Dihydrolipoyl transacetylase = E 2 (+ lipoat) • Dihydrolipoyl dehydrogenase = E 3 ( + FAD) 5 kofaktorer: • Tiaminpyrofosfat (TPP) kofaktor for E 1 • FAD+ kofaktor for E 3 • Coenzym A • NAD+ • Lipoat kofaktor for E 2 2 regulatoriske proteiner • Kinase • Fosfatase
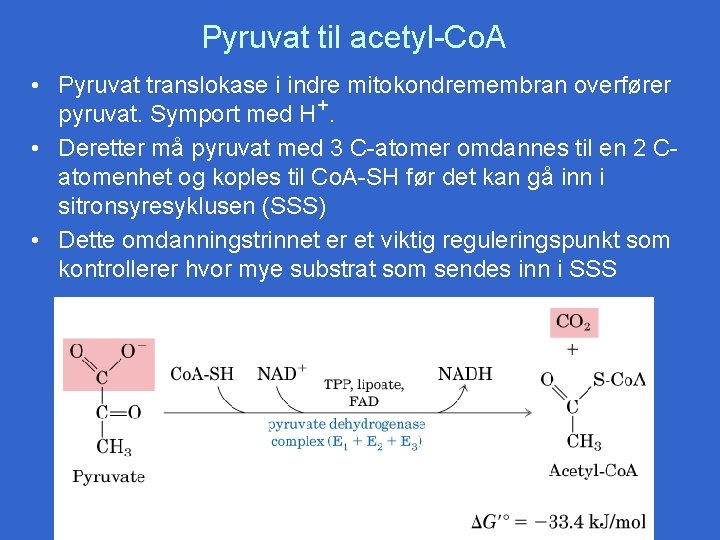
Pyruvat til acetyl-Co. A • Pyruvat translokase i indre mitokondremembran overfører pyruvat. Symport med H+. • Deretter må pyruvat med 3 C-atomer omdannes til en 2 Catomenhet og koples til Co. A-SH før det kan gå inn i sitronsyresyklusen (SSS) • Dette omdanningstrinnet er et viktig reguleringspunkt som kontrollerer hvor mye substrat som sendes inn i SSS
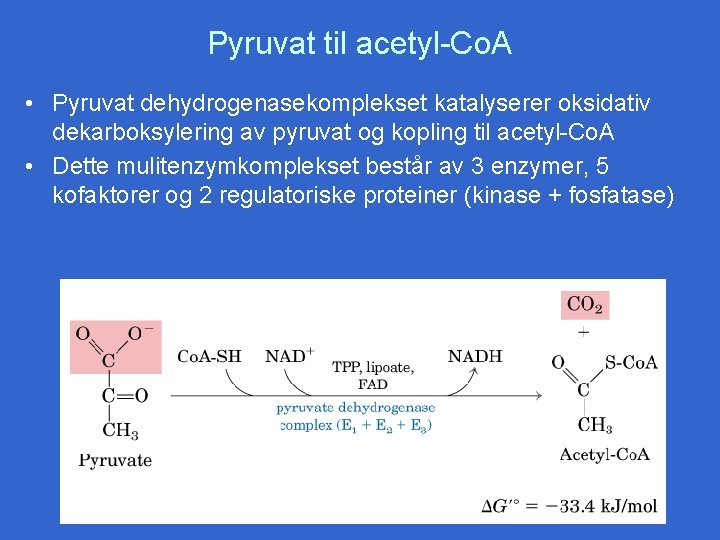
Pyruvat til acetyl-Co. A • Pyruvat dehydrogenasekomplekset katalyserer oksidativ dekarboksylering av pyruvat og kopling til acetyl-Co. A • Dette mulitenzymkomplekset består av 3 enzymer, 5 kofaktorer og 2 regulatoriske proteiner (kinase + fosfatase)
Pyruvat dehydrogenase komplekset
Lipoat
Coenzym A
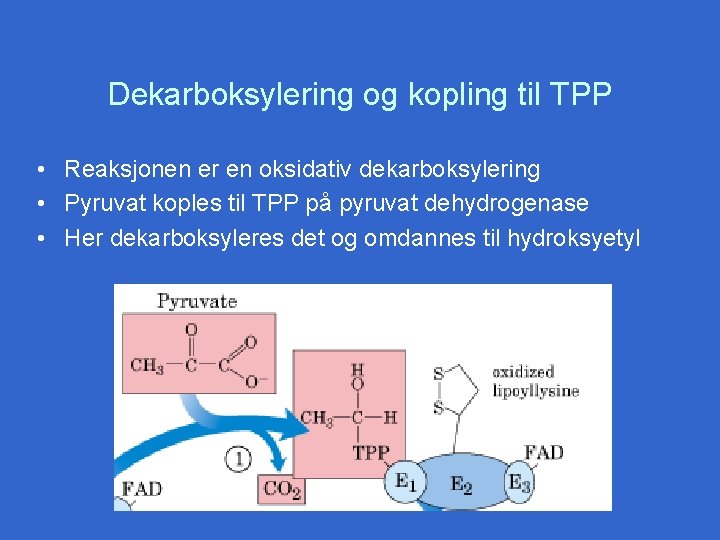
Dekarboksylering og kopling til TPP • Reaksjonen er en oksidativ dekarboksylering • Pyruvat koples til TPP på pyruvat dehydrogenase • Her dekarboksyleres det og omdannes til hydroksyetyl
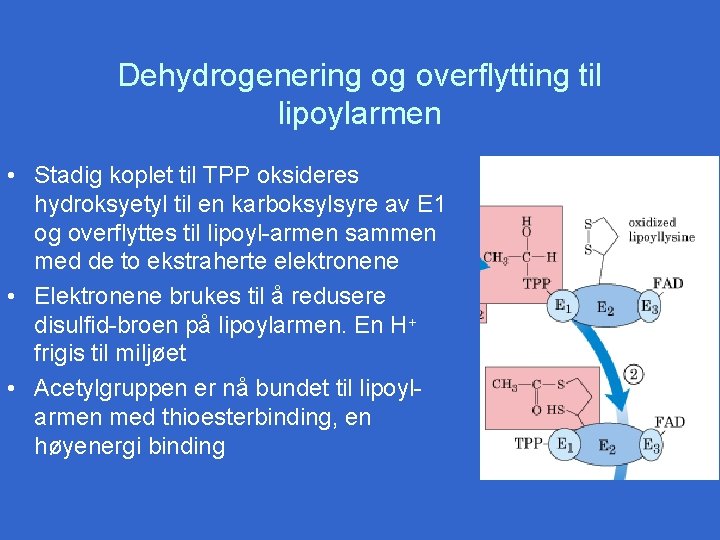
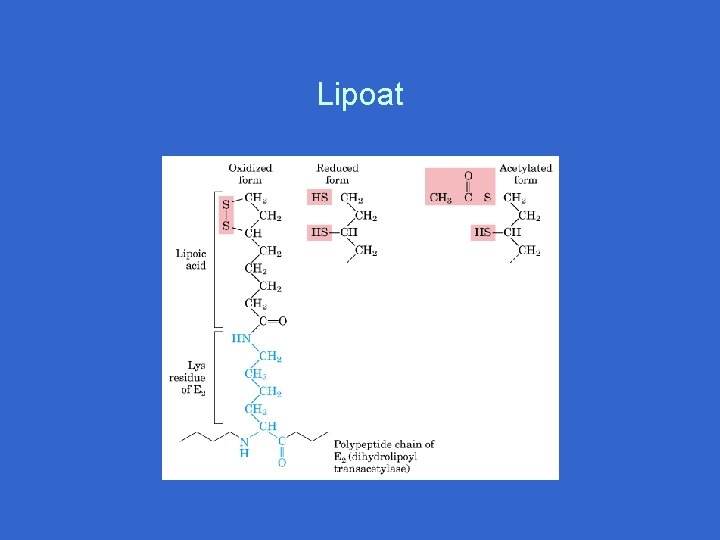
Dehydrogenering og overflytting til lipoylarmen • Stadig koplet til TPP oksideres hydroksyetyl til en karboksylsyre av E 1 og overflyttes til lipoyl-armen sammen med de to ekstraherte elektronene • Elektronene brukes til å redusere disulfid-broen på lipoylarmen. En H+ frigis til miljøet • Acetylgruppen er nå bundet til lipoylarmen med thioesterbinding, en høyenergi binding
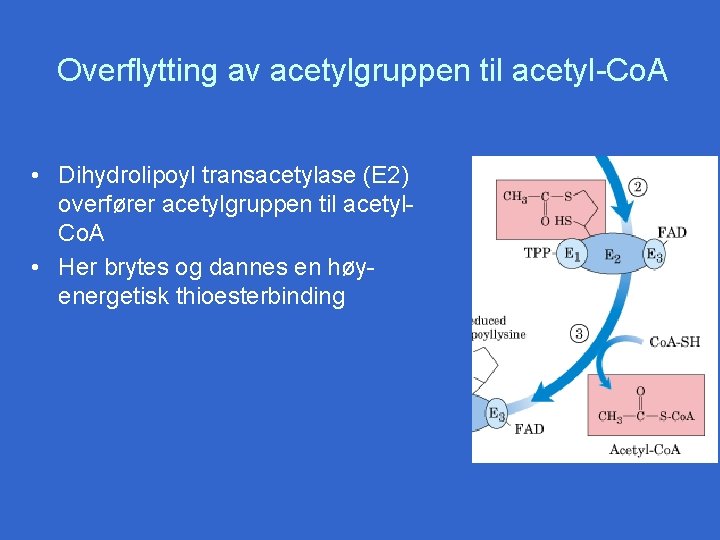
Overflytting av acetylgruppen til acetyl-Co. A • Dihydrolipoyl transacetylase (E 2) overfører acetylgruppen til acetyl. Co. A • Her brytes og dannes en høyenergetisk thioesterbinding
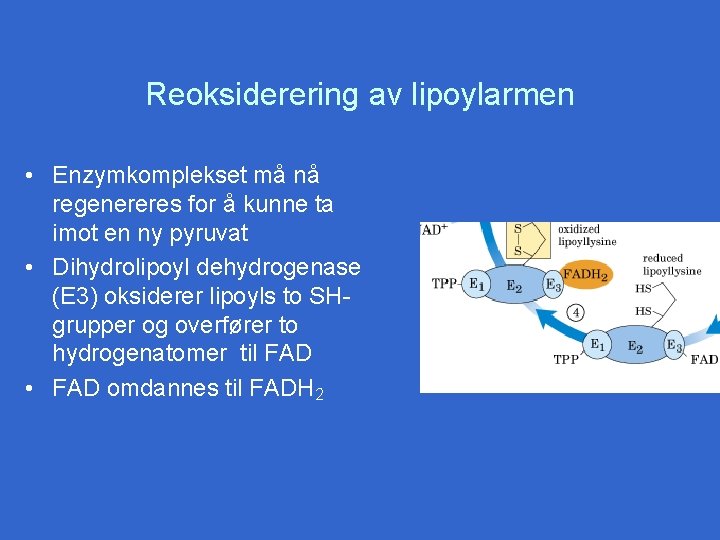
Reoksiderering av lipoylarmen • Enzymkomplekset må nå regenereres for å kunne ta imot en ny pyruvat • Dihydrolipoyl dehydrogenase (E 3) oksiderer lipoyls to SHgrupper og overfører to hydrogenatomer til FAD • FAD omdannes til FADH 2
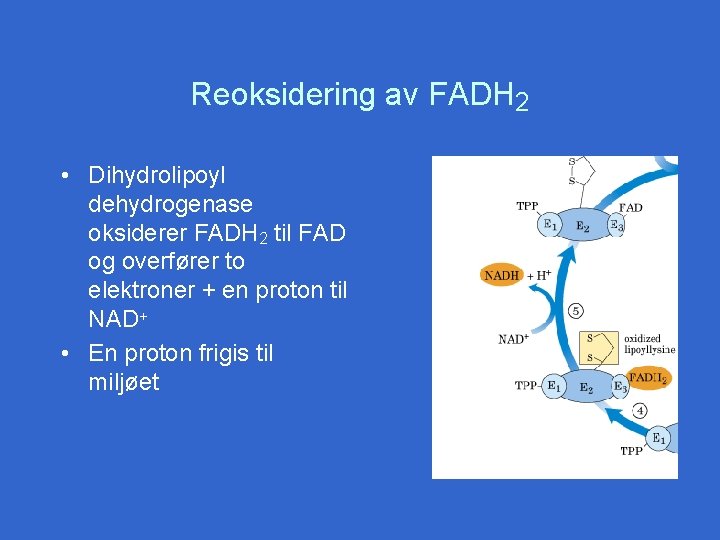
Reoksidering av FADH 2 • Dihydrolipoyl dehydrogenase oksiderer FADH 2 til FAD og overfører to elektroner + en proton til NAD+ • En proton frigis til miljøet
Lipoylarmen spiller sentral rolle • Lipoylarmen som sitter på enzym E 2, dihydrolipoyl transacetylase, spiller en sentral rolle i funksjonen til dette enzymkompleks • Lipoylarmen flytter substratet mellom E 1 og acetyl. Co. A. Dette er substratkanalisering, dvs substratet forlater ikke enzymkomplekset før det er ferdig bearbeidet av alle enzymene. • Lipoylarmen flytter elektroner og protoner mellom kofaktoren til E 1 og kofaktoren til E 3
Regulering av pyruvat dehydrogenase komplekset • PDK tilhører ikke direkte SSS, men reguleringen av det er tett knyttet til SSS • Når nivået av acetyl-Co. A øker hemmes PDK. Dette fordi acetyl-Co. A også dannes ved nedbryting av andre substrater (fettsyrer, aminosyrer) • Allosteriske hemmere: Acetyl-Co. A, ATP, NADH. Fettsyrer forsterker denne hemming • Allosteriske aktivatorer: AMP, ADP, NAD+, Ca 2+ , Co. A • Kovalent modifikasjon: Reversibel fosforylering av E 1 (Ser) – Fosforylering hemmer aktivitet. Kinasen aktiveres allosterisk av ATP – Defosforylering gjenskaper normal aktivitet. Fosfatasen er aktiv hele tiden
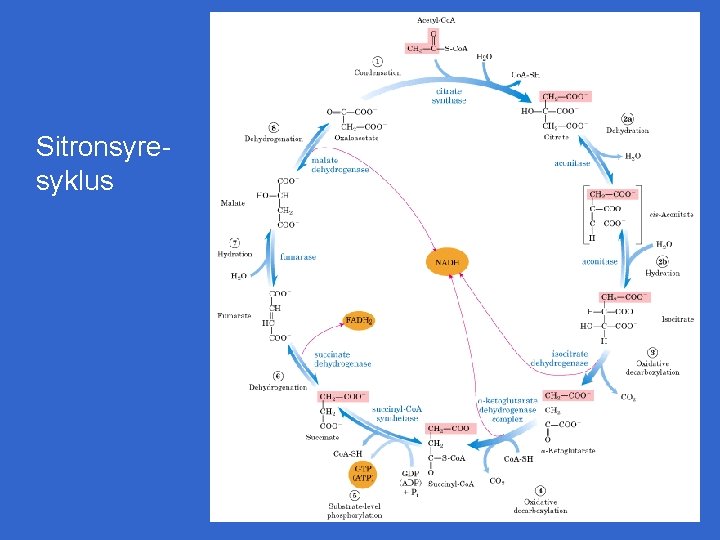
Sitronsyresyklus
Overblikk over sitronsyre syklus • SSS er en reell syklus (glykolysen er liniær) • SSS består av 8 reaksjoner • Når en ny acetylgruppe sendes inn i SSS, koples den til et intermediat med 4 C-atomer, oksaloacetat • Det 6 C-atom intermediat som oppstår gir fra seg et CO 2 og 2 H-atomer to ganger. Andre gangen koples det på et Co. A. Dette frigis igjen i en prosess hvor GDP fosforyleres til GTP. Det avgis 2 H-atomer to ganger til og til sist er oksaloacetat gjendannet
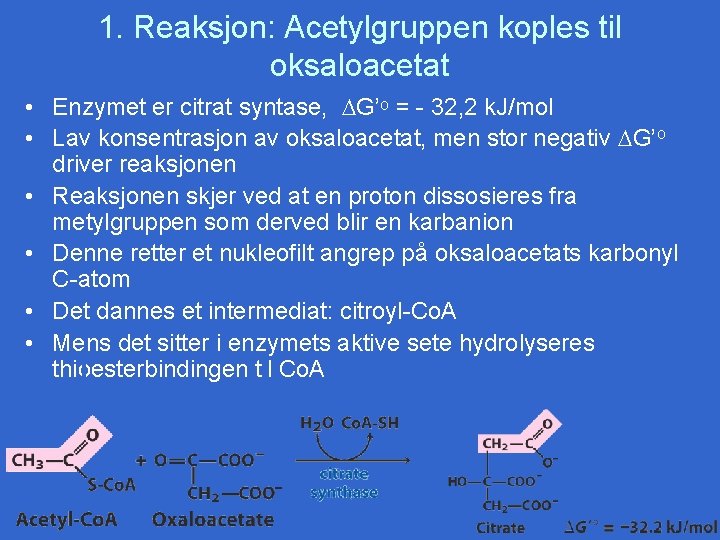
1. Reaksjon: Acetylgruppen koples til oksaloacetat • Enzymet er citrat syntase, G’o = - 32, 2 k. J/mol • Lav konsentrasjon av oksaloacetat, men stor negativ G’o driver reaksjonen • Reaksjonen skjer ved at en proton dissosieres fra metylgruppen som derved blir en karbanion • Denne retter et nukleofilt angrep på oksaloacetats karbonyl C-atom • Det dannes et intermediat: citroyl-Co. A • Mens det sitter i enzymets aktive sete hydrolyseres thioesterbindingen til Co. A
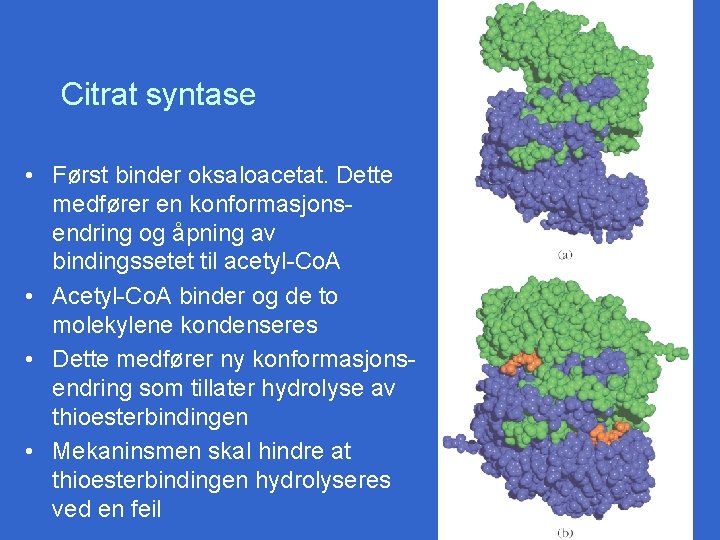
Citrat syntase • Først binder oksaloacetat. Dette medfører en konformasjonsendring og åpning av bindingssetet til acetyl-Co. A • Acetyl-Co. A binder og de to molekylene kondenseres • Dette medfører ny konformasjonsendring som tillater hydrolyse av thioesterbindingen • Mekaninsmen skal hindre at thioesterbindingen hydrolyseres ved en feil

2. Reaksjon: Citrat isomeriseres til isocitrat • Enzymet aconitase katalyserer isomerise-ringen via intermediatet cis-aconitat • G’o = 13, 3 k. J/mol • Reaksjonsmekanismen er en dehydrering og en rehydering og resulterer i flytting av en OH-gruppe • Enzymet er et jern-svovl protein. I det aktive setet har det et jern -svovl senter som deltar i fjerning og gjeninnsetting av H 2 O
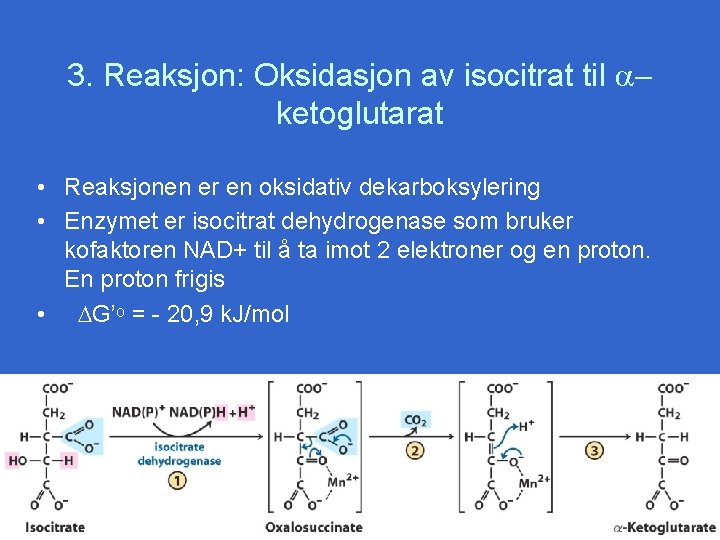
3. Reaksjon: Oksidasjon av isocitrat til aketoglutarat • Reaksjonen er en oksidativ dekarboksylering • Enzymet er isocitrat dehydrogenase som bruker kofaktoren NAD+ til å ta imot 2 elektroner og en proton. En proton frigis • G’o = - 20, 9 k. J/mol
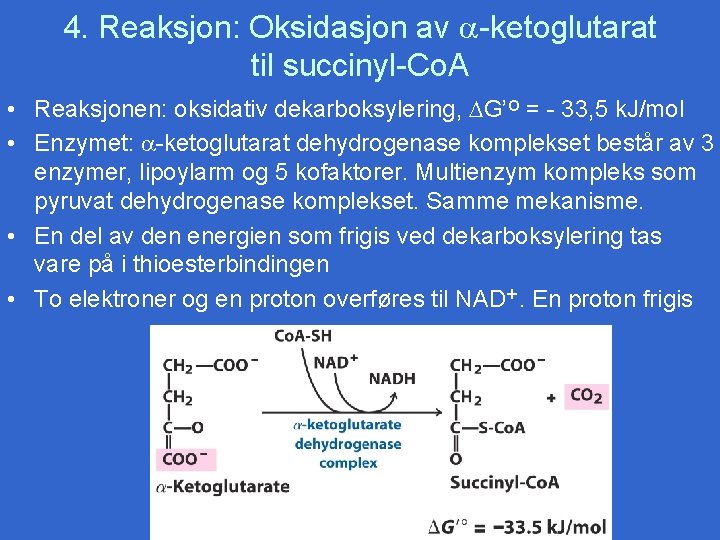
4. Reaksjon: Oksidasjon av a-ketoglutarat til succinyl-Co. A • Reaksjonen: oksidativ dekarboksylering, G’o = - 33, 5 k. J/mol • Enzymet: a-ketoglutarat dehydrogenase komplekset består av 3 enzymer, lipoylarm og 5 kofaktorer. Multienzym kompleks som pyruvat dehydrogenase komplekset. Samme mekanisme. • En del av den energien som frigis ved dekarboksylering tas vare på i thioesterbindingen • To elektroner og en proton overføres til NAD+. En proton frigis
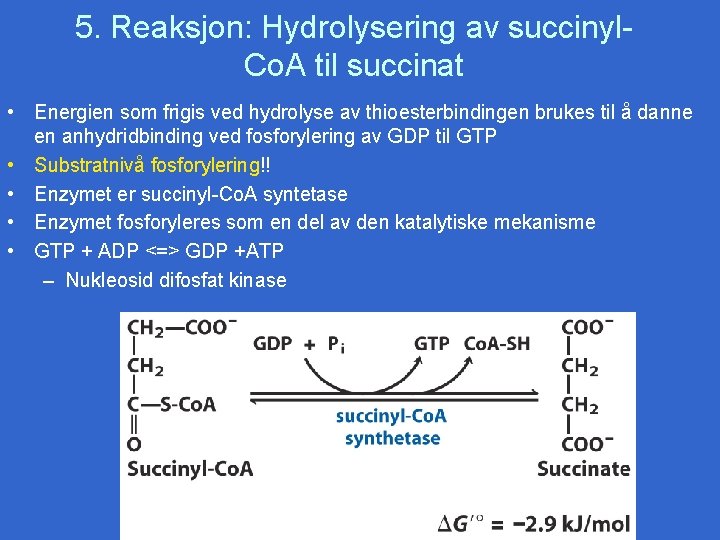
5. Reaksjon: Hydrolysering av succinyl. Co. A til succinat • Energien som frigis ved hydrolyse av thioesterbindingen brukes til å danne en anhydridbinding ved fosforylering av GDP til GTP • Substratnivå fosforylering!! • Enzymet er succinyl-Co. A syntetase • Enzymet fosforyleres som en del av den katalytiske mekanisme • GTP + ADP <=> GDP +ATP – Nukleosid difosfat kinase
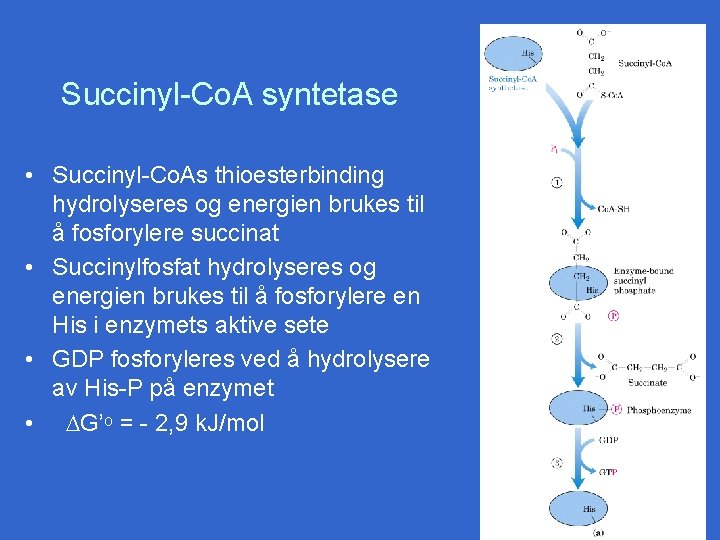
Succinyl-Co. A syntetase • Succinyl-Co. As thioesterbinding hydrolyseres og energien brukes til å fosforylere succinat • Succinylfosfat hydrolyseres og energien brukes til å fosforylere en His i enzymets aktive sete • GDP fosforyleres ved å hydrolysere av His-P på enzymet • G’o = - 2, 9 k. J/mol
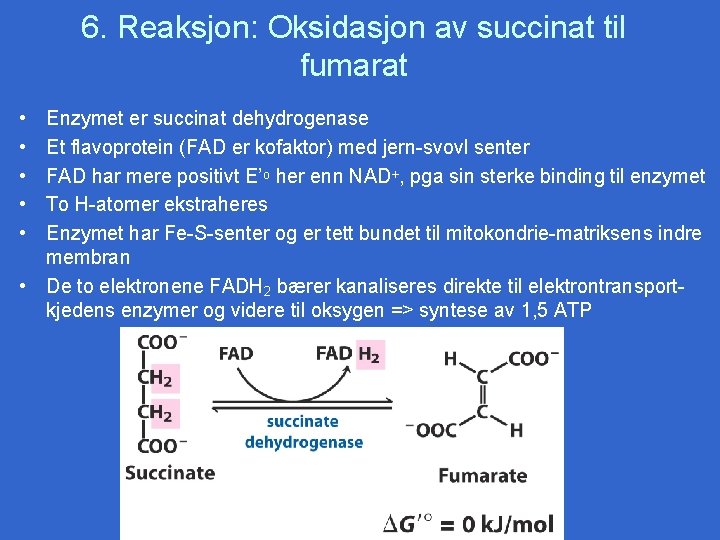
6. Reaksjon: Oksidasjon av succinat til fumarat • • • Enzymet er succinat dehydrogenase Et flavoprotein (FAD er kofaktor) med jern-svovl senter FAD har mere positivt E’o her enn NAD+, pga sin sterke binding til enzymet To H-atomer ekstraheres Enzymet har Fe-S-senter og er tett bundet til mitokondrie-matriksens indre membran • De to elektronene FADH 2 bærer kanaliseres direkte til elektrontransportkjedens enzymer og videre til oksygen => syntese av 1, 5 ATP
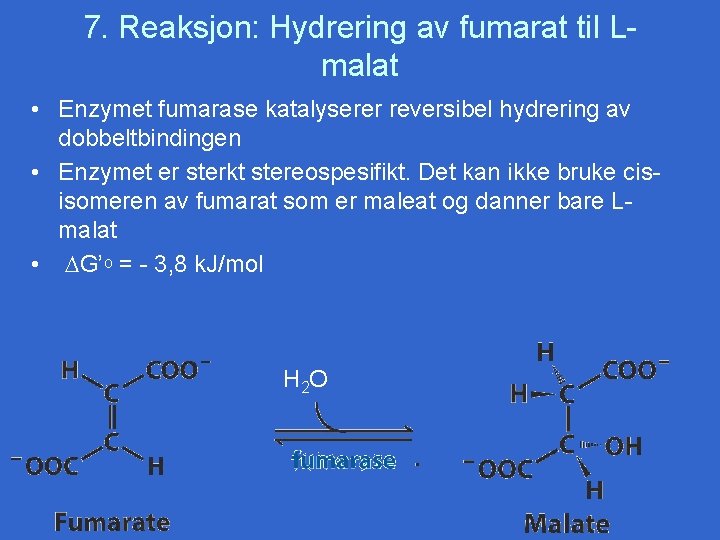
7. Reaksjon: Hydrering av fumarat til Lmalat • Enzymet fumarase katalyserer reversibel hydrering av dobbeltbindingen • Enzymet er sterkt stereospesifikt. Det kan ikke bruke cisisomeren av fumarat som er maleat og danner bare Lmalat • G’o = - 3, 8 k. J/mol H 2 O
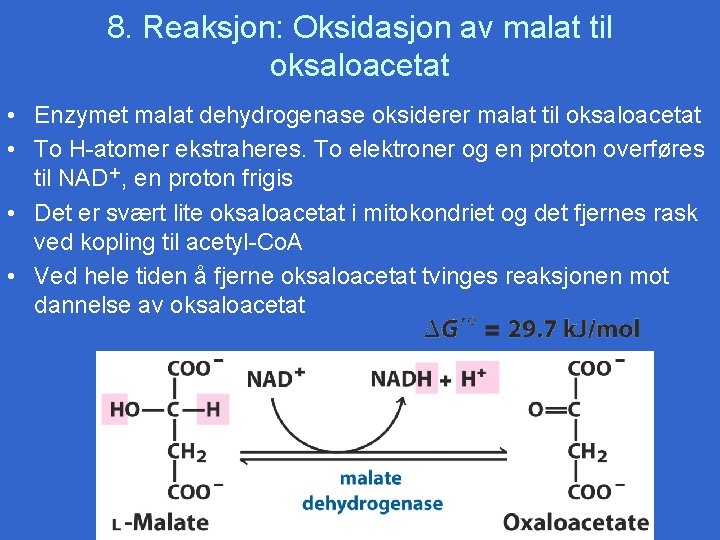
8. Reaksjon: Oksidasjon av malat til oksaloacetat • Enzymet malat dehydrogenase oksiderer malat til oksaloacetat • To H-atomer ekstraheres. To elektroner og en proton overføres til NAD+, en proton frigis • Det er svært lite oksaloacetat i mitokondriet og det fjernes rask ved kopling til acetyl-Co. A • Ved hele tiden å fjerne oksaloacetat tvinges reaksjonen mot dannelse av oksaloacetat
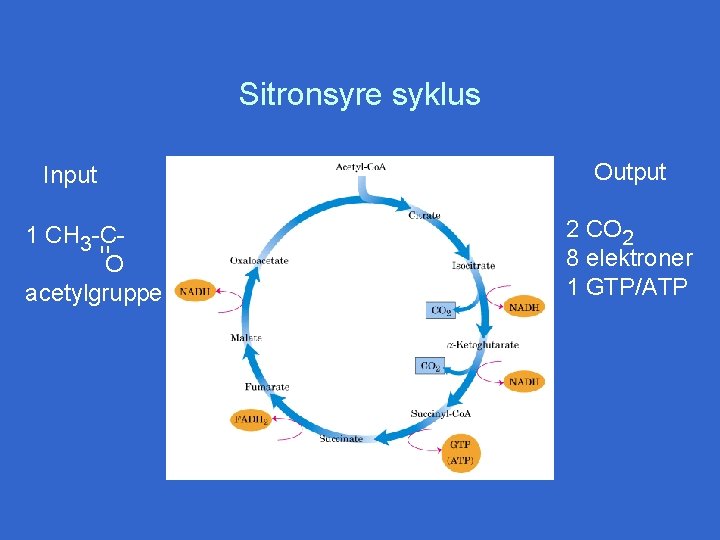
Sitronsyre syklus Input 1 CH 3 -CO acetylgruppe Output 2 CO 2 8 elektroner 1 GTP/ATP
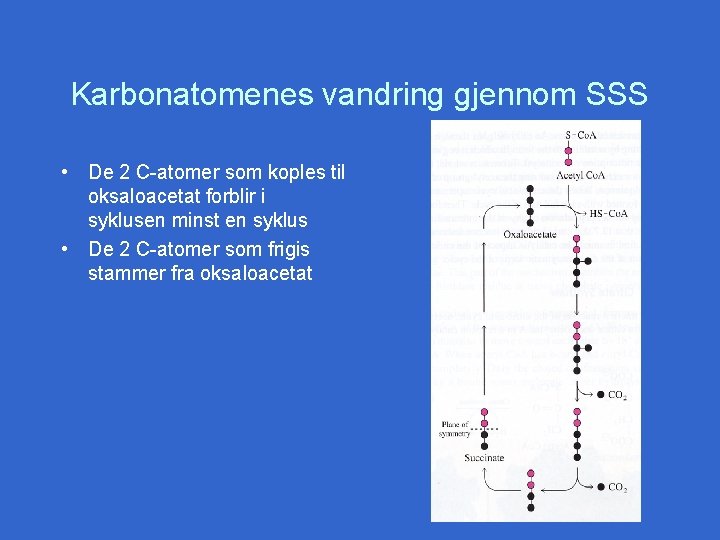
Karbonatomenes vandring gjennom SSS • De 2 C-atomer som koples til oksaloacetat forblir i syklusen minst en syklus • De 2 C-atomer som frigis stammer fra oksaloacetat
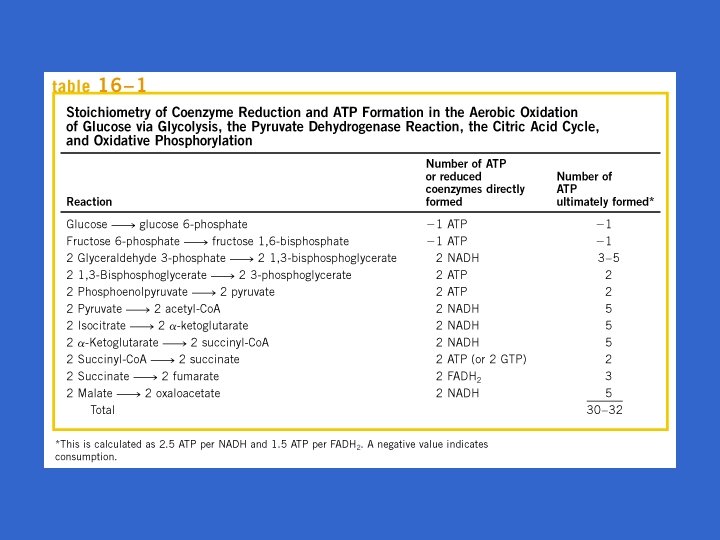
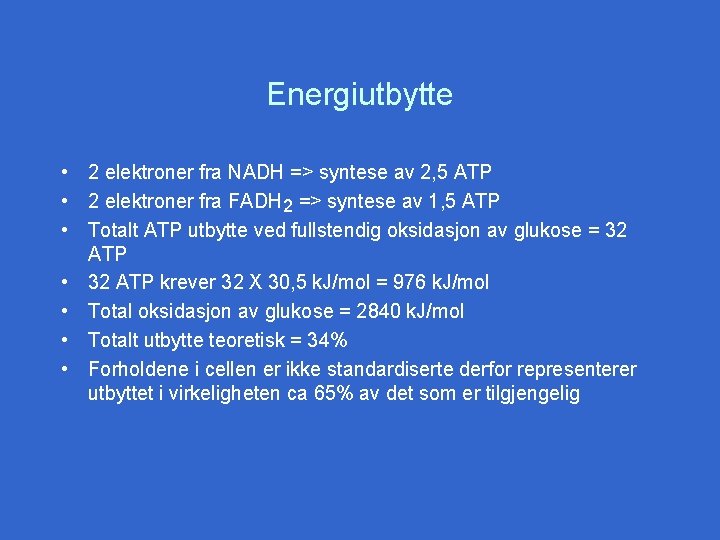
Energiutbytte • 2 elektroner fra NADH => syntese av 2, 5 ATP • 2 elektroner fra FADH 2 => syntese av 1, 5 ATP • Totalt ATP utbytte ved fullstendig oksidasjon av glukose = 32 ATP • 32 ATP krever 32 X 30, 5 k. J/mol = 976 k. J/mol • Total oksidasjon av glukose = 2840 k. J/mol • Totalt utbytte teoretisk = 34% • Forholdene i cellen er ikke standardiserte derfor representerer utbyttet i virkeligheten ca 65% av det som er tilgjengelig
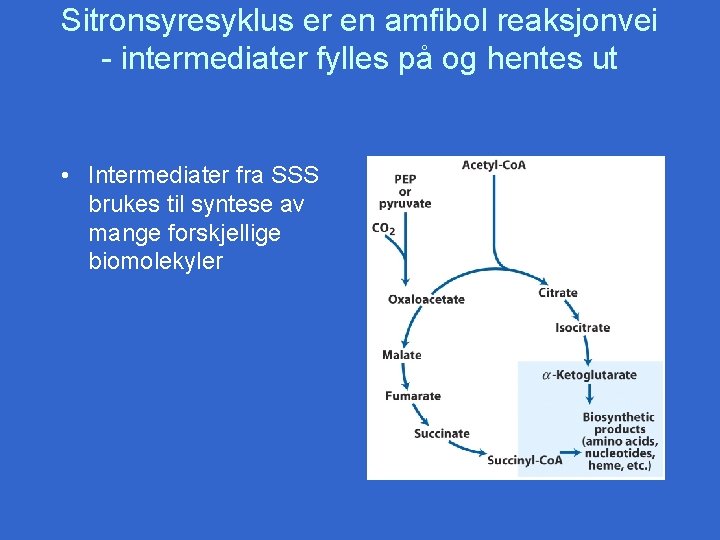
Sitronsyresyklus er en amfibol reaksjonvei - intermediater fylles på og hentes ut • Intermediater fra SSS brukes til syntese av mange forskjellige biomolekyler
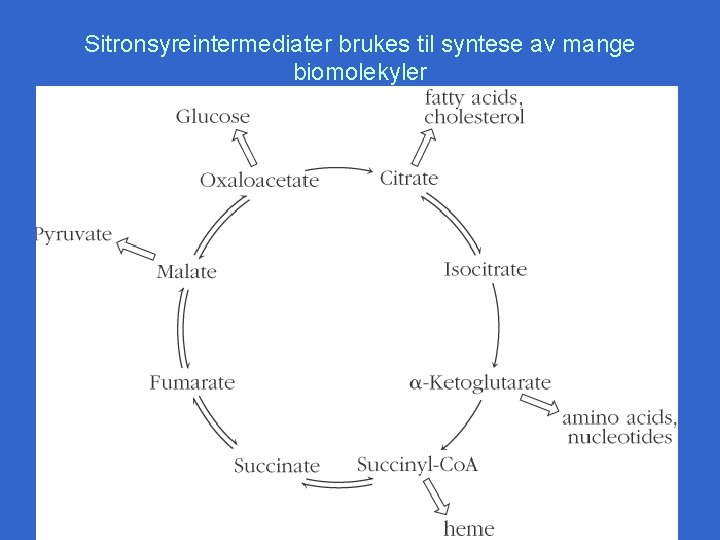
Sitronsyreintermediater brukes til syntese av mange biomolekyler
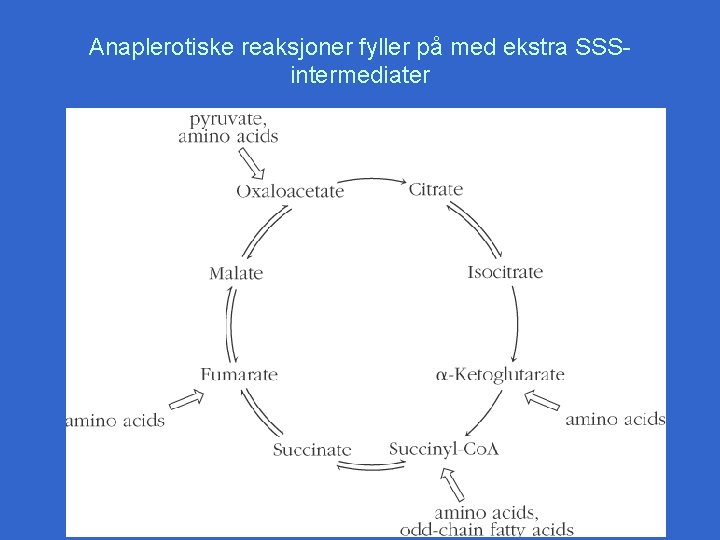
Anaplerotiske reaksjoner fyller på med ekstra SSSintermediater
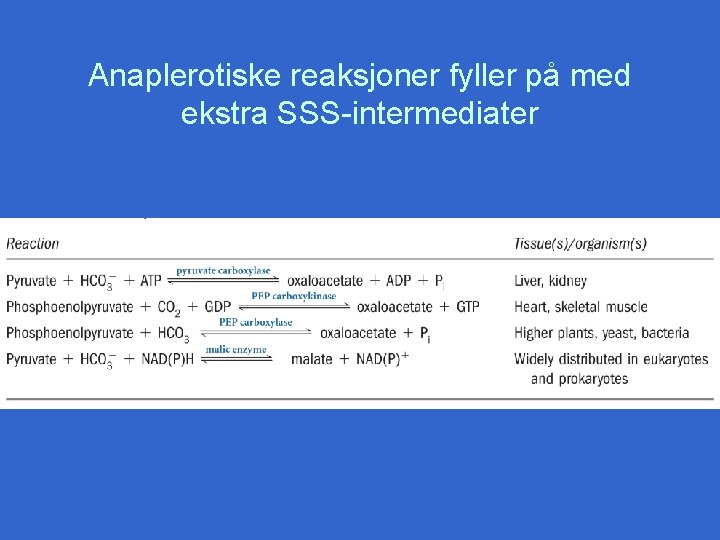
Anaplerotiske reaksjoner fyller på med ekstra SSS-intermediater
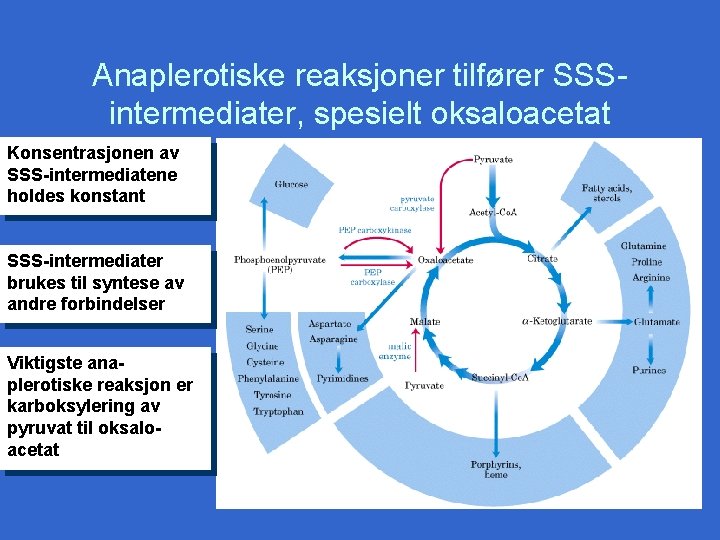
Anaplerotiske reaksjoner tilfører SSSintermediater, spesielt oksaloacetat Konsentrasjonen av SSS-intermediatene holdes konstant SSS-intermediater brukes til syntese av andre forbindelser Viktigste anaplerotiske reaksjon er karboksylering av pyruvat til oksaloacetat
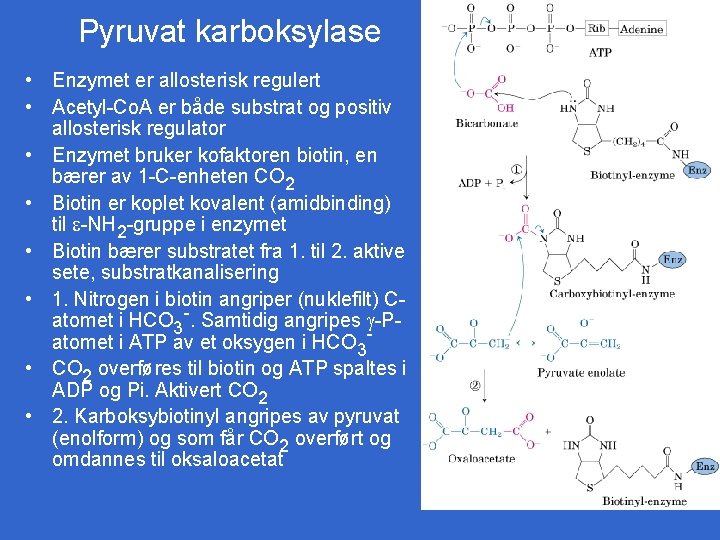
Pyruvat karboksylase • Enzymet er allosterisk regulert • Acetyl-Co. A er både substrat og positiv allosterisk regulator • Enzymet bruker kofaktoren biotin, en bærer av 1 -C-enheten CO 2 • Biotin er koplet kovalent (amidbinding) til -NH 2 -gruppe i enzymet • Biotin bærer substratet fra 1. til 2. aktive sete, substratkanalisering • 1. Nitrogen i biotin angriper (nuklefilt) Catomet i HCO 3 -. Samtidig angripes -Patomet i ATP av et oksygen i HCO 3 • CO 2 overføres til biotin og ATP spaltes i ADP og Pi. Aktivert CO 2 • 2. Karboksybiotinyl angripes av pyruvat (enolform) og som får CO 2 overført og omdannes til oksaloacetat
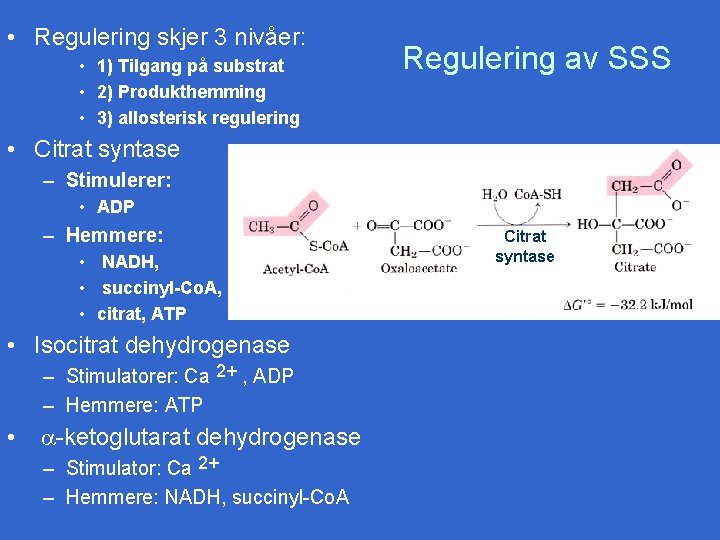
• Regulering skjer 3 nivåer: • 1) Tilgang på substrat • 2) Produkthemming • 3) allosterisk regulering Regulering av SSS • Citrat syntase – Stimulerer: • ADP – Hemmere: • NADH, • succinyl-Co. A, • citrat, ATP • Isocitrat dehydrogenase – Stimulatorer: Ca 2+ , ADP – Hemmere: ATP • a-ketoglutarat dehydrogenase – Stimulator: Ca 2+ – Hemmere: NADH, succinyl-Co. A Citrat syntase
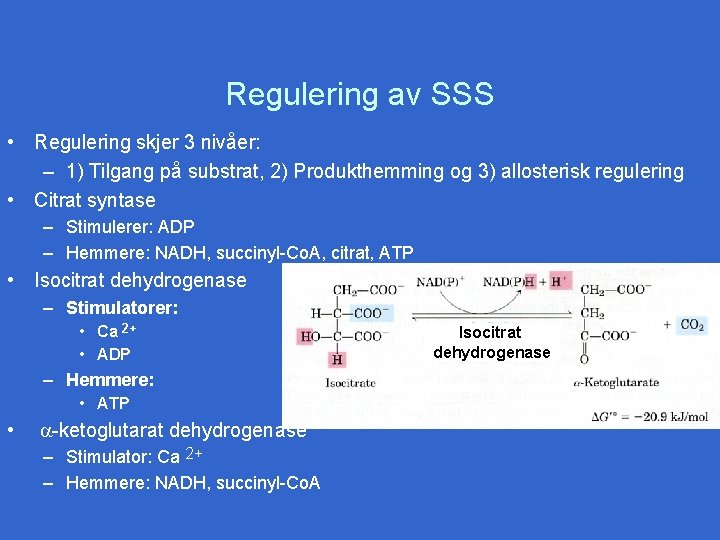
Regulering av SSS • Regulering skjer 3 nivåer: – 1) Tilgang på substrat, 2) Produkthemming og 3) allosterisk regulering • Citrat syntase – Stimulerer: ADP – Hemmere: NADH, succinyl-Co. A, citrat, ATP • Isocitrat dehydrogenase – Stimulatorer: • Ca 2+ • ADP – Hemmere: • ATP • a-ketoglutarat dehydrogenase – Stimulator: Ca 2+ – Hemmere: NADH, succinyl-Co. A Isocitrat dehydrogenase
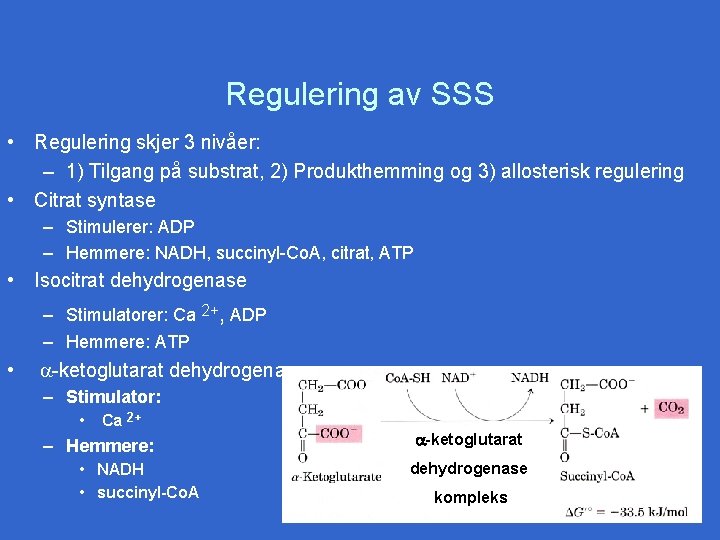
Regulering av SSS • Regulering skjer 3 nivåer: – 1) Tilgang på substrat, 2) Produkthemming og 3) allosterisk regulering • Citrat syntase – Stimulerer: ADP – Hemmere: NADH, succinyl-Co. A, citrat, ATP • Isocitrat dehydrogenase – Stimulatorer: Ca 2+, ADP – Hemmere: ATP • a-ketoglutarat dehydrogenase – Stimulator: • Ca 2+ – Hemmere: • NADH • succinyl-Co. A -ketoglutarat dehydrogenase kompleks
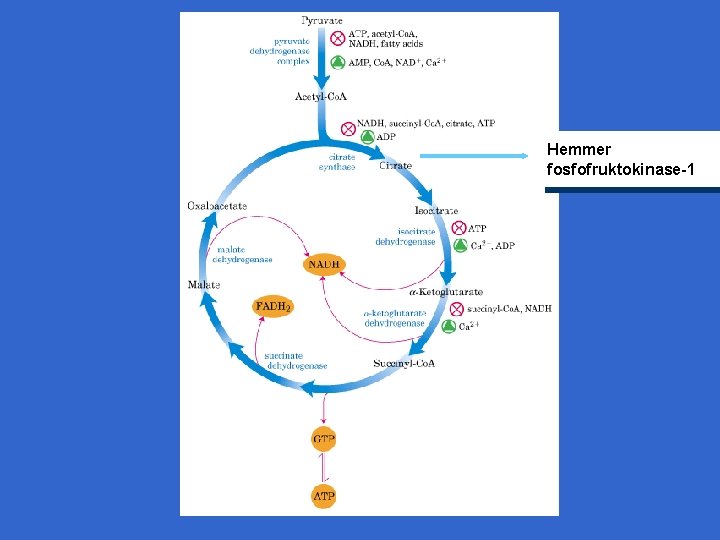
Hemmer fosfofruktokinase-1
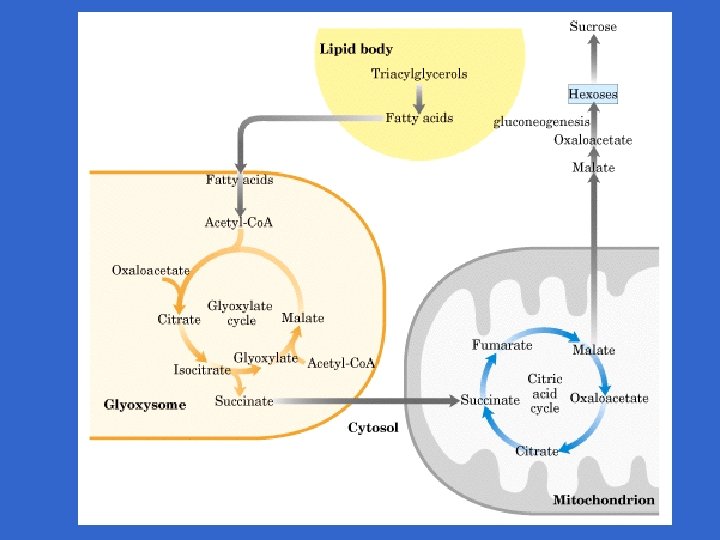
Glyoksylat syklus Omdannelse av fett til karbohydrat
Glyoksylat syklus • Omdanner acetyl-Co. A til succinat og derfra videre til glukose • Muliggjør omdannelse av fett til karbohydrat • Finnes ikke hos mennesker og høyerestående dyr – Ingen netto omdannelse av acetyl-Co. A til oksaloacetat i SSS – Kan ikke hente ut oksaloacetat og omdanne det til glukose for da stopper SSS • Finnes hos planter og mikroorganismer, f. eks. bakterier og gjær • Foregår i glyoksysomer, membranomkranset organelle • Har flere enzymer til felles med SSS men de er isoenzymer • Hos planter er det bare de celler som trenger glyoksylat syklus som har glyoksysomer og bare i definerte tidsrom, f. eks. under spiring
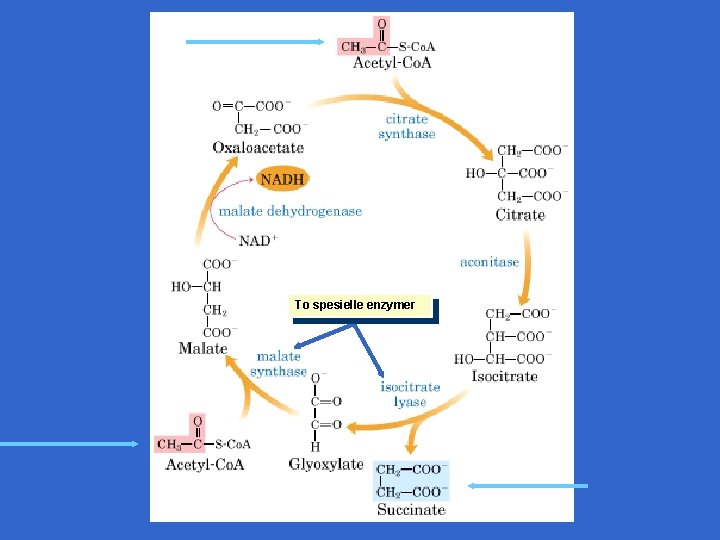
To spesielle enzymer
Glyoksylat syklus • Isocitrat lyase og malat syntase finnes bare i organismer med glyoksylat syklus • For hver omgang i syklusen tas det inn to acetatgrupper og dannes en succinat • Succinat kan omdannes til oksaloacetat (SSS enzymer) og glukose
- Slides: 54