
PROTOONKOGEN ONKOGEN VE TMR SUPRESR GENLER Hcre dngs
- Slides: 41
PROTOONKOGEN, ONKOGEN VE TÜMÖR SUPRESÖR GENLER
• Hücre döngüsü ile ilişkili olarak kanser gelişiminde rol oynayan genler başlıca iki gruba ayrılmaktadır; 1. Onkogenler 2. Tümör baskılayıcı genler (Antionkogenler) • Kanser hücrelerinde bu iki gen grubu ya mutasyona uğrar ya da yanlış ifadelenir.
Protoonkogenler • Hücre büyümesini ve bölünmesini ilerleten genlerdir. • Belli başlı işlevleri; ü Transkripsiyon faktörleri ü Büyüme faktörü ve büyüme faktörü reseptörleri ü Apoptozisin baskılanması ü Kromatinin modifiye edilmesi ü Hücre içi sinyal iletimi ü Membranla ilişkili G proteinleri • Ürünleri plazma zarında, sitoplazmada ya da çekirdekte bulunabilir. • Bu ürünlerin aktiviteleri transkripsiyon, translasyon ve protein modifikasyonu seviyelerinde yapılan düzenlemenin de içinde bulunduğu çok çeşitli yollarla kontrol edilmektedir.
• Hücreler sessiz döneme (G 0 evresi) girdiklerinde ve bölünmeyi sona erdirdiklerinde, birçok protoonkogen ürününün ifadesi de baskılanır. • Ancak kanser hücrelerinde bir ya da daha fazla protoonkogenin üzerindeki bu baskı ortadan kalkar ve bu genlerin aktiviteleri normal bir şekilde kontrol edilemez ve ürünleri devamlı olarak hücreyi bölünmesi için uyarır. Onkogenler • Bir protoonkogen mutasyona uğradığında ya da hatalı ifade edildiğinde ve kanser gelişimine katkıda bulunduğunda onkogen olarak adlandırılır. • Bir kısım onkogen, hücreyi programlanmış hücre ölümü olan apopitozisten korur, diğerleri ise büyüme faktör gereksinimini azaltarak hücrenin sürekli proliferasyonunu sağlar. • Onkogenler genelde üç harf ile tanımlanırlar. (myc, ras gibi) • İlk tanımlandıklarında onkogenlerin kökenine göre, virüs kökenli olanlar için v-, hücre veya kromozom kökenli olanlar için c- ekleri kullanılmaktadır.
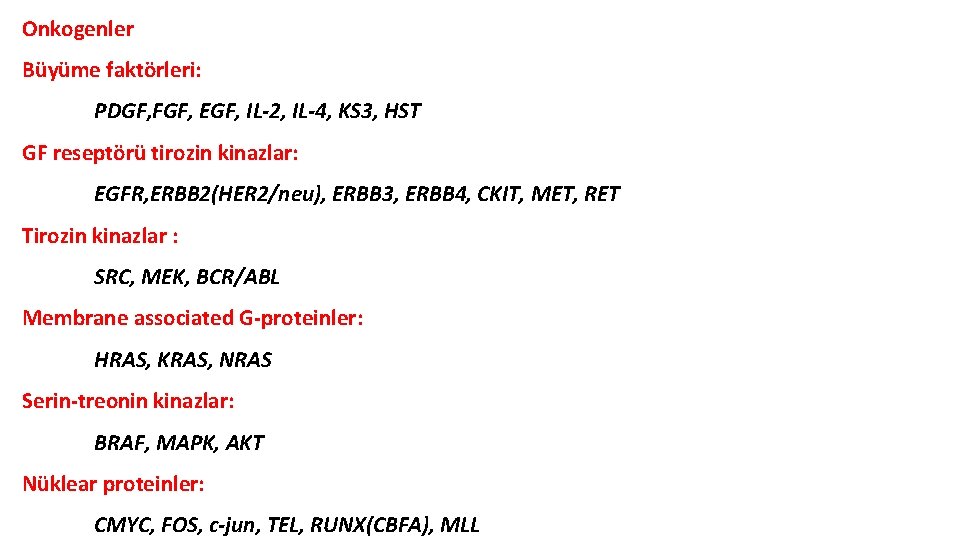
Onkogenler Büyüme faktörleri: PDGF, FGF, EGF, IL-2, IL-4, KS 3, HST GF reseptörü tirozin kinazlar: EGFR, ERBB 2(HER 2/neu), ERBB 3, ERBB 4, CKIT, MET, RET Tirozin kinazlar : SRC, MEK, BCR/ABL Membrane associated G-proteinler: HRAS, KRAS, NRAS Serin-treonin kinazlar: BRAF, MAPK, AKT Nüklear proteinler: CMYC, FOS, c-jun, TEL, RUNX(CBFA), MLL
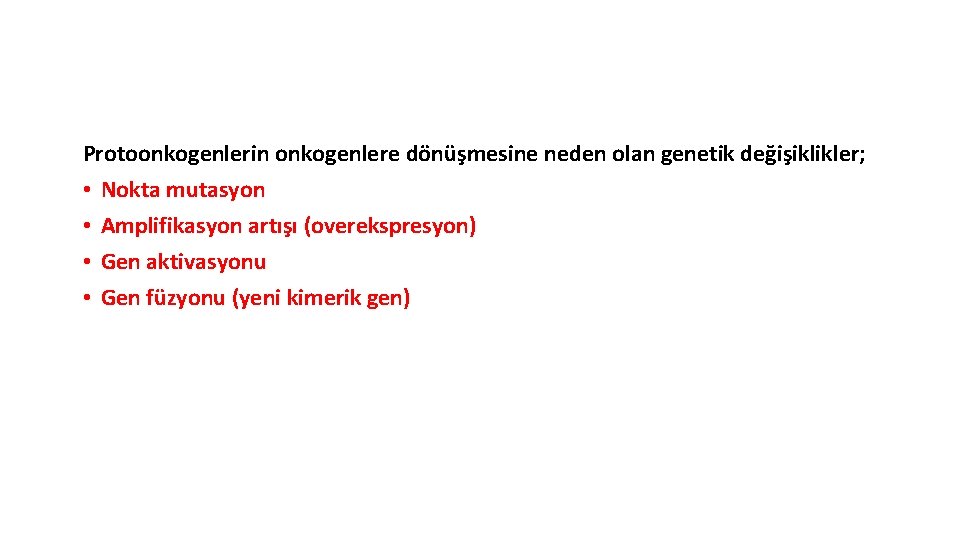
Protoonkogenlerin onkogenlere dönüşmesine neden olan genetik değişiklikler; • Nokta mutasyon • Amplifikasyon artışı (overekspresyon) • Gen aktivasyonu • Gen füzyonu (yeni kimerik gen)
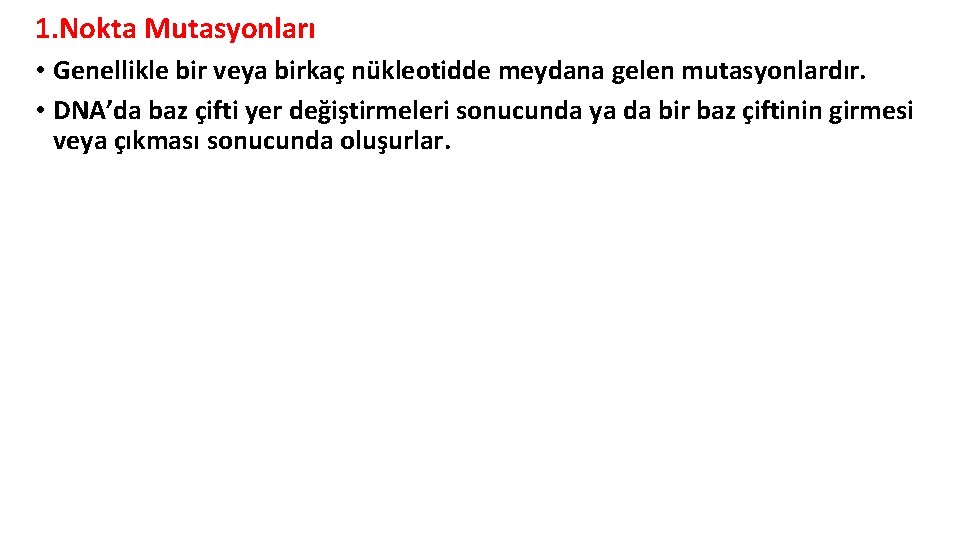
1. Nokta Mutasyonları • Genellikle bir veya birkaç nükleotidde meydana gelen mutasyonlardır. • DNA’da baz çifti yer değiştirmeleri sonucunda ya da bir baz çiftinin girmesi veya çıkması sonucunda oluşurlar.
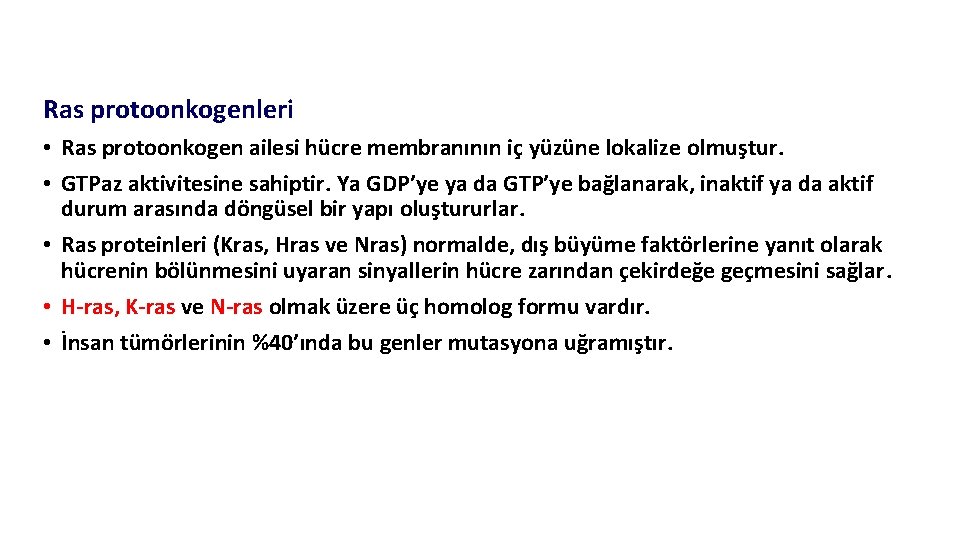
Ras protoonkogenleri • Ras protoonkogen ailesi hücre membranının iç yüzüne lokalize olmuştur. • GTPaz aktivitesine sahiptir. Ya GDP’ye ya da GTP’ye bağlanarak, inaktif ya da aktif durum arasında döngüsel bir yapı oluştururlar. • Ras proteinleri (Kras, Hras ve Nras) normalde, dış büyüme faktörlerine yanıt olarak hücrenin bölünmesini uyaran sinyallerin hücre zarından çekirdeğe geçmesini sağlar. • H-ras, K-ras ve N-ras olmak üzere üç homolog formu vardır. • İnsan tümörlerinin %40’ında bu genler mutasyona uğramıştır.
Ras protoonkogenleri • Bir hücre bir büyüme faktörü ile karşılaştığında, hücre zarında bulunan büyüme faktörü reseptörleri büyüme faktörüne bağlanır ve büyüme faktörü reseptörünün sitoplazmaya bakan kısmı otofosforilasyona uğrar. • Bu durum nükleotit değişim faktörleri olarak bilinen proteinlerin plazma zarına yerleşmesine yol açar. Nükleotit değişim faktörleri (GEF), Ras’ın GDP’yi bırakıp salmasına ve GTP’ye bağlanmasına neden olur. Böylece Ras aktive olur. • Ras’ın GTP bağlı aktif formu, sitoplazmadaki bir dizi proteinlerin fosforilasyonu için gerekli sinyali gönderir ve çekirdekteki transkripsiyon faktörleri uyarılır. • Ras sinyallerini bir kez daha çekirdeğe gönderdiğinde GTP GDP’ye hidroliz olur ve inaktif forma geçer.
• Spesifik Ras geni mutasyonları kolon, akciğer, meme ve mesane kanserleri gibi birçok farklı kanser hücrelerinde sıklıkla gözlenir ve neredeyse tüm olgularda kodon 12, 13 ve 61’de saptanır. • Bu mutasyonlar, GTP’nin GDP’ye hidrolizini engellerler ve böylece Ras proteinini aktif formda tutarak hücreyi sürekli bölünmeye teşvik ederler.
BRAF • Nokta mutasyonlar sonrasında aktive olan diğer bir onkogen olup bir tirozin kinazı kodlar. • Aktivasyon sonrasında; sırasıyla MEK (MAPKK) ve ERK (MAPK) kinazların aktivasyonu gözlenir. Bu aktivasyon zinciri sonrasında transkripsiyon faktörlerinin ekspresyonu artar. • Malign melanomaların %70’i ile farklı tümör tiplerinin birçoğunda Braf geninin kinaz domaininde meydana gelen aminoasit değişiklikleri mevcuttur. • Olguların çoğunda kodon 600 mutasyonları saptanmaktadır. • Bununla birlikte; bazen bir gen füzyonu sonrasında da aktive olabilir.
2. Amplifikasyon • Birçok kanser hücresi, yapısal olarak normal bir onkogenin multipl kopyalarını içerir. • Meme kanserlerinde sıklıkla gözlenen ERBB 2 (HER 2) ile daha nadir saptanan TOP 2 A ve MYC amplifikasyonları ve akciğer kanserlerinde gözlenen EGFR amplifikasyonları bunlardan bazılarıdır. • Amplifikasyon gözlenen hücrelerde bazen yüzlerce kopya gözlenebilir. • Hangi şekilde meydana gelirse gelsin sonuçta ilgili genin ürettiği protein miktarında büyük artışlar gözlenir.
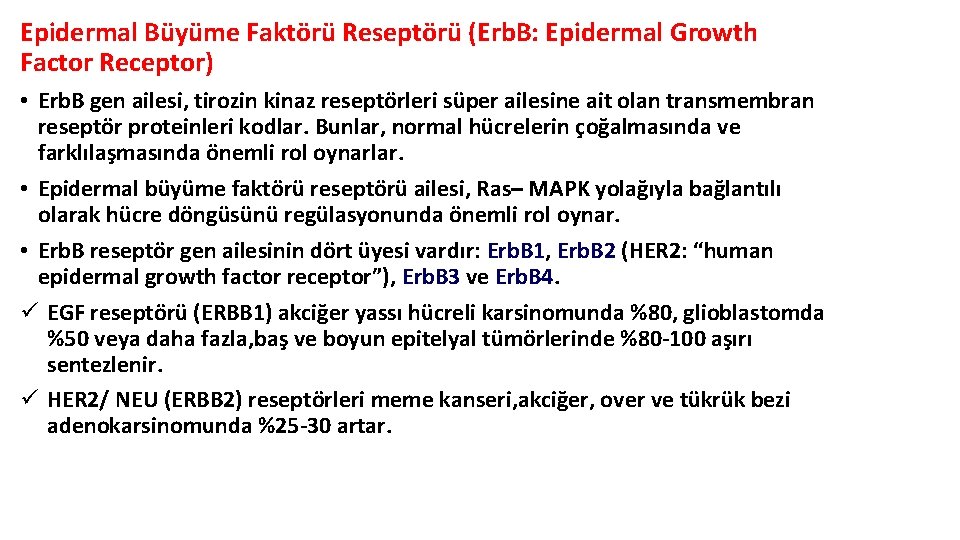
Epidermal Büyüme Faktörü Reseptörü (Erb. B: Epidermal Growth Factor Receptor) • Erb. B gen ailesi, tirozin kinaz reseptörleri süper ailesine ait olan transmembran reseptör proteinleri kodlar. Bunlar, normal hücrelerin çoğalmasında ve farklılaşmasında önemli rol oynarlar. • Epidermal büyüme faktörü reseptörü ailesi, Ras– MAPK yolağıyla bağlantılı olarak hücre döngüsünü regülasyonunda önemli rol oynar. • Erb. B reseptör gen ailesinin dört üyesi vardır: Erb. B 1, Erb. B 2 (HER 2: “human epidermal growth factor receptor”), Erb. B 3 ve Erb. B 4. ü EGF reseptörü (ERBB 1) akciğer yassı hücreli karsinomunda %80, glioblastomda %50 veya daha fazla, baş ve boyun epitelyal tümörlerinde %80 -100 aşırı sentezlenir. ü HER 2/ NEU (ERBB 2) reseptörleri meme kanseri, akciğer, over ve tükrük bezi adenokarsinomunda %25 -30 artar.
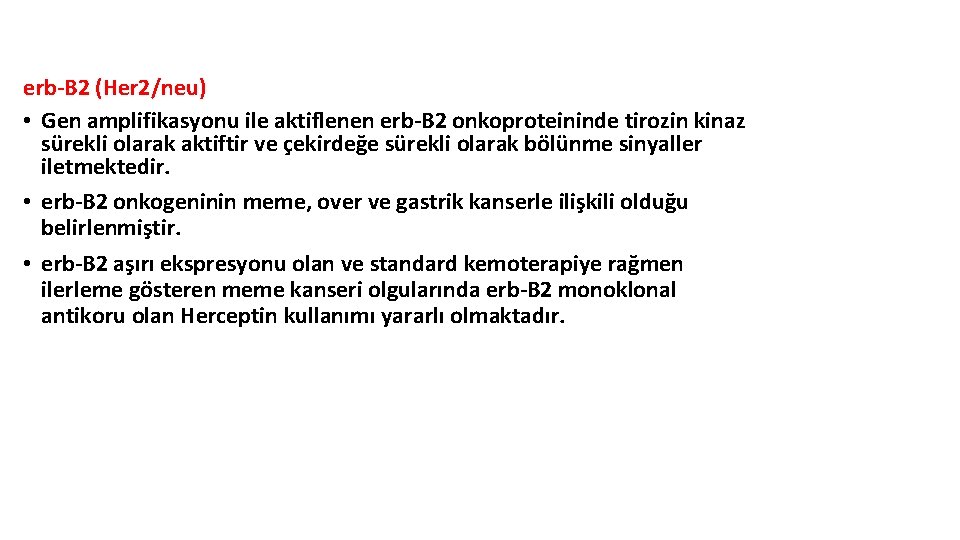
erb-B 2 (Her 2/neu) • Gen amplifikasyonu ile aktiflenen erb-B 2 onkoproteininde tirozin kinaz sürekli olarak aktiftir ve çekirdeğe sürekli olarak bölünme sinyaller iletmektedir. • erb-B 2 onkogeninin meme, over ve gastrik kanserle ilişkili olduğu belirlenmiştir. • erb-B 2 aşırı ekspresyonu olan ve standard kemoterapiye rağmen ilerleme gösteren meme kanseri olgularında erb-B 2 monoklonal antikoru olan Herceptin kullanımı yararlı olmaktadır.
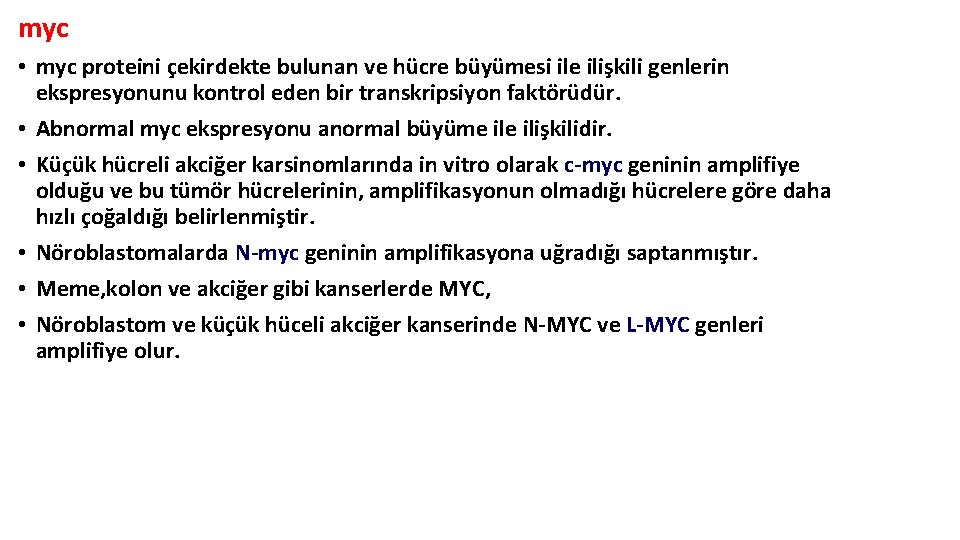
myc • myc proteini çekirdekte bulunan ve hücre büyümesi ile ilişkili genlerin ekspresyonunu kontrol eden bir transkripsiyon faktörüdür. • Abnormal myc ekspresyonu anormal büyüme ilişkilidir. • Küçük hücreli akciğer karsinomlarında in vitro olarak c-myc geninin amplifiye olduğu ve bu tümör hücrelerinin, amplifikasyonun olmadığı hücrelere göre daha hızlı çoğaldığı belirlenmiştir. • Nöroblastomalarda N-myc geninin amplifikasyona uğradığı saptanmıştır. • Meme, kolon ve akciğer gibi kanserlerde MYC, • Nöroblastom ve küçük hüceli akciğer kanserinde N-MYC ve L-MYC genleri amplifiye olur.
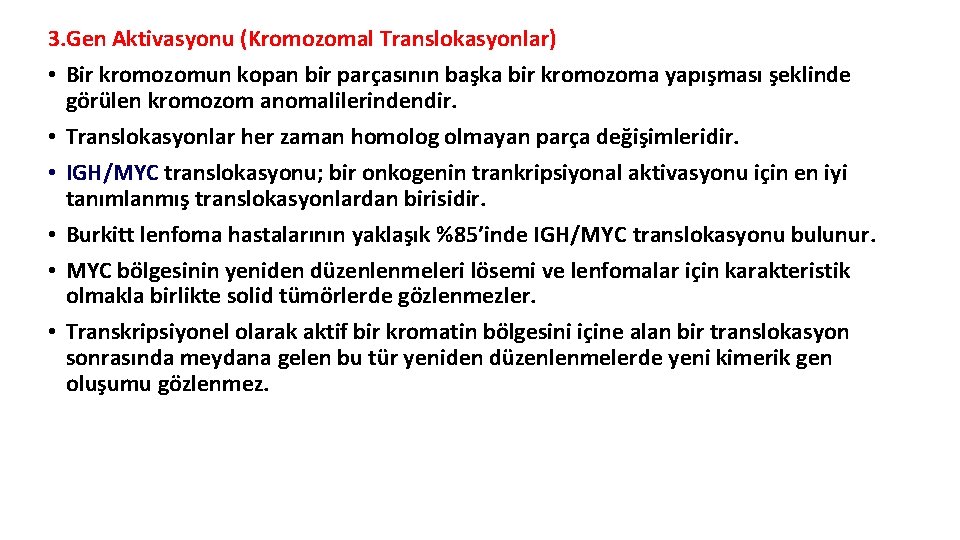
3. Gen Aktivasyonu (Kromozomal Translokasyonlar) • Bir kromozomun kopan bir parçasının başka bir kromozoma yapışması şeklinde görülen kromozom anomalilerindendir. • Translokasyonlar her zaman homolog olmayan parça değişimleridir. • IGH/MYC translokasyonu; bir onkogenin trankripsiyonal aktivasyonu için en iyi tanımlanmış translokasyonlardan birisidir. • Burkitt lenfoma hastalarının yaklaşık %85’inde IGH/MYC translokasyonu bulunur. • MYC bölgesinin yeniden düzenlenmeleri lösemi ve lenfomalar için karakteristik olmakla birlikte solid tümörlerde gözlenmezler. • Transkripsiyonel olarak aktif bir kromatin bölgesini içine alan bir translokasyon sonrasında meydana gelen bu tür yeniden düzenlenmelerde yeni kimerik gen oluşumu gözlenmez.
4. Gen Füzyonu (kimerik gen) • Günümüzde; birçok farklı tümör grubunda, kimerik onkogenlerin oluşumuyla sonuçlanan spesifik yeniden düzenlenmeler tanımlanmıştır. • Lösemi, lenfoma ve sarkomalarda %15 -25 oranında bu düzenlenmeler gözlenirken, solid epitelyal tümörlerde bu oran sadece %1’dir. Bu düşük oran, epitelyal tümörlerdeki yeniden düzenlenmelerin tanımlanmasındaki teknik zorluklar nedeniyle yanıltıcı olabilir. • Translokasyon sonucu yeni kimerik gen oluşumuna bağlı aktivasyona neden olduğu bilinen ilk yeniden düzenlenme Philedelphia (Ph) kromozomudur. • Bu oluşan kromozom küçük bir akrosentrik kromozomu yapısında olup kronik myeloid lösemili (KML) hastaların %90’ında gözlenir. • Akut lenfoblastik lösemili (ALL) hastaların %20’sinde gözlenen BCR/ABL füzyonu ise KML olgularından farklılıklar gösterir. BCR geninde meydana gelen kırık farklı bir bölgede oluşur ve meydana gelen BCR/ABL füzyon proteini (p 185) biraz daha küçüktür.
• Philedelphia (Ph) kromozomu, 9 ve 22 numaralı kromozomlar arasındaki translokasyon sonrasında meydana gelir. • 9 q 34 bölgesine yerleşmiş olan ABL 1 geninin 5’ kısmına yakın bir bölgeden kırılması sonrasında 3’ tarafında kalan parçanın, 22 q 11 BCR geninin 3’ kısmına yakın bir bölgeden kırılması ve kırılan bu bölgeye füzyonu sonrasında ortaya çıkar. • Füzyon sonrasında ortaya çıkan yeni kimerik gen, artmış tirozin kinaz aktivitesine ve anormal hücre lokalizasyonuna sahip bir ABL 1 proteininin (p 210 füzyon proteini) üretilmesine neden olur.
• Yapılan çalışmalar neticesinde şu ana kadar yaklaşık 350 geni içeren 350’den fazla farklı füzyon tanımlanmıştır. • Füzyon her zaman bir translokasyon sonucunda ortaya çıkmaz. Translokasyon neticesinde meydana gelen füzyonlar iki farklı kromozomun etkilenmesi ile oluşur. Bazı füzyonlar ise kromozomlarda meydana gelen inversiyona (ters dönme) veya daha nadiren de delesyona (parça kopması) bağlı olarak oluşur. Bu durumda tek bir kromozom üzerinde yeniden düzenlenmeler mevcuttur. • Kanser hücrelerinde meydana gelen gen füzyonları; hastalığın tanı, tedavi ve izlem aşamaları ile prognozun değerlendirilmesinde klinik olarak çok önemlidir.
Siklinler ve siklin bağımlı kinazlar • Oluşturdukları kompleks ile kritik hedef proteinleri fosforile ederek hücre siklusunu yönlendiren moleküllerdir. • Hücre siklusunda görevli siklinler ve siklin bağımlı kinazların (CDK) aktive edici mutasyonları onkogen, CDK inhibitörleri ise tümör baskılayıcı gen fonksiyonunu taklit eder. Siklin D 1 ve Siklin E protoonkogenleri • Siklinler, CDK molekülleri ile kompleksler oluştururlar ve onların aktivitelerini düzenlerler. Oluşturulan CDK/ Siklin kompleksleri hücre döngüsünün her aşamasında önemli olan düzenleyici moleküllerdir. • Birçok siklin geninin kanser gelişimi ile ilişkili olduğu bilinmektedir. • Örneğin Siklin D 1’i kodlayan gen meme, mesane, akciğer ve yemek borusu kanserlerinde amplifiye olmuştur. Yüksek seviyelerdeki siklin D 1 proteinin S fazına kontrolsüz girişlere katkıda bulunduğu düşünülmektedir. • Belirli paratiroid tümörlerde ve B hücre lenfomalarında Siklin D 1 geni, translokasyonlar gibi kromozomal anomalilerde de bulunur. Siklin D 1 genindeki bu değişimlerin anormal gen ifadelerinin ortaya çıkmasına neden olabileceği düşünülmektedir. • Siklin E geni bazı lösemilerde, meme ve kolon kanserlerinde aşırı ifade edilmektedir. Bu anahtar hücre döngüsü düzenleyicilerinin aşırı ifadesi ya da periyodik olarak parçalanma kayıpları hücrelerin hücre döngüsüne devam etmeye hazır tutulmalarını sağlar ve artık hücreler döngüyü terk edemez, G 0 hareketsiz aşamasına giremezler ya da hücre farklılaşmasına uğrayamazlar.
Telomerler ve Telomeraz Onkogeni • Kromozomların en uç bölümünü oluşturan bölgeler telomer olarak adlandırılmaktadır. • Telomerler, insanda 6 nükleotitten oluşan TTAGGG dizilerinin binlerce kopyasından meydana gelmektedir. • DNA replikasyonu insanda bidirekdiyonel ve yalnızca 5’-3’ yönünde yürüdüğünden, her bölünme sırasında belirli bir miktar telomer kısalması kaçınılmazdır. • Diğer yandan normal hücre kültürlerinde belirli bir pasaj sayısından sonra bölünme durmakta ve hücreler replikatif yaşlılık evresine girmektedir. “Hayflick limiti” olarak da adlandırılan bu olgunun telomerlerdeki kısalmayla paralellik gösterdiği saptanmıştır. • Telomeraz enzimi bu kısalmayı önlemektedir. • Bu enzim katalitik bir protein (h. TERT) ve kısa bir RNA molekülünden (h. TER) oluşmaktadır. h. TERT, RNA-bağımlı bir ters transkriptaz olup h. TER’den DNA sentezlemekte ve bu şekilde telomerik kısalma önlenmektedir.
• Telomeraz yalnızca sürekli proliferasyon halinde olması gereken lenfosit, bazal keratinosit, intestinal kript hücreleri gibi hücrelerde aktiftir. • Normalde telomeraz aktivitesi olmayan hücrelerden gelişen tümörlerde ise kontrolsüz çoğalmaya rağmen telomerik dizilerin kısalmadığı gözlenmektedir, bu tümörlerde telomeraz aktivitesi saptanmıştır. O halde telomeraz bu tümörlerde bir tür onkogen etkisi göstermektedir. • Bu bilgilerin kliniğe yansıması olarak, telomeraz aktivitesini baskılamak üzere immünoterapi, gen tedavisi ve oligonükleotit esaslı tedaviler deneme aşamasındadır. Doku örneklerinde telomeraz aktivitesinin saptanması ve immünohistokimyasal boyama ile h. TERT varlığının gösterilmesinden kanser tanısı ve prognoz kestiriminde yararlanılabileceği de belirtilmiştir.
Tümörlerde “Onkogen Bağımlılığı” • Tümörlerde bir şekilde onkogen aktivasyonunun ortaya çıkması “onkogen bağımlılığı” kavramının ortaya atılmasına neden olmuştur. Buna göre, onkogen aktivasyonu, hücrenin “malign” halinin idame ettirilmesinde kritik önem taşımaktadır. • Örneğin, MYC onkogenini eksprese eden transgenik farelerde T hücreli veya akut myeloid lösemi gelişmekte, onkogen inaktive edildiğinde ise lösemik hücrelerde proliferasyon duraklamakta, diferansiye olmakta ve apoptozise uğramaktadırlar. • Bcr-abl füzyon genini eksprese eden bir başka transgenik fare modelinde lösemi geliştiği, buna karşılık ekspresyon durdurulduğunda (switch-off) hastalığın ileri evresinde olan farelerde bile tümör hücrelerinin hızla apoptozise uğradığı ve farelerin hayatta kaldığı görülmüştür. • Bunlar ve benzeri gözlemler, belirli kanser tiplerinin kendilerine özgü bir zayıf noktaları olduğunu göstermiş ve bu zayıf noktaya yönelik “hedefe yönelik” tedavilerin geliştirilmesini tetiklemiştir.
Tümör baskılayıcı genler • Hücre çoğalmasını kontrol altında tutan genlerdir. • Etkilerini; übozulmuş hücre döngüsünün devamını engelleyerek, ügerekli durumlarda hücreleri apoptozise yönlendirerek, ühücre içerisinde DNA replikasyonu ve tamiri ile segregasyonun hatasız gerçekleşmesini kontrol altında tutarak, ümutasyon oranlarının düşük seviyede tutulmasını ve genomun stabil kalmasını sağlayarak gösterirler.
• Hücre çoğalmasını baskılayan TSG etkilerini iki farklı şekilde gerçekleştirirler: 1. Gatekeeper (bekçi) genler üHücre siklusunu kontrol altında tutma etkilerini, hücre proliferasyonunu direk baskılayarak gösterirler. üAPC, p 53, Rb gibi genler 2. Caretaker (bakıcı) genler üHücre proliferasyonu üzerine indirekt etki gösteren genlerdir. üDNA tamirinden sorumlu olup mutasyon oluşumuna engel olarak genomun stabil kalmasında etkin rol oynarlar. üBRCA 1, BRCA 2, MLH 1 ve MSH 2 gibi • TP 53 her iki özelliğe de sahip önemli bir tümör süpresör genidir. • Retinoblastoma geni (Rb) ve p 53 geni en iyi çalışılmış tümör baskılayıcı genlerdir.
Tümör Süpressör Gen İnaktivasyonu • TSG'lerin inaktivasyonu için gerekli olan iki değişiklik(çift vuruş), yaşam içerisinde arkaya kazanılabildiği gibi; bir tanesiller boyu aktarılarak bu kişilerde kanser predispozisyonuna ve ailesel kanser sendromlarının gözlenmesine neden olabilirler. • Günümüzde kanser gelişiminde rol olan TSG'lerin inaktivasyonuna neden olan farklı mekanizmalar ortaya konmuştur. 1. Nokta mutasyon 2. Heterozigosite kaybı (LOH) 3. Metilasyon artışı
1. Nokta Mutasyon • Tümör supressör genlerde (TSG) en sık gözlenen inaktivasyon mekanizması, genlerde meydana gelen mutasyonlardır. • TSG içerisinde yer alan P 53, BRCA 1, MSH 2, PTEN, NF 1 ve NF 2 gibi genler mutasyonlar sonrasında inaktive olurlar. • Bununla birlikte; BRCA 2, MLH 1, APC ve RB 1 gibi genler ise hem mutasyon hem de metilasyon değişiklikleri sonrasında inaktivasyona uğrayabilirler. • TSG'in inaktive olması için hücre içerisinde bulunan bir genin her 2 kopyasının (allel) fonksiyon dışı kalması gereklidir. • Yaşam içerisinde her iki allel mutasyona uğrayarak kanser gelişimi gözlenebilir. Ancak bu çok sık karşılan bir durum değildir. • Genellikle ilk mutasyon ailesel olarak sonraki nesillere aktarılır. Mutasyonu taşıyan kişiler ise tüm hücrelerinde bu değişikleri taşırlar. Diğer bir deyişle tüm hücrelerinde etkilenen genin bir alleli inaktif olarak bulunur. • Yaşam sırasında somatik (vücut) hücrelerde aynı genin diğer allelinde meydana gelen ikinci bir mutasyon sonrasında sağlam allel de inaktive olur ve hücre çoğalması üzerindeki süpressör etki ortadan kalkarak hücrenin bulunduğu doku bölgesine spesifik kanser gelişimi gözlenir. • Bazı olgularda farklı 2 inaktivasyon mekanizması birlikte görülebilmektedir. Başlangıçta mutasyon ile bir allelin inaktivasyonu ve sonrasında da hipermetilasyon ile ikinci allelin inaktif olması tümör süpressör etkinin tamamen ortadan kalkmasına neden olabilir.
2. Heterozigosite Kaybı (LOH) • Heterozigosite kaybı (LOH), kanser gelişiminden önemli rol oynayan TSG'in inaktivasyon mekanizmalarından bir tanesidir. üSıklıkla TSG'in bulunduğu kromozomal loküsün izole olarak delesyonu (intersitisyel delesyon) sonrasında meydana gelirken, übazen mitotik rekombinasyon esnasında veya mitotik nondisjunction kaynaklı kromozomal kayıp nedeniyle oluşabilir. • LOH için bilinen en iyi örnek retinoblastomaya neden olan RB 1 gen bölgesi olmakla birlikte P 53 gibi diğer TSG'de de LOH saptanmaktadır. • Özellikle kolorektal kanserlerde sıklıkla 17. kromozomun kısa kolu (17 p) ile 18. kromozomun uzun kolunun (18 q) kaybına bağlı LOH gözlenir.
3. Metilasyon • İnaktivasyona neden olan bir diğer önemli mekanizma ise promoter bölgesinin metilasyonudur. Bu mekanizma, Cp. G adalarını içeren promoter gen bölgesinde gözlenir. • Normal hücrelerde Cp. G adacıklarının çoğu metile olmamış durumdadır. • Tümör hücrelerinde, bazı genlerin promoter bölgesinde bulunan ve normalde unmetile olması gereken Cp. G adalarının metile olduğu gözlenir. Cp. G adacıklarının metilasyonu, gen ekspresyonu engelleyerek ilgili genin inaktivasyona neden olur. • Gen bölgelerinin metilasyon yolu ile inaktivasyona duyarlılıkları farklılıklar gösterir. üMSH 2 gibi bazı genler sadece mutasyon yolu ile inaktive olurlar. üMLH 1 gibi bazı bölgeler ise sıklıkla nokta mutasyonlarla fonksiyonlarını kaybederken alternatif olarak metilasyon mekanizması da etkili olabilmektedir. üRASSF 1 A ve HIC 1 genleri ise sadece metilasyon değişiklikleri ile inaktif olurlar.
Mikrosatellit İnstabilitesi (MSI) • Mikrosatellit İnstabilitesi (MSI), tümör süpressör genlerin inaktivasyon mekanizmalarından birisi olmayıp caretaker (bakıcı) genler içerisinde bulunan ve mutasyonların oluşmasını engelleyerek genomun stabil kalmasını sağlayan MLH 1, MSH 2 gibi DNA tamir genlerindeki mutasyonların bir neticesi olarak ortaya çıkar. • DNA replikasyonu sırasında yanlış baz eşleşmesi, insersiyon ve delesyon gibi replikasyon hatalarına neden olan durumlar gözlenebilir. Bu da mikrosatellit instabilitesi (MSI) gelişimi ile sonuçlanır.
• DNA tamir genleri (MMR-mismatch repair) (MLH 1, MSH 2) adı verilen genler replikasyon hatalarının hücre tarafından saptanarak sentez işleminin yeniden başlatılmasını sağlarlar. Mut. S ve Mut. L olmak üzere iki ana gruba ayrılan DNA tamir genlerindeki mutasyonlar tamir mekanizmasının bozulması ile karakterizedir. • Sonuçta; kolorektal adenokarsinom (Lynch Tip I) veya buna ilaveten endometriyal, over, gastrik, ureter, renal pelvis kanserler (Lynch Tip II) ile kendisini gösterir.
p 53 süpressör gen • Bu genin ürünü olan p 53 proteini birçok kompleks aktivitesi olan ve hücre siklusunu baskılayan bir proteindir. • Bu protein nükleotid “mismatche”leri, DNA sarmalının kırıkları gibi DNA lezyonlarını ve ayrıca radyasyon veya kemoterapi ile oluşan DNA hasarlarını saptayabilir. üDNA lezyonu saptandığında, p 53 hücre siklusunu G 1 fazında durdurur, böylece hücrenin S fazına girişini önler. Ardından, ya tamir mekanizması proteinlerini ya da apoptozise yol açan proteinleri indükler. ü İn vitro çalışmalar, kemoterapi ve radyasyonun kanser hücrelerini DNA hasarı yaratarak ve böylece p 53’le indüklenen apoptozise yol açarak öldürdüklerini göstermiştir. üBirçok insan kanserlerinin mutant p 53 süpressör genine sahip olduğu bulunmuştur. Mutant p 53, Li-Fraumeni sendromunun karakteristik bulgusudur. üBu sendrom, hem yumuşak doku hem de epitel kaynaklı kanserlerin birçok organda görüldüğü ve erken bir yaşta başladığı herediter otozomal dominant bir sendromudur.
• Genellikle normal hücrelerde p 53, MDM 2 proteinine bağlı olarak inaktiftir. P 53 ubiquitin ligazla yıkıma uğradıktan sonra aktive olur. • Normal hücrelerde p 53 proteini, hücre döngüsünü birçok aşamada durdurabilir. ØG 1/S kontrol noktasında hücre döngüsünü durdurabilmek için, aktive olmuş p 53 proteini, p 21 proteinini kodlayan bir genin transkripsiyonunu uyarır. ØP 21 proteini, CDK 4/siklin D 1 kompleksini inhibe eder ve hücrenin G 1 aşamasından S aşamasına geçişi önlenmiş olur. ØAktive olmuş p 53 proteini aynı zamanda DNA replikasyon sürecini geciktiren genlerin ifadesini düzenler, böylece S aşaması sırasında DNA hasar onarımı için zaman kazanılmış olur. ØEğer DNA hasarı S aşaması sırasında meydana gelirse, aktive olmuş p 53 diğer genlerin ifadesini düzenleyerek hücrelerin G 2/M kontrol noktasında kalmasını sağlar.
• Meme kanserlerinde p 53’ün yaklaşık %60’ının nokta mutasyonu şeklinde bulunur. • İnsan tümörlerinin yaklaşık %50’sinde p 53 mutasyonu vardır.
• İşlevsel p 53 kaybı olan hücreler, hücre döngüsü kontrol noktalarında tutulamazlar ya da DNA hasarına karşı apopitozise yönelemezler. • Sonuç olarak hücreler, hücrenin DNA’sının durumunu göz önünde bulundurmadan, hücre döngüsü boyunca kontrolsüz bir şekilde ilerlerler. • P 53’ün eksik olduğu hücrelerde mutasyon oranları yüksektir ve bu hücrelerde kansere neden olan farklı tipte mutasyonlar ile kromozomal anomaliler birikir.
RB Tümör baskılayıcı geni • Retinoblastoma geni ilk defa küçük çocukların gözlerinde tümör gelişimiyle karakterize kalıtsal bir hastalık olan retinoblastoma çalışmalarının sonucunda tanımlanmıştır. • Retinoblastoma proteini (p. RB) p 53 proteini gibi hücre döngüsünün G 1/S kontrol noktasını kontrol eden bir tümör baskılayıcı proteinidir. • RB proteini, tüm hücre tiplerinde ve hücre döngüsünün bütün safhalarında çekirdekte bulunur. Ancak, hücre döngüsü boyunca, kendisinin fosforillenme durumuna bağlı olarak farklı aktivite gösterir.
RB Tümör baskılayıcı geni • Hücre, büyüme faktörleri ile uyarıldığında G 1 fazına geçer ve S fazına yaklaşır. G 1 fazı boyunca RB proteini, CDK 4/siklin D 1 kompleksi tarafından fosforillenir. • Fosforillenmiş p. RB inaktiftir ve bağlandığı düzenleyici proteinleri serbest bırakır. • p. RB tarafından salınan E 2 F ve diğer regülatör proteinler serbest kaldıklarında, ifade ürünleri G 1 fazından S fazına geçiş için gerekli olan 30’dan fazla genin ifade edilmesini uyarır. • Hücreler S, G 2 ve M fazlarına geçtikten sonra RB proteini, fosforillenmemiş haline döner ve E 2 F gibi regülatör proteinlere bağlanarak bir sonraki döngüde bunlara ihtiyaç duyuluncaya kadar bağlar. • Normal dinlenme halindeki hücrelerde RB proteini aktiftir ve S fazına geçişi engeller.
APC • Hücrelerde proliferasyonu ve farklılaşmayı kontrol eden gendir. • Eksikliğinde kalın bağırsakta kolon kanserine neden olur. • APC, beta kateninleri bağlayarak parçalanmasını sağlar. Böylece beta kateninin çekirdeğe girip hücre siklusunu uyarmasını önlemiş olur.
BRCA 1 ve 2 • Bu genler özellikle DNA çift sarmal kırıklarının tamirinde rol oynar. • BRCA 1 ve BRCA 2 mutasyonları ailesel meme ve over kanserlerinde görülür.
Protein kodlamayan proto-onkogenler ve tümör süpresör genleri: mikro. RNA’lar (mi. RNA’lar) • İnsan genomunda bazı DNA dizilerinin RNA’ya transkripsiyonu yapılmakta, ancak bunlardan protein translasyonu yapılmamaktadır. • Kodlayıcı olmayan bu RNA’lardan bazılarının gen ekspresyonu regülasyonunda rol oynadığı anlaşılmıştır. Yirmi iki nükleotitlik kısa dizilerden oluştukları için mikro. RNA (mi. RNA) olarak adlandırılan bu moleküllerin çeşitli tümörlerde aşırı eksprese oldukları ya da ekspresyonlarının azaldığı saptanmıştır. • Farklı kanser türlerinin kendilerine özgü mi. RNA ekspresyon profilleri olduğu görülmektedir. Genel olarak tümör dokusunda mi. RNA ekspresyonunun azaldığı ve ekspresyon profilinin tümörün tipini ve farklılaşmasını ile ilişki gösterdiği bulunmuştur. • Kronik lenfositik lösemi, meme, kolorektal, over, karaciğer, akciğer, pankreas ve prostat kanseri gibi çeşitli malignitelerde belirli bazı mi. RNA’ların hastalığın evre, invaziflik, metastatik potansiyel, histolojik alt tip ve sağkalım gibi çeşitli klinik karakteristikleri ile ilişki gösterdiği anlaşılmıştır. • Yani belirli mi. RNA ekspresyon profillerinin bir çeşit “tümör imzası” işlevi gördüğü ve bunlardan gerek tanıda gerekse prognoz kestiriminde kullanılabilir biyogöstergeler olarak yararlanılabileceği belirtilmiştir.
Kaynakça 1. Kanser Genetiği, Kıvanç ÇEFLE İstanbul Üniversitesi, İstanbul Tıp Fakültesi, İç Hastalıkları Anabilim Dalı, Tıbbi Genetik Bilim Dalı, İstanbul 2. MEDICAL ONCOLOGY & PRINCIPLES OF CANCER BIOLOGY Barry B. Lowitz ve Dennis A. Casciato 3. Hücrenin Moleküler Biyolojisi, Bruce Alberts 4. Genetik kavramlar, William S. Klug