
METABOLISMUL GLUCIDIC INTRODUCERE Carbohidraii CH 2 On surs
METABOLISMUL GLUCIDIC
INTRODUCERE § Carbohidraţii: (CH 2 O)n § § sursă energetică formă de stocare a surplusului energetic comunicarea intercelulară rol structural: peretele bacterian
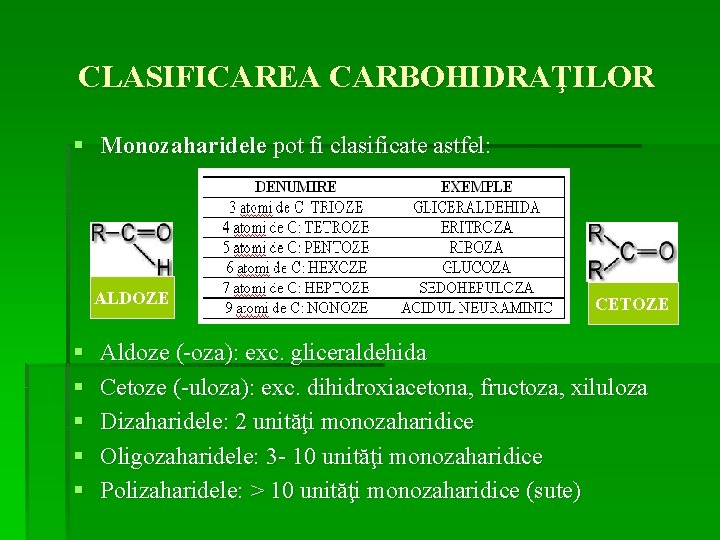
CLASIFICAREA CARBOHIDRAŢILOR § Monozaharidele pot fi clasificate astfel: ALDOZE § § § CETOZE Aldoze (-oza): exc. gliceraldehida Cetoze (-uloza): exc. dihidroxiacetona, fructoza, xiluloza Dizaharidele: 2 unităţi monozaharidice Oligozaharidele: 3 - 10 unităţi monozaharidice Polizaharidele: > 10 unităţi monozaharidice (sute)
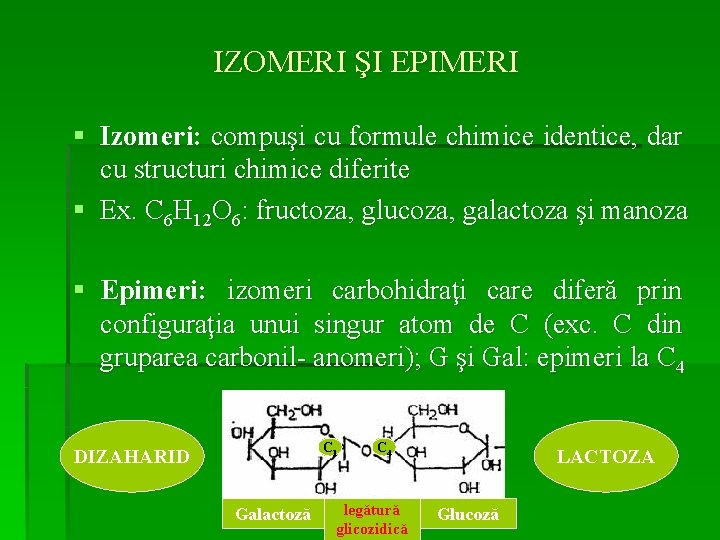
IZOMERI ŞI EPIMERI § Izomeri: compuşi cu formule chimice identice, dar cu structuri chimice diferite § Ex. C 6 H 12 O 6: fructoza, glucoza, galactoza şi manoza § Epimeri: izomeri carbohidraţi care diferă prin configuraţia unui singur atom de C (exc. C din gruparea carbonil- anomeri); G şi Gal: epimeri la C 4 C 1 DIZAHARID Galactoză C 4 legătură glicozidică LACTOZA Glucoză
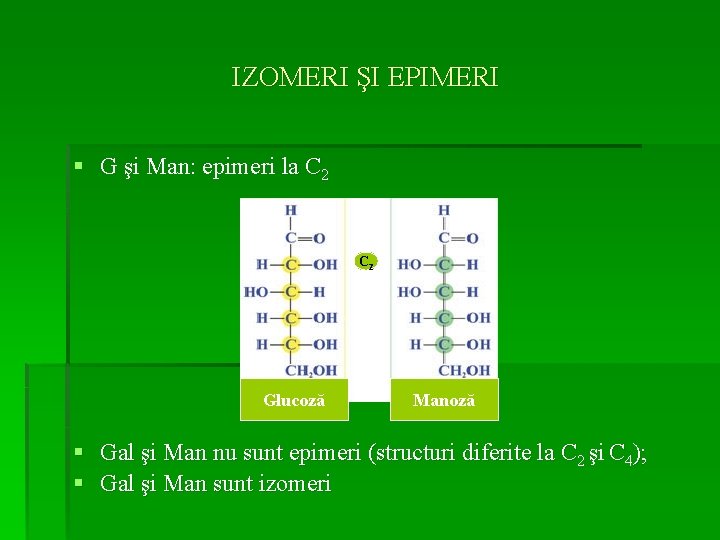
IZOMERI ŞI EPIMERI § G şi Man: epimeri la C 2 Glucoză § § Manoză Gal şi Man nu sunt epimeri (structuri diferite la C 2 şi C 4); Gal şi Man sunt izomeri
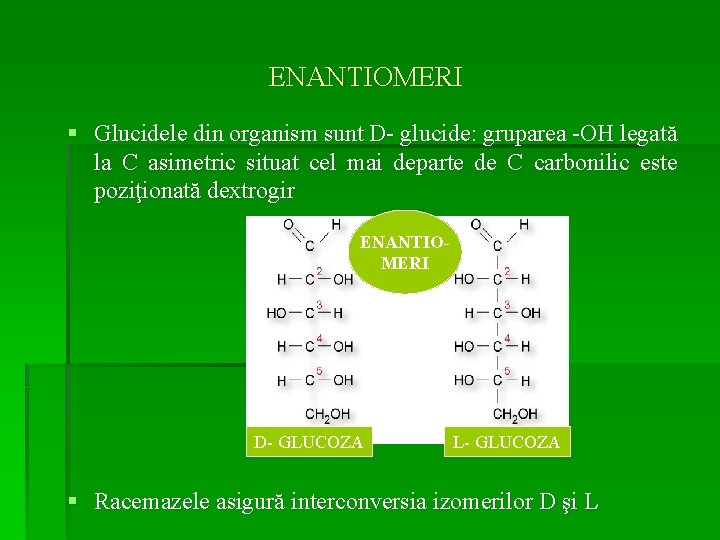
ENANTIOMERI § Glucidele din organism sunt D- glucide: gruparea -OH legată la C asimetric situat cel mai departe de C carbonilic este poziţionată dextrogir ENANTIOMERI D- GLUCOZA L- GLUCOZA § Racemazele asigură interconversia izomerilor D şi L
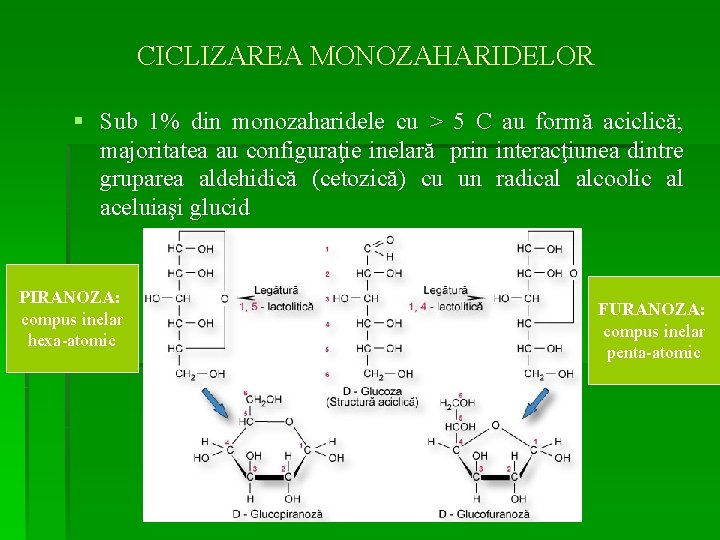
CICLIZAREA MONOZAHARIDELOR § Sub 1% din monozaharidele cu > 5 C au formă aciclică; majoritatea au configuraţie inelară prin interacţiunea dintre gruparea aldehidică (cetozică) cu un radical alcoolic al aceluiaşi glucid PIRANOZA: compus inelar hexa-atomic FURANOZA: compus inelar penta-atomic
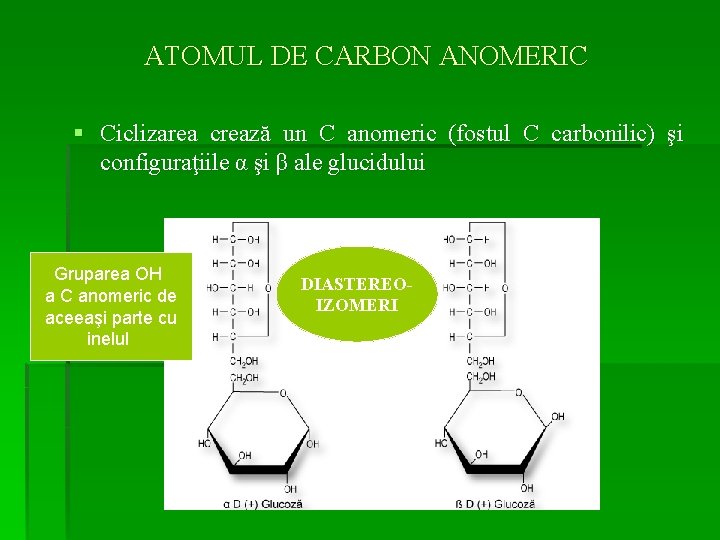
ATOMUL DE CARBON ANOMERIC § Ciclizarea crează un C anomeric (fostul C carbonilic) şi configuraţiile α şi β ale glucidului Gruparea OH a C anomeric de aceeaşi parte cu inelul DIASTEREOIZOMERI
ATOMUL DE CARBON ANOMERIC § Enzimele deosebesc cele două structuri α şi β § Glicogenul: sintetizat din α- D-glucopiranoză celuloza: sintetizată din β- D-glucopiranoză § În soluţie, anomerii α şi β sunt în echilibru şi pot fi interschimbaţi spontan prin mutarotaţie
GLUCIDELE REDUCĂTOARE § Statusul atomului de oxigen legat de atomul anomeric dictează caracterul reducător sau nereducător al unui glucid, restul grupărilor OH nefiind implicate § testele colorimetrice ce utilizează reactivi cromogeni detectează prezenţa glucidelor în urină § identificarea exactă a glucidului necesită teste adiţionale specifice
Cuplarea monozaharidelor § Monozaharidele se pot uni pt a forma: § Dizaharide: ○ lactoza Gal + G ○ sucroza G + Fr ○ maltoza G + G § Polizaharide: ○ glicogen ramificat (orig. animal ă ) Polimeri de ○ amidon (orig. vegetală) glucoză ○ celuloza neramificată (orig. animală)
LEGĂTURILE GLICOZIDICE § Legăturile dintre glucide- punţi glicozidice în prezenţa glicoziltransferazelor (S = glucide nucleotidice de tipul UDP-G) § Hidroliza unei legături glicozidice: glicozidaze § Se denumesc în funcţie de: ○ nr. atomilor de C conectaţi ○ poziţia grupării OH anomerice: OH în configuraţie β- legătură glicozidică β Ex. lactoza
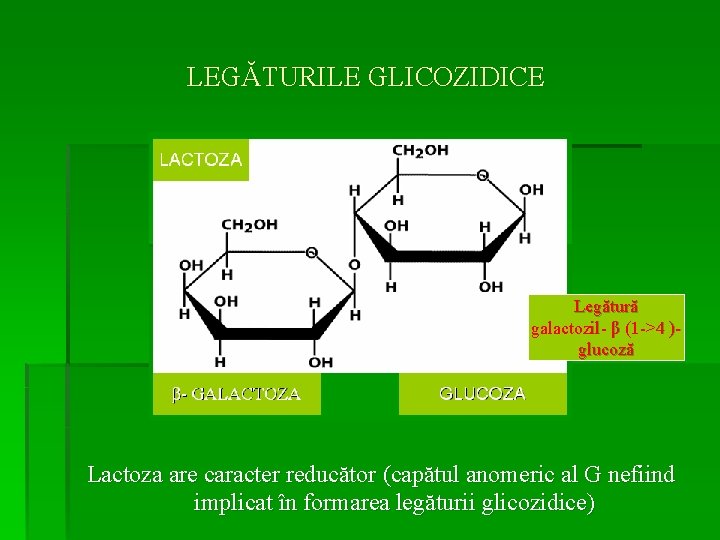
LEGĂTURILE GLICOZIDICE Legătură galactozil- β (1 ->4 )glucoză Lactoza are caracter reducător (capătul anomeric al G nefiind implicat în formarea legăturii glicozidice)
CARBOHIDRAŢI COMPLECŞI § Carbohidraţii se pot ataşa prin legături glicozidice unor structuri neglucidice: ○ baze purinice şi pirimidinice ( acizi nucleici) ○ nuclee aromatice (steroizi, bilirubină) ○ proteinele (glicoproteine, glicozaminoglicani) ○ lipidele (glicolipide) Legătură N- glicozidică: glucid ataşat la -NH 2 Legătură O- glicozidică: glucid ataşat la -OH Legăturile dintre glucide sunt O-glicozidice
DIGESTIA CARBOHIDRAŢILOR § Digestia carbohidraţilor alimentari se desfăşoară în: ○ cavitatea orală ○ intestin ○ Procesul are loc rapid şi se încheie când chimul gastric ajunge la joncţiunea duodeno-jejunală Enzime: ○ Endoglicozidazele: hidroliza oligo- şi polizaharidelor ○ Dizaharidazele: hidroliza dizaharidelor ○ Glicozidazele specifice: hidroliza legăturilor glicozidice
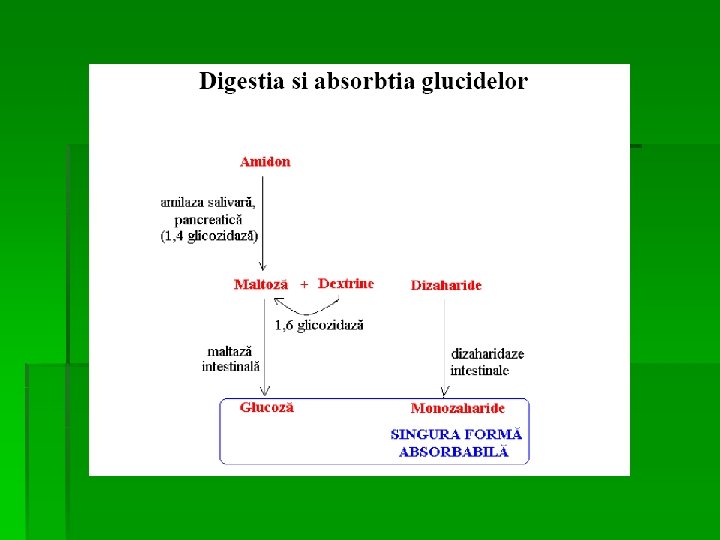
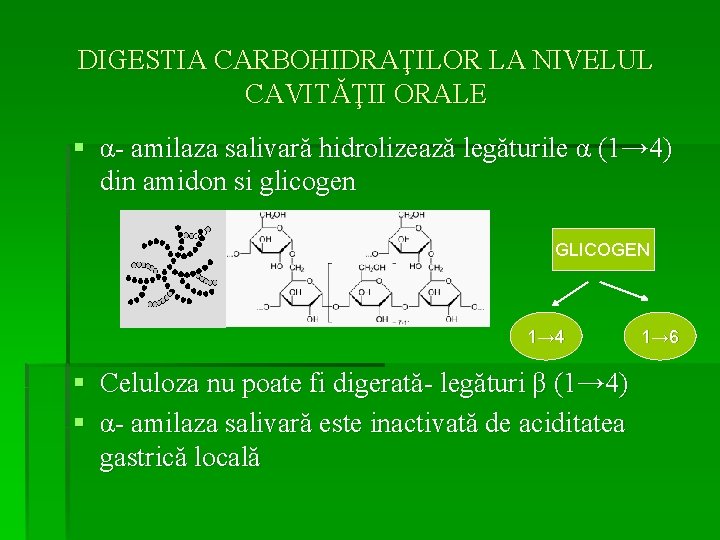
DIGESTIA CARBOHIDRAŢILOR LA NIVELUL CAVITĂŢII ORALE § α- amilaza salivară hidrolizează legăturile α (1→ 4) din amidon si glicogen GLICOGEN 1→ 4 § Celuloza nu poate fi digerată- legături β (1→ 4) § α- amilaza salivară este inactivată de aciditatea gastrică locală 1→ 6
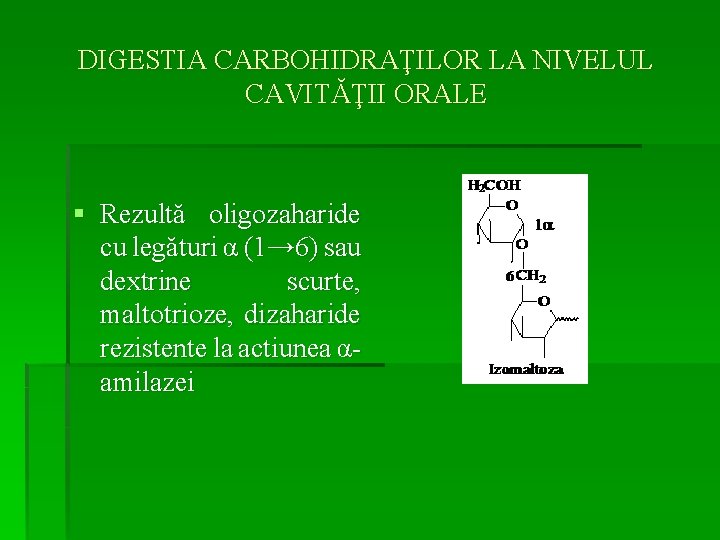
DIGESTIA CARBOHIDRAŢILOR LA NIVELUL CAVITĂŢII ORALE § Rezultă oligozaharide cu legături α (1→ 6) sau dextrine scurte, maltotrioze, dizaharide rezistente la actiunea αamilazei
DIGESTIA CARBOHIDRAŢILOR ÎN INTESTIN § Conţinutul gastric acid ajunge în lumenul intestinului subţire este neutralizat de bicarbonatul secretat de pancreas, iar α- amilaza pancreatică reia procesul de degradare a amidonului § Etapele finale digestiei au loc în jejunul superior § Enzime sintetizate la nivelul feţei luminale a marginii în perie a celulelor mucoasei intestinale § Ex. Dizaharidaze şi oligozaharidaze: izomaltaza, lactaza
DIGESTIA CARBOHIDRAŢILOR ÎN INTESTIN
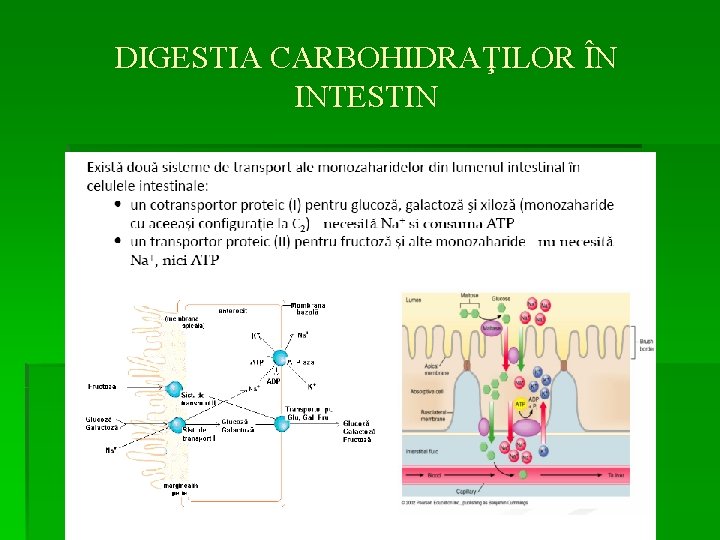
ABSORŢIA MONOZAHARIDELOR § Absorţia glucidelor alimentare: în duoden şi jejun superior; insulina nu este necesară § Mecanisme diferite de absorţie: ○ active 1. co-transportorul SGLT-1 pt G şi Gal; 2. GLUT-5 pt Fr ○ G, Gal şi Fr sunt transportate din celulele mucoasei intestinale în circulaţia portală cu GLUT-2
DEGRADAREA ANORMALĂ A DIZAHARIDELOR § În mod normal, procesul global de digestie şi absorţie este eficient § Disfuncţia dizaharidazelor specifice determină pătrunderea CH în lumenul intestinului gros cu producerea diarrei osmotice § Fermentaţia bacteriană a CH cu 2 sau 3 atomi de C generează CO 2 şi H 2 activi cu apariţia crampelor abdominale, diareei, flatulenţei
DEFICIENŢELE ENZIMELOR DIGESTIVE CAUZE § Deficienţele congenitale dizaharidazelor: la sugari şi copii cu intoleranţă dizaharidică § Malnutriţie, medicamente ce lezează mucoasa intestinală § Deficienţă enzimatică temporară în diaree severă; nu se consumă lactate
DEFICIENŢELE ENZIMELOR DIGESTIVE CAUZE § Intoleranţa la lactoză § > 3/4 din adulţi, 90% dintre adulţii africani şi asiatici au deficit de lactază § reducere cantitativă a activităţii enzimatice § Tratament: ○ reducerea consumului de lapte integral; ○ se preferă iaurt, branzeturi, broccoli pt Ca; ○ tablete cu lactază înainte de masă
DEFICIENŢELE ENZIMELOR DIGESTIVE § Deficienţa de izomaltază- sucrază determină intoleranţa la sucroză § Tratament: ○ restricţia alimentelor cu zahăr ○ substituţia enzimatică Diagnostic: teste de toleranţă orală la fiecare dizaharid măsurarea H 2 respirator
METABOLISM- NOŢIUNI INTRODUCTIVE § La nivel celular reacţiile enzimatice decurg sub forma căilor metabolice multisecvenţiale (calea glicolizei) § Într-o cale metabolică, P unei reacţii = S al reacţiei următoare; căile metabolice se intersectează →reţea § Metabolismul sau reţeaua integrată a reacţiilor chimice = suma tuturor modificărilor chimice la nivel celular
METABOLISM- NOŢIUNI INTRODUCTIVE § Căile metabolice: ○ catabolice (de degradare) ○ anabolice (de sinteză) ○ Cicluri de reacţie = căile care regenerează un anumit compus chimic ○ Harta metabolică = reuneşte conexiunile dintre diversele căi, permite vizualizarea metaboliţilor intermediari şi a efectului blocării uneia dintre căi

Glicoliza- cale metabolică
METABOLISM- NOŢIUNI INTRODUCTIVE § Căile catabolice asigură: § captarea şi stocarea energiei chimice rezultate prin degradarea moleculelor de combustibil biologic sub formă de ATP § conversia moleculelor alimentare şi a rezervelor intracelulare de nutrienţi în substanţe de bază necesare în sinteza moleculelor complexe § căi oxidative ce necesită coenzime, NAD+ § 3 etape
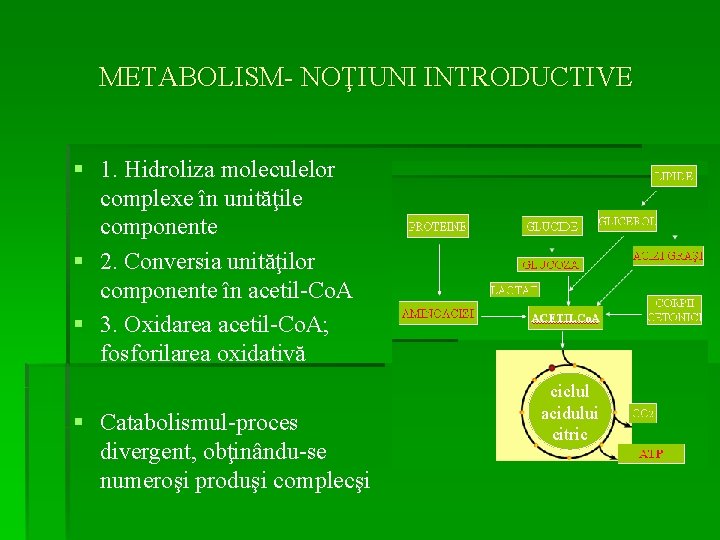
METABOLISM- NOŢIUNI INTRODUCTIVE § 1. Hidroliza moleculelor complexe în unităţile componente § 2. Conversia unităţilor componente în acetil-Co. A § 3. Oxidarea acetil-Co. A; fosforilarea oxidativă § Catabolismul-proces divergent, obţinându-se numeroşi produşi complecşi ciclul acidului citric
METABOLISM- NOŢIUNI INTRODUCTIVE § Căile anabolice: § asigură combinarea moleculelor mici pt a forma molecule complexe § sunt endergonice, ATP fiind descompus la ADP şi Pi § implică reduceri chimice, NADPH, o moleculă care cedează electroni § Anabolismul- proces convergent, în final se obţine un nr redus de produşi
REGLAREA METABOLISMULUI § Producerea de energie şi sinteza produşilor finali corespund necesităţilor celulare § Funcţiile organismului sunt coordonate printr-un sistem de comunicare elaborat § Semnalele reglatoare ce informează fiecare celulă asupra statusului metabolic al organismului includ: ○ hormoni ○ neurotransmiţători ○ cantitatea de nutrienţi Semnalele reglatoare influenţează semnalele intracelulare
REGLAREA METABOLISMULUI § Semnalele intracelulare reglatoare pot controla viteza unei căi metabolice ce depinde de: ○ cantitatea de substrat disponibilă ○ inhibarea produsului de reacţie ○ modificări ale activatorilor şi inhibitorilor alosterici Comunicarea intercelulară= răspunsul la semnalele extracelulare esenţial în supravieţuire şi dezvoltare Determină un răspuns mai lent comparativ cu semnalizarea intracelulară fiind realizată prin: ○ contactul suprafeţelor ○ joncţiuni comunicante între citoplasmele adiacente
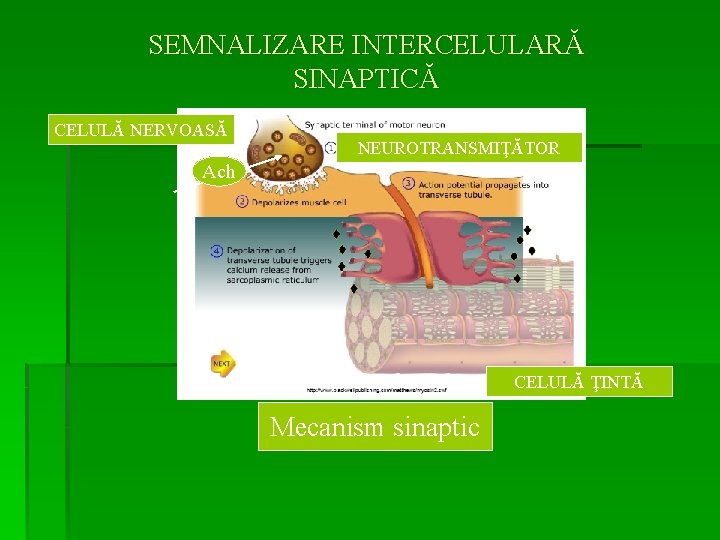
SEMNALIZARE INTERCELULARĂ SINAPTICĂ CELULĂ NERVOASĂ NEUROTRANSMIŢĂTOR Ach CELULĂ ŢINTĂ Mecanism sinaptic
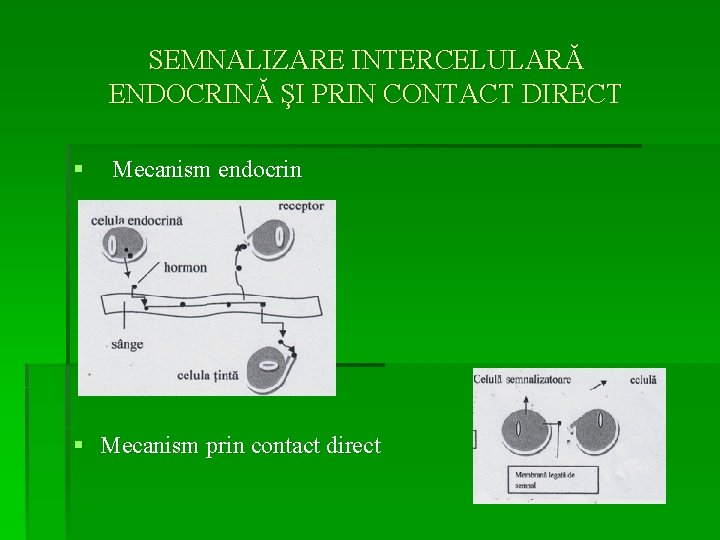
SEMNALIZARE INTERCELULARĂ ENDOCRINĂ ŞI PRIN CONTACT DIRECT § Mecanism endocrin § Mecanism prin contact direct
SISTEMUL MESAGERILOR SECUNZI § Pentru metabolismul energetic cea mai importantă este semnalizarea chimică dintre celule prin: ○ hormoni Mesageri primari ○ neurotransmiţători Receptorii acestora= detectori de semnale Fiecare componentă realizează legătura cu una dintre modificările chimice extra- şi intracelulare Mesagerii secunzi asigură legătura dintre: ○ mesagerul primar ○ răspunsul celular
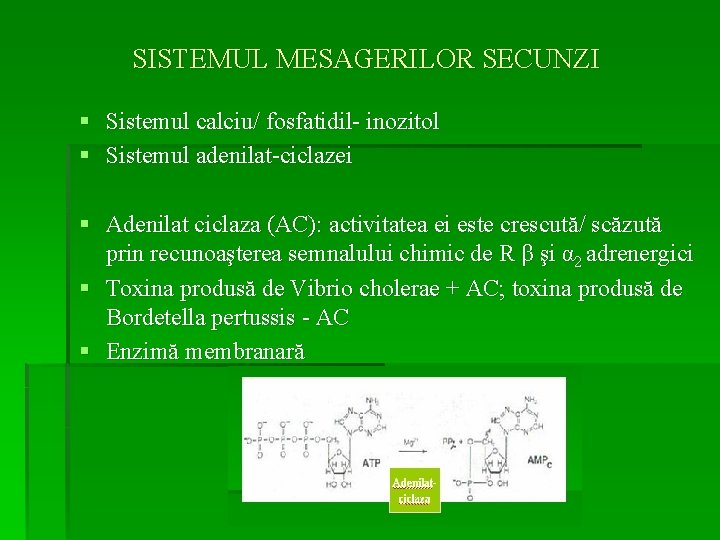
SISTEMUL MESAGERILOR SECUNZI § Sistemul calciu/ fosfatidil- inozitol § Sistemul adenilat-ciclazei § Adenilat ciclaza (AC): activitatea ei este crescută/ scăzută prin recunoaşterea semnalului chimic de R β şi α 2 adrenergici § Toxina produsă de Vibrio cholerae + AC; toxina produsă de Bordetella pertussis - AC § Enzimă membranară
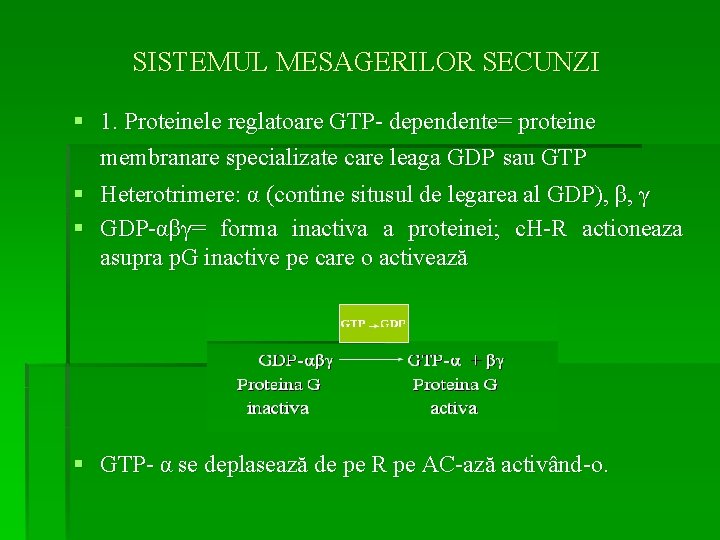
SISTEMUL MESAGERILOR SECUNZI § 1. Proteinele reglatoare GTP- dependente= proteine membranare specializate care leaga GDP sau GTP § Heterotrimere: α (contine situsul de legarea al GDP), β, γ § GDP-αβγ= forma inactiva a proteinei; c. H-R actioneaza asupra p. G inactive pe care o activează § GTP- α se deplasează de pe R pe AC-ază activând-o.
SISTEMUL MESAGERILOR SECUNZI § 1 R activat conduce la formarea mai multor molecule de proteină G activă § proteinele Gs stimulează AC-aza § proteinele Gi inhibă enzima § Efectele proteinei G- GTP sunt de scurtă durată deoarece proteina G are activitate GTP-azică cu formarea de GDP şi inactivarea proteinei G
SISTEMUL MESAGERILOR SECUNZI § Protein-kinazele AMPc dependente § PKA este o holoenzima alcatuita din dimerul subunitatii reglatoare (R), având fiecare monomer legat la o subunitatea catalitica. La concentratii mici de c. AMP, holoenzima rămâne intactă şi inactiva catalitic § Când [c. AMP] creste (activarea AC-azei de R cuplati proteinei G atasati la Gs, inhibarea PDE care degradeaza c. AMP), c. AMP se fixeaza la cele doua situsuri de legare de pe subunitatile reglatoare, cu eliberarea subunitatilor catalitice
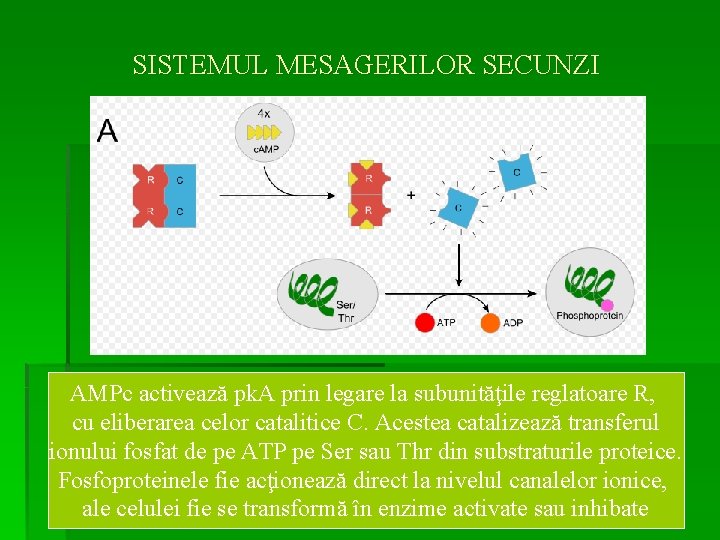
SISTEMUL MESAGERILOR SECUNZI AMPc activează pk. A prin legare la subunităţile reglatoare R, cu eliberarea celor catalitice C. Acestea catalizează transferul ionului fosfat de pe ATP pe Ser sau Thr din substraturile proteice. Fosfoproteinele fie acţionează direct la nivelul canalelor ionice, ale celulei fie se transformă în enzime activate sau inhibate
SISTEMUL MESAGERILOR SECUNZI § p. K-azele fosforilează proteinele specifice ce aderă la regiunile promotoare ale ADN cu creşterea expresiei unor gene specifice § Nu toate p. K-azele răspund la prezenţa AMPc. Ex p. K C § Defosforilarea proteinelor se realizează cu ajutorul proteinfosfatazelor enzime ce produc clivarea hidrolitică a esterilor fosfat § Ca urmare, modificările enzimatice induse de fosforilarea proteinelor sunt temporare.
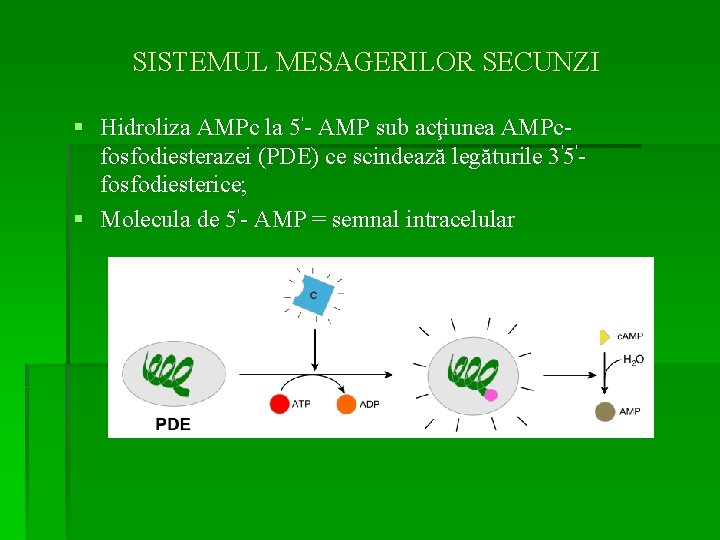
SISTEMUL MESAGERILOR SECUNZI § Hidroliza AMPc la 5'- AMP sub acţiunea AMPcfosfodiesterazei (PDE) ce scindează legăturile 3'5'fosfodiesterice; § Molecula de 5'- AMP = semnal intracelular
SISTEMUL MESAGERILOR SECUNZI § PDE este inhibată de : ○ derivaţi metilxantinici (teofilina, cafeina) Efectele creşterii [c. AMP] sub acţiunea neurotransmiţătorilor şi hormonilor sunt rapid epuizate prin îndepărtarea stimulului extracelular § Inactivarea p. KA prin mecanism feedback: § PDE, unul dintre substratele activate de kinaza, converteşte c. AMP la AMP reducând cantitatea de c. AMP care ar putea activa protein kinaza A § Astfel, p. KA este controlata de c. AMP. Subunitatea catalitică este inactivată prin fosforilare.
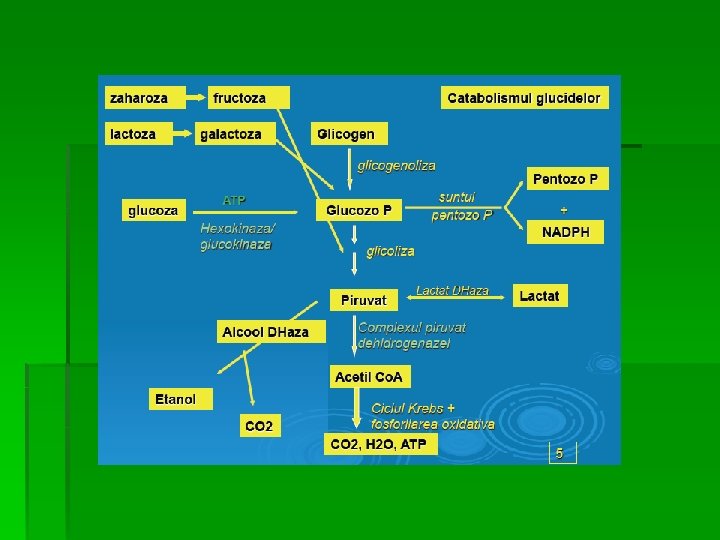
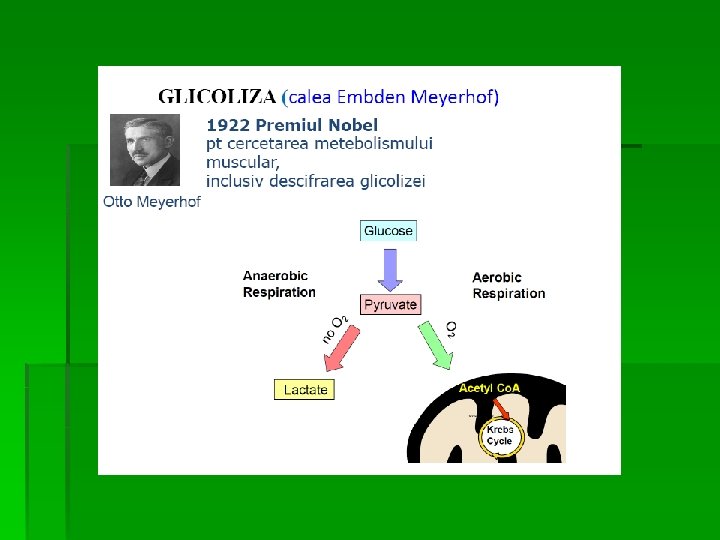

GLICOLIZA
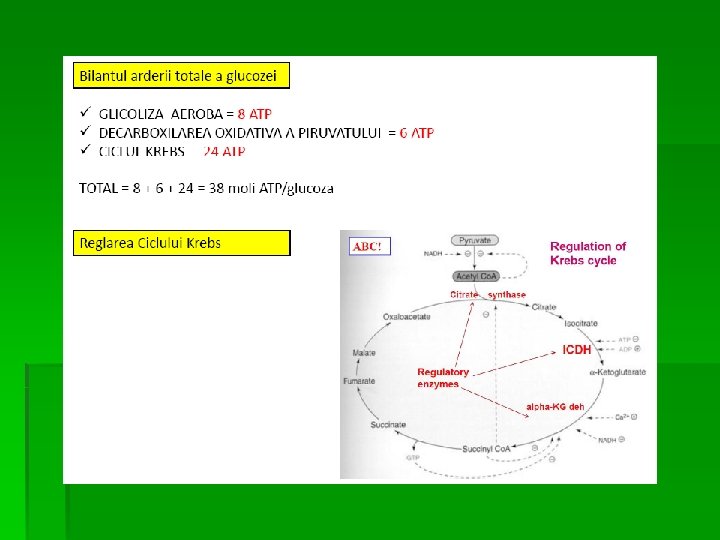
GLICOLIZA § Definiţie. Degradarea glucozei cu producere de ATP ( 2 molecule ATP/ 1 mol Glucoză ) şi metaboliţi intermediari ce pot fi utilizaţi în alte căi metabolice. Are loc în citosol. În centrul metabolismului CH § În aerobioză (reoxidarea NADH este indispensabilă): 10 REACŢII § Piruvatul este convertit la acetil- Co. A, prin oxidarea la nivelul ciclului citric şi a lanţului respirator mitocondrial rezultând 36 -38 moli ATP/mol G
GLICOLIZA § Alternativ, Py este redus la lactat (NADH este oxidată la NAD +. § Glicoliza anaerobă permite sinteza de ATP în ţesuturile în care aportul de oxigen este insuficient: hematii ce nu conţin mitocondrii, leucocite, cornee, cristalin, celule în hipoxiemuşchi scheletic în contracţie rapidă
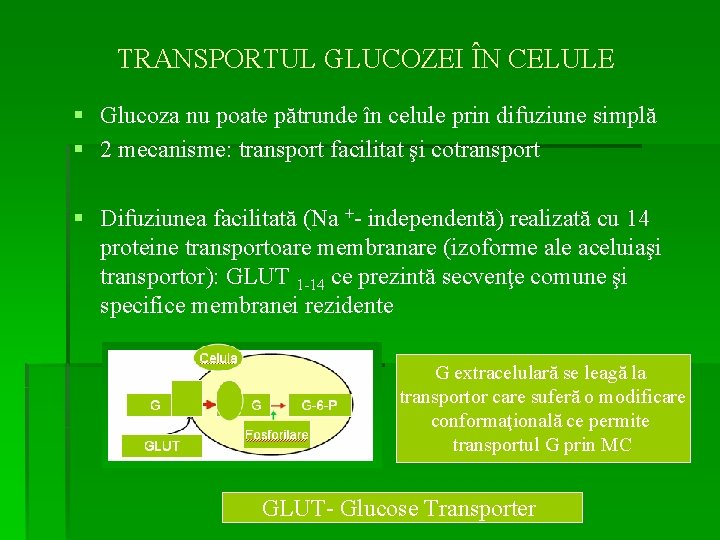
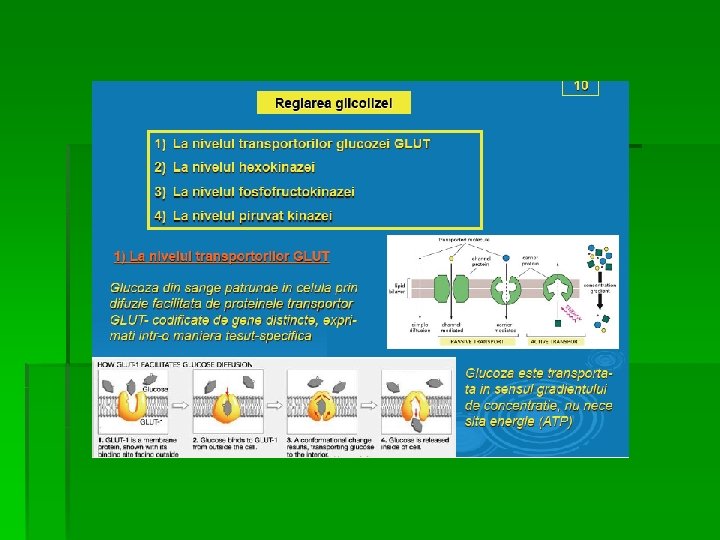
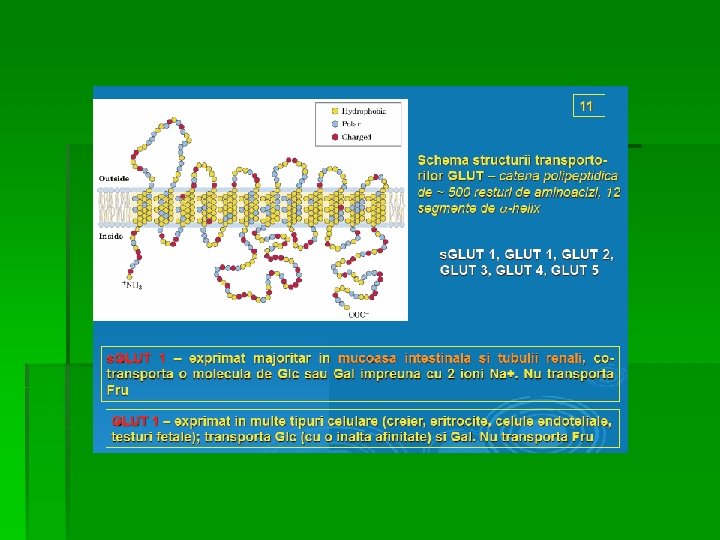
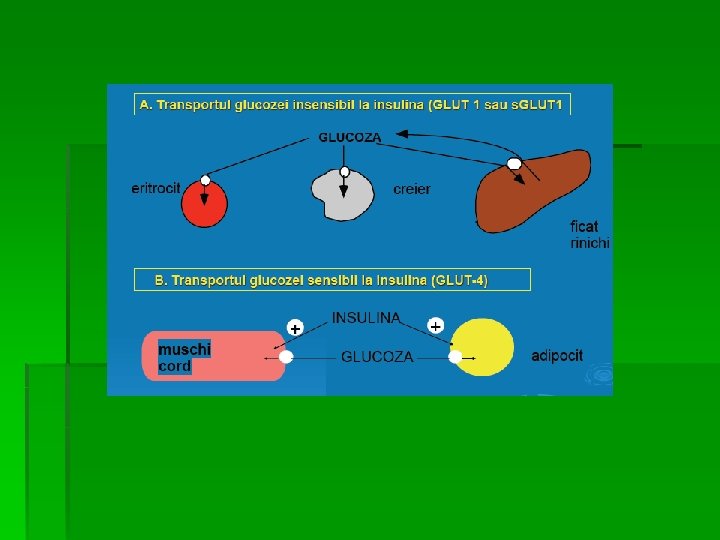
TRANSPORTUL GLUCOZEI ÎN CELULE § Glucoza nu poate pătrunde în celule prin difuziune simplă § 2 mecanisme: transport facilitat şi cotransport § Difuziunea facilitată (Na +- independentă) realizată cu 14 proteine transportoare membranare (izoforme ale aceluiaşi transportor): GLUT 1 -14 ce prezintă secvenţe comune şi specifice membranei rezidente G extracelulară se leagă la transportor care suferă o modificare conformaţională ce permite transportul G prin MC GLUT- Glucose Transporter
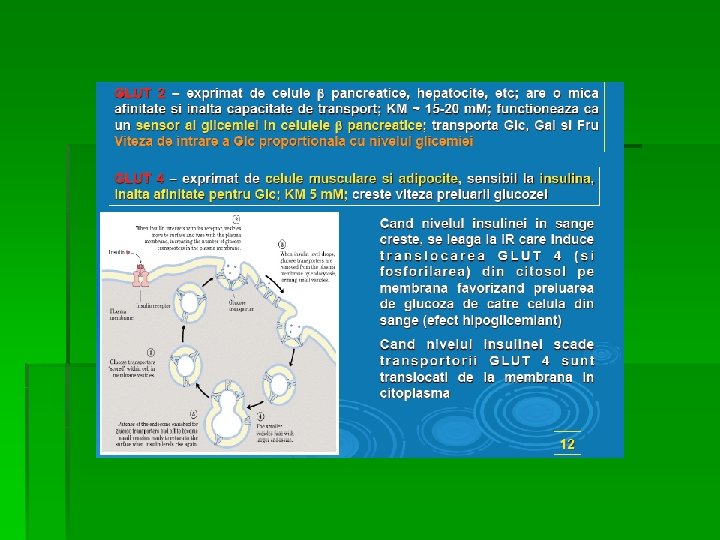
TRANSPORTUL GLUCOZEI ÎN CELULE § Specificitatea tisulară a expresiei genei GLUT: § GLUT-3 principalul transportor la nivel neuronal § GLUT-1 în eritrocite şi ţesutul cerebral § GLUT-4 în adipocite şi celulele musculare striate, nr şi activitatea lor fiind crescute de insulină § Funcţiile specializate ale izoformelor GLUT: § În difuziunea facilitată G este transportată din mediul cu [G] mai mare spre cel cu [G] mai mică § GLUT-1, GLUT-3 şi GLUT-4 implicate în preluarea G din circulaţie
TRANSPORTUL GLUCOZEI ÎN CELULE § Funcţiile specializate ale izoformelor § GLUT-2 este localizată în ficat şi rinichi şi transportă G în interiorul hepatocitelor şi al celulelor renale când glicemia este crescută sau invers (din aceste celule în sânge) la glicemie mică ( à jeun); este prezent şi în pancreas § GLUT-5: în trasnportul primar al Fr (intestin subţire, testicule) § GLUT-7: în ficat şi alte ţesuturi gluconeogenetice mediază fluxul G prin membrana RE
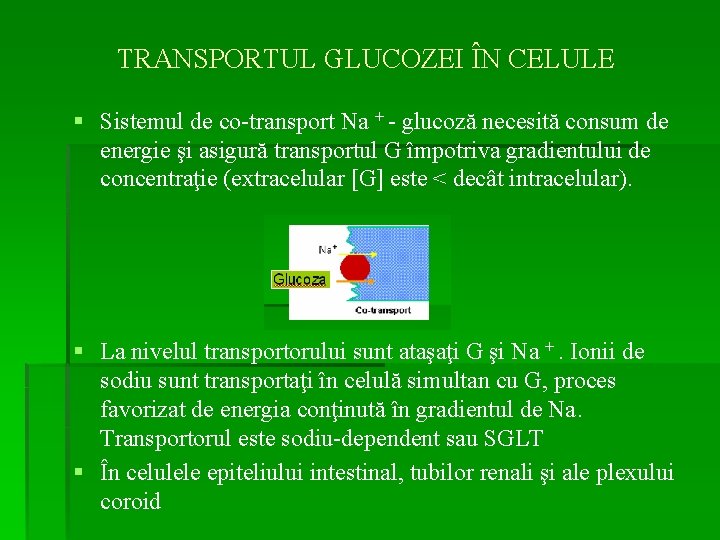
TRANSPORTUL GLUCOZEI ÎN CELULE § Sistemul de co-transport Na + - glucoză necesită consum de energie şi asigură transportul G împotriva gradientului de concentraţie (extracelular [G] este < decât intracelular). § La nivelul transportorului sunt ataşaţi G şi Na +. Ionii de sodiu sunt transportaţi în celulă simultan cu G, proces favorizat de energia conţinută în gradientul de Na. Transportorul este sodiu-dependent sau SGLT § În celulele epiteliului intestinal, tubilor renali şi ale plexului coroid
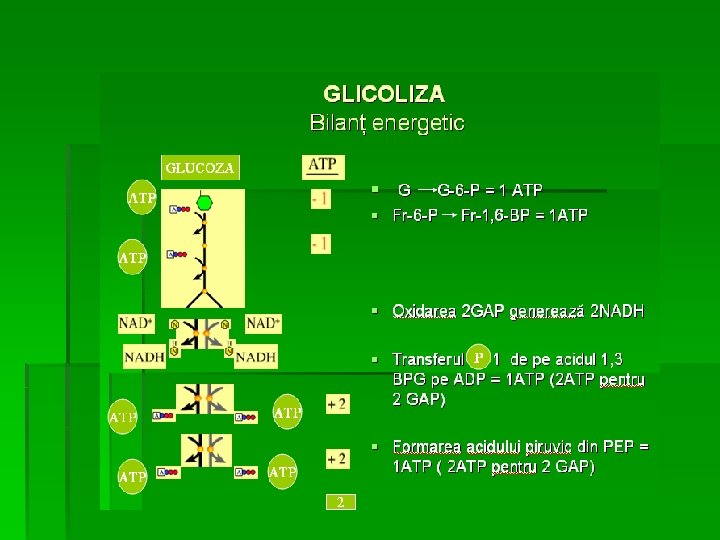
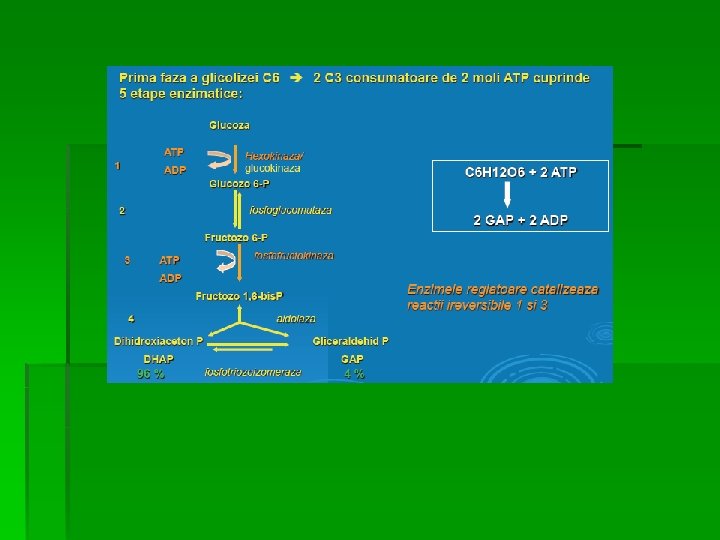
REACŢIILE GLICOLIZEI § Conversia G la Py decurge în 2 etape: § Prima, consumatoare de 2 ATP/mol de G, hexozele fosforilate fiind transformate într-un produs comun: gliceraldehid-3 -fosfat (GAP) § A II-a, de oxidare a GAP, generatoare de 4 ATP/mol de glucoză, 2 Py şi 2 NADH, H+, ca urmare a oxidării GAP § Cele două molecule de NADH sunt oxidate la NAD+ pe măsură ce Py este redus la lactat (glicoliză anaerobă)
REACŢIILE GLICOLIZEI § Toţi intermediarii glicolizei (de la G la Py) sunt fosforilaţi § Gruparea fosfat a intermediarilor glicolizei are 3 roluri principale: § 1. de a-i menţine în celulă (cu un grup polar negativ sunt incapabili să traverseze membrana celulară la p. H=7, prin simpla difuziune) § 2. păstrarea moleculelor energetice în celulă (compuşi hidrofili) § 3. interacţiunea enzimă-substrat mai bună
REACŢIILE GLICOLIZEI § Primele 5 reacţii: § § § A. Fosforilarea glucozei B. Izomerizarea G-6 -P la Fr-6 -P (fructozo-6 -fosfat) C. Fosforilarea Fr-6 -P la Fr-1, 6 - bisfosfat D. Scindarea Fr-1, 6 - difosfatului E. Izomerizarea dihidroxiaceton-fosfatului (Interconversiunea trioz-fosfaţilor)
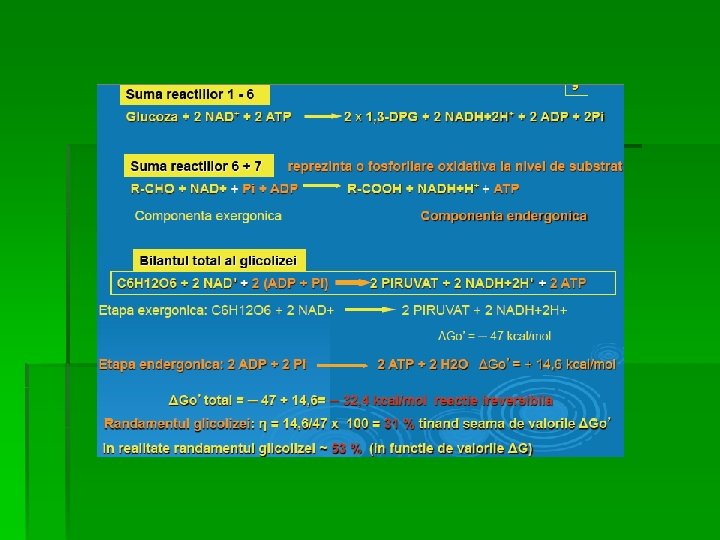
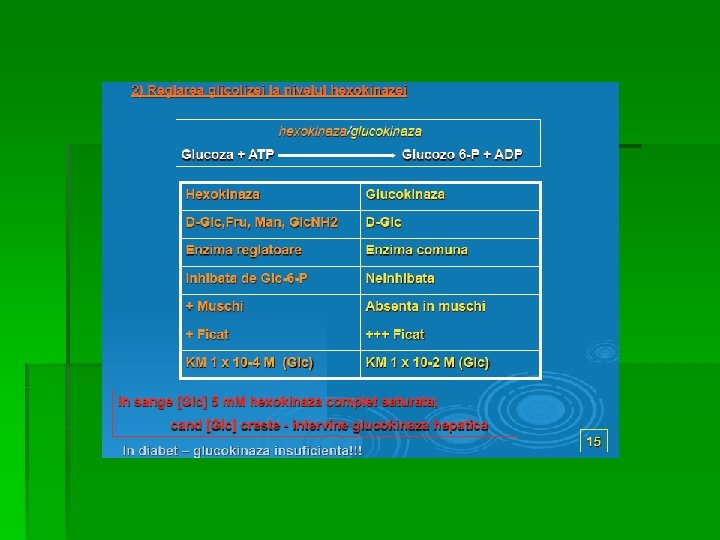
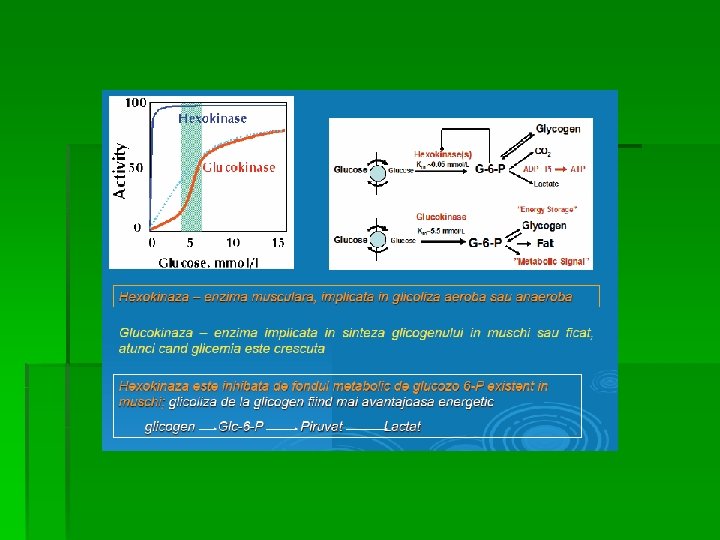
REACŢIILE GLICOLIZEI § A. Fosforilarea glucozei este catalizată de izoenzimele hexokinazei ( una dintre cele 3 enzime reglatoare ale glicolizei alături de fosfofructokinază şi piruvat-kinază) § Hexokinaza: ○ Sp largă pt S fosforilând mai multe hexoze înafara G ○ inhibată de produsul final de reacţie G-6 -fosfatul care se acumulează în organism când rata de metabolizare scade ○ Km scăzut pt G ○ Vmax redus pt G ( nu poate reţine hexozele fosforilate în interiorul celulei şi nici nu poate fosforila o cantitate de glucide mai mare decât necesarul
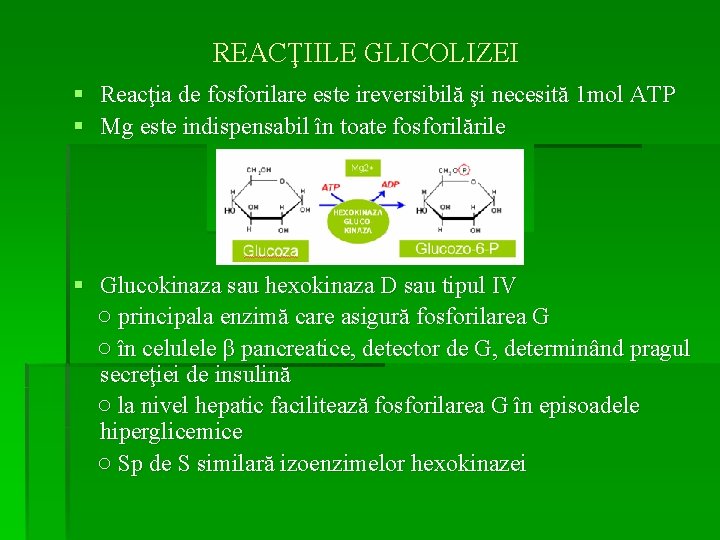
REACŢIILE GLICOLIZEI § Reacţia de fosforilare este ireversibilă şi necesită 1 mol ATP § Mg este indispensabil în toate fosforilările § Glucokinaza sau hexokinaza D sau tipul IV ○ principala enzimă care asigură fosforilarea G ○ în celulele β pancreatice, detector de G, determinând pragul secreţiei de insulină ○ la nivel hepatic facilitează fosforilarea G în episoadele hiperglicemice ○ Sp de S similară izoenzimelor hexokinazei
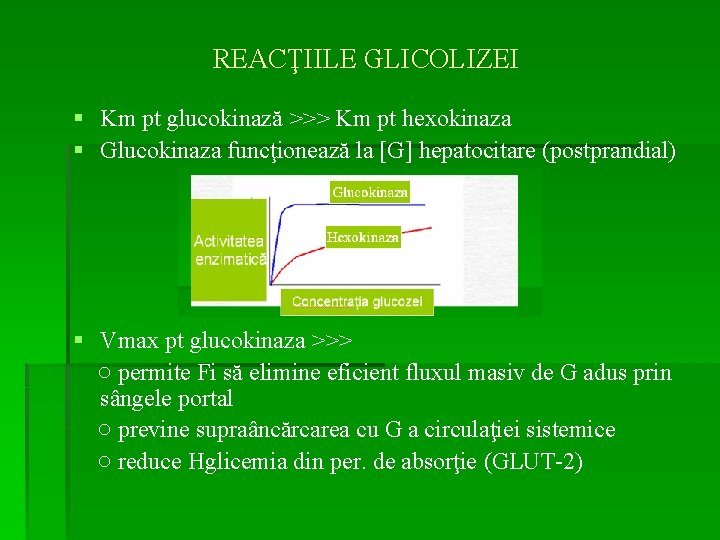
REACŢIILE GLICOLIZEI § Km pt glucokinază >>> Km pt hexokinaza § Glucokinaza funcţionează la [G] hepatocitare (postprandial) § Vmax pt glucokinaza >>> ○ permite Fi să elimine eficient fluxul masiv de G adus prin sângele portal ○ previne supraâncărcarea cu G a circulaţiei sistemice ○ reduce Hglicemia din per. de absorţie (GLUT-2)
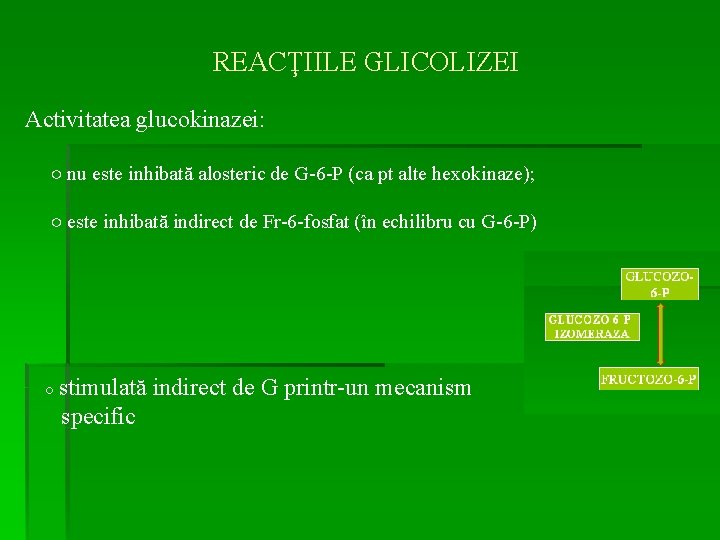
REACŢIILE GLICOLIZEI Activitatea glucokinazei: ○ nu este inhibată alosteric de G-6 -P (ca pt alte hexokinaze); ○ este inhibată indirect de Fr-6 -fosfat (în echilibru cu G-6 -P) ○ stimulată specific indirect de G printr-un mecanism
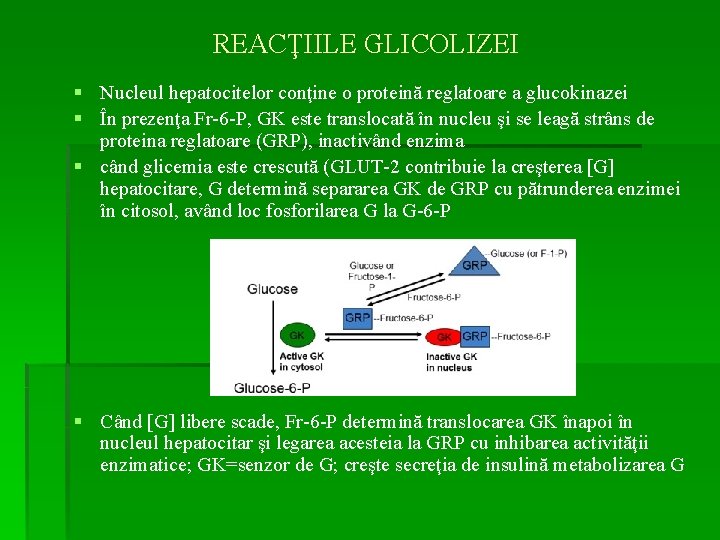
REACŢIILE GLICOLIZEI § Nucleul hepatocitelor conţine o proteină reglatoare a glucokinazei § În prezenţa Fr-6 -P, GK este translocată în nucleu şi se leagă strâns de proteina reglatoare (GRP), inactivând enzima § când glicemia este crescută (GLUT-2 contribuie la creşterea [G] hepatocitare, G determină separarea GK de GRP cu pătrunderea enzimei în citosol, având loc fosforilarea G la G-6 -P § Când [G] libere scade, Fr-6 -P determină translocarea GK înapoi în nucleul hepatocitar şi legarea acesteia la GRP cu inhibarea activităţii enzimatice; GK=senzor de G; creşte secreţia de insulină metabolizarea G
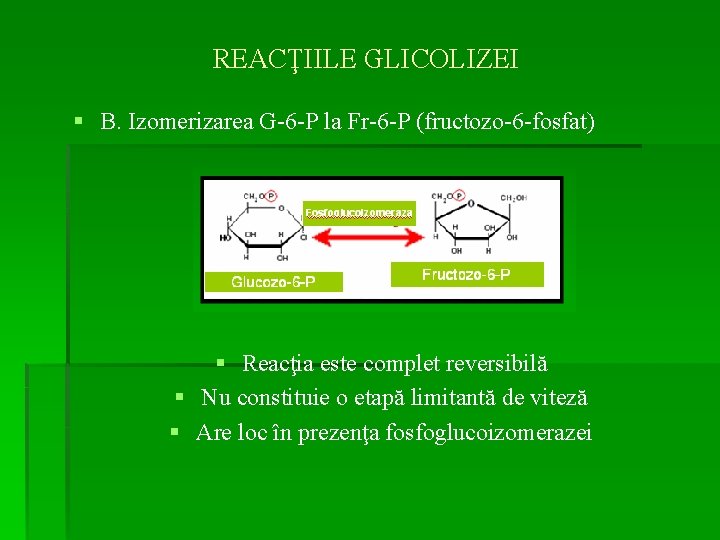
REACŢIILE GLICOLIZEI § B. Izomerizarea G-6 -P la Fr-6 -P (fructozo-6 -fosfat) § Reacţia este complet reversibilă § Nu constituie o etapă limitantă de viteză § Are loc în prezenţa fosfoglucoizomerazei
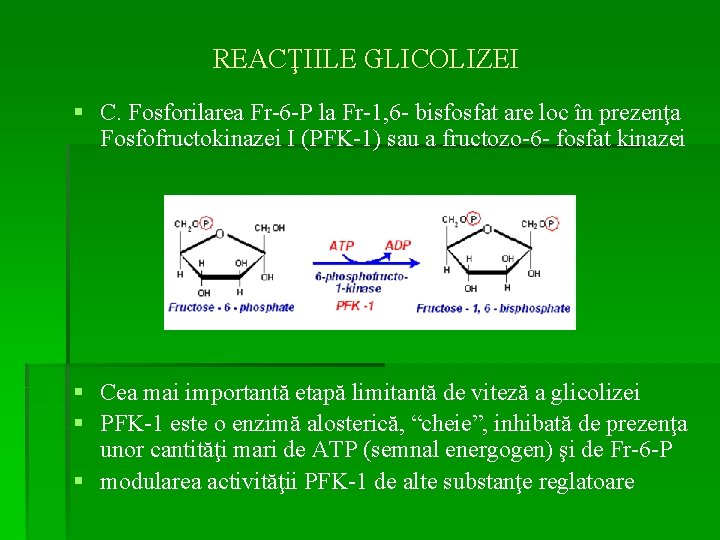
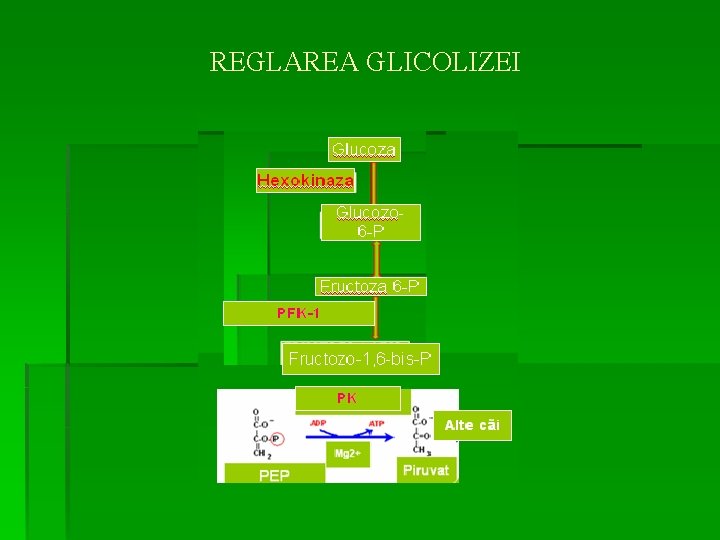
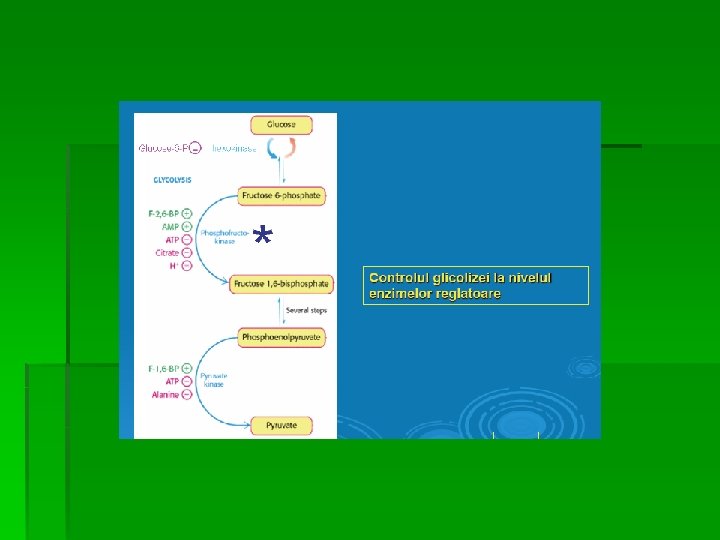
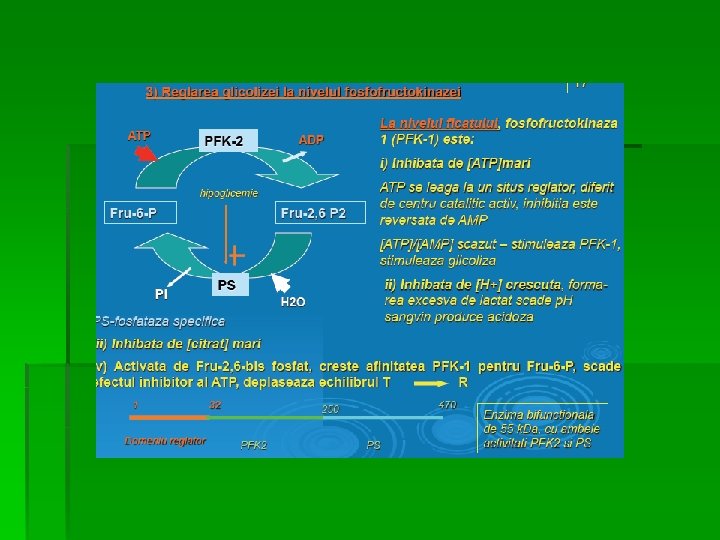
REACŢIILE GLICOLIZEI § C. Fosforilarea Fr-6 -P la Fr-1, 6 - bisfosfat are loc în prezenţa Fosfofructokinazei I (PFK-1) sau a fructozo-6 - fosfat kinazei § Cea mai importantă etapă limitantă de viteză a glicolizei § PFK-1 este o enzimă alosterică, “cheie”, inhibată de prezenţa unor cantităţi mari de ATP (semnal energogen) şi de Fr-6 -P § modularea activităţii PFK-1 de alte substanţe reglatoare
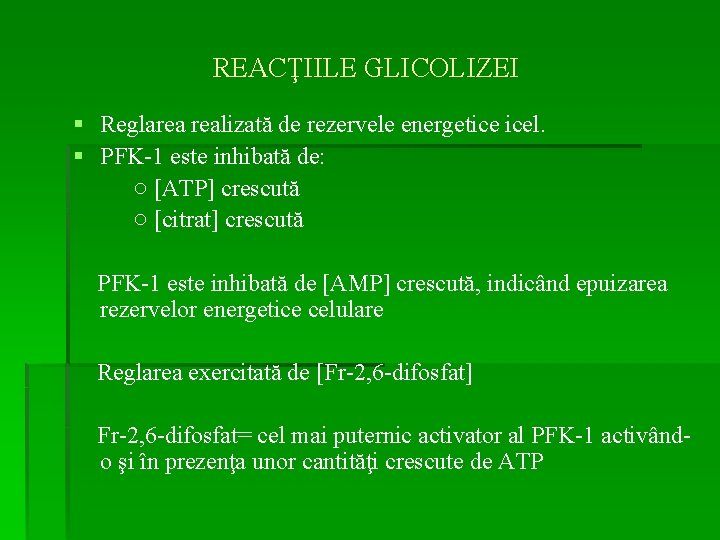
REACŢIILE GLICOLIZEI § Reglarea realizată de rezervele energetice icel. § PFK-1 este inhibată de: ○ [ATP] crescută ○ [citrat] crescută PFK-1 este inhibată de [AMP] crescută, indicând epuizarea rezervelor energetice celulare Reglarea exercitată de [Fr-2, 6 -difosfat] Fr-2, 6 -difosfat= cel mai puternic activator al PFK-1 activândo şi în prezenţa unor cantităţi crescute de ATP
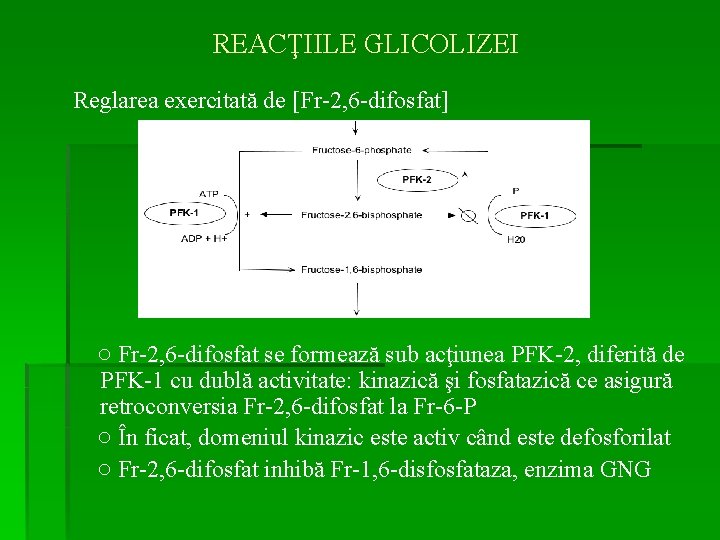
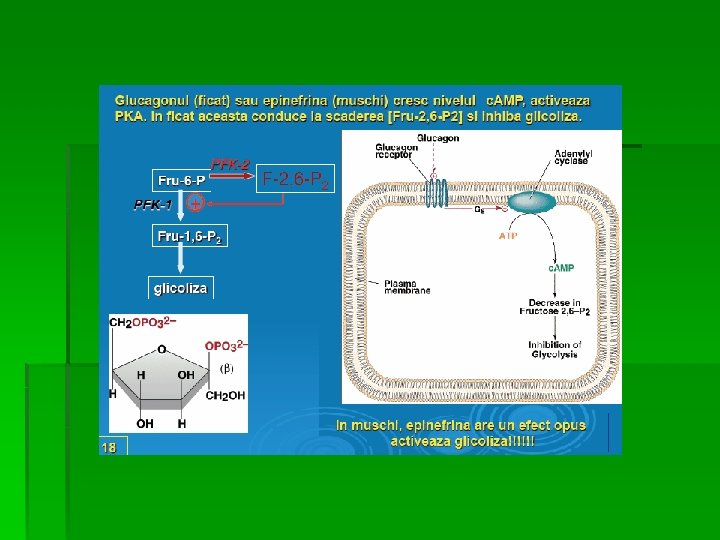
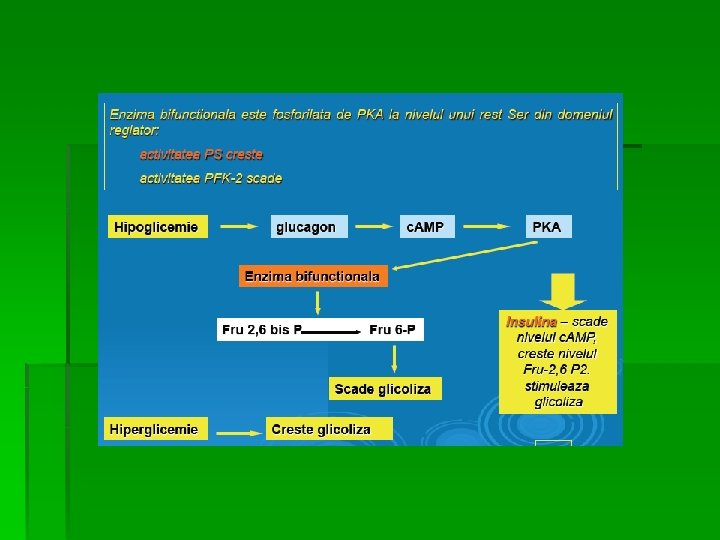
REACŢIILE GLICOLIZEI Reglarea exercitată de [Fr-2, 6 -difosfat] ○ Fr-2, 6 -difosfat se formează sub acţiunea PFK-2, diferită de PFK-1 cu dublă activitate: kinazică şi fosfatazică ce asigură retroconversia Fr-2, 6 -difosfat la Fr-6 -P ○ În ficat, domeniul kinazic este activ când este defosforilat ○ Fr-2, 6 -difosfat inhibă Fr-1, 6 -disfosfataza, enzima GNG
REACŢIILE GLICOLIZEI § Acţiunea reciprocă a Fr-2, 6 -bisfosfat de activare a glicolizei şi de inhibare a GNG (nefiind simultane cele două căi) este împiedicată crearea unui ciclu inutil prin care G ar fi transformată în Py în paralel cu resinteza G din Py § postprandial, [Glucagon] şi [insulină] stimulează activitatea Fr-2, 6 -bisfosfat, cu activarea glicolizei § Fr-2, 6 -bisfosfat = semnal icel ce indică prezenţa unei [G] § à jeun, [Glucagon] şi [insulină] reduce [Fr-2, 6 -bisfosfat] intrahepatocitar cu scăderea ratei globale a glicolizei
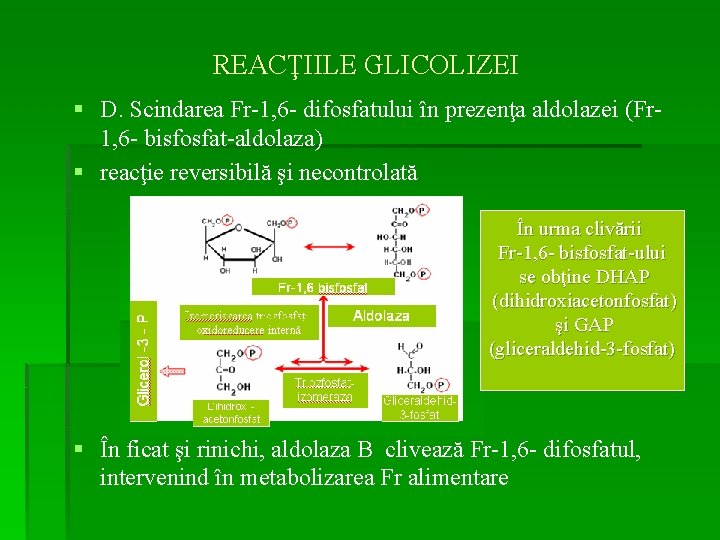
REACŢIILE GLICOLIZEI § D. Scindarea Fr-1, 6 - difosfatului în prezenţa aldolazei (Fr 1, 6 - bisfosfat-aldolaza) § reacţie reversibilă şi necontrolată În urma clivării Fr-1, 6 - bisfosfat-ului se obţine DHAP (dihidroxiacetonfosfat) şi GAP (gliceraldehid-3 -fosfat) § În ficat şi rinichi, aldolaza B clivează Fr-1, 6 - difosfatul, intervenind în metabolizarea Fr alimentare
REACŢIILE GLICOLIZEI § E. Izomerizarea dihidroxiaceton-fosfatului (Interconversiunea trioz-fosfaţilor) § Numai GAP este degradat în faza a II-a a glicolizei § DHAP este utilizat după conversia la GAP § Reacţia este reversibilă şi catalizată de triozo-fosfatizomeraza avâd ca rezultat net producerea a 2 molecule de gliceraldehid-3 -fosfat din produşii de clivare ai Fr-1, 6 difosfatului § Se încheie prima etapă a glicolizei
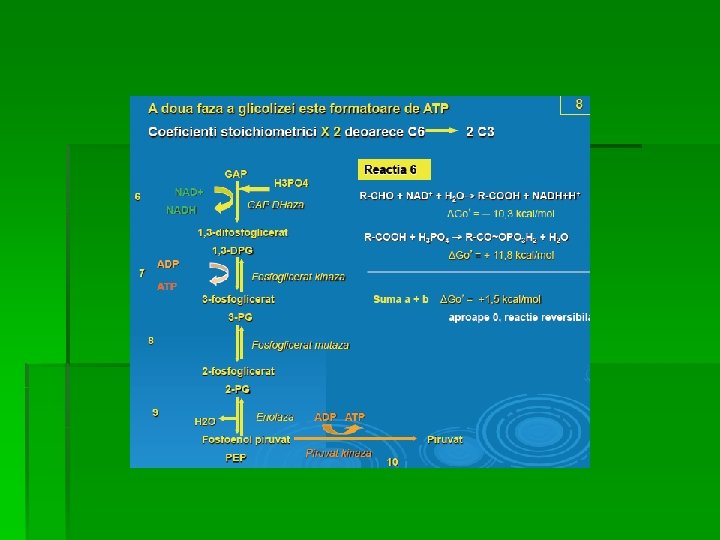
REACŢIILE GLICOLIZEI § Etapa producătoare de energie- 5 etape: § F. Oxidarea gliceraldehid-3 -fosfat (GAP) la 1, 3 bisfosfoglicerat § G. Sinteza 3 -fosfoglicerat (Transferul grupării fosfat pe ADP) cu sinteza de ATP § H. Translocarea fosfatului de pe C 3 pe C 2 (Izomerizarea 3 fosfoglicerat la 2 - fosfoglicerat) § I. Deshidratarea 2 - fosfoglicerat cu formarea fosfoenolpiruvat (PEP) § J. Sinteza Py (Transferul fosfatului de pe PEP pe ADP)
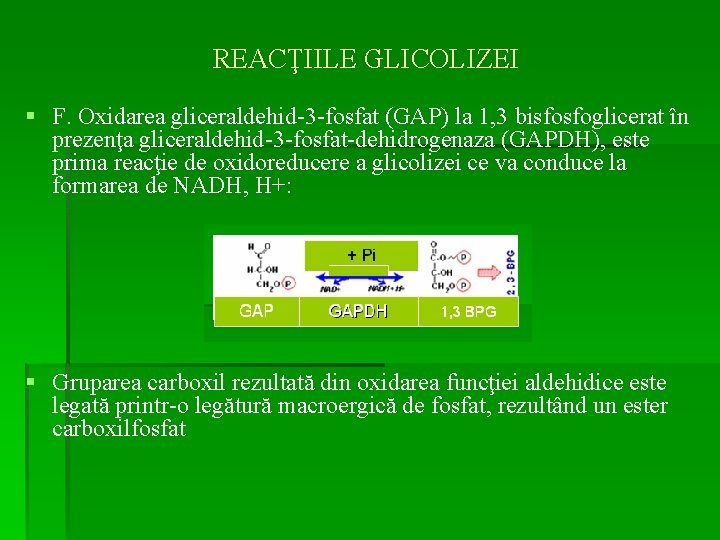
REACŢIILE GLICOLIZEI § F. Oxidarea gliceraldehid-3 -fosfat (GAP) la 1, 3 bisfosfoglicerat în prezenţa gliceraldehid-3 -fosfat-dehidrogenaza (GAPDH), este prima reacţie de oxidoreducere a glicolizei ce va conduce la formarea de NADH, H+: § Gruparea carboxil rezultată din oxidarea funcţiei aldehidice este legată printr-o legătură macroergică de fosfat, rezultând un ester carboxilfosfat
REACŢIILE GLICOLIZEI § F. Oxidarea gliceraldehid-3 -fosfat (GAP) la 1, 3 bisfosfoglicerat § Cele 2 molecule de GAP obţinute în prima fază vor fi metabolizate la Py, secvenţa enzimatică fiind descrisă pornind de la o moleculă GAP § Enzima care catalizează reacţia este gliceraldehid-3 -fosfat dehidrogenaza, GAPDH, în prezenţa fosfatului anorganic. § Produsul obţinut este 1, 3 -bisfosfoglicerat. Electronii eliberaţi sunt preluaţi de NAD+. Reacţia este reversibilă
REACŢIILE GLICOLIZEI § Pt ca glicoliza să poată continua, NADH rezultat trebuie reoxidat la NAD + prin 2 mecanisme: ○ conversia Py la Lactat (reacţie anaerobă) ○ oxidarea NADH în lanţul respirator mitocondrial Energia fosfatului macroergic facilitează sinteza ATP-ului în următoarea reacţie a glicolizei
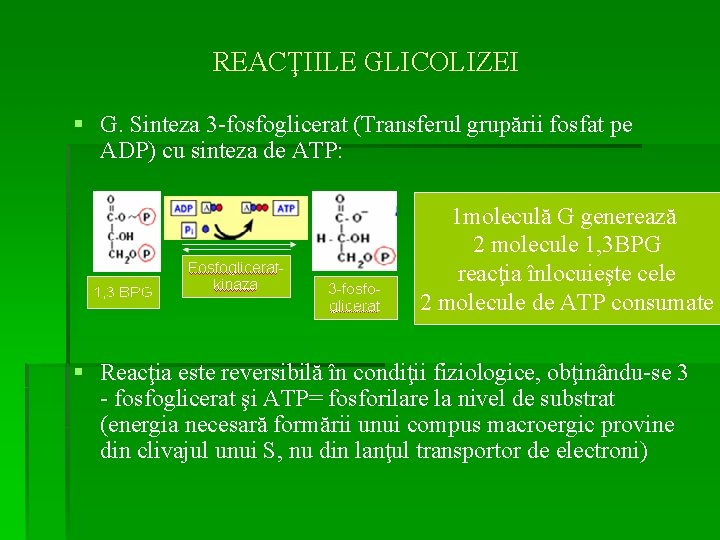
REACŢIILE GLICOLIZEI § G. Sinteza 3 -fosfoglicerat (Transferul grupării fosfat pe ADP) cu sinteza de ATP: 1 moleculă G generează 2 molecule 1, 3 BPG reacţia înlocuieşte cele 2 molecule de ATP consumate § Reacţia este reversibilă în condiţii fiziologice, obţinându-se 3 - fosfoglicerat şi ATP= fosforilare la nivel de substrat (energia necesară formării unui compus macroergic provine din clivajul unui S, nu din lanţul transportor de electroni)
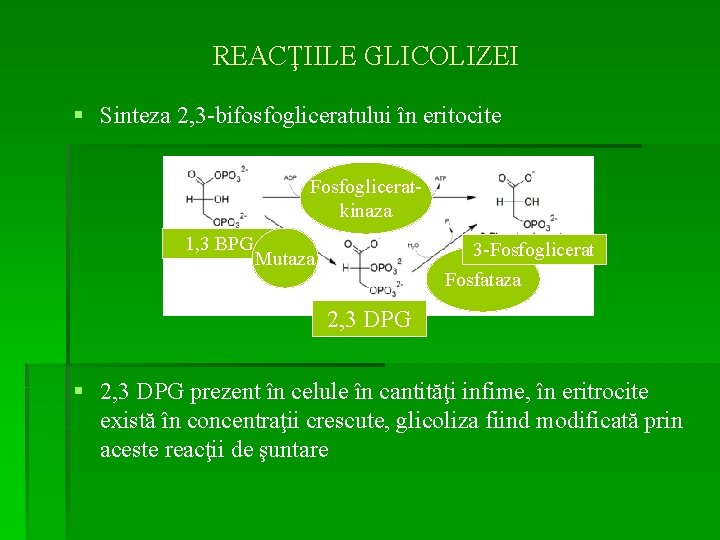
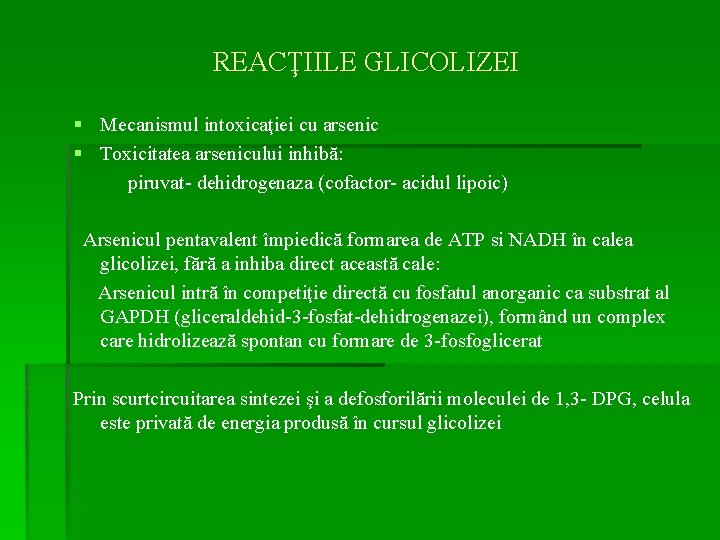
REACŢIILE GLICOLIZEI § Sinteza 2, 3 -bifosfogliceratului în eritocite Fosfogliceratkinaza 1, 3 BPG 3 -Fosfoglicerat Fosfataza Mutaza 2, 3 DPG § 2, 3 DPG prezent în celule în cantităţi infime, în eritrocite există în concentraţii crescute, glicoliza fiind modificată prin aceste reacţii de şuntare
REACŢIILE GLICOLIZEI § Mecanismul intoxicaţiei cu arsenic § Toxicitatea arsenicului inhibă: piruvat- dehidrogenaza (cofactor- acidul lipoic) Arsenicul pentavalent împiedică formarea de ATP si NADH în calea glicolizei, fără a inhiba direct această cale: Arsenicul intră în competiţie directă cu fosfatul anorganic ca substrat al GAPDH (gliceraldehid-3 -fosfat-dehidrogenazei), formând un complex care hidrolizează spontan cu formare de 3 -fosfoglicerat Prin scurtcircuitarea sintezei şi a defosforilării moleculei de 1, 3 - DPG, celula este privată de energia produsă în cursul glicolizei
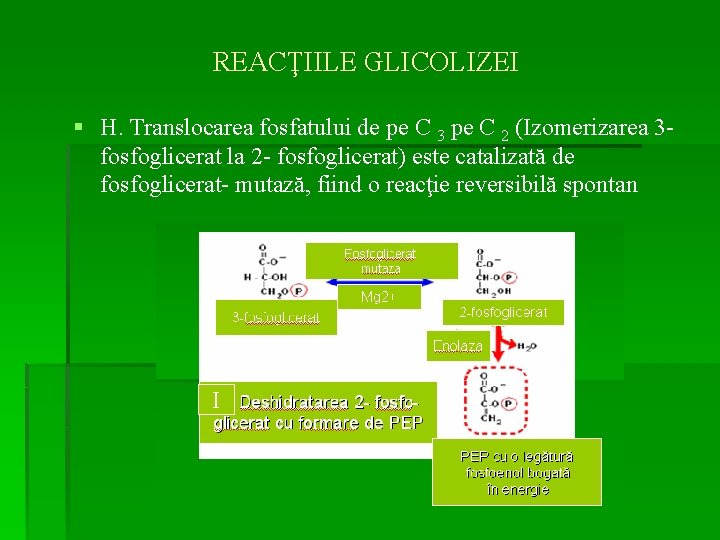
REACŢIILE GLICOLIZEI § H. Translocarea fosfatului de pe C 3 pe C 2 (Izomerizarea 3 fosfoglicerat la 2 - fosfoglicerat) este catalizată de fosfoglicerat- mutază, fiind o reacţie reversibilă spontan I
REACŢIILE GLICOLIZEI § I. Deshidratarea 2 - fosfoglicerat cu formarea fosfoenolpiruvat (PEP) are loc sub acţiunea enolazei § inducând redistribuirea energiei în cadrul moleculei cu formarea fosfoenolpiruvatului (PEP) ce conţine o grupare enol-fosfat macroergică. § Reacţia este reversibilă în pofida caracterului macroergic al produsului
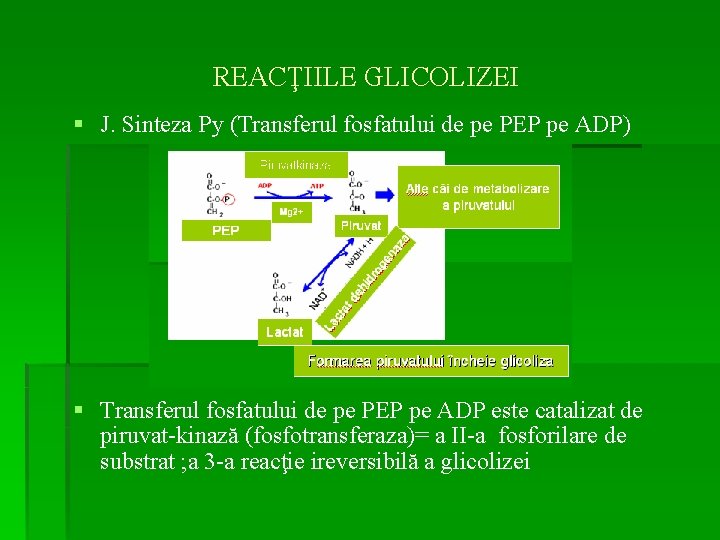
REACŢIILE GLICOLIZEI § J. Sinteza Py (Transferul fosfatului de pe PEP pe ADP) § Transferul fosfatului de pe PEP pe ADP este catalizat de piruvat-kinază (fosfotransferaza)= a II-a fosforilare de substrat ; a 3 -a reacţie ireversibilă a glicolizei
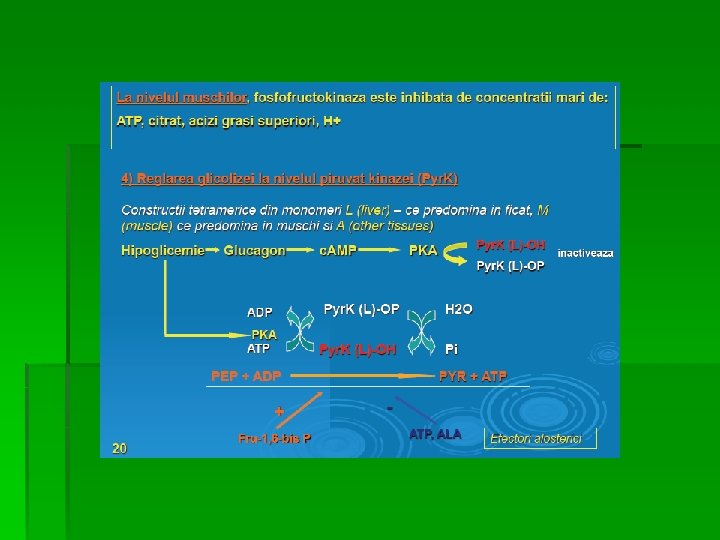
REACŢIILE GLICOLIZEI § 1. Reglarea prin conexiune directă (feed- forward) a piruvatkinazei: § La nivel hepatic, piruvat-kinaza este activată de Fr-1, 6 difosfat, produsul reacţiei catalizate de fosfofructokinază § Reglarea feed- forward este diferită de mecanismul feedback, determinând cuplarea celor două kinaze: ○ creşterea activităţii FFr. K conduce la creşterea [Fr-1, 6 difosfat], care activează piruvat-kinaza
REACŢIILE GLICOLIZEI § 2. Modularea covalentă a piruvat-kinazei: § Fosforilarea unei protein-kinaze AMPc- dependente determină inactivarea piruvat-kinazei hepatice, mecanism declanşat la glicemie scăzută (glucagonul stimulează creşterea [c. AMP]) § PEP nu mai participă la recţiile glicolizei şi pătrunde în circuitul GNG; glucagonul inhibă glicoliza hepatică şi stimulează GNG § Defosforilarea piruvat kinazei sub acţiunea unei fosfoprotein - fosfataze determină reactivarea enzimei
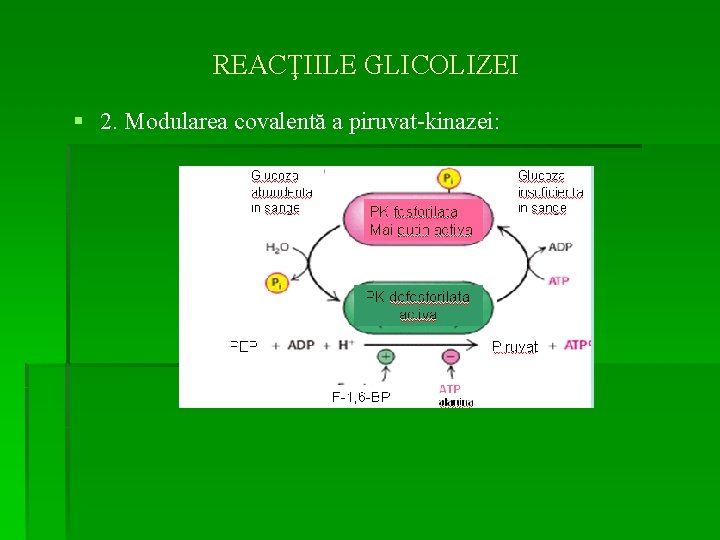
REACŢIILE GLICOLIZEI § 2. Modularea covalentă a piruvat-kinazei:
REGLAREA GLICOLIZEI
REACŢIILE GLICOLIZEI § 3. Deficitul de piruvat-kinază ca frecvenţă, reprezintă a doua cauză de anemie hemolitică prin deficit enzimatic (după deficitul de glucozo-6 -fosfat dehidrogenaza) § Eritrocitul matur, normal, nu dispune de mitocondrii, pt producerea de ATP fiind complet dependent de glicoliză § ATP: necesităţi metabolice eritrocitare; combustibil biologic al pompelor ionice ce asigură menţinerea formei biconcave flexibile a hematiei
REACŢIILE GLICOLIZEI § Anemia hemolitică din deficitul de piruvat-kinază: § § § consecinţă a modificării membranei eritrocitare cu alterarea formei hematiei fagocitarea hematiilor de către SRE (macrofagele splenice) 95% dintre defectele genetice ale enzimelor glicolitice 4% deficit de fosfogluco- izomerază formă cronică de gravitate medie sau severă (transfuzii repetate)
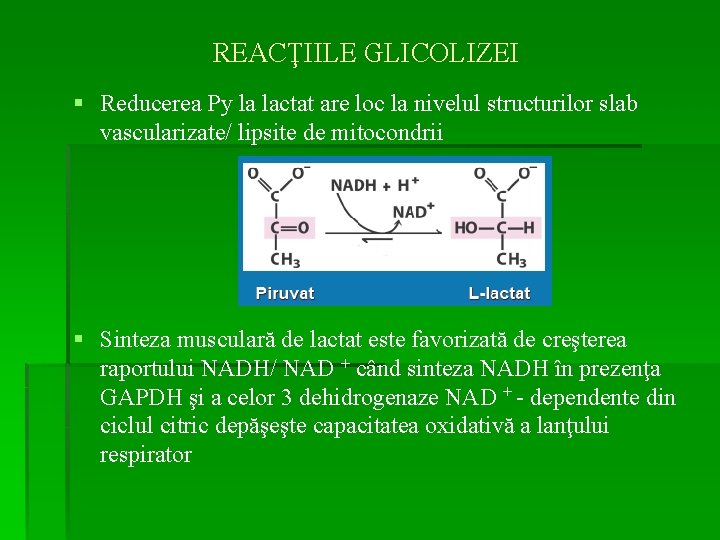
REACŢIILE GLICOLIZEI § Reducerea Py la lactat are loc la nivelul structurilor slab vascularizate/ lipsite de mitocondrii § Sinteza musculară de lactat este favorizată de creşterea raportului NADH/ NAD + când sinteza NADH în prezenţa GAPDH şi a celor 3 dehidrogenaze NAD + - dependente din ciclul citric depăşeşte capacitatea oxidativă a lanţului respirator
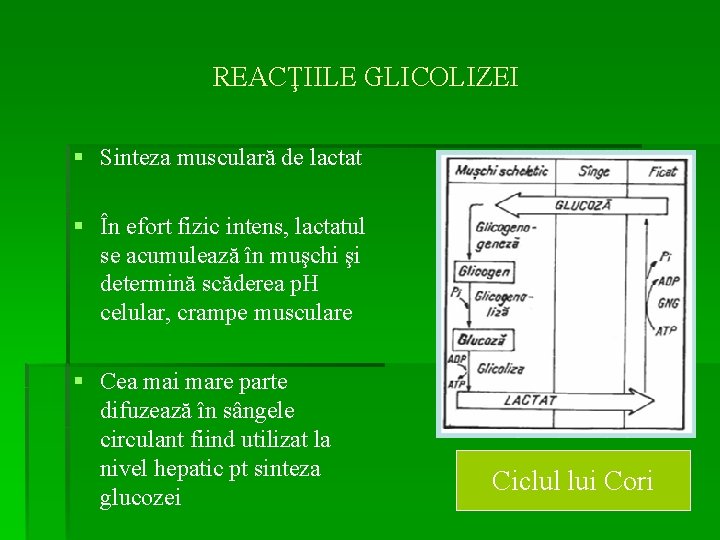
REACŢIILE GLICOLIZEI § Sinteza musculară de lactat § În efort fizic intens, lactatul se acumulează în muşchi şi determină scăderea p. H celular, crampe musculare § Cea mai mare parte difuzează în sângele circulant fiind utilizat la nivel hepatic pt sinteza glucozei Ciclul lui Cori
REACŢIILE GLICOLIZEI § Utilizarea lactatului § Sensul reacţiei catalizate de LDH depinde de : ○ [lactat], [piruvat] icel. ○ NADH/ NAD + La nivel hepatic şi cardiac, NADH/ NAD + este < faţă de muşchiul în efort, lactatul fiind oxidat la Py În ficat, Py este convertit în G prin GNG sau oxidat în ciclul citric Muşchiul cardiac este singurul capabil să oxideze lactatul în CO 2 şi apă pe calea ciclului citric
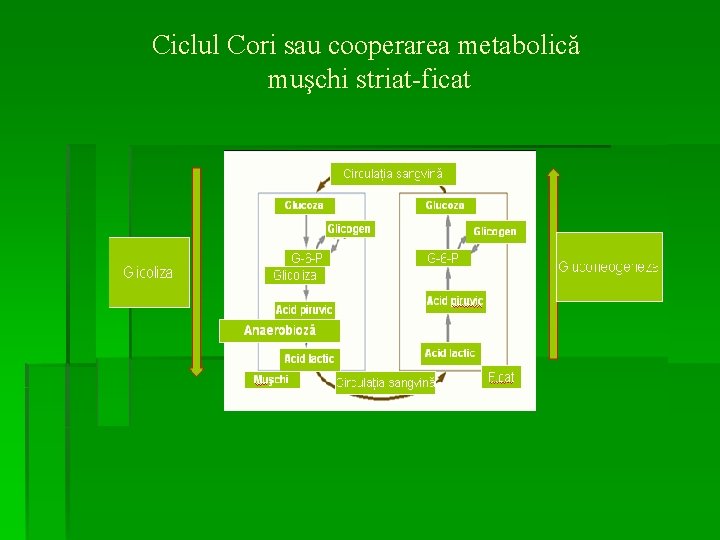
Ciclul Cori sau cooperarea metabolică muşchi striat-ficat
REACŢIILE GLICOLIZEI § Acidoza lactică = creşterea [lactat] ce însoţeşte colapsul circ. din ○ infarctul miocardic ○ embolia pulmonară ○ hemoragiile necontrolate ○ şoc § Excesul de oxigen necesar recuperării după o perioadă de în care aportul de oxigen a fost inadecvat = "datorie de oxigen" § Lactacidemia permite depistarea rapidă a datoriei de oxigen, permite monitorizarea recuperării pacientului cu şoc
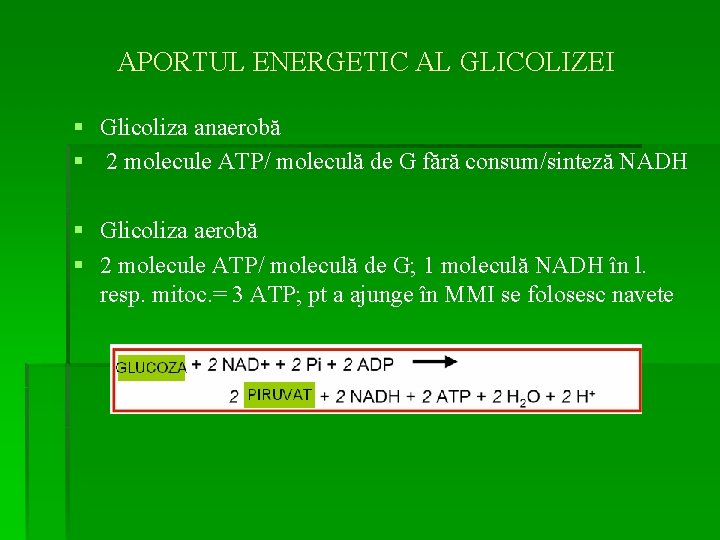
APORTUL ENERGETIC AL GLICOLIZEI § Glicoliza anaerobă § 2 molecule ATP/ moleculă de G fără consum/sinteză NADH § Glicoliza aerobă § 2 molecule ATP/ moleculă de G; 1 moleculă NADH în l. resp. mitoc. = 3 ATP; pt a ajunge în MMI se folosesc navete
REGLAREA HORMONALĂ A GLICOLIZEI § Reglarea alosterică a glicolizei sau prin fosforilarea/ defosforilarea E limitante de viteza este de scurtă durată § Reglarea hormonală determină creşterea de 10 -20 ori a activităţii enzimatice (ore, zile) § Mesele bogate în CH sau insulina activează transcripţia genică precum şi creşterea [glucokinază], [FFr. K] şi [piruvatkinaza] la nivel hepatic cu activarea glicolizei § Transcripţia genică şi sinteza celor 3 E sunt reduse à jeun, în DZ, glucagon plasmatic şi insulina
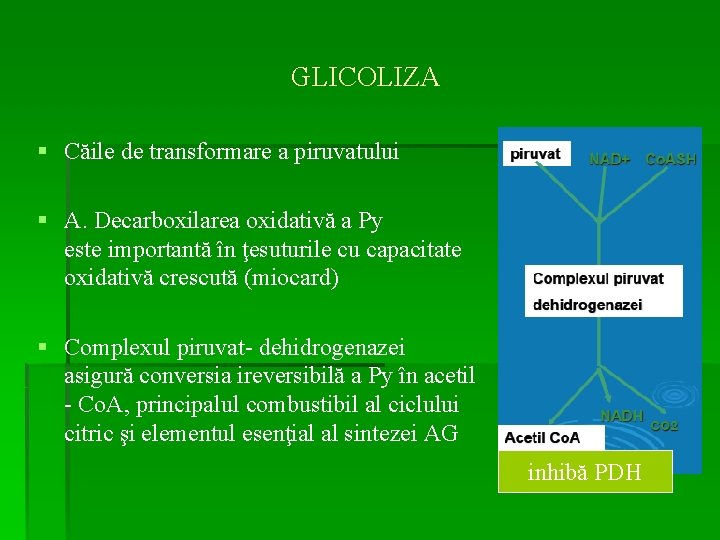
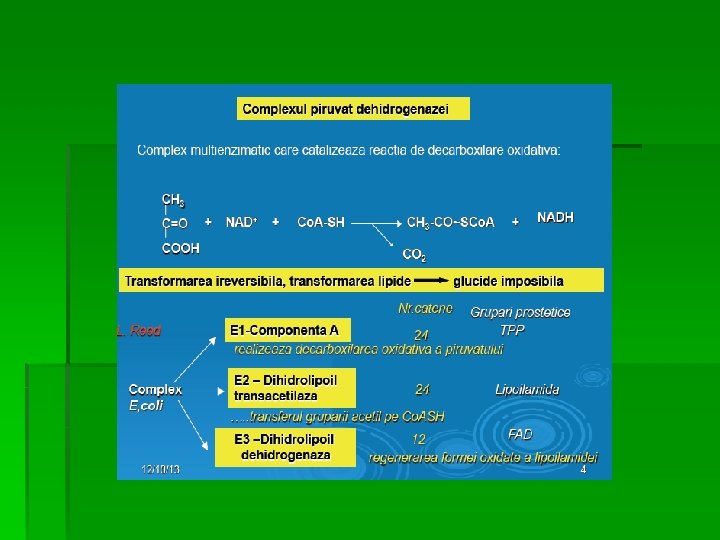
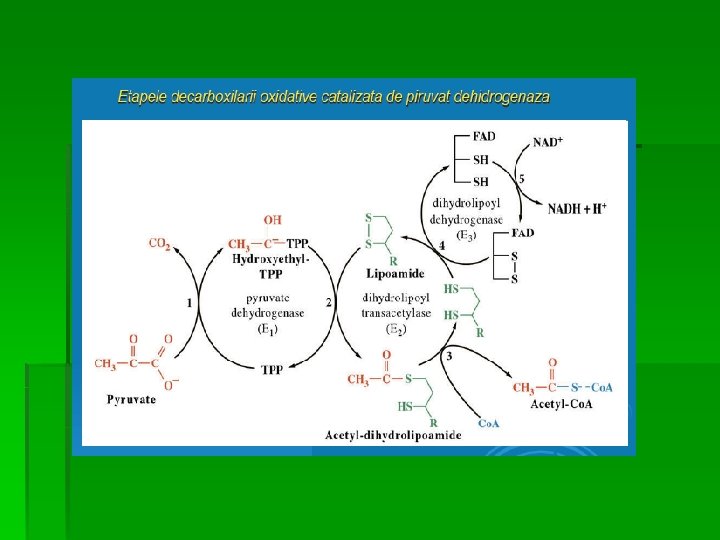
GLICOLIZA § Căile de transformare a piruvatului § A. Decarboxilarea oxidativă a Py este importantă în ţesuturile cu capacitate oxidativă crescută (miocard) § Complexul piruvat- dehidrogenazei asigură conversia ireversibilă a Py în acetil - Co. A, principalul combustibil al ciclului citric şi elementul esenţial al sintezei AG inhibă PDH
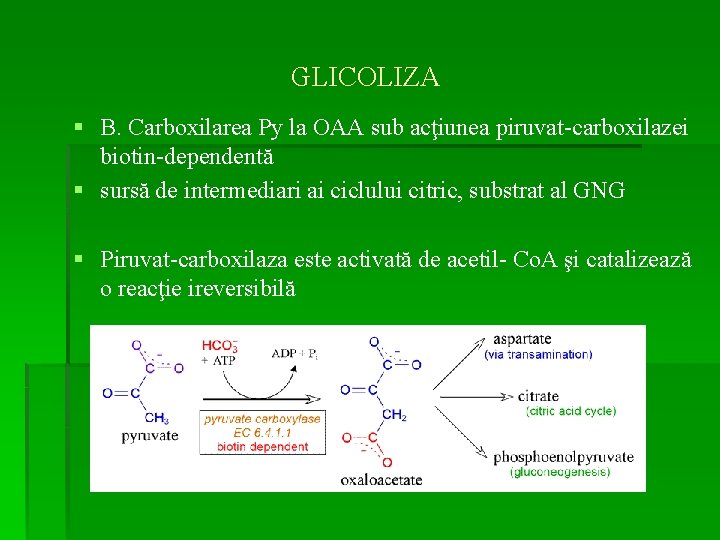
GLICOLIZA § B. Carboxilarea Py la OAA sub acţiunea piruvat-carboxilazei biotin-dependentă § sursă de intermediari ai ciclului citric, substrat al GNG § Piruvat-carboxilaza este activată de acetil- Co. A şi catalizează o reacţie ireversibilă
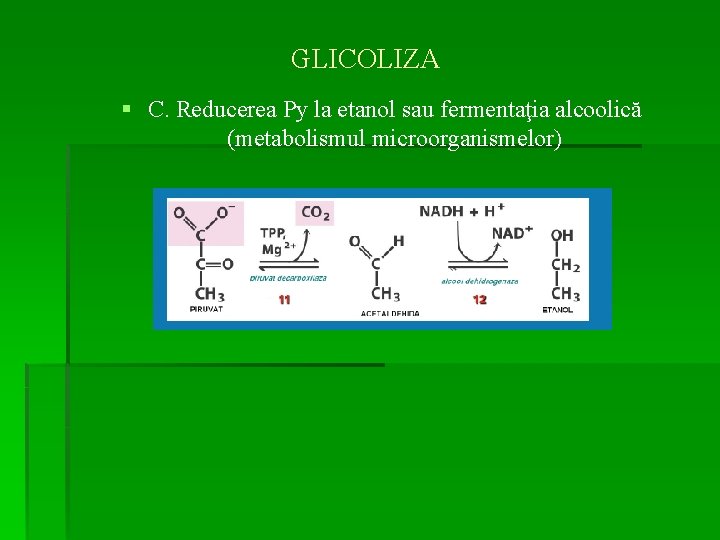
GLICOLIZA § C. Reducerea Py la etanol sau fermentaţia alcoolică (metabolismul microorganismelor)
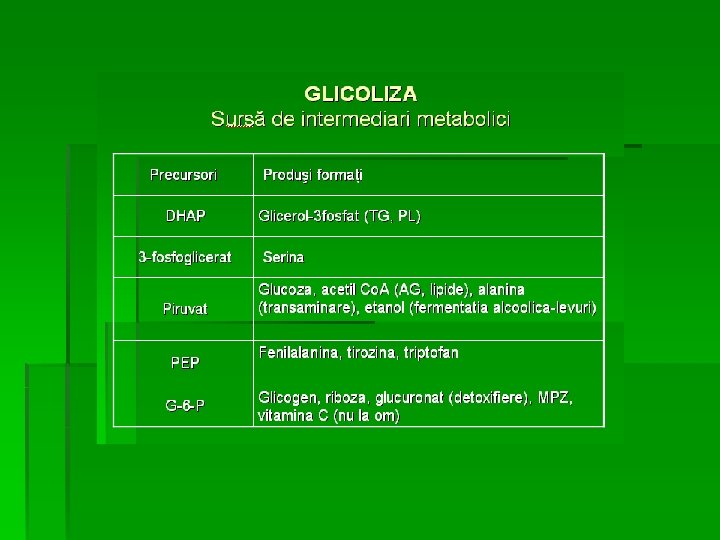
- Slides: 115