
Lipiidide metabolism 1 2 3 4 5 6
Lipiidide metabolism
1. 2. 3. 4. 5. 6. Triatsüülglütseroolide metabolism Rasvhapete katabolism Ketokehad Rasvhapete biosüntees Kolesterool Lipiidide transport
Rasvad- oluline metaboolne kütus • Neutraalsed rasvad- oluline energeetiline depoo. • Olulisem- rasvhapete oksüdeerimisel vabanev energia • Võrreldes süsivesikutega võimalik veevaba pakkimine • Enam redutseeritud molekul- oksüdatsioonil vabaneb rohkem energiat • Rasvad- 38 k. J/g • Süsivesikud- 16 k. J/g Rasvhapete primaarsed allikad metabolismis • Toidus leiduvad triatsüülglütseroolid • Maksas sünteesitud triatsüülglütseroolid • Rasvkoe rakkudes säilitatav varu Rasvhapete kataboliseerimine b-oksüdatsioonil toimub: • Maksas • Südames • lihastes
Rasvad on lipiidid- hüdrofoobsed molekulid • Rasvu on võimalik tihedalt pakkida • Probleem tekib rasvade transpordi ja ensümaatilise hüdrolüüsiga • Süljes ja soolestikus olevad lipaasid ei ole väga efektiivsed • Enamus seeditavast rasvast moodustab kaksteistsõrmikus väikesed gloobulid • Sapp aitab täiendavalt rasvu lahustada ja seedida • Sapp produtseeritakse maksas ja hoitakse sapipõies • Siseneb peensoolde • Koosneb kolesteroolist, sapphapete sooladest, valkudest, letsitiinist, anorgaanilisetest ioonidest ja pigmentidest • Võimaldab rasva gloobuleid lõhkuda väiksemateks ja seega suurendada ensüümide poolt atakeeritavat rasvade pinda • Täiendav kogus lipaasi tuleb soolestikku pankreasest
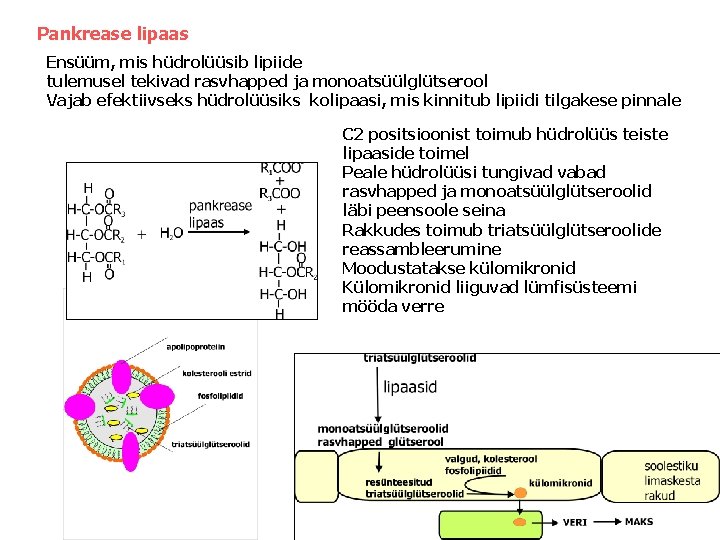
Pankrease lipaas Ensüüm, mis hüdrolüüsib lipiide tulemusel tekivad rasvhapped ja monoatsüülglütserool Vajab efektiivseks hüdrolüüsiks kolipaasi, mis kinnitub lipiidi tilgakese pinnale C 2 positsioonist toimub hüdrolüüs teiste lipaaside toimel Peale hüdrolüüsi tungivad vabad rasvhapped ja monoatsüülglütseroolid läbi peensoole seina Rakkudes toimub triatsüülglütseroolide reassambleerumine Moodustatakse külomikronid Külomikronid liiguvad lümfisüsteemi mööda verre
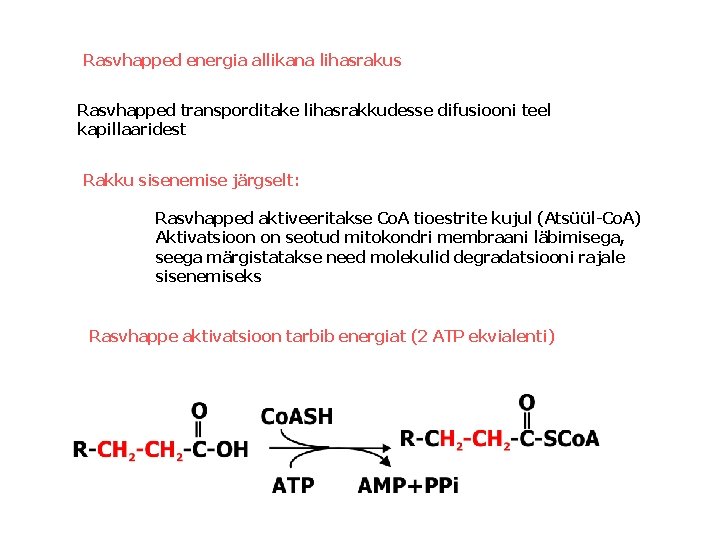
Rasvhapped energia allikana lihasrakus Rasvhapped transporditake lihasrakkudesse difusiooni teel kapillaaridest Rakku sisenemise järgselt: Rasvhapped aktiveeritakse Co. A tioestrite kujul (Atsüül-Co. A) Aktivatsioon on seotud mitokondri membraani läbimisega, seega märgistatakse need molekulid degradatsiooni rajale sisenemiseks Rasvhappe aktivatsioon tarbib energiat (2 ATP ekvialenti)
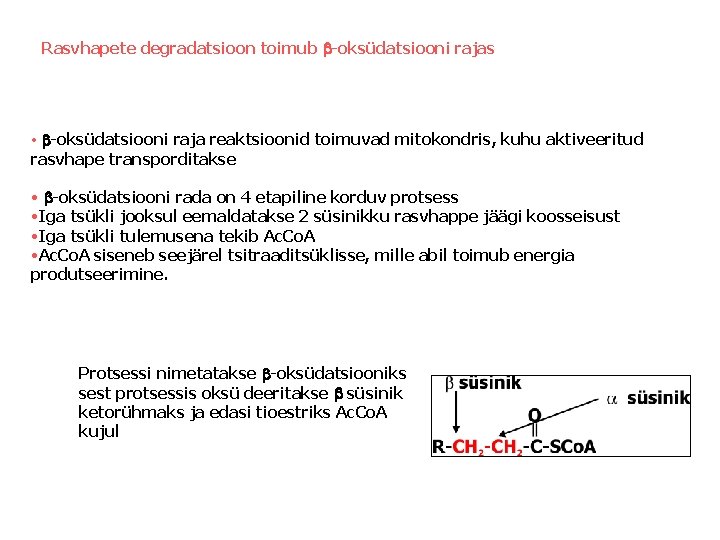
Rasvhapete degradatsioon toimub b-oksüdatsiooni rajas • b-oksüdatsiooni raja reaktsioonid toimuvad mitokondris, kuhu aktiveeritud rasvhape transporditakse • b-oksüdatsiooni rada on 4 etapiline korduv protsess • Iga tsükli jooksul eemaldatakse 2 süsinikku rasvhappe jäägi koosseisust • Iga tsükli tulemusena tekib Ac. Co. A • Ac. Co. A siseneb seejärel tsitraaditsüklisse, mille abil toimub energia produtseerimine. Protsessi nimetatakse b-oksüdatsiooniks sest protsessis oksü deeritakse b süsinik ketorühmaks ja edasi tioestriks Ac. Co. A kujul
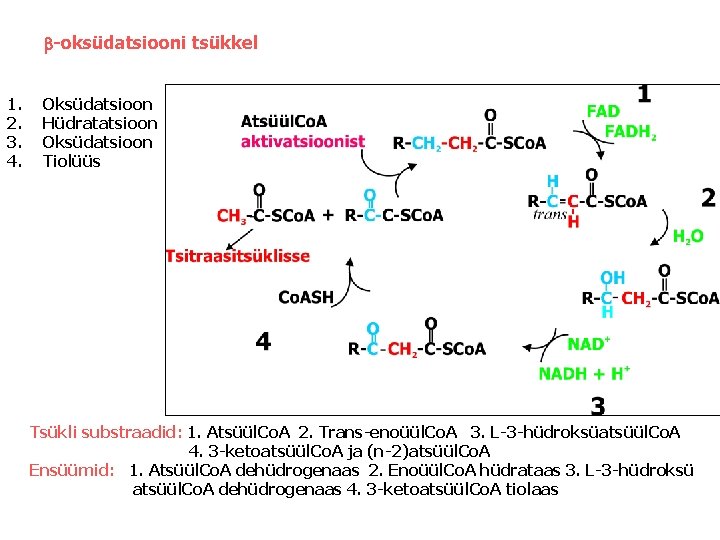
b-oksüdatsiooni tsükkel 1. 2. 3. 4. Oksüdatsioon Hüdratatsioon Oksüdatsioon Tiolüüs Tsükli substraadid: 1. Atsüül. Co. A 2. Trans-enoüül. Co. A 3. L-3 -hüdroksüatsüül. Co. A 4. 3 -ketoatsüül. Co. A ja (n-2)atsüül. Co. A Ensüümid: 1. Atsüül. Co. A dehüdrogenaas 2. Enoüül. Co. A hüdrataas 3. L-3 -hüdroksü atsüül. Co. A dehüdrogenaas 4. 3 -ketoatsüül. Co. A tiolaas
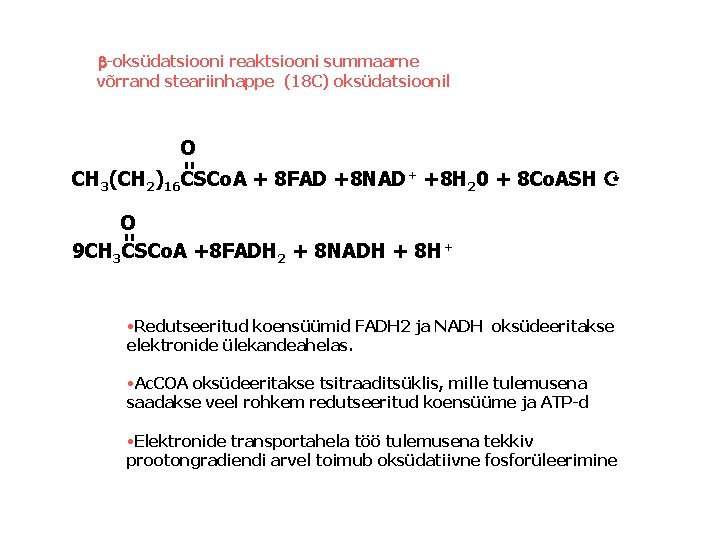
b-oksüdatsiooni reaktsiooni summaarne võrrand steariinhappe (18 C) oksüdatsioonil O CH 3(CH 2)16 CSCo. A + 8 FAD +8 NAD+ +8 H 20 + 8 Co. ASH Z O 9 CH 3 CSCo. A +8 FADH 2 + 8 NADH + 8 H+ • Redutseeritud koensüümid FADH 2 ja NADH oksüdeeritakse elektronide ülekandeahelas. • Ac. COA oksüdeeritakse tsitraaditsüklis, mille tulemusena saadakse veel rohkem redutseeritud koensüüme ja ATP-d • Elektronide transportahela töö tulemusena tekkiv prootongradiendi arvel toimub oksüdatiivne fosforüleerimine
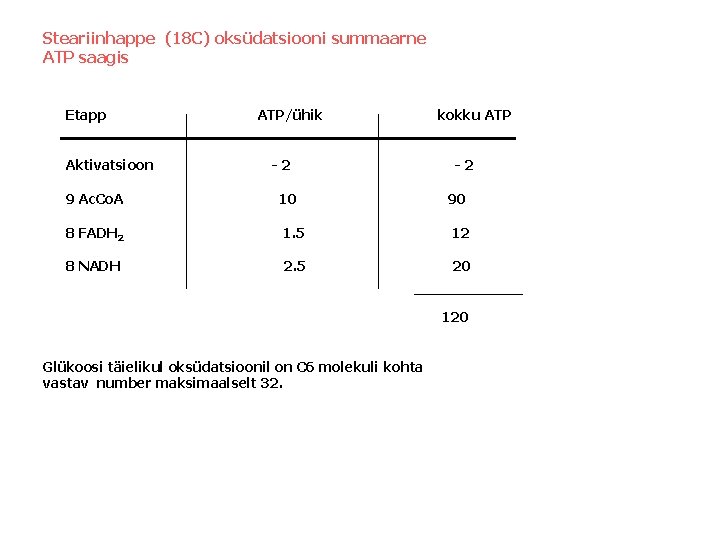
Steariinhappe (18 C) oksüdatsiooni summaarne ATP saagis Etapp Aktivatsioon 9 Ac. Co. A ATP/ühik -2 10 kokku ATP -2 90 8 FADH 2 1. 5 12 8 NADH 2. 5 20 120 Glükoosi täielikul oksüdatsioonil on C 6 molekuli kohta vastav number maksimaalselt 32.
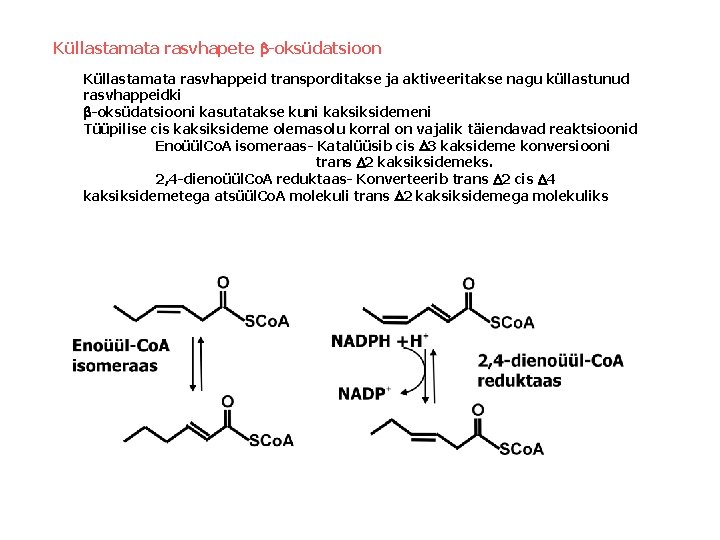
Küllastamata rasvhapete b-oksüdatsioon Küllastamata rasvhappeid transporditakse ja aktiveeritakse nagu küllastunud rasvhappeidki b-oksüdatsiooni kasutatakse kuni kaksiksidemeni Tüüpilise cis kaksiksideme olemasolu korral on vajalik täiendavad reaktsioonid Enoüül. Co. A isomeraas- Katalüüsib cis D 3 kaksideme konversiooni trans D 2 kaksiksidemeks. 2, 4 -dienoüül. Co. A reduktaas- Konverteerib trans D 2 cis D 4 kaksiksidemetega atsüül. Co. A molekuli trans D 2 kaksiksidemega molekuliks
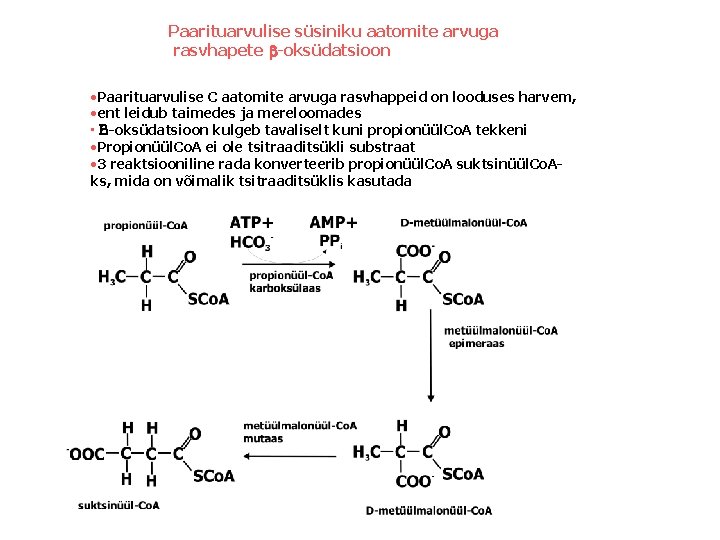
Paarituarvulise süsiniku aatomite arvuga rasvhapete b-oksüdatsioon • Paarituarvulise C aatomite arvuga rasvhappeid on looduses harvem, • ent leidub taimedes ja mereloomades • B-oksüdatsioon kulgeb tavaliselt kuni propionüül. Co. A tekkeni • Propionüül. Co. A ei ole tsitraaditsükli substraat • 3 reaktsiooniline rada konverteerib propionüül. Co. A suktsinüül. Co. Aks, mida on võimalik tsitraaditsüklis kasutada
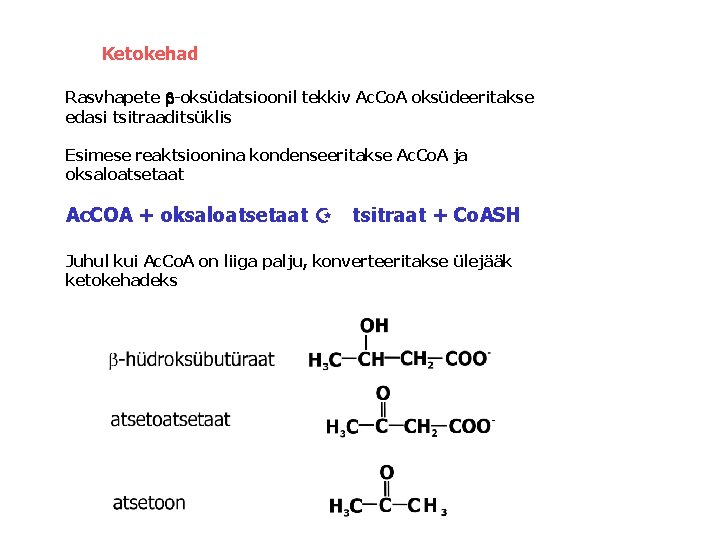
Ketokehad Rasvhapete b-oksüdatsioonil tekkiv Ac. Co. A oksüdeeritakse edasi tsitraaditsüklis Esimese reaktsioonina kondenseeritakse Ac. Co. A ja oksaloatsetaat Ac. COA + oksaloatsetaat Z tsitraat + Co. ASH Juhul kui Ac. Co. A on liiga palju, konverteeritakse ülejääk ketokehadeks
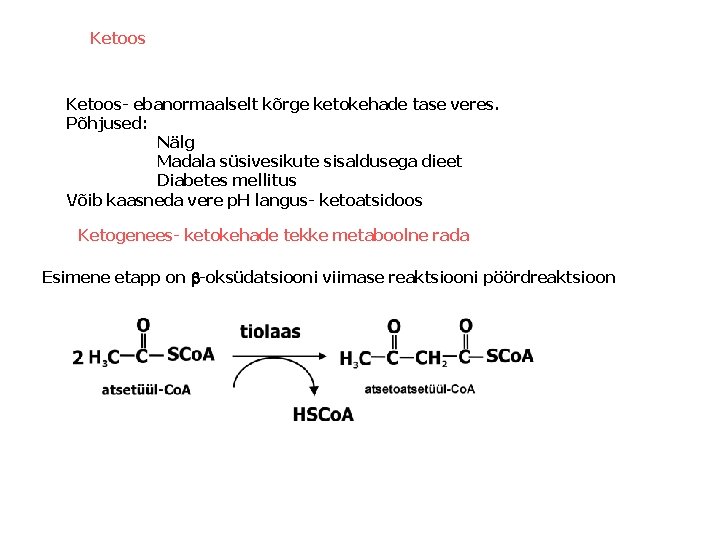
Ketoos- ebanormaalselt kõrge ketokehade tase veres. Põhjused: Nälg Madala süsivesikute sisaldusega dieet Diabetes mellitus Võib kaasneda vere p. H langus- ketoatsidoos Ketogenees- ketokehade tekke metaboolne rada Esimene etapp on b-oksüdatsiooni viimase reaktsiooni pöördreaktsioon
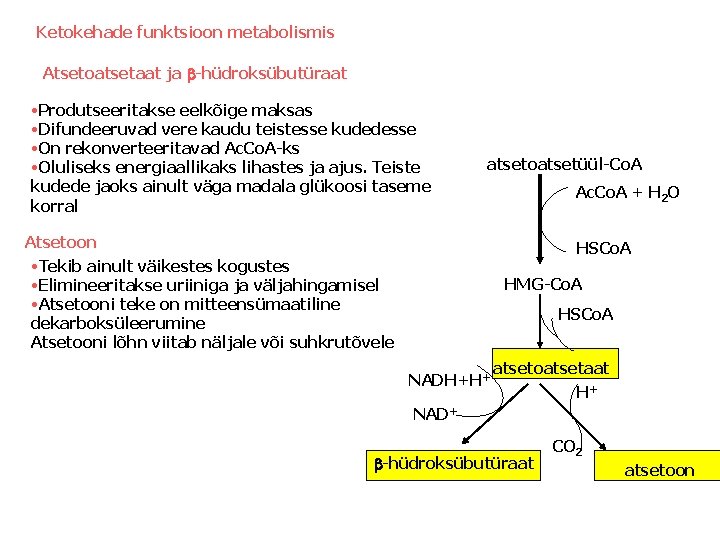
Ketokehade funktsioon metabolismis Atsetoatsetaat ja b-hüdroksübutüraat • Produtseeritakse eelkõige maksas • Difundeeruvad vere kaudu teistesse kudedesse • On rekonverteeritavad Ac. Co. A-ks • Oluliseks energiaallikaks lihastes ja ajus. Teiste kudede jaoks ainult väga madala glükoosi taseme korral atsetoatsetüül-Co. A Atsetoon • Tekib ainult väikestes kogustes • Elimineeritakse uriiniga ja väljahingamisel • Atsetooni teke on mitteensümaatiline dekarboksüleerumine Atsetooni lõhn viitab näljale või suhkrutõvele Ac. Co. A + H 2 O HSCo. A HMG-Co. A HSCo. A NADH+H+ atsetoatsetaat H+ NAD+ b-hüdroksübutüraat CO 2 atsetoon
Rasvhapete biosüntees- toit ei ole ainuke rasva allikas! • Kõik organismid on võimelised rasvhappeid sünteesima tagavaraks ja membraanilipiidide tarvis • Imetajate organismis konverteeritakse Ac. Co. A ülejääk rasvhapete estriteks • Rasvhapete süntees imetajate rakkudes sarnaneb nende degradatsioonile, lokatsioon on erinev • Rasvhapete süntees toimub tsütoplasmas • Rasvhapete deradatsioon toimub mitokondris • Atsüüli kandja valk (ACP) on sünteesil kasutusel kui atsüülrühma kandja • Süntees toimub multiensüümsel kompleksil – rasvhappe süntaasil • Degradatsioonil osalevad kofaktorid NADH ja FADH 2 • Sünteesil osaleb kofaktor NADPH
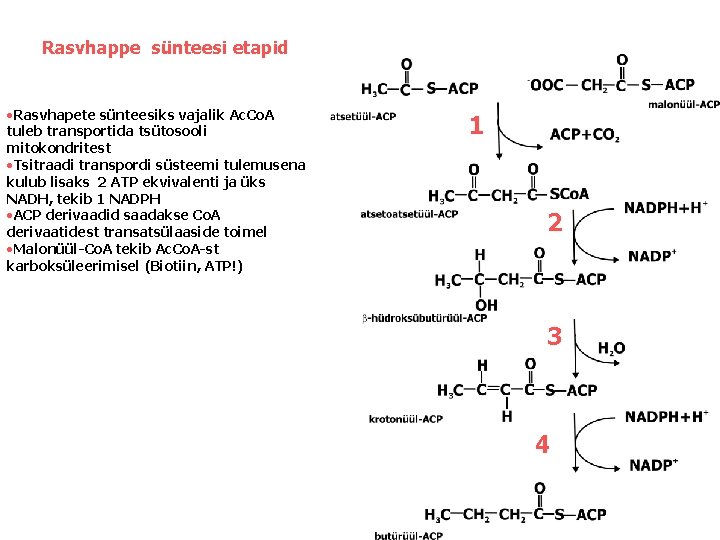
Rasvhappe sünteesi etapid • Rasvhapete sünteesiks vajalik Ac. Co. A tuleb transportida tsütosooli mitokondritest • Tsitraadi transpordi süsteemi tulemusena kulub lisaks 2 ATP ekvivalenti ja üks NADH, tekib 1 NADPH • ACP derivaadid saadakse Co. A derivaatidest transatsülaaside toimel • Malonüül-Co. A tekib Ac. Co. A-st karboksüleerimisel (Biotiin, ATP!) 1 2 3 4
Rasvade kasutamine metabolismis ja regulatsioon • Kõik organid ei ole võimelised rasvasid või rasvhappeid vahetult kasutama • Maks on tsentraalsel kohal rasvade metabolismi kontrollis • Maks on glükoosi allikaks teistele kudedele • Maks reguleerib glükoosi taset veres konverteerides glükogeeni glükoosiks ja vastupidi • Maks on võimeline konverteerima lihastes tekkivat laktaati glükoosiks. • Maksas toodetakse ketokehasid teistes organites utiliseerimiseks
Kolesterool • Vees mitte lahustuv aine, liigitatakse lipiidide hulka. • Ehkki kolesterool on halva kuulsusega, on kolesterool hädavajalik • Reguleerib loomarakkude membraanide voolavust • Oluline eellane mitmetele bioaktiivsetele ühenditele: steroidhormoonid, sapphapped, vitamiin D
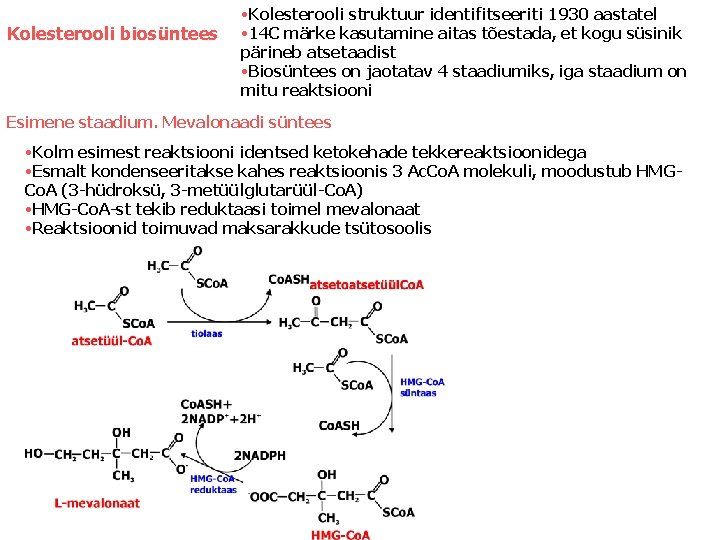
Kolesterooli biosüntees • Kolesterooli struktuur identifitseeriti 1930 aastatel • 14 C märke kasutamine aitas tõestada, et kogu süsinik pärineb atsetaadist • Biosüntees on jaotatav 4 staadiumiks, iga staadium on mitu reaktsiooni Esimene staadium. Mevalonaadi süntees • Kolm esimest reaktsiooni identsed ketokehade tekkereaktsioonidega • Esmalt kondenseeritakse kahes reaktsioonis 3 Ac. Co. A molekuli, moodustub HMGCo. A (3 -hüdroksü, 3 -metüülglutarüül-Co. A) • HMG-Co. A-st tekib reduktaasi toimel mevalonaat • Reaktsioonid toimuvad maksarakkude tsütosoolis
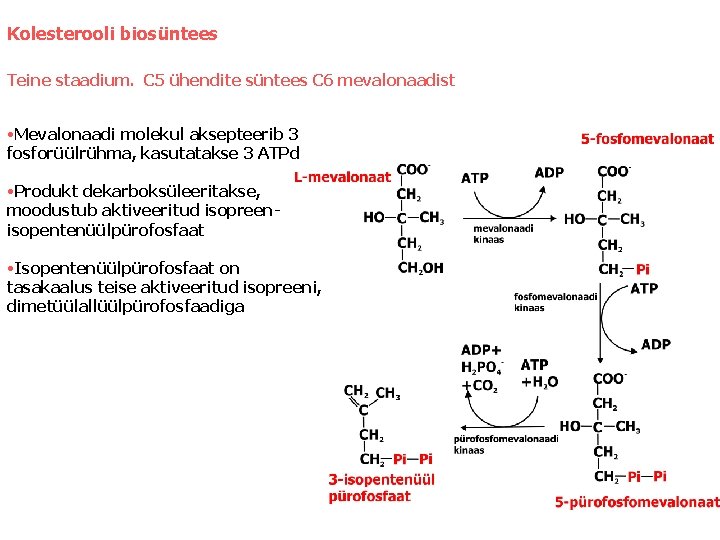
Kolesterooli biosüntees Teine staadium. C 5 ühendite süntees C 6 mevalonaadist • Mevalonaadi molekul aksepteerib 3 fosforüülrühma, kasutatakse 3 ATPd • Produkt dekarboksüleeritakse, moodustub aktiveeritud isopreenisopentenüülpürofosfaat • Isopentenüülpürofosfaat on tasakaalus teise aktiveeritud isopreeni, dimetüülallüülpürofosfaadiga
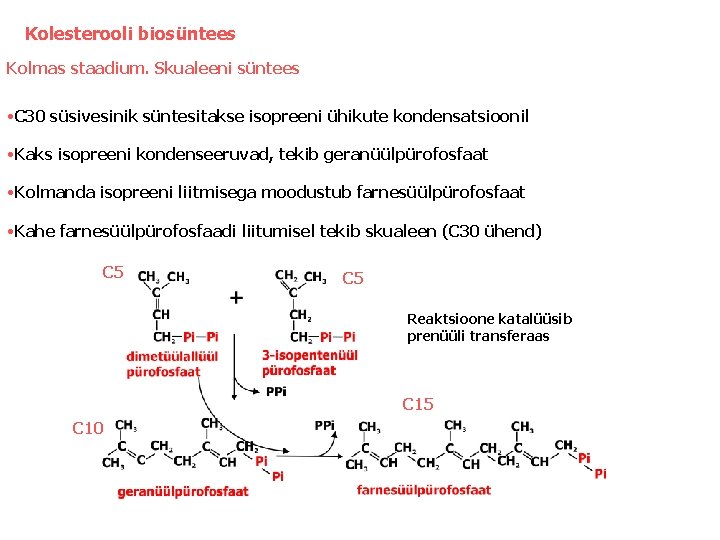
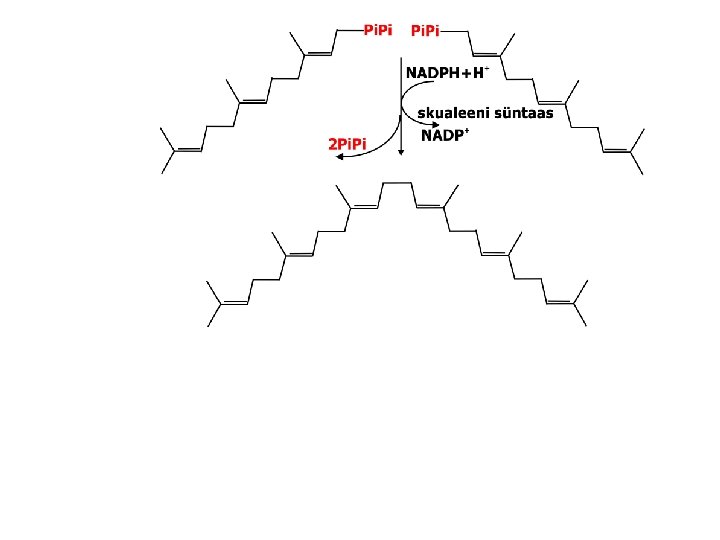
Kolesterooli biosüntees Kolmas staadium. Skualeeni süntees • C 30 süsivesinik süntesitakse isopreeni ühikute kondensatsioonil • Kaks isopreeni kondenseeruvad, tekib geranüülpürofosfaat • Kolmanda isopreeni liitmisega moodustub farnesüülpürofosfaat • Kahe farnesüülpürofosfaadi liitumisel tekib skualeen (C 30 ühend) C 5 Reaktsioone katalüüsib prenüüli transferaas C 15 C 10
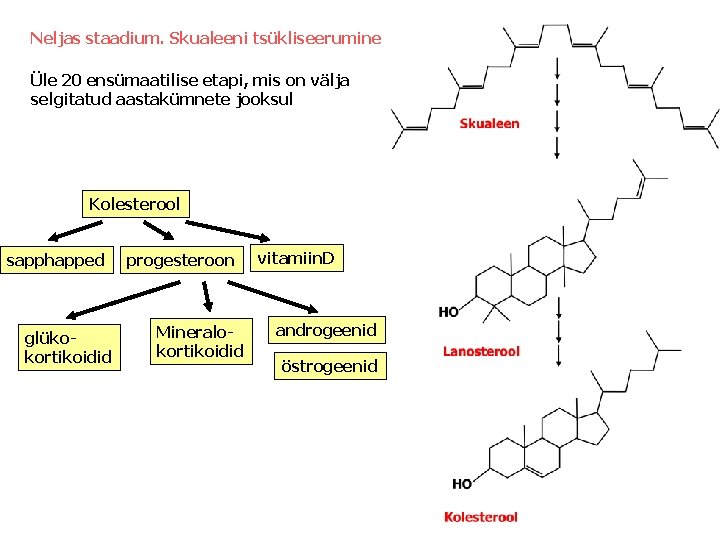
Neljas staadium. Skualeeni tsükliseerumine Üle 20 ensümaatilise etapi, mis on välja selgitatud aastakümnete jooksul Kolesterool sapphapped glükokortikoidid progesteroon Mineralokortikoidid vitamiin. D androgeenid östrogeenid
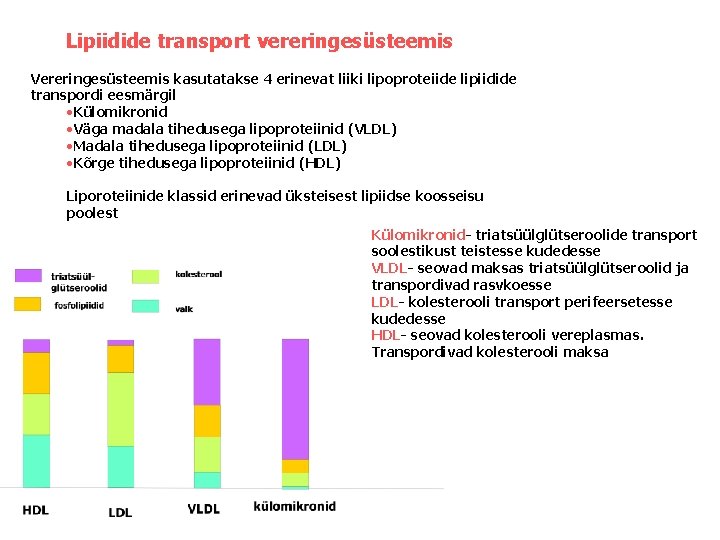
Lipiidide transport vereringesüsteemis Vereringesüsteemis kasutatakse 4 erinevat liiki lipoproteiide lipiidide transpordi eesmärgil • Külomikronid • Väga madala tihedusega lipoproteiinid (VLDL) • Madala tihedusega lipoproteiinid (LDL) • Kõrge tihedusega lipoproteiinid (HDL) Liporoteiinide klassid erinevad üksteisest lipiidse koosseisu poolest Külomikronid- triatsüülglütseroolide transport soolestikust teistesse kudedesse VLDL- seovad maksas triatsüülglütseroolid ja transpordivad rasvkoesse LDL- kolesterooli transport perifeersetesse kudedesse HDL- seovad kolesterooli vereplasmas. Transpordivad kolesterooli maksa
LDL partiklite sisenemine rakku Retseptorite poolt vahendatav endotsütoos • Raku pinnal olevad retseptorid tunnevad ära LDL • Toimub invaginatsioon, taskute moodustumine membraanis • LDL sisestatakse rakku endosoomina • Endosoom sulandub lüsosoomiga, hüdrolüütilisi ensüüme sisaldava organelliga • Ensüümid lõhestavad LDL, vabastades kolesterooli • Kolesterooli olemasolul rakus vähendab kolesterooli sünteesi ja inhibeerib LDL retseptorite produktsiooni • Suur hulk LDL retseptoreid võimaldab kiiret kolesterooli taseme alandamist • LDL retseptorit kodeeriva geeni defektid põhjustavad kolesterooli kõrgel tasemel akumulatsiooni vereplasmas. Kolesterool ladestub arterite seintes põhjustades arteroskleroosi
- Slides: 26