
J Kol Biologick rytmy a fotoperiodizmus rostlin 9
J. Kolář - Biologické rytmy a fotoperiodizmus rostlin 9: Fotoperiodická indukce kvetení
Fotoperiodická regulace kvetení • velmi vhodná adaptace pro načasování kvetení do vhodné roční doby (takové, aby rostlina kvetla za příznivých podmínek a často také aby semena dozrála před začátkem nepříznivého období - mráz, sucho apod. ) • fotoperiodizmus je jedním z mechanizmů regulace kvetení; jeho důležitost může být u některých druhů značná, obvykle se ale fotoperiodické podněty kombinují s účinkem jiných faktorů (nízká teplota během vernalizace, ontogenetické stáří jedince, biomasa, stres aj. ) • každý druh a mnohdy i ekotyp mají jinou strategii fotoperiodické kontroly kvetení; je proto nutná velká opatrnost při zobecňování získaných výsledků
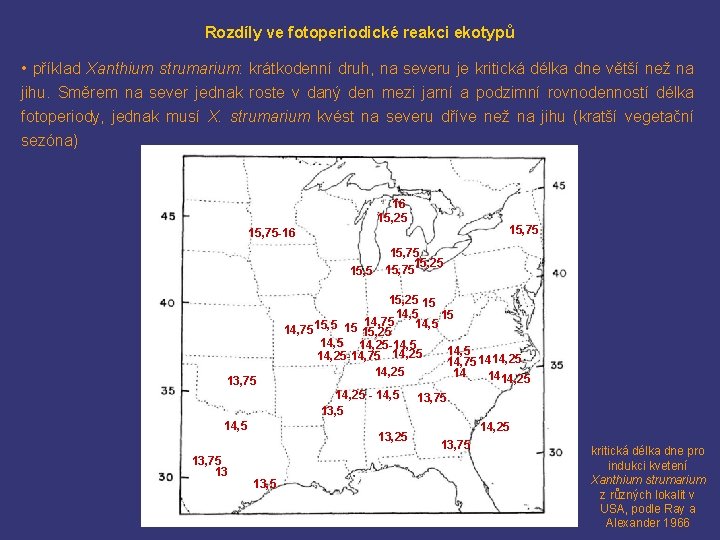
Rozdíly ve fotoperiodické reakci ekotypů • příklad Xanthium strumarium: krátkodenní druh, na severu je kritická délka dne větší než na jihu. Směrem na sever jednak roste v daný den mezi jarní a podzimní rovnodenností délka fotoperiody, jednak musí X. strumarium kvést na severu dříve než na jihu (kratší vegetační sezóna) 16 15, 25 15, 75 -16 15, 5 13, 75 14, 5 13, 75 13 13, 5 15, 75 15, 25 15 14, 75 14, 5 15 14, 75 15, 25 14, 25 -14, 75 14, 25 14, 75 1414, 25 14 1414, 25 - 14, 5 13, 75 13, 5 14, 25 13, 75 kritická délka dne pro indukci kvetení Xanthium strumarium z různých lokalit v USA, podle Ray a Alexander 1966
Fotoperiodická regulace kvetení • fotoperiodicky mohou být řízeny různé fáze přechodu ke kvetení; lze rozlišit 3 kategorie: > rostliny s fotoperiodickým požadavkem pro iniciaci květů, ale fotoperiodicky neutrální pro jejich další vývoj > rostliny s fotoperiodickým požadavkem pro iniciaci i další růst květů (obvykle stejný požadavek pro obě fáze, v některých případech ale opačné typy fotoperiodické reakce) > rostliny fotoperiodicky neutrální pro iniciaci květů a s fotoperiodickým požadavkem pro další vývoj • u některých druhů může být kvetení indukováno jejich vystavením vhodné (indukční) fotoperiodě, přičemž rostliny následně vykvetou i po přesunu do neindukčních podmínek • dále se budeme zabývat pouze fotoperiodickou indukcí kvetení, tj. vlivem fotoperiody na zakládání květů a květenství
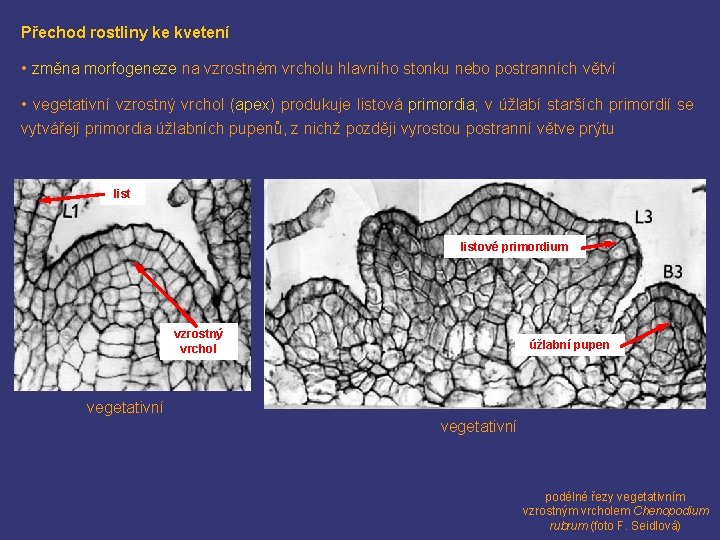
Přechod rostliny ke kvetení • změna morfogeneze na vzrostném vrcholu hlavního stonku nebo postranních větví • vegetativní vzrostný vrchol (apex) produkuje listová primordia; v úžlabí starších primordií se vytvářejí primordia úžlabních pupenů, z nichž později vyrostou postranní větve prýtu listové primordium vzrostný vrchol úžlabní pupen vegetativní podélné řezy vegetativním vzrostným vrcholem Chenopodium rubrum (foto F. Seidlová)
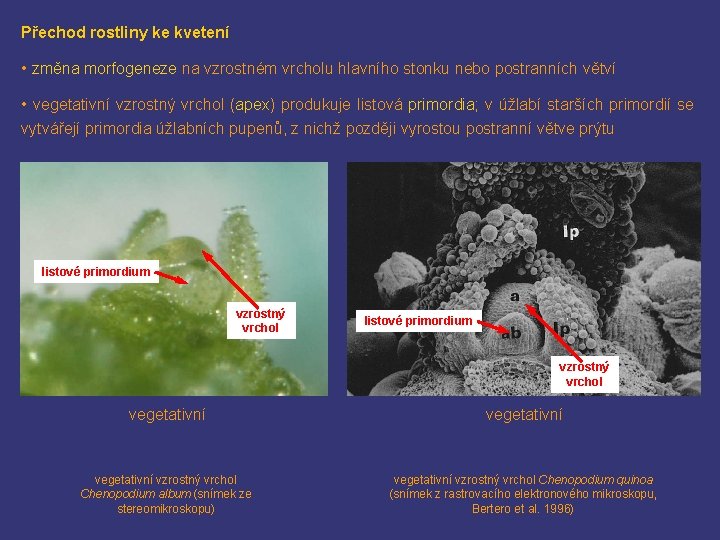
Přechod rostliny ke kvetení • změna morfogeneze na vzrostném vrcholu hlavního stonku nebo postranních větví • vegetativní vzrostný vrchol (apex) produkuje listová primordia; v úžlabí starších primordií se vytvářejí primordia úžlabních pupenů, z nichž později vyrostou postranní větve prýtu listové primordium vzrostný vrchol vegetativní vzrostný vrchol Chenopodium album (snímek ze stereomikroskopu) vegetativní vzrostný vrchol Chenopodium quinoa (snímek z rastrovacího elektronového mikroskopu, Bertero et al. 1996)
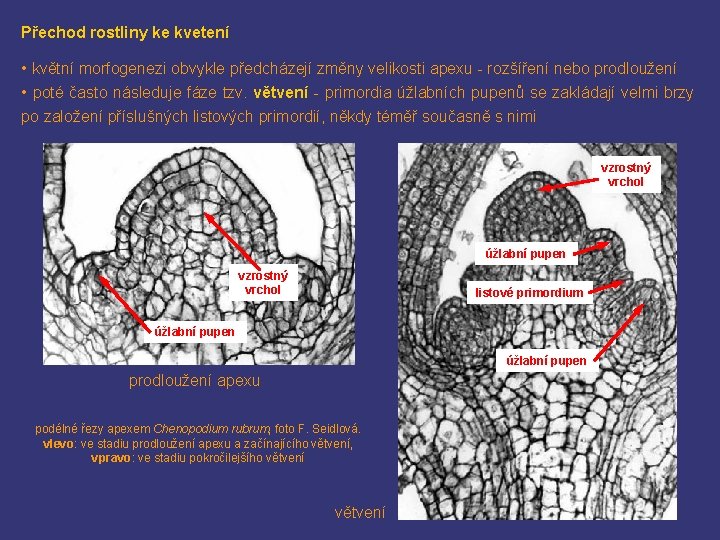
Přechod rostliny ke kvetení • květní morfogenezi obvykle předcházejí změny velikosti apexu - rozšíření nebo prodloužení • poté často následuje fáze tzv. větvení - primordia úžlabních pupenů se zakládají velmi brzy po založení příslušných listových primordií, někdy téměř současně s nimi vzrostný vrchol úžlabní pupen vzrostný vrchol listové primordium úžlabní pupen prodloužení apexu podélné řezy apexem Chenopodium rubrum, foto F. Seidlová. vlevo: ve stadiu prodloužení apexu a začínajícího větvení, vpravo: ve stadiu pokročilejšího větvení
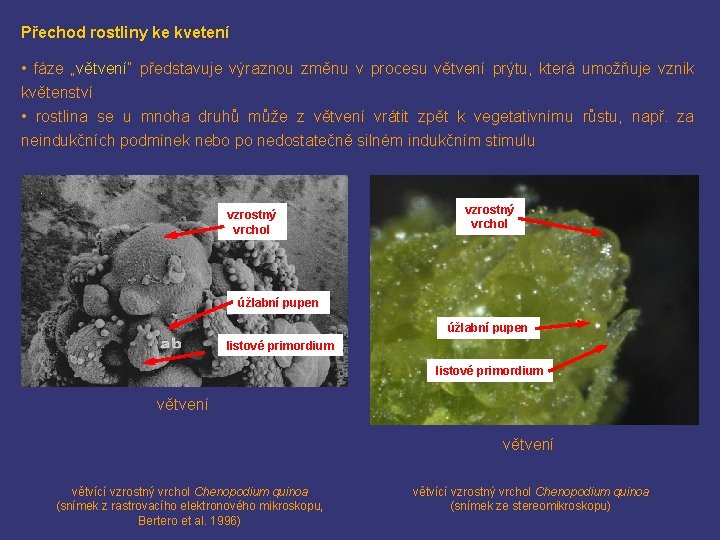
Přechod rostliny ke kvetení • fáze „větvení“ představuje výraznou změnu v procesu větvení prýtu, která umožňuje vznik květenství • rostlina se u mnoha druhů může z větvení vrátit zpět k vegetativnímu růstu, např. za neindukčních podmínek nebo po nedostatečně silném indukčním stimulu vzrostný vrchol úžlabní pupen listové primordium větvení větvící vzrostný vrchol Chenopodium quinoa (snímek z rastrovacího elektronového mikroskopu, Bertero et al. 1996) větvící vzrostný vrchol Chenopodium quinoa (snímek ze stereomikroskopu)
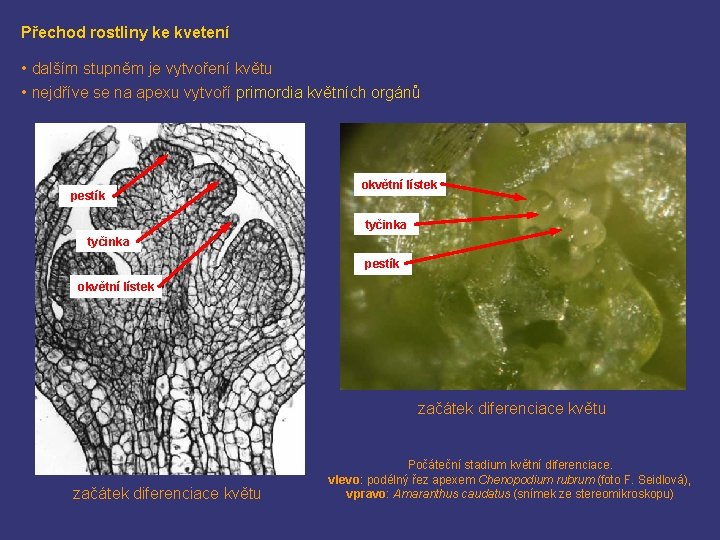
Přechod rostliny ke kvetení • dalším stupněm je vytvoření květu • nejdříve se na apexu vytvoří primordia květních orgánů pestík okvětní lístek tyčinka pestík okvětní lístek začátek diferenciace květu Počáteční stadium květní diferenciace. vlevo: podélný řez apexem Chenopodium rubrum (foto F. Seidlová), vpravo: Amaranthus caudatus (snímek ze stereomikroskopu)
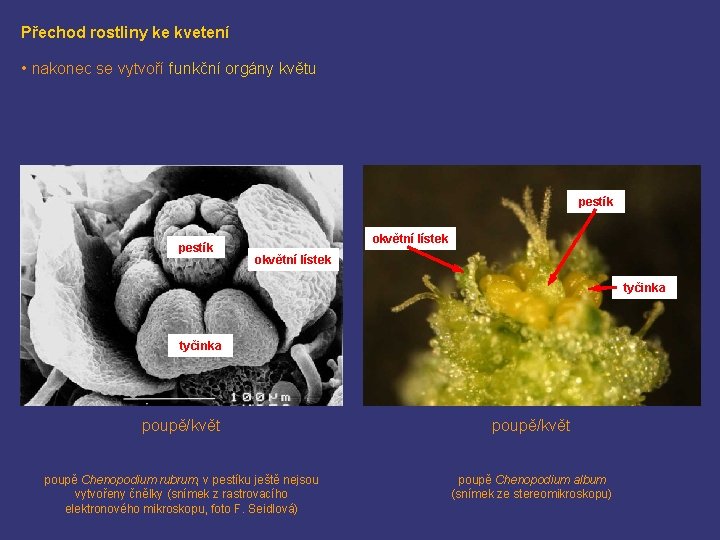
Přechod rostliny ke kvetení • nakonec se vytvoří funkční orgány květu pestík okvětní lístek tyčinka poupě/květ poupě Chenopodium rubrum, v pestíku ještě nejsou vytvořeny čnělky (snímek z rastrovacího elektronového mikroskopu, foto F. Seidlová) poupě Chenopodium album (snímek ze stereomikroskopu)
Metody výzkumu fotoperiodické květní indukce - modelové rostliny • „klasické“: s co nejsilnější odpovědí na délku dne, ideálně kvalitativně fotoperiodické, které lze indukovat jedním nebo několika dny s vhodnou fotoperiodou a které poté vykvetou i v neindukčních podmínkách - rostliny výhodné pro fyziologické a biochemické experimenty > krátkodenní: např. Chenopodium rubrum, Pharbitis nil, Xanthium strumarium, Nicotiana tabacum cv. Maryland Mammoth - některé druhy lze pěstovat na stálém světle a kvetení indukovat jedinou tmou vhodné délky > dlouhodenní: např. Sinapis alba, Hyoscyamus niger, Nicotiana silvestris • „moderní“: druhy s přijatelně silnou fotoperiodickou reakcí (může být i jen kvantitativní) a hlavně vhodné pro využití molekulárněbiologických metod > nyní hlavně Arabidopsis thaliana (dlouhodenní), rýže (krátkodenní - některé kultivary) • se zdokonalováním molekulárněbiologických technik začínají být zkoumány molekulární základy fotoperiodizmu i u dříve využívaných „klasických“ modelů
Metody výzkumu fotoperiodické květní indukce - hodnocení kvetení • kvetení jako odpověď rostliny na fotoperiodu je pro vyhodnocení experimentu nezbytné vždy nějakým způsobem kvantifikovat • kvantitativní parametr nutno vybírat případ od případu s ohledem na účel pokusu, typ fotoperiodické reakce rostliny (kvalitativní vs. kvantitativní), charakter zakládání květů (architekturu květenství) apod. • často používané parametry: > u kvalitativních rostlin je kvetení obvykle hodnoceno za určitou dobu po vystavení experimentálnímu faktoru (fotoperioda, chemická látka aj. ): procento kvetoucích rostlin (makroskopicky nebo po rozboru pod stereomikroskopem), počet květů, počet nodů s květy, dosažený stupeň květní diferenciace, rychlost diferenciace nebo růstu apexu > parametry používané převážně u kvantitativních rostlin: počet dnů do objevení poupat, do začátku vybíhání květonosného stonku z listové růžice (Arabidopsis), do rozkvětu; pořadí prvního nodu s květenstvím, počet listů vytvořených do rozkvětu
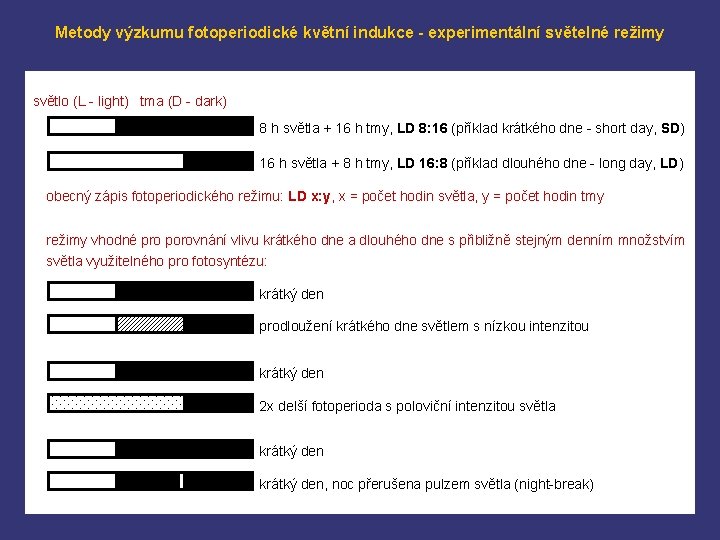
Metody výzkumu fotoperiodické květní indukce - experimentální světelné režimy světlo (L - light) tma (D - dark) 8 h světla + 16 h tmy, LD 8: 16 (příklad krátkého dne - short day, SD) 16 h světla + 8 h tmy, LD 16: 8 (příklad dlouhého dne - long day, LD) obecný zápis fotoperiodického režimu: LD x: y, x = počet hodin světla, y = počet hodin tmy režimy vhodné pro porovnání vlivu krátkého dne a dlouhého dne s přibližně stejným denním množstvím světla využitelného pro fotosyntézu: krátký den prodloužení krátkého dne světlem s nízkou intenzitou krátký den 2 x delší fotoperioda s poloviční intenzitou světla krátký den, noc přerušena pulzem světla (night-break)
Fyziologické mechanizmy fotoperiodické květní indukce zásadní jsou 3 okruhy problémů: • způsob detekce světla (jak rostliny rozliší světlo od tmy) • způsob měření času (jak rostliny určují délku dne nebo spíše noci) • místo vnímání fotoperiodického signálu (jaký orgán slouží k příjmu informace o délce dne)
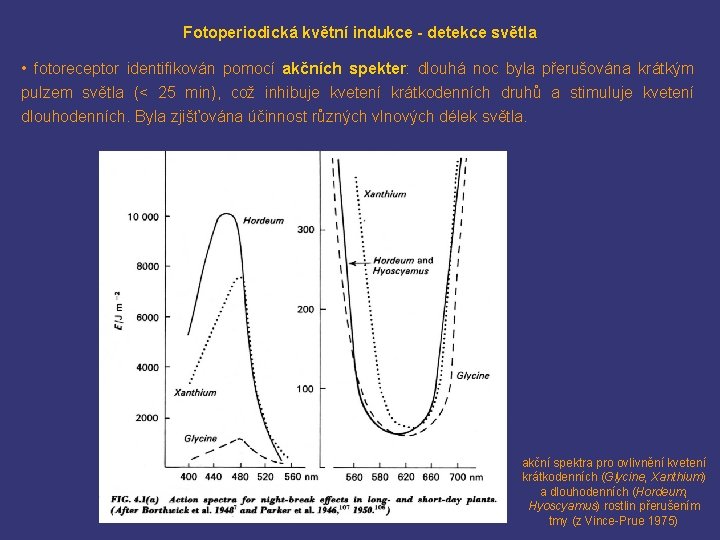
Fotoperiodická květní indukce - detekce světla • fotoreceptor identifikován pomocí akčních spekter: dlouhá noc byla přerušována krátkým pulzem světla (< 25 min), což inhibuje kvetení krátkodenních druhů a stimuluje kvetení dlouhodenních. Byla zjišťována účinnost různých vlnových délek světla. akční spektra pro ovlivnění kvetení krátkodenních (Glycine, Xanthium) a dlouhodenních (Hordeum, Hyoscyamus) rostlin přerušením tmy (z Vince-Prue 1975)
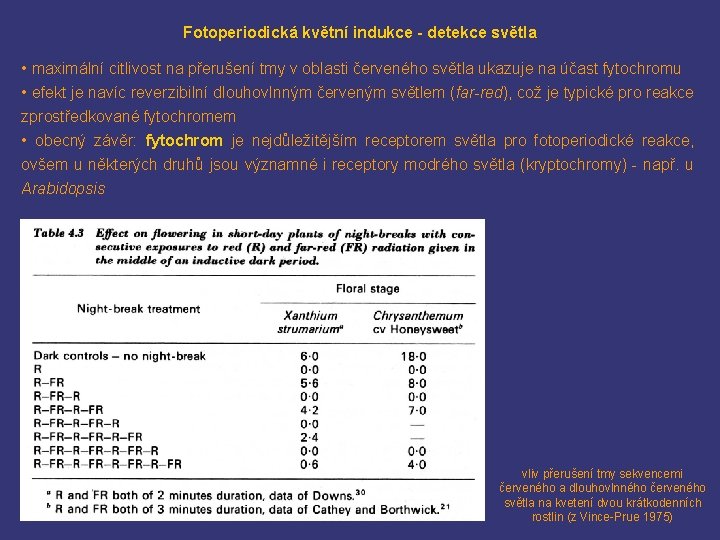
Fotoperiodická květní indukce - detekce světla • maximální citlivost na přerušení tmy v oblasti červeného světla ukazuje na účast fytochromu • efekt je navíc reverzibilní dlouhovlnným červeným světlem (far-red), což je typické pro reakce zprostředkované fytochromem • obecný závěr: fytochrom je nejdůležitějším receptorem světla pro fotoperiodické reakce, ovšem u některých druhů jsou významné i receptory modrého světla (kryptochromy) - např. u Arabidopsis vliv přerušení tmy sekvencemi červeného a dlouhovlnného červeného světla na kvetení dvou krátkodenních rostlin (z Vince-Prue 1975)
Fotoperiodická květní indukce - měření času • pro fotoperiodické reakce je nutná schopnost měřit délku dne, případně noci • rostliny obvykle měří délku noci • modelový příklad: kvalitativně krátkodenní druh, kvete pokud noc překročí kritickou délku • v experimentu pěstujeme rostliny na fotoperiodických režimech s fixní délkou dne a různými délkami noci v jednotlivých variantách; typický výsledek zobrazen v grafu dole
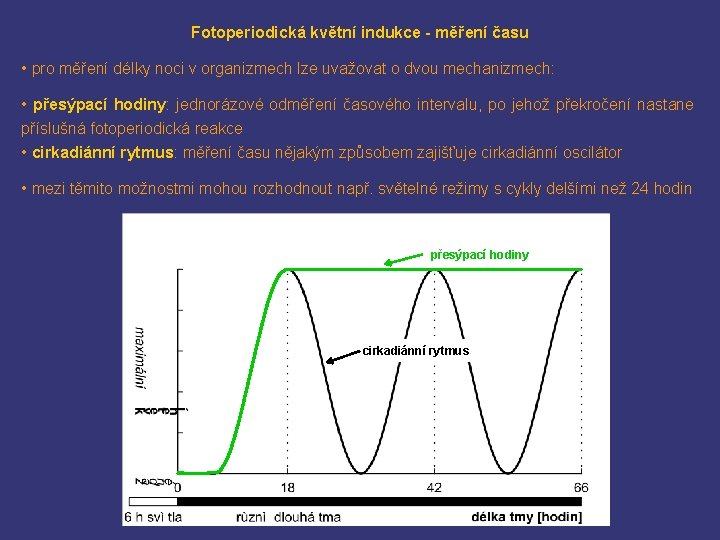
Fotoperiodická květní indukce - měření času • pro měření délky noci v organizmech lze uvažovat o dvou mechanizmech: • přesýpací hodiny: jednorázové odměření časového intervalu, po jehož překročení nastane příslušná fotoperiodická reakce • cirkadiánní rytmus: měření času nějakým způsobem zajišťuje cirkadiánní oscilátor • mezi těmito možnostmi mohou rozhodnout např. světelné režimy s cykly delšími než 24 hodin přesýpací hodiny cirkadiánní rytmus
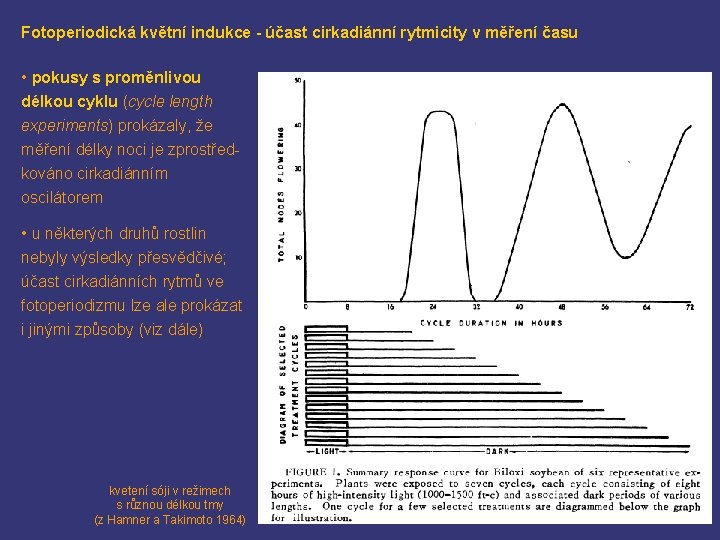
Fotoperiodická květní indukce - účast cirkadiánní rytmicity v měření času • pokusy s proměnlivou délkou cyklu (cycle length experiments) prokázaly, že měření délky noci je zprostředkováno cirkadiánním oscilátorem • u některých druhů rostlin nebyly výsledky přesvědčivé; účast cirkadiánních rytmů ve fotoperiodizmu lze ale prokázat i jinými způsoby (viz dále) kvetení sóji v režimech s různou délkou tmy (z Hamner a Takimoto 1964)
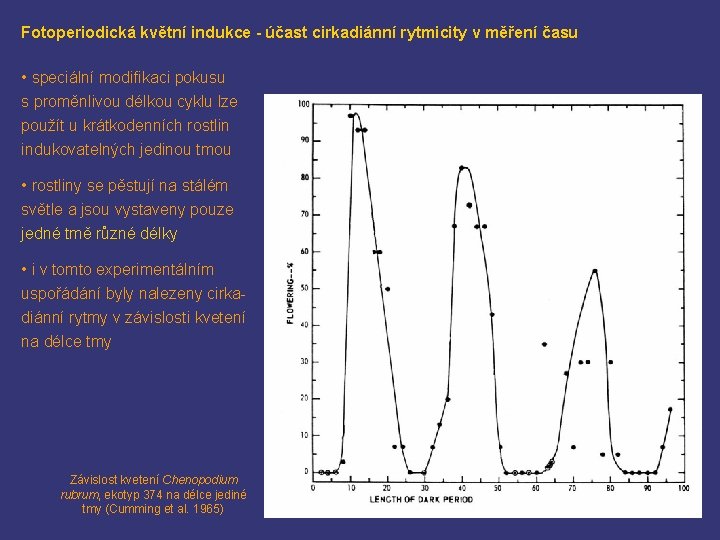
Fotoperiodická květní indukce - účast cirkadiánní rytmicity v měření času • speciální modifikaci pokusu s proměnlivou délkou cyklu lze použít u krátkodenních rostlin indukovatelných jedinou tmou • rostliny se pěstují na stálém světle a jsou vystaveny pouze jedné tmě různé délky • i v tomto experimentálním uspořádání byly nalezeny cirkadiánní rytmy v závislosti kvetení na délce tmy Závislost kvetení Chenopodium rubrum, ekotyp 374 na délce jediné tmy (Cumming et al. 1965)
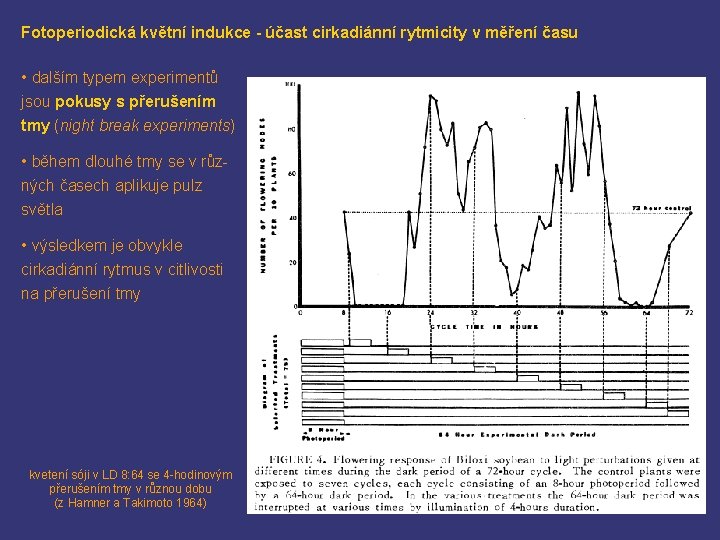
Fotoperiodická květní indukce - účast cirkadiánní rytmicity v měření času • dalším typem experimentů jsou pokusy s přerušením tmy (night break experiments) • během dlouhé tmy se v různých časech aplikuje pulz světla • výsledkem je obvykle cirkadiánní rytmus v citlivosti na přerušení tmy kvetení sóji v LD 8: 64 se 4 -hodinovým přerušením tmy v různou dobu (z Hamner a Takimoto 1964)
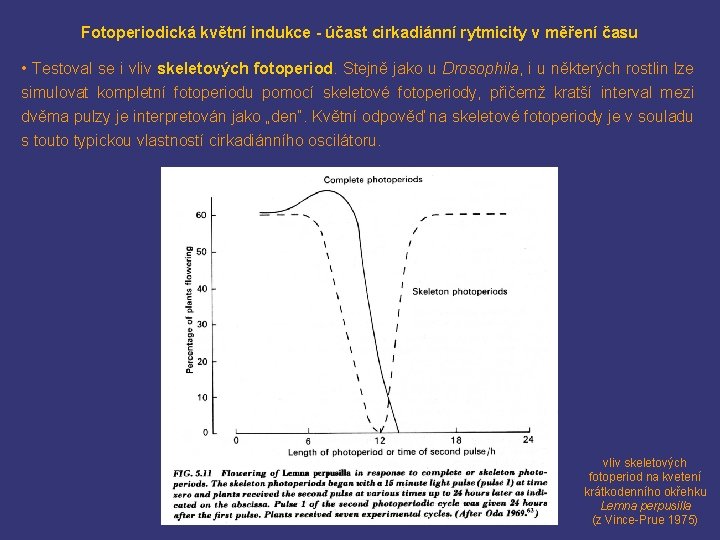
Fotoperiodická květní indukce - účast cirkadiánní rytmicity v měření času • Testoval se i vliv skeletových fotoperiod. Stejně jako u Drosophila, i u některých rostlin lze simulovat kompletní fotoperiodu pomocí skeletové fotoperiody, přičemž kratší interval mezi dvěma pulzy je interpretován jako „den“. Květní odpověď na skeletové fotoperiody je v souladu s touto typickou vlastností cirkadiánního oscilátoru. vliv skeletových fotoperiod na kvetení krátkodenního okřehku Lemna perpusilla (z Vince-Prue 1975)
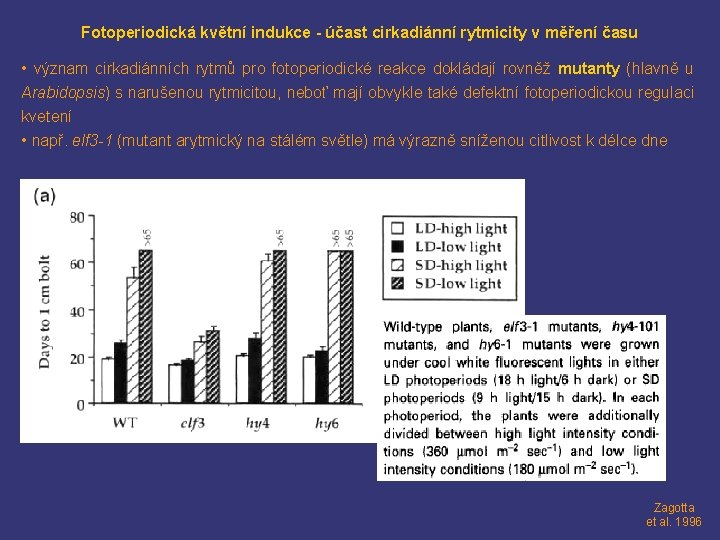
Fotoperiodická květní indukce - účast cirkadiánní rytmicity v měření času • význam cirkadiánních rytmů pro fotoperiodické reakce dokládají rovněž mutanty (hlavně u Arabidopsis) s narušenou rytmicitou, neboť mají obvykle také defektní fotoperiodickou regulaci kvetení • např. elf 3 -1 (mutant arytmický na stálém světle) má výrazně sníženou citlivost k délce dne Zagotta et al. 1996
Mechanizmus měření času cirkadiánním oscilátorem • byly navrženy dva obecné modely • Externí koincidence: za regulaci fotoperiodických reakcí je zodpovědný jeden cirkadiánní rytmus. Ten je synchronizován světelným režimem. Světlo zároveň přímo ovlivňuje fotoperiodické reakce (inhibuje krátkodenní a stimuluje dlouhodenní), když je mu rostlina vystavena ve fotosenzitivní fázi rytmu - k tomu dochází pouze za určité délky dne. • Interní koincidence: za regulaci fotoperiodických reakcí jsou zodpovědné dva rytmy. Každý z nich je synchronizován se světelným režimem jinak (např. má jiný tvar křivky fázové odpovědi), takže rozdíl fází těchto dvou rytmů je závislý na délce dne. Fotoperiodická reakce nastává pouze v omezeném rozsahu fázových rozdílů mezi rytmy.
Mechanizmus měření času cirkadiánním oscilátorem • fyziologické a molekulární poznatky nyní silně podporují model externí koincidence ve fotoperiodické indukci kvetení rostlin Samach a Coupland 2000
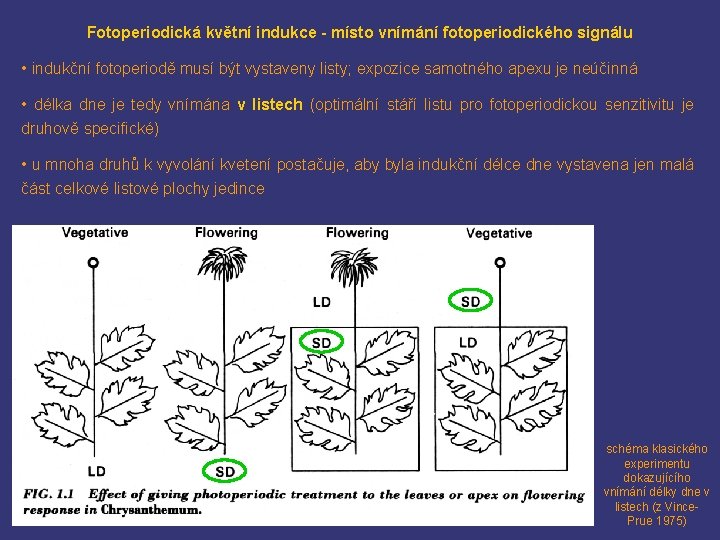
Fotoperiodická květní indukce - místo vnímání fotoperiodického signálu • indukční fotoperiodě musí být vystaveny listy; expozice samotného apexu je neúčinná • délka dne je tedy vnímána v listech (optimální stáří listu pro fotoperiodickou senzitivitu je druhově specifické) • u mnoha druhů k vyvolání kvetení postačuje, aby byla indukční délce dne vystavena jen malá část celkové listové plochy jedince schéma klasického experimentu dokazujícího vnímání délky dne v listech (z Vince. Prue 1975)
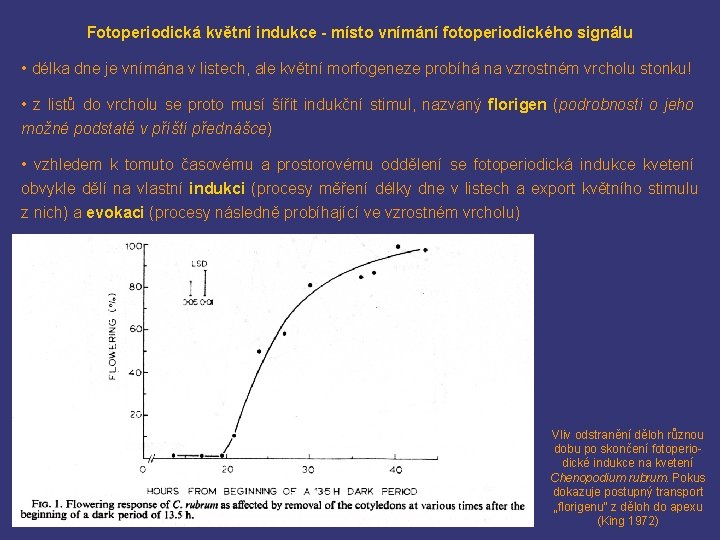
Fotoperiodická květní indukce - místo vnímání fotoperiodického signálu • délka dne je vnímána v listech, ale květní morfogeneze probíhá na vzrostném vrcholu stonku! • z listů do vrcholu se proto musí šířit indukční stimul, nazvaný florigen (podrobnosti o jeho možné podstatě v příští přednášce) • vzhledem k tomuto časovému a prostorovému oddělení se fotoperiodická indukce kvetení obvykle dělí na vlastní indukci (procesy měření délky dne v listech a export květního stimulu z nich) a evokaci (procesy následně probíhající ve vzrostném vrcholu) Vliv odstranění děloh různou dobu po skončení fotoperiodické indukce na kvetení Chenopodium rubrum. Pokus dokazuje postupný transport „florigenu“ z děloh do apexu (King 1972)
- Slides: 28