
Il DNA mobile gli elementi trasponibili ed il
Il DNA mobile: gli elementi trasponibili ed il loro utilizzo in genomica
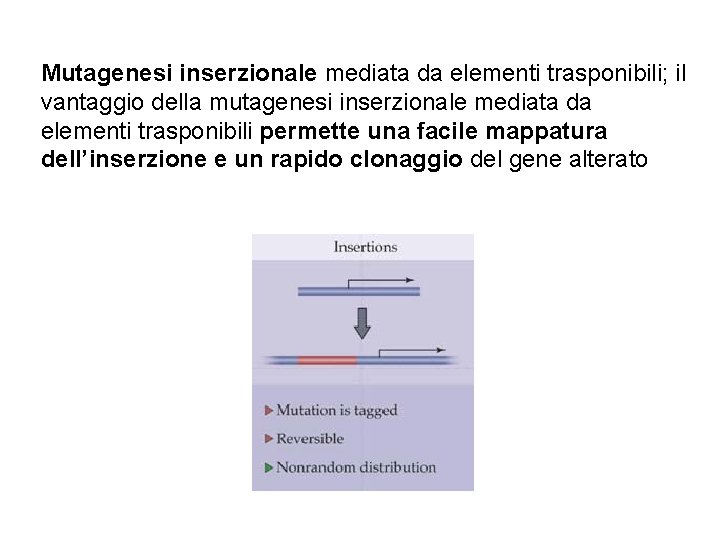
Mutagenesi inserzionale mediata da elementi trasponibili; il vantaggio della mutagenesi inserzionale mediata da elementi trasponibili permette una facile mappatura dell’inserzione e un rapido clonaggio del gene alterato
Mutagenesi inserzionale La mutagenesi inserzionale con elementi trasponibili modificati (P in Drosophila) è una strategia utilizzata prima in genetica diretta e dopo in genetica inversa Genetica diretta: Induzione di mutazioni inserzionali in geni essenziali (vitalità, fertilità) precedentemente identificati da analisi mutazionale e con fenotipo mutante noto Scopo: di isolare la sequenza di DNA e delucidare la funzione del gene e del suo prodotto Genetica inversa: Induzione di mutazioni inserzionali in geni putativi identificati dall’analisi bioinformatica della sequenza del genoma di cui non sono disponibili alleli mutanti. Scopo: verificare se il gene putativo è essenziale e identificare la funzione del prodotto proteico
Gli elementi genetici trasponibili (trasposoni, elementi mobili, elementi nomadici) Definizione: Sequenze di DNA in grado di variare la propria localizazione all’interno del genoma (sia all’interno di uno stesso cromosoma che tra cromosomi diversi). Presenza: gli elementi trasponibili sono componenti ubiquitari e abbondanti dei genomi eucariotici, 15% in Drosophila, 45% nella specie umana, 50% nel Mais e addirittura 90% in altre piante.
La scoperta degli elementi trasponibili
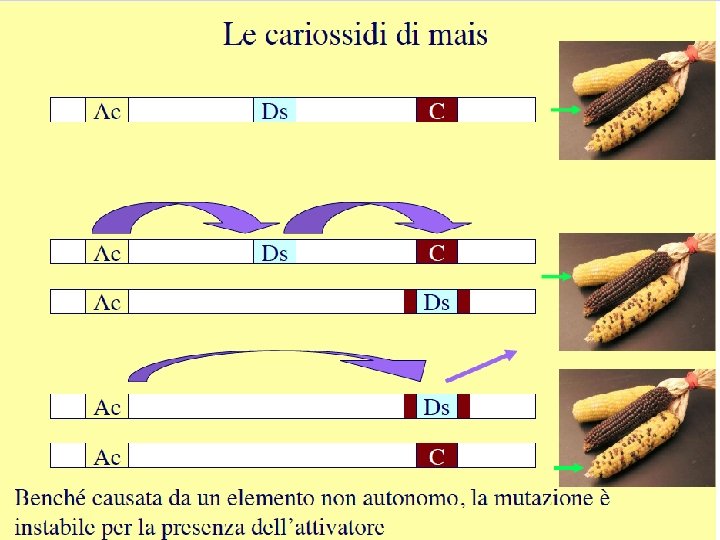
Elementi di controllo nel mais 1950 Barbara Mc. Clintock Studiando fenomeni di instabilità genetica nel granturco scopre un fattore genetico Ds (Dissociatore) e Ac (Attivatore) “Bisogna sempre credere alle nostre osservazioni, per quanto bizzarre possano essere, forse stanno cercando di dirci qualcosa” (Barbara Mc. Clintock)
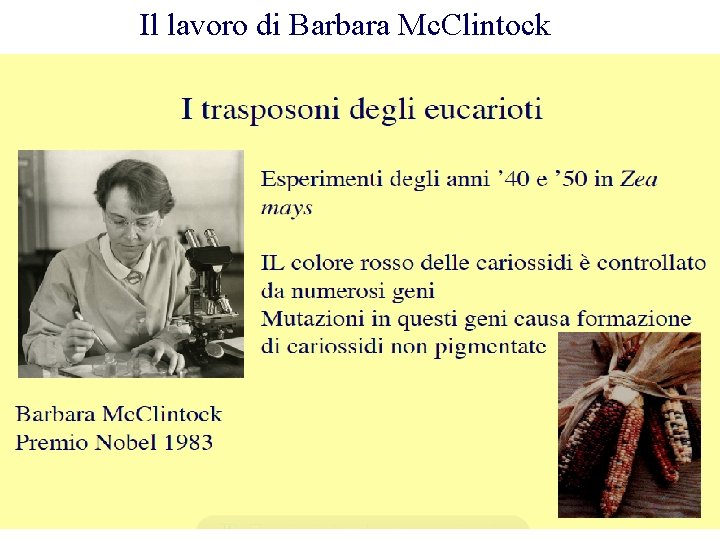
Il lavoro di Barbara Mc. Clintock
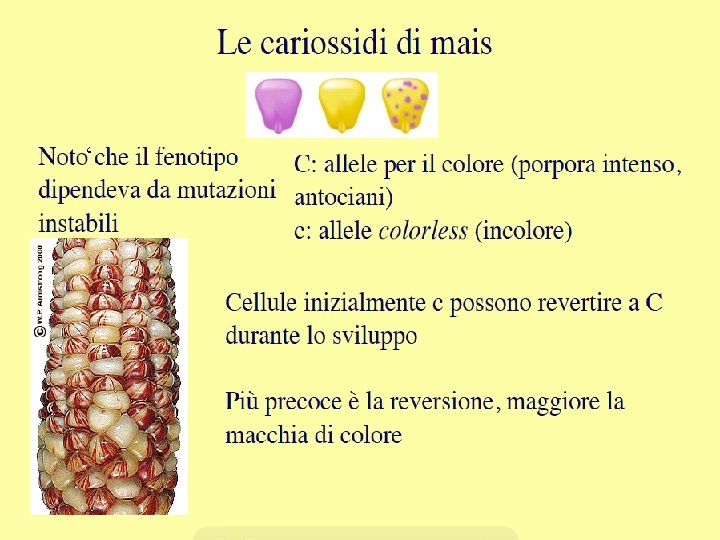
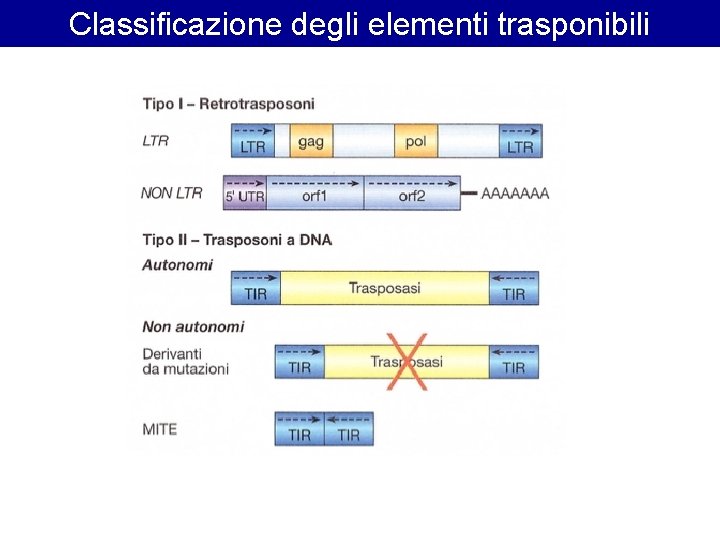
Classificazione degli elementi trasponibili
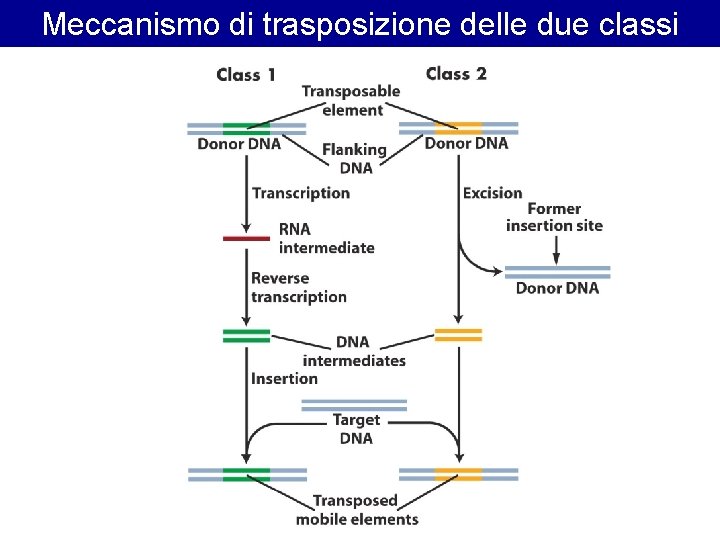
Meccanismo di trasposizione delle due classi
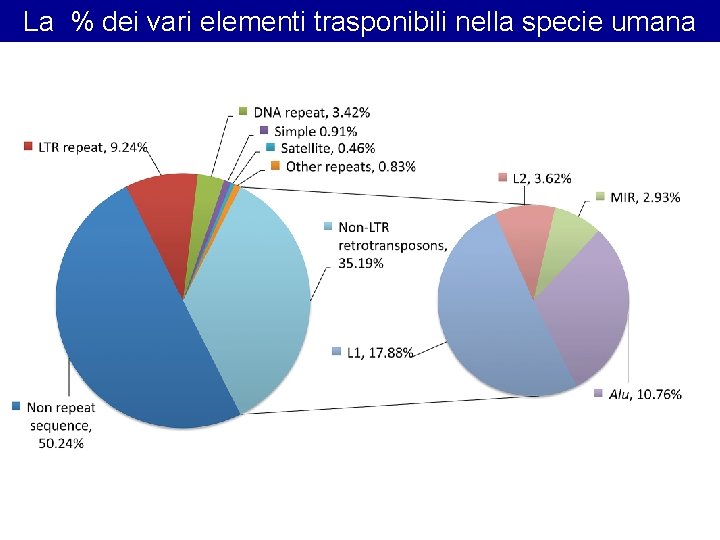
La % dei vari elementi trasponibili nella specie umana
Gli elementi trasponibili violano le leggi della Genetica La scoperta di sequenze mobili di DNA, e gli effetti genetici da essi prodotti rappresentano una significativa eccezione al mendelismo e ai principi della Genetica classica che vede i geni come entità a localizzazione fissa sui cromosomi.
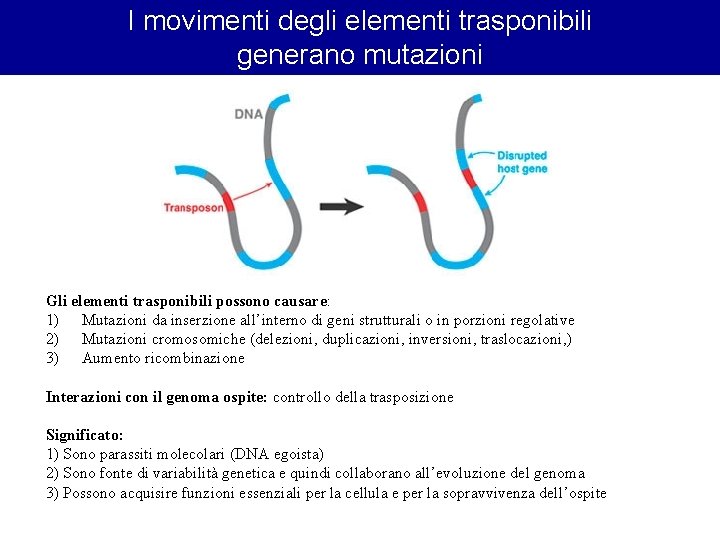
I movimenti degli elementi trasponibili generano mutazioni Gli elementi trasponibili possono causare: 1) Mutazioni da inserzione all’interno di geni strutturali o in porzioni regolative 2) Mutazioni cromosomiche (delezioni, duplicazioni, inversioni, traslocazioni, ) 3) Aumento ricombinazione Interazioni con il genoma ospite: controllo della trasposizione Significato: 1) Sono parassiti molecolari (DNA egoista) 2) Sono fonte di variabilità genetica e quindi collaborano all’evoluzione del genoma 3) Possono acquisire funzioni essenziali per la cellula e per la sopravvivenza dell’ospite
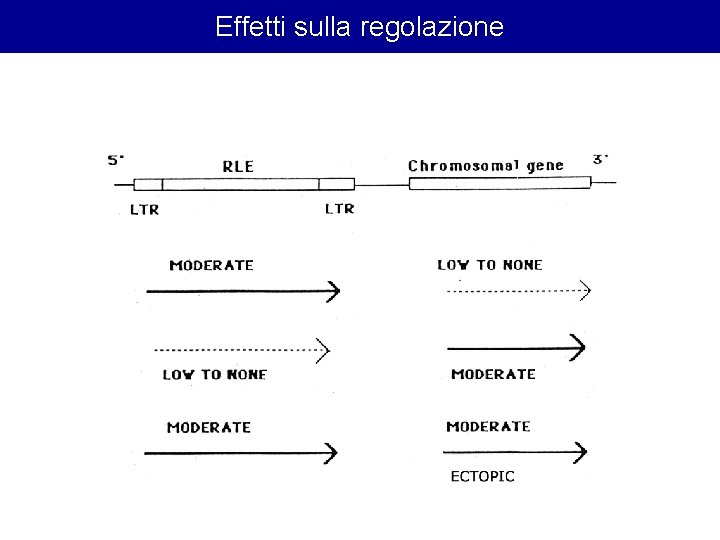
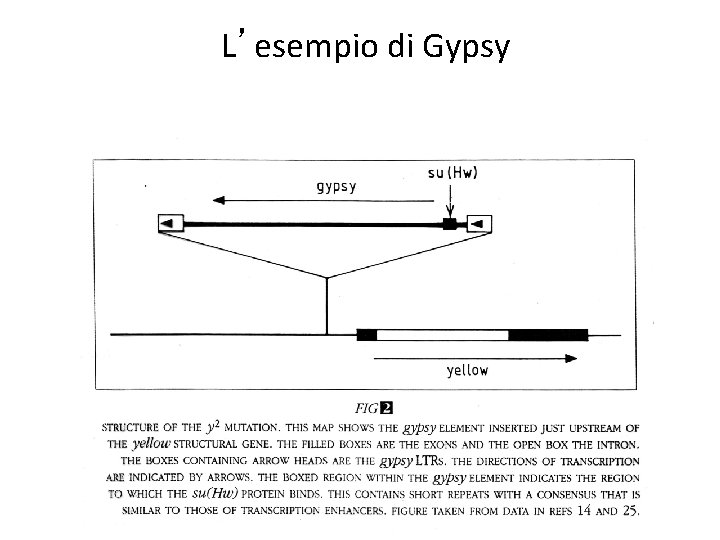
Effetti genetici: le mutazioni indotte dai trasposoni Inserzioni negli esoni: copia e P nel gene white; Ds in waxy Inserzioni nelle regioni regolative: P, gypsy, Tam 3 Inserzioni negli introni: Mu in knotted, I in white e rolled } mutazioni nulle mutazioni ipomorfe, ipermorfe, neomorfe Inserzioni nell’eterocromatina Mutazioni cromosomiche: inversioni, delezioni, duplicazioni
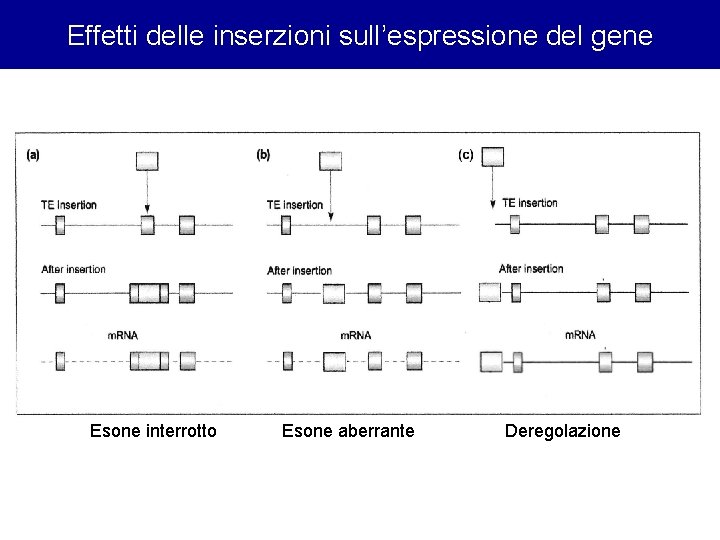
Effetti delle inserzioni sull’espressione del gene Esone interrotto Esone aberrante Deregolazione
Effetti sulla regolazione
L’esempio di Gypsy
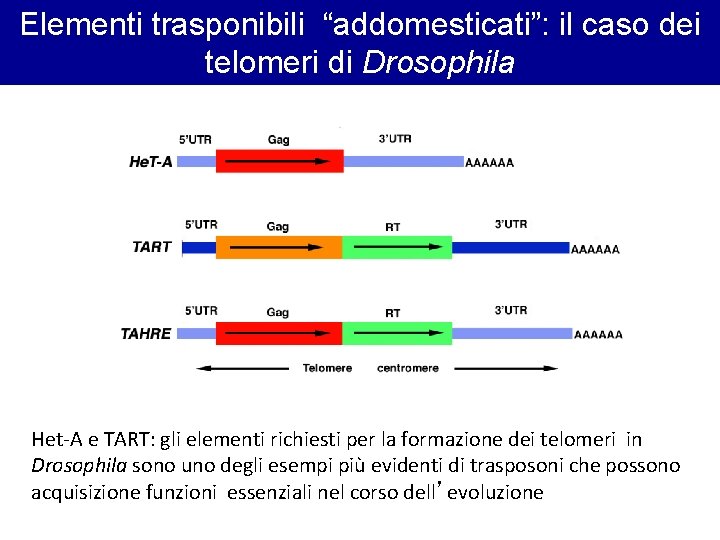
Elementi trasponibili “addomesticati”: il caso dei telomeri di Drosophila Het-A e TART: gli elementi richiesti per la formazione dei telomeri in Drosophila sono uno degli esempi più evidenti di trasposoni che possono acquisizione funzioni essenziali nel corso dell’evoluzione
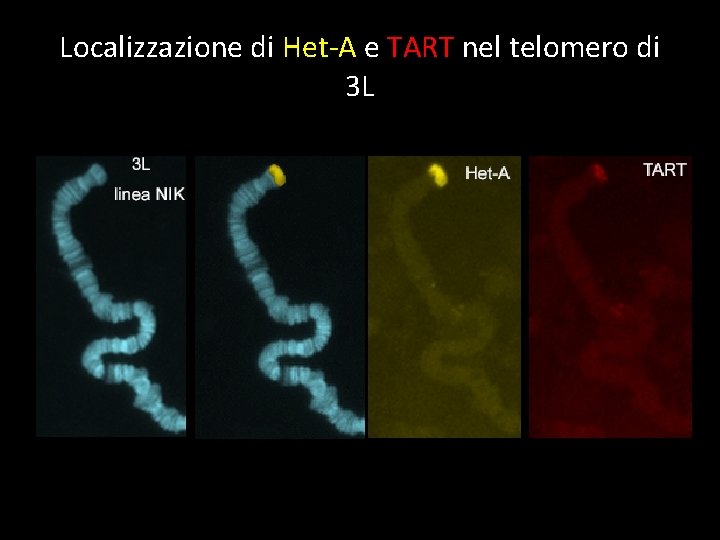
Localizzazione di Het-A e TART nel telomero di 3 L
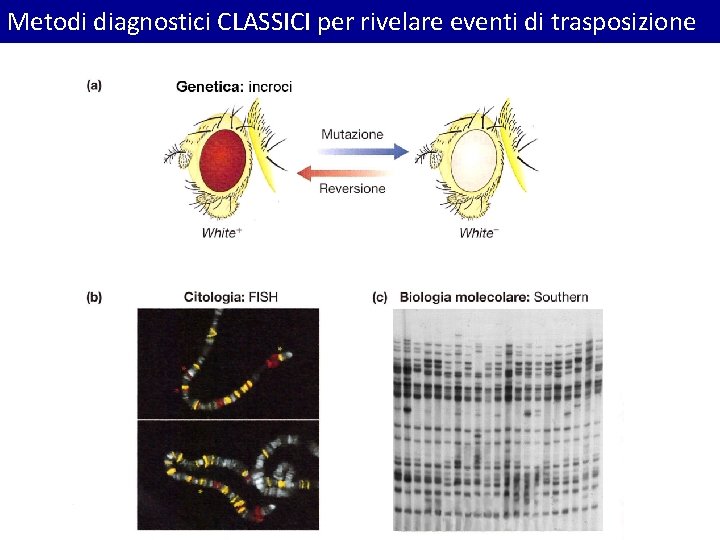
Metodi diagnostici CLASSICI per rivelare eventi di trasposizione
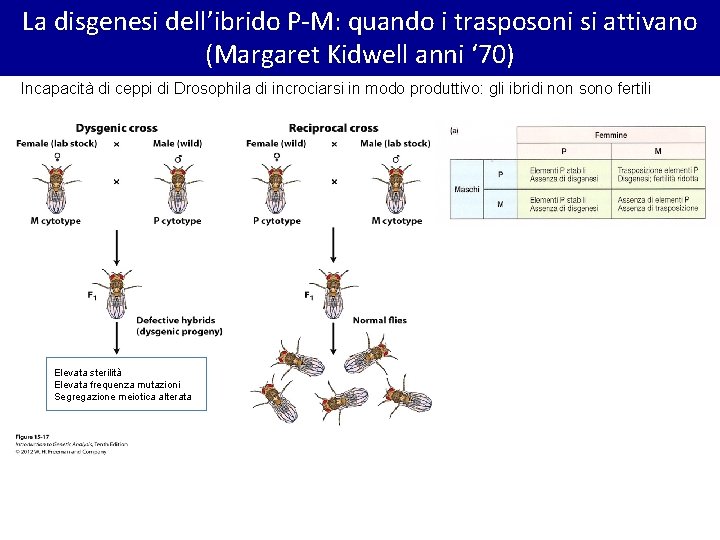
La disgenesi dell’ibrido P-M: quando i trasposoni si attivano (Margaret Kidwell anni ‘ 70) Incapacità di ceppi di Drosophila di incrociarsi in modo produttivo: gli ibridi non sono fertili Elevata sterilità Elevata frequenza mutazioni Segregazione meiotica alterata
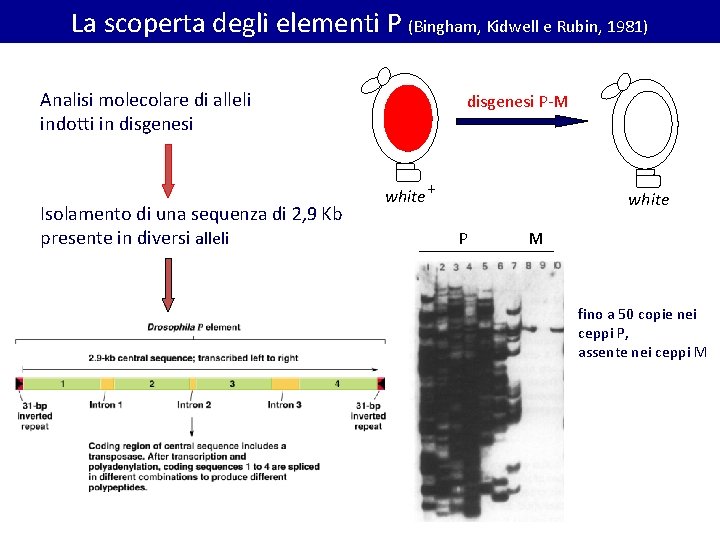
La scoperta degli elementi P (Bingham, Kidwell e Rubin, 1981) Analisi molecolare di alleli white indotti in disgenesi Isolamento di una sequenza di 2, 9 Kb presente in diversi alleli Elemento P disgenesi P-M white + white P M fino a 50 copie nei ceppi P, assente nei ceppi M
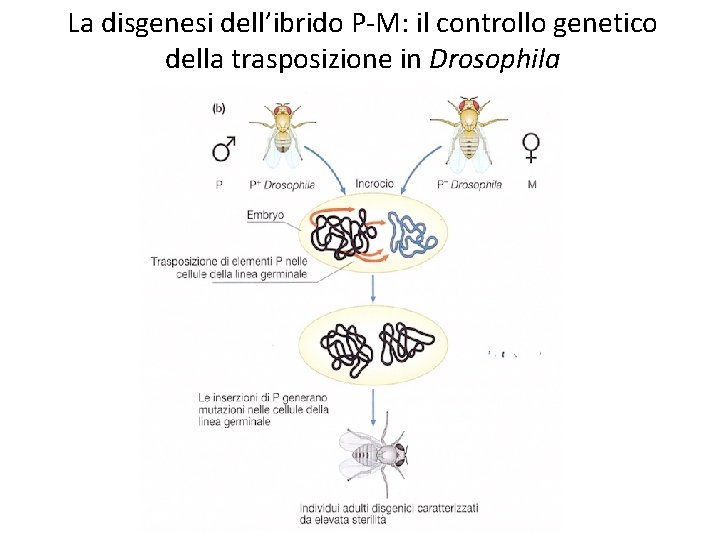
La disgenesi dell’ibrido P-M: il controllo genetico della trasposizione in Drosophila
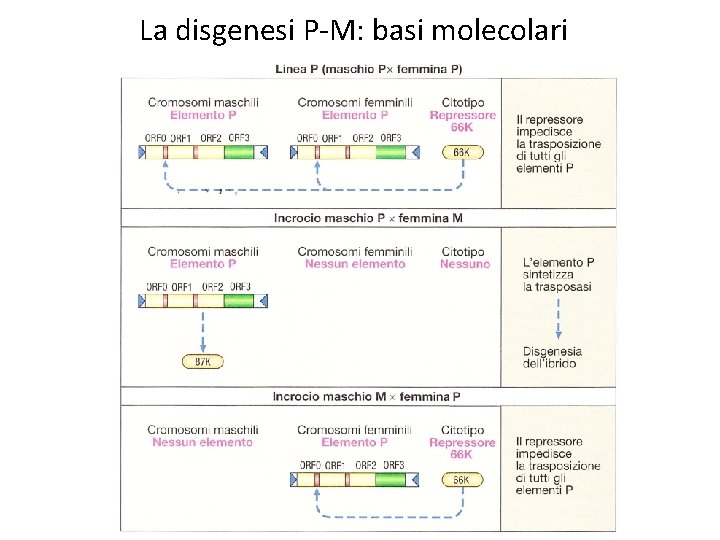
La disgenesi P-M: basi molecolari
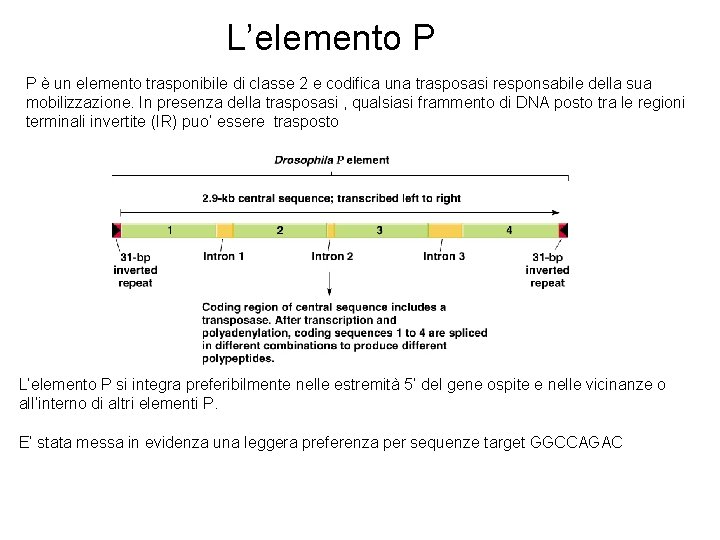
L’elemento P P è un elemento trasponibile di classe 2 e codifica una trasposasi responsabile della sua mobilizzazione. In presenza della trasposasi , qualsiasi frammento di DNA posto tra le regioni terminali invertite (IR) puo’ essere trasposto L’elemento P si integra preferibilmente nelle estremità 5’ del gene ospite e nelle vicinanze o all’interno di altri elementi P. E’ stata messa in evidenza una leggera preferenza per sequenze target GGCCAGAC
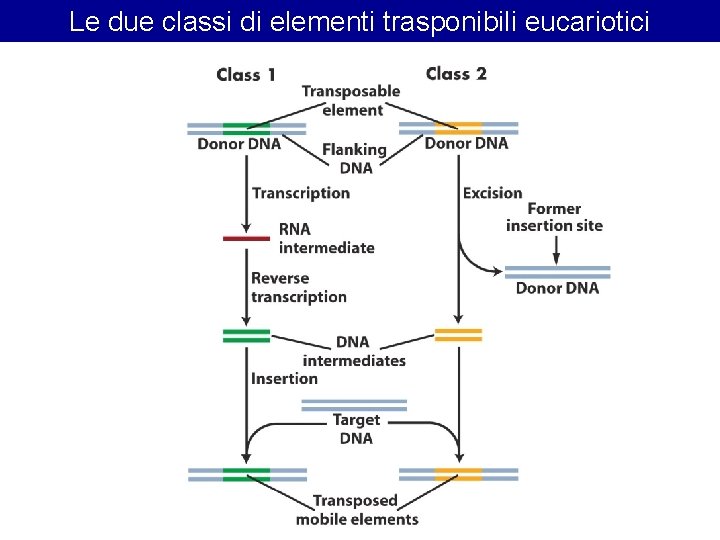
Le due classi di elementi trasponibili eucariotici
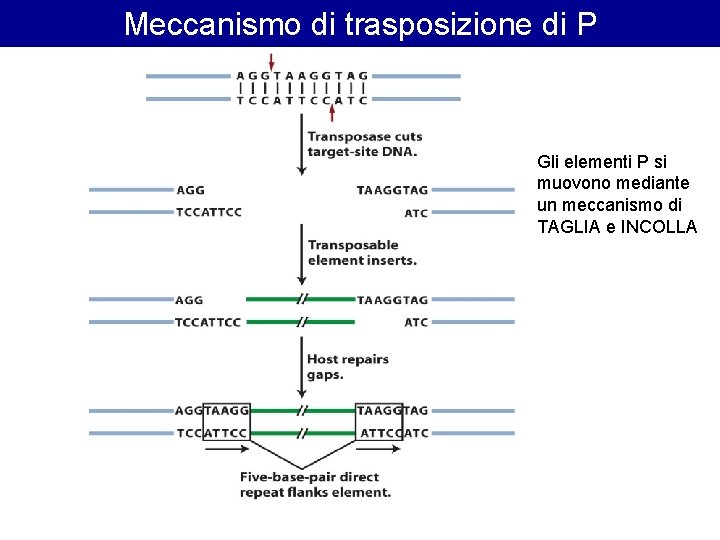
Meccanismo di trasposizione di P Gli elementi P si muovono mediante un meccanismo di TAGLIA e INCOLLA
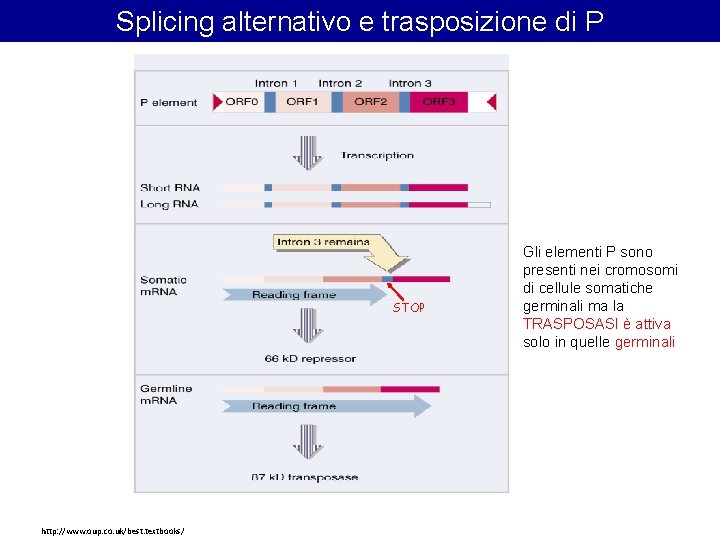
Splicing alternativo e trasposizione di P STOP http: //www. oup. co. uk/best. textbooks/ Gli elementi P sono presenti nei cromosomi di cellule somatiche germinali ma la TRASPOSASI è attiva solo in quelle germinali
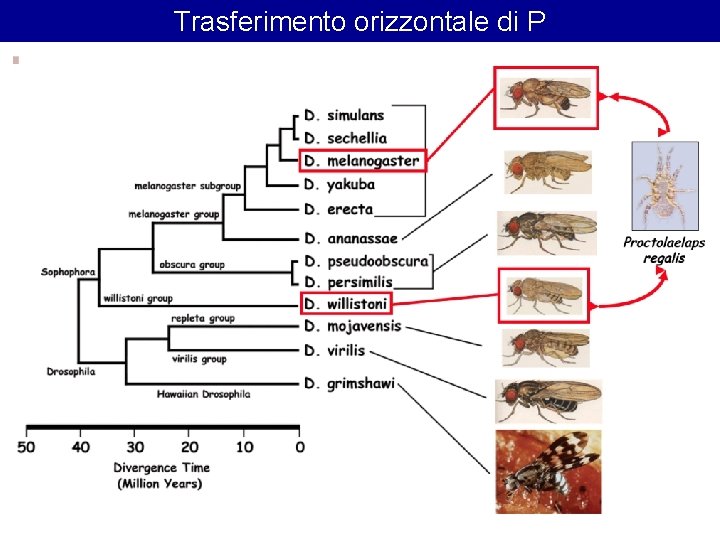
Trasferimento orizzontale di P
Utilizzo pratico degli elementi P per transgenesi e mutagenesi inserzionale
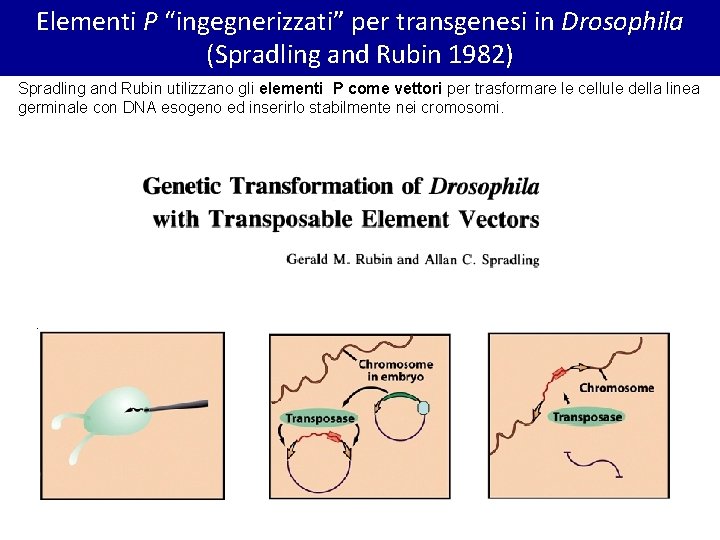
Elementi P “ingegnerizzati” per transgenesi in Drosophila (Spradling and Rubin 1982) Spradling and Rubin utilizzano gli elementi P come vettori per trasformare le cellule della linea germinale con DNA esogeno ed inserirlo stabilmente nei cromosomi.
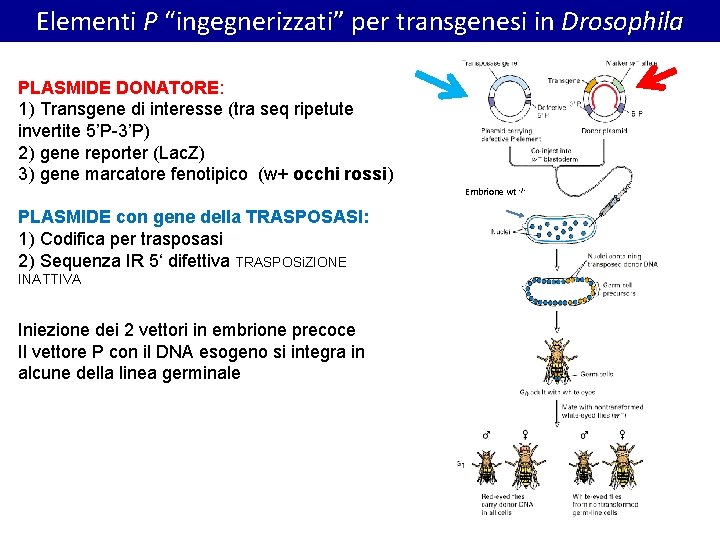
Elementi P “ingegnerizzati” per transgenesi in Drosophila PLASMIDE DONATORE: 1) Transgene di interesse (tra seq ripetute invertite 5’P-3’P) 2) gene reporter (Lac. Z) 3) gene marcatore fenotipico (w+ occhi rossi) Embrione wt -/- PLASMIDE con gene della TRASPOSASI: 1) Codifica per trasposasi 2) Sequenza IR 5‘ difettiva TRASPOSi. ZIONE INATTIVA Iniezione dei 2 vettori in embrione precoce Il vettore P con il DNA esogeno si integra in alcune della linea germinale
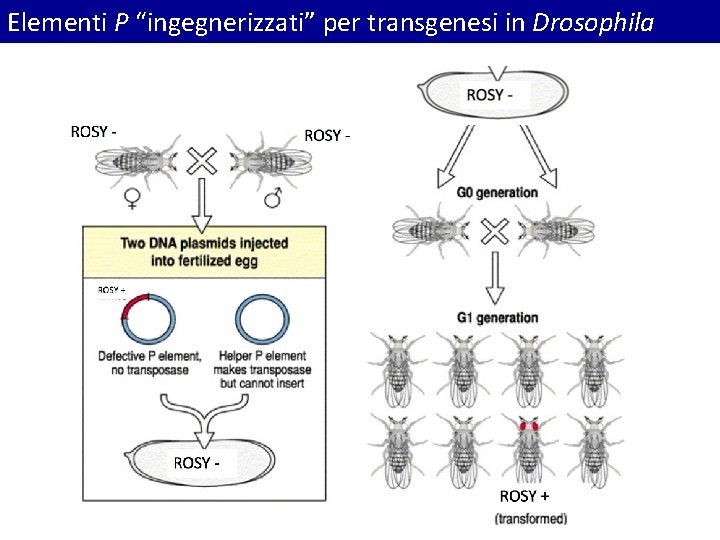
Elementi P “ingegnerizzati” per transgenesi in Drosophila
Mutagenesi inserzionale La mutagenesi inserzionale con elementi trasponibili modificati (P in Drosophila) è una strategia utilizzata prima in genetica diretta e successivamente in genetica inversa Genetica diretta: Induzione di mutazioni inserzionali in geni essenziali (vitalità, fertilità) precedentemente identificati da analisi mutazionale e con fenotipo mutante noto. Mutagenesi inserzionale generalizzata e selezione di alleli. Scopo: di isolare la sequenza di DNA e delucidare la funzione del gene e del suo prodotto Genetica inversa: Induzione di mutazioni inserzionali in geni putativi identificati dall’analisi bio-informatica della sequenza del genoma di cui non sono disponibili alleli mutanti. Mutagenesi sito-specifica; Gene disruption Scopo: analisi funzionale di geni e loro prodotti
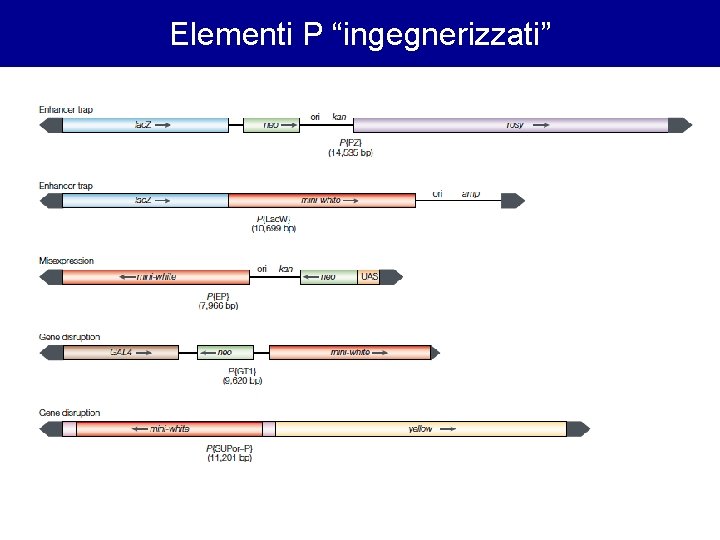
Elementi P “ingegnerizzati”
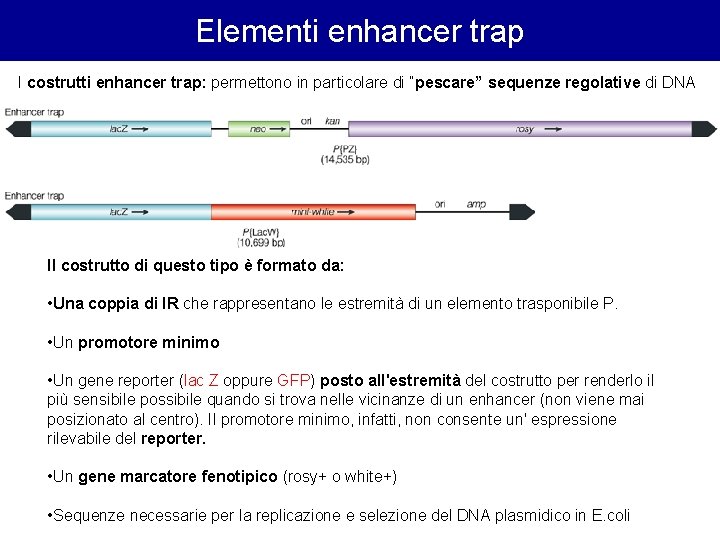
Elementi enhancer trap I costrutti enhancer trap: permettono in particolare di “pescare” sequenze regolative di DNA Il costrutto di questo tipo è formato da: • Una coppia di IR che rappresentano le estremità di un elemento trasponibile P. • Un promotore minimo • Un gene reporter (lac Z oppure GFP) posto all'estremità del costrutto per renderlo il più sensibile possibile quando si trova nelle vicinanze di un enhancer (non viene mai posizionato al centro). Il promotore minimo, infatti, non consente un' espressione rilevabile del reporter. • Un gene marcatore fenotipico (rosy+ o white+) • Sequenze necessarie per la replicazione e selezione del DNA plasmidico in E. coli
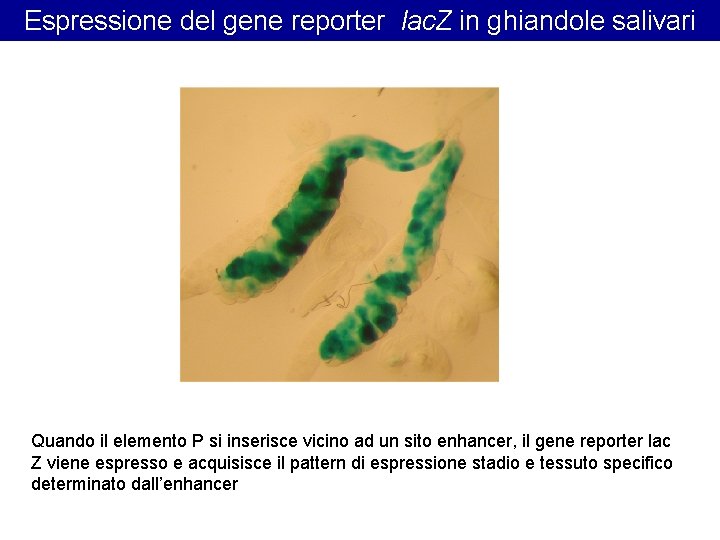
Espressione del gene reporter lac. Z in ghiandole salivari Quando il elemento P si inserisce vicino ad un sito enhancer, il gene reporter lac Z viene espresso e acquisisce il pattern di espressione stadio e tessuto specifico determinato dall’enhancer
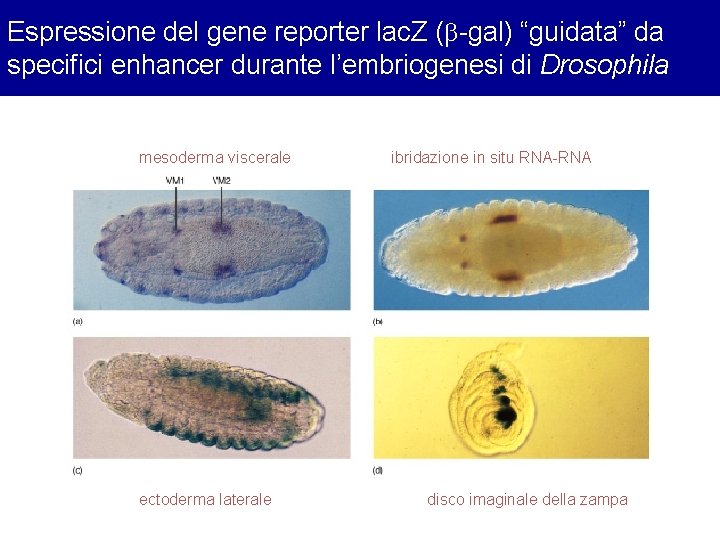
Espressione del gene reporter lac. Z (b-gal) “guidata” da specifici enhancer durante l’embriogenesi di Drosophila mesoderma viscerale ectoderma laterale ibridazione in situ RNA-RNA disco imaginale della zampa
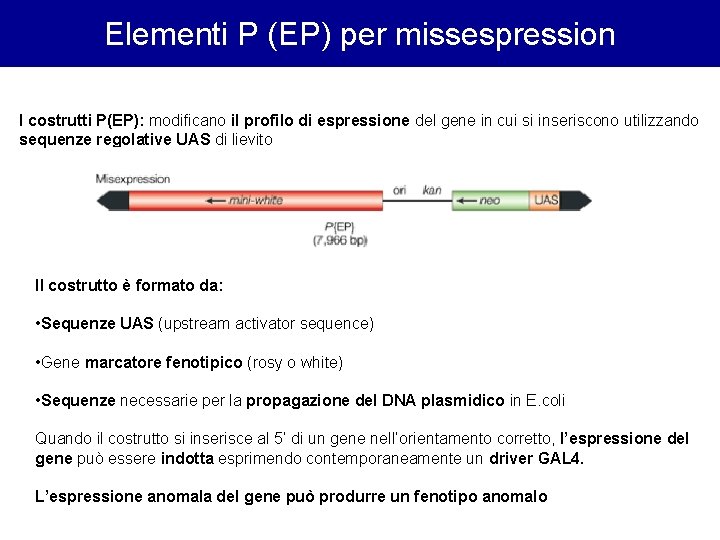
Elementi P (EP) per missespression I costrutti P(EP): modificano il profilo di espressione del gene in cui si inseriscono utilizzando sequenze regolative UAS di lievito Il costrutto è formato da: • Sequenze UAS (upstream activator sequence) • Gene marcatore fenotipico (rosy o white) • Sequenze necessarie per la propagazione del DNA plasmidico in E. coli Quando il costrutto si inserisce al 5’ di un gene nell’orientamento corretto, l’espressione del gene può essere indotta esprimendo contemporaneamente un driver GAL 4. L’espressione anomala del gene può produrre un fenotipo anomalo
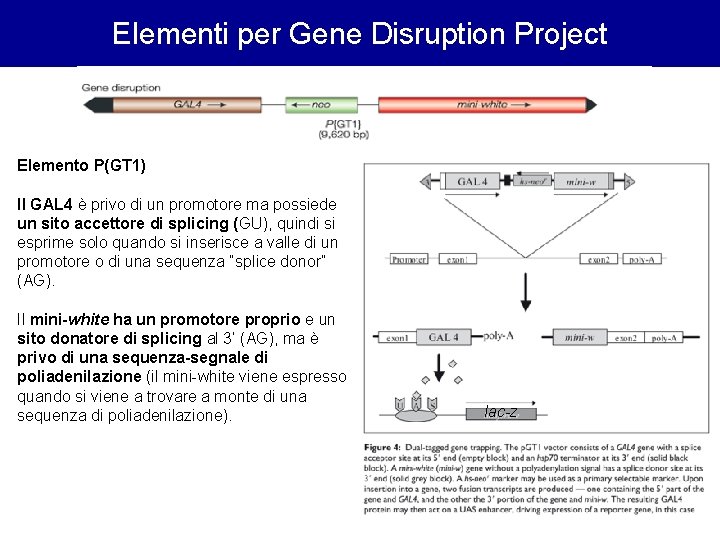
Elementi per Gene Disruption Project Elemento P(GT 1) Il GAL 4 è privo di un promotore ma possiede un sito accettore di splicing (GU), quindi si esprime solo quando si inserisce a valle di un promotore o di una sequenza “splice donor” (AG). Il mini-white ha un promotore proprio e un sito donatore di splicing al 3’ (AG), ma è privo di una sequenza-segnale di poliadenilazione (il mini-white viene espresso quando si viene a trovare a monte di una sequenza di poliadenilazione). lac-z
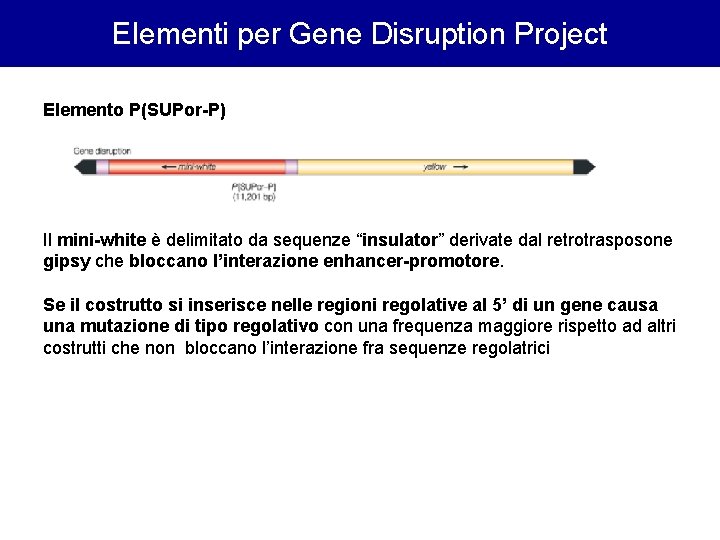
Elementi per Gene Disruption Project Elemento P(SUPor-P) Il mini-white è delimitato da sequenze “insulator” derivate dal retrotrasposone gipsy che bloccano l’interazione enhancer-promotore. Se il costrutto si inserisce nelle regioni regolative al 5’ di un gene causa una mutazione di tipo regolativo con una frequenza maggiore rispetto ad altri costrutti che non bloccano l’interazione fra sequenze regolatrici
Dove mappa la mutazione ? (sul cromosoma 2 o sul 3? )
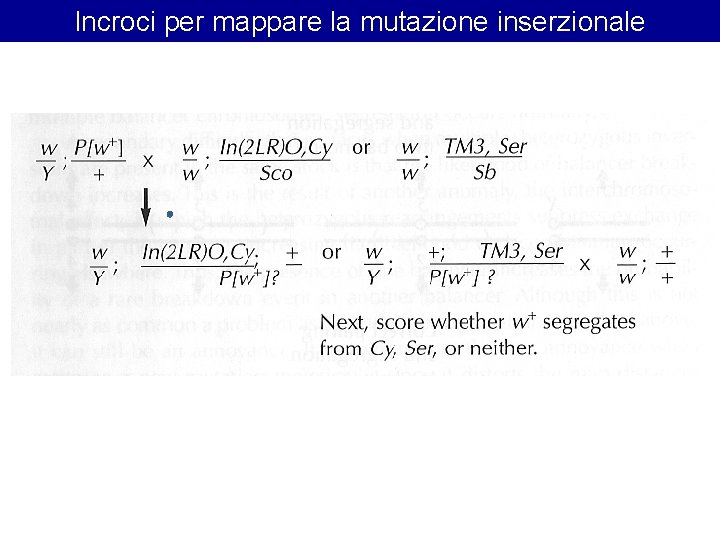
Incroci per mappare la mutazione inserzionale
Mappatura per ibridazione in situ sui cromosomi politenici usando come probe il DNA di P
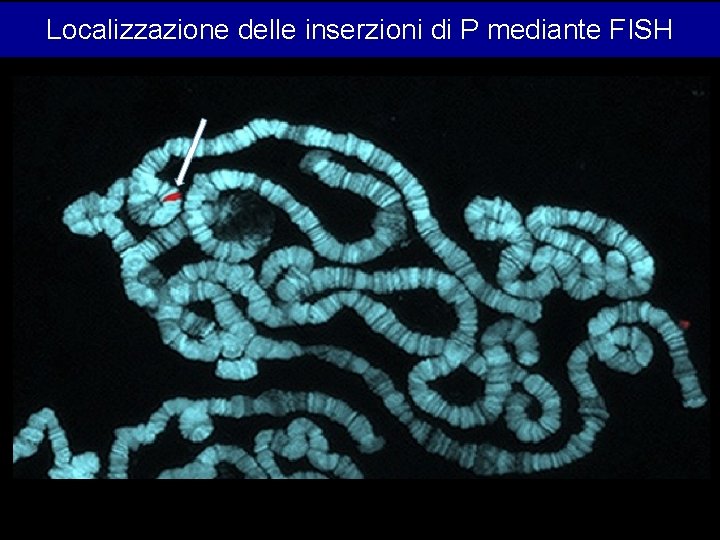
Localizzazione delle inserzioni di P mediante FISH
Verificare che fenotipo mutato sia effettivamente causato dall’inserzione dell’elemento P.
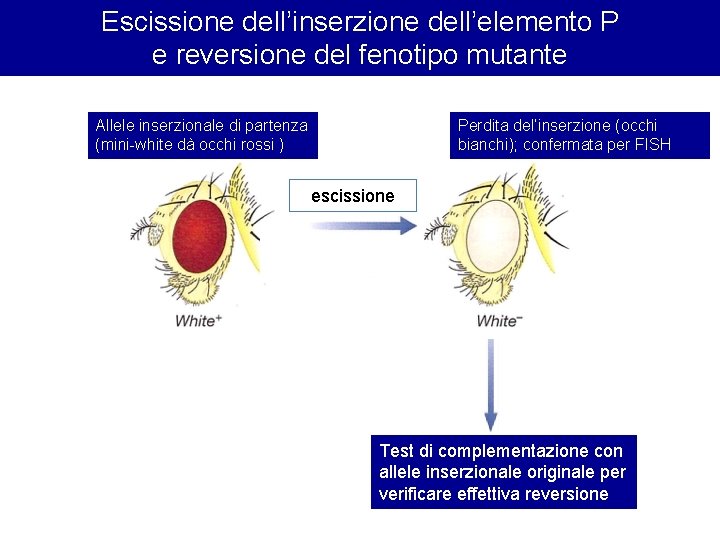
Escissione dell’inserzione dell’elemento P e reversione del fenotipo mutante Allele inserzionale di partenza (mini-white dà occhi rossi ) Perdita del’inserzione (occhi bianchi); confermata per FISH escissione Test di complementazione con allele inserzionale originale per verificare effettiva reversione
Clonaggio del gene Se la mutazione è causata dall’inserzione di un elemento P il gene si può clonare mediante: • Plasmid rescue • PCR inversa
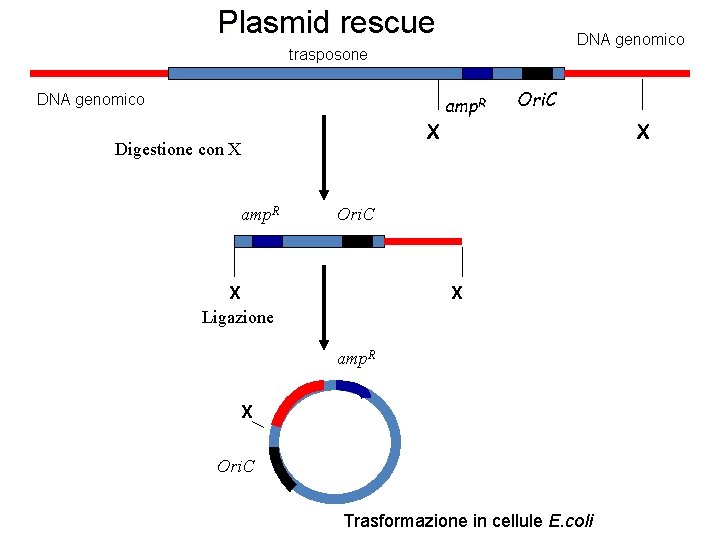
Plasmid rescue DNA genomico trasposone DNA genomico amp. R Ori. C X Digestione con X amp. R X Ori. C X Ligazione X amp. R X Ori. C Trasformazione in cellule E. coli
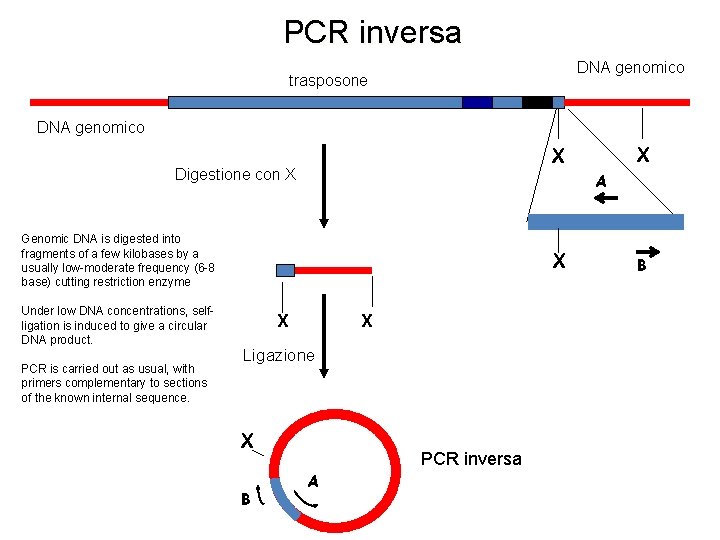
PCR inversa DNA genomico trasposone DNA genomico Digestione con X A Genomic DNA is digested into fragments of a few kilobases by a usually low-moderate frequency (6 -8 base) cutting restriction enzyme Under low DNA concentrations, selfligation is induced to give a circular DNA product. PCR is carried out as usual, with primers complementary to sections of the known internal sequence. X X X Ligazione X B X X A PCR inversa B
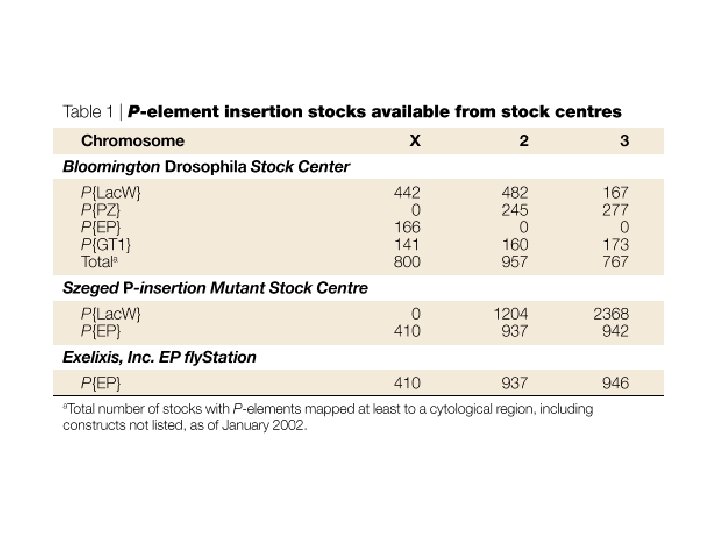
P-element Gene Disruption Project
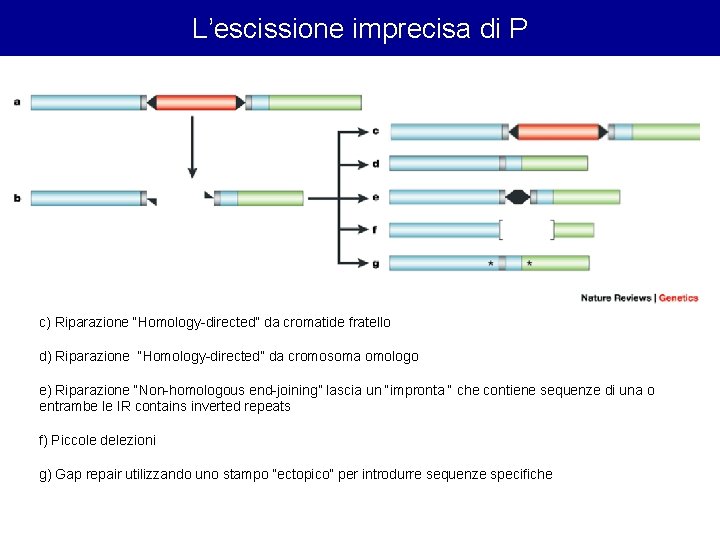
L’escissione imprecisa di P c) Riparazione “Homology-directed” da cromatide fratello d) Riparazione “Homology-directed” da cromosoma omologo e) Riparazione “Non-homologous end-joining” lascia un “impronta “ che contiene sequenze di una o entrambe le IR contains inverted repeats f) Piccole delezioni g) Gap repair utilizzando uno stampo “ectopico” per introdurre sequenze specifiche
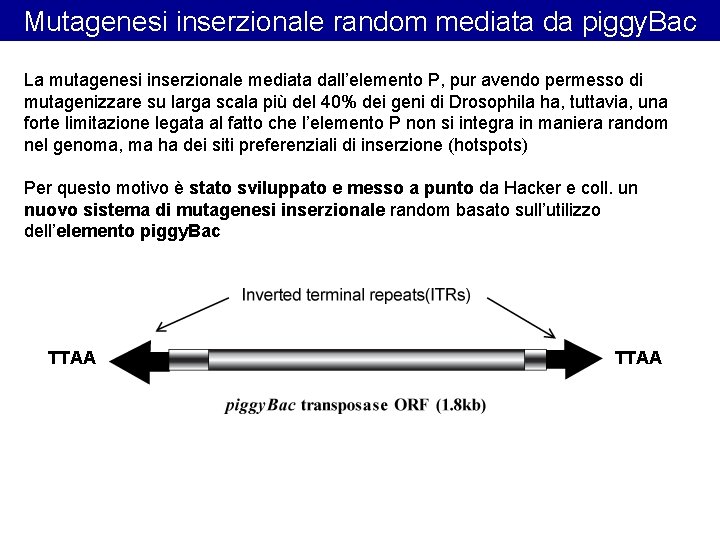
Mutagenesi inserzionale random mediata da piggy. Bac La mutagenesi inserzionale mediata dall’elemento P, pur avendo permesso di mutagenizzare su larga scala più del 40% dei geni di Drosophila ha, tuttavia, una forte limitazione legata al fatto che l’elemento P non si integra in maniera random nel genoma, ma ha dei siti preferenziali di inserzione (hotspots) Per questo motivo è stato sviluppato e messo a punto da Hacker e coll. un nuovo sistema di mutagenesi inserzionale random basato sull’utilizzo dell’elemento piggy. Bac TTAA
Mutagenesi inserzionale random mediata da piggy. Bac Trasposone a DNA identificato nel lepidottero Trichoplusia ni. L’efficienza di mutagenesi è paragonabile a quella indotta da P L’elemento piggy. Bac è: • stabile nel genoma di Drosophila anche in presenza di elementi P • meno suscettibile agli hotspots • si integra preferenzialmente in sequenze non target di P • produce escissione precisa
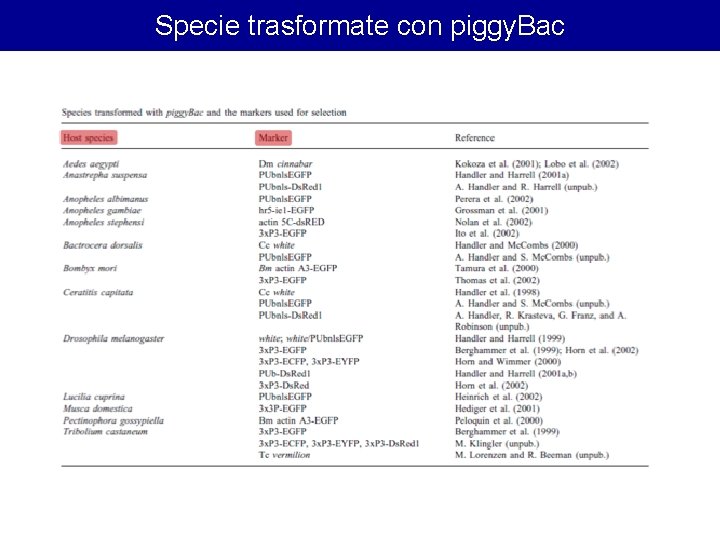
Specie trasformate con piggy. Bac
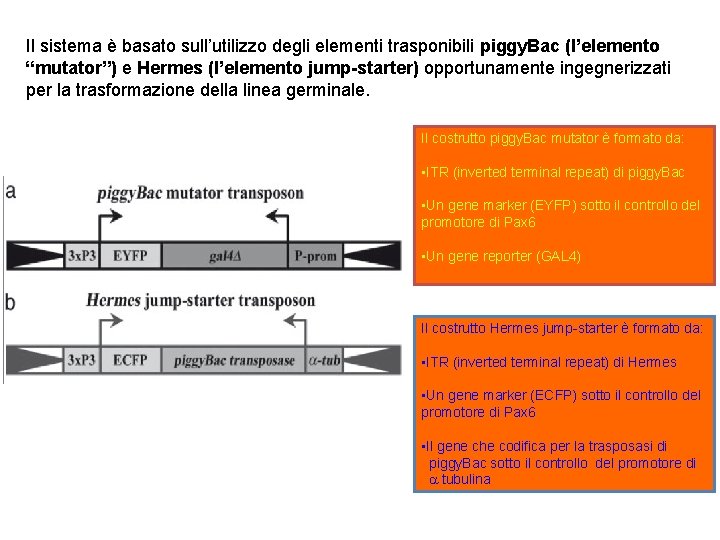
Il sistema è basato sull’utilizzo degli elementi trasponibili piggy. Bac (l’elemento “mutator”) e Hermes (l’elemento jump-starter) opportunamente ingegnerizzati per la trasformazione della linea germinale. Il costrutto piggy. Bac mutator è formato da: • ITR (inverted terminal repeat) di piggy. Bac • Un gene marker (EYFP) sotto il controllo del promotore di Pax 6 • Un gene reporter (GAL 4) Il costrutto Hermes jump-starter è formato da: • ITR (inverted terminal repeat) di Hermes • Un gene marker (ECFP) sotto il controllo del promotore di Pax 6 • Il gene che codifica per la trasposasi di piggy. Bac sotto il controllo del promotore di a tubulina
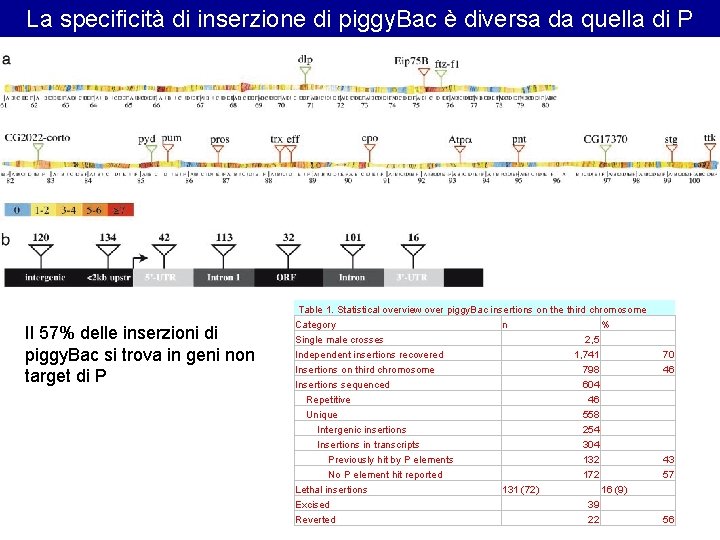
La specificità di inserzione di piggy. Bac è diversa da quella di P Il 57% delle inserzioni di piggy. Bac si trova in geni non target di P Table 1. Statistical overview over piggy. Bac insertions on the third chromosome Category n % Single male crosses 2, 5 Independent insertions recovered 1, 741 Insertions on third chromosome 798 Insertions sequenced 604 Repetitive 46 Unique 558 Intergenic insertions 254 Insertions in transcripts 304 Previously hit by P elements 132 No P element hit reported 172 Lethal insertions 131 (72) 16 (9) Excised 39 Reverted 22 70 46 43 57 56
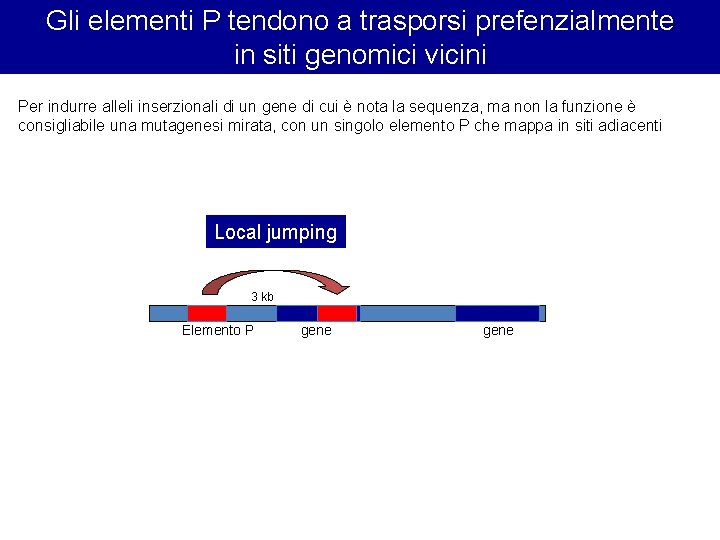
Gli elementi P tendono a trasporsi prefenzialmente in siti genomici vicini Per indurre alleli inserzionali di un gene di cui è nota la sequenza, ma non la funzione è consigliabile una mutagenesi mirata, con un singolo elemento P che mappa in siti adiacenti Local jumping 3 kb Elemento P gene
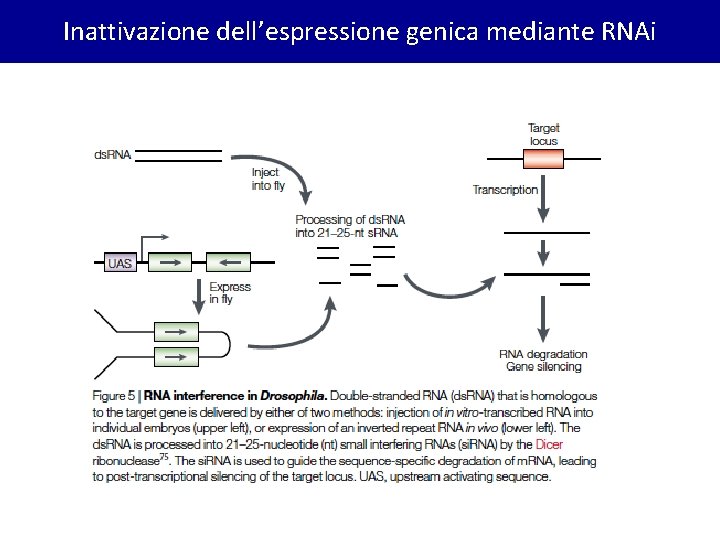
Inattivazione dell’espressione genica mediante RNAi
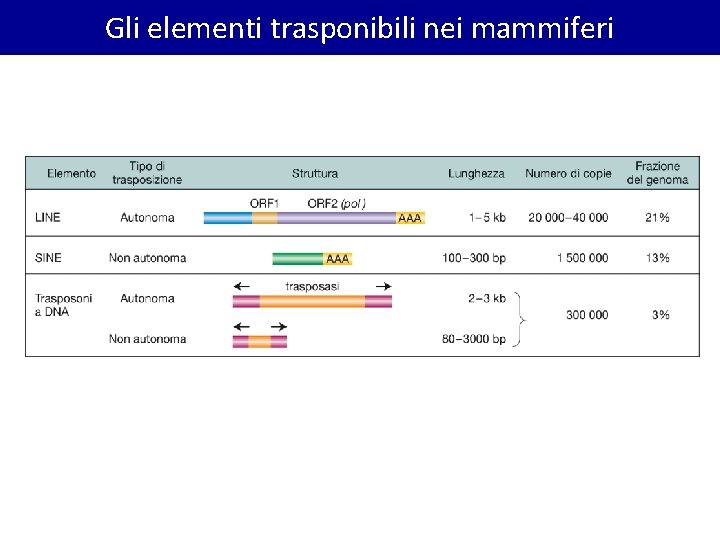
Gli elementi trasponibili nei mammiferi
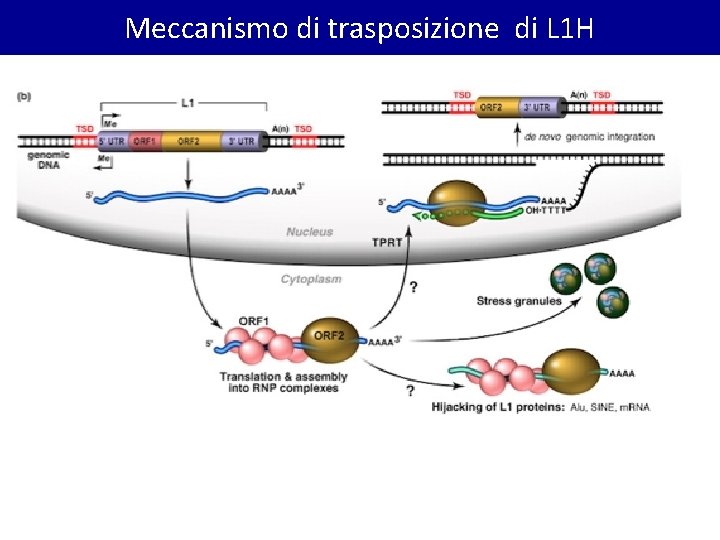
Meccanismo di trasposizione di L 1 H
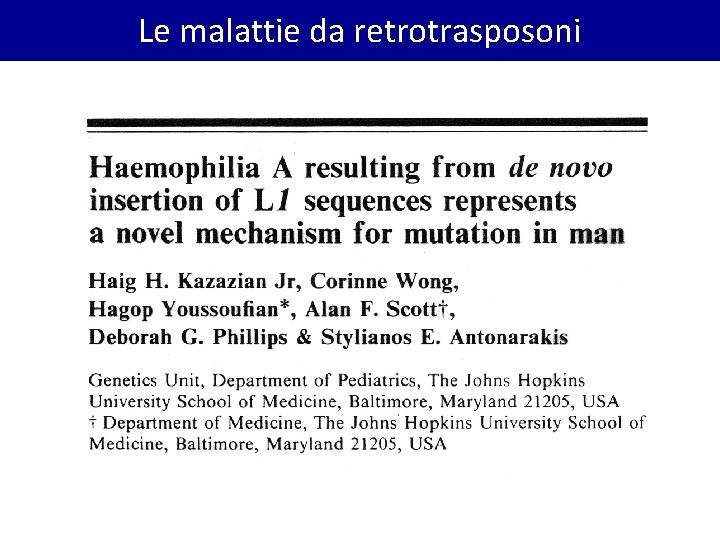
Le malattie da retrotrasposoni
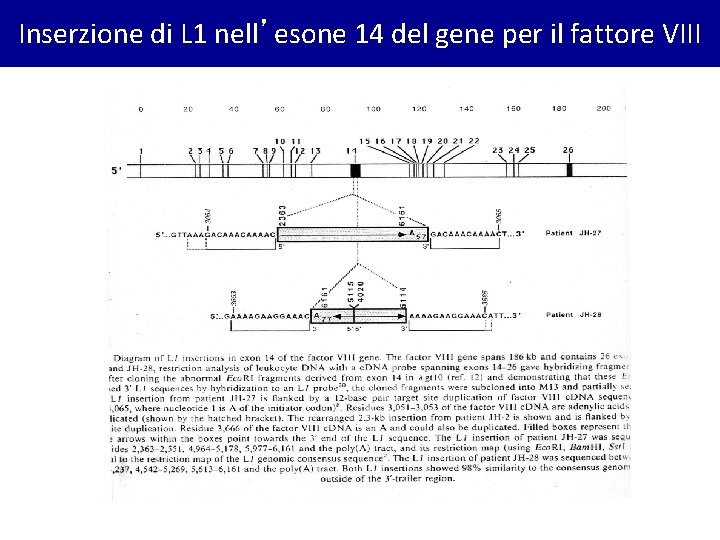
Inserzione di L 1 nell’esone 14 del gene per il fattore VIII
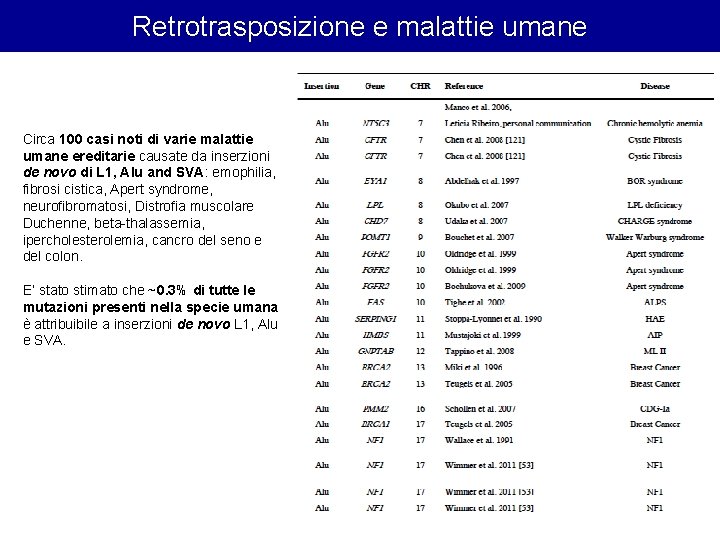
Retrotrasposizione e malattie umane Circa 100 casi noti di varie malattie umane ereditarie causate da inserzioni de novo di L 1, Alu and SVA: emophilia, fibrosi cistica, Apert syndrome, neurofibromatosi, Distrofia muscolare Duchenne, beta-thalassemia, ipercholesterolemia, cancro del seno e del colon. E’ stato stimato che ~0. 3% di tutte le mutazioni presenti nella specie umana è attribuibile a inserzioni de novo L 1, Alu e SVA.
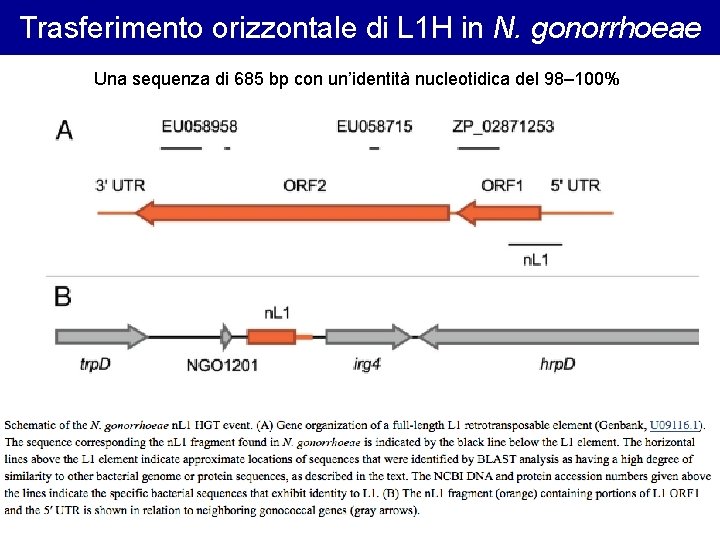
Trasferimento orizzontale di L 1 H in N. gonorrhoeae Una sequenza di 685 bp con un’identità nucleotidica del 98– 100%
Retrotrasposizione di L 1 in sistemi transgenici di mammifero (Kazazian& co)
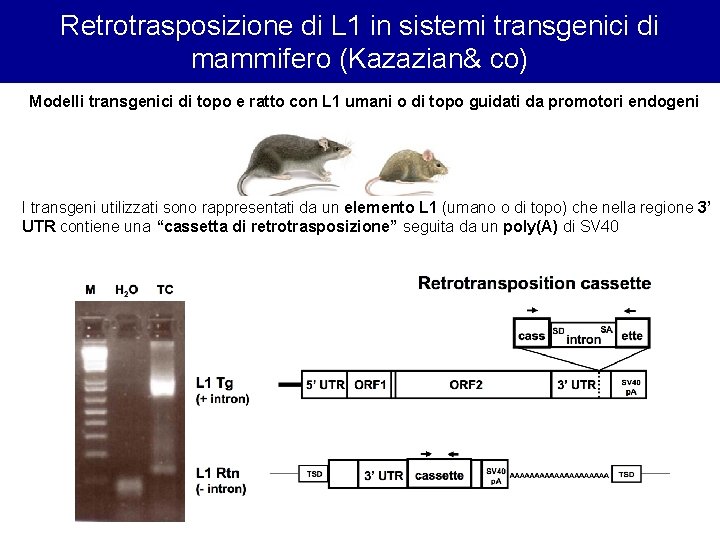
Retrotrasposizione di L 1 in sistemi transgenici di mammifero (Kazazian& co) Modelli transgenici di topo e ratto con L 1 umani o di topo guidati da promotori endogeni I transgeni utilizzati sono rappresentati da un elemento L 1 (umano o di topo) che nella regione 3’ UTR contiene una “cassetta di retrotrasposizione” seguita da un poly(A) di SV 40
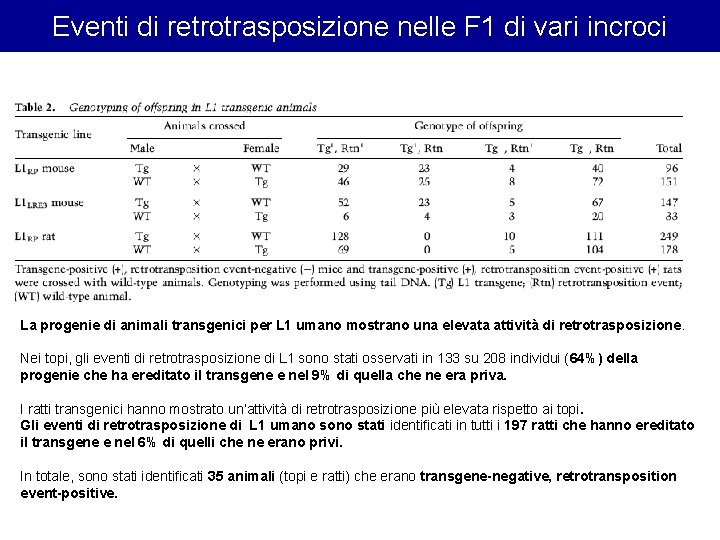
Eventi di retrotrasposizione nelle F 1 di vari incroci La progenie di animali transgenici per L 1 umano mostrano una elevata attività di retrotrasposizione. Nei topi, gli eventi di retrotrasposizione di L 1 sono stati osservati in 133 su 208 individui (64%) della progenie che ha ereditato il transgene e nel 9% di quella che ne era priva. I ratti transgenici hanno mostrato un’attività di retrotrasposizione più elevata rispetto ai topi. Gli eventi di retrotrasposizione di L 1 umano sono stati identificati in tutti i 197 ratti che hanno ereditato il transgene e nel 6% di quelli che ne erano privi. In totale, sono stati identificati 35 animali (topi e ratti) che erano transgene-negative, retrotransposition event-positive.
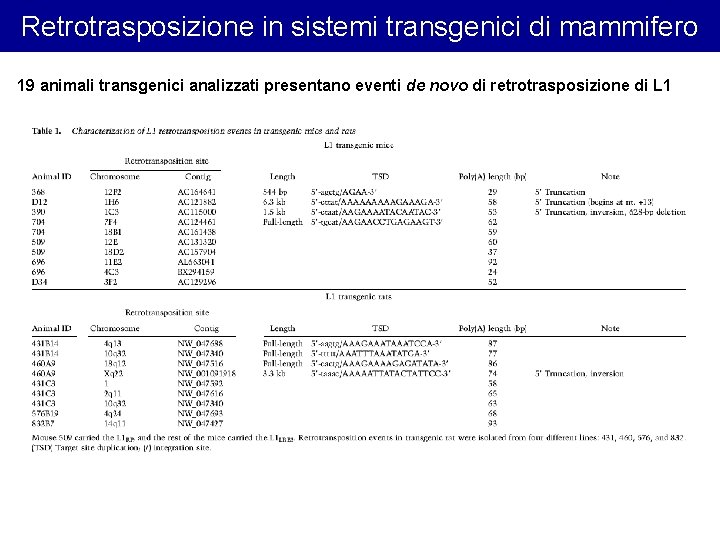
Retrotrasposizione in sistemi transgenici di mammifero 19 animali transgenici analizzati presentano eventi de novo di retrotrasposizione di L 1
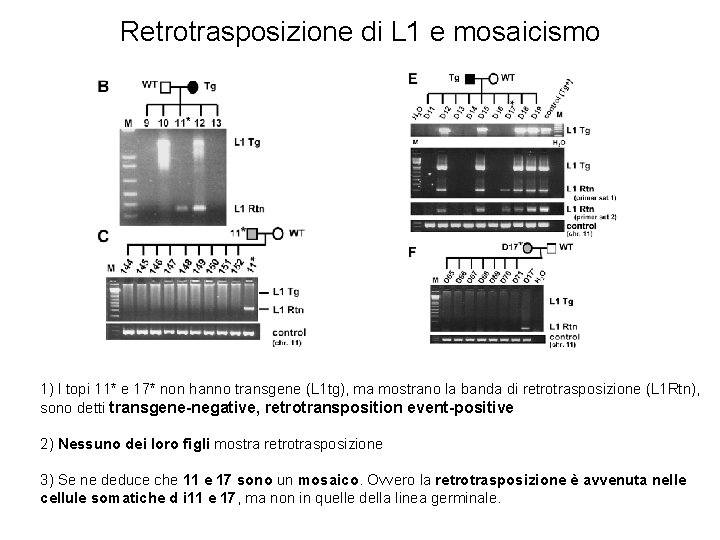
Retrotrasposizione di L 1 e mosaicismo 1) I topi 11* e 17* non hanno transgene (L 1 tg), ma mostrano la banda di retrotrasposizione (L 1 Rtn), sono detti transgene-negative, retrotransposition event-positive 2) Nessuno dei loro figli mostra retrotrasposizione 3) Se ne deduce che 11 e 17 sono un mosaico. Ovvero la retrotrasposizione è avvenuta nelle cellule somatiche d i 11 e 17, ma non in quelle della linea germinale.
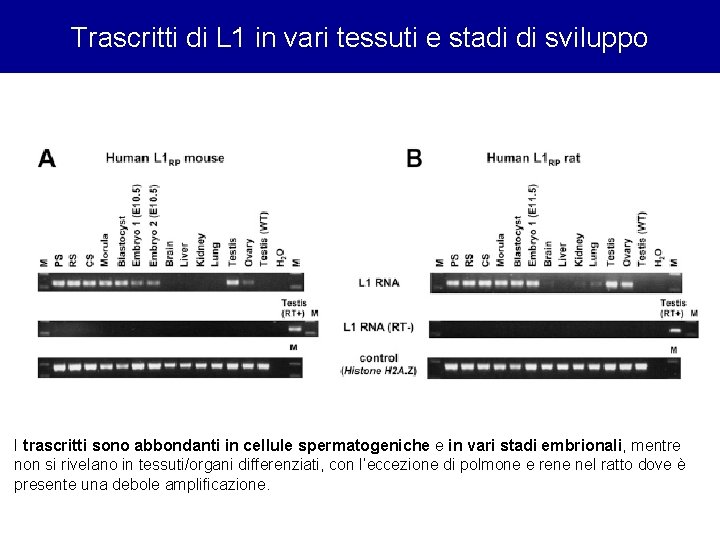
Trascritti di L 1 in vari tessuti e stadi di sviluppo I trascritti sono abbondanti in cellule spermatogeniche e in vari stadi embrionali, mentre non si rivelano in tessuti/organi differenziati, con l’eccezione di polmone e rene nel ratto dove è presente una debole amplificazione.
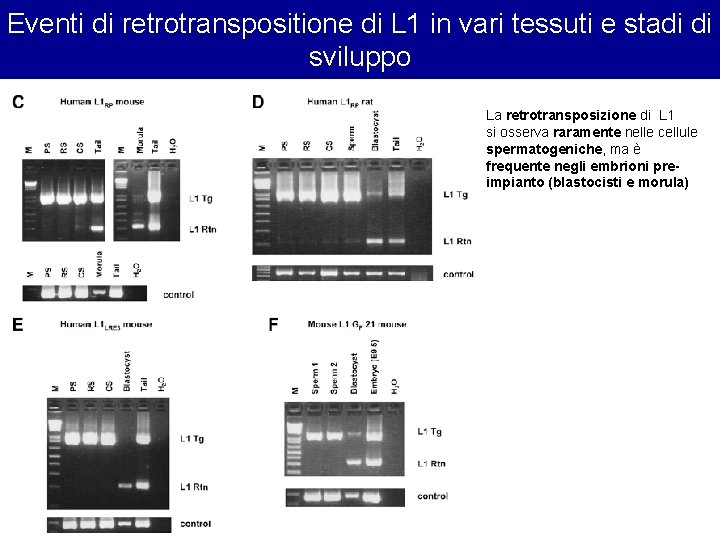
Eventi di retrotranspositione di L 1 in vari tessuti e stadi di sviluppo La retrotransposizione di L 1 si osserva raramente nelle cellule spermatogeniche, ma è frequente negli embrioni preimpianto (blastocisti e morula)
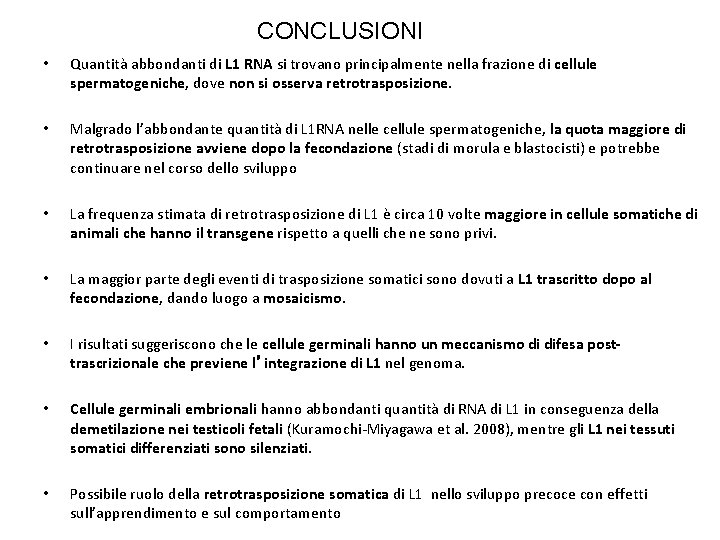
CONCLUSIONI • Quantità abbondanti di L 1 RNA si trovano principalmente nella frazione di cellule spermatogeniche, dove non si osserva retrotrasposizione. • Malgrado l’abbondante quantità di L 1 RNA nelle cellule spermatogeniche, la quota maggiore di retrotrasposizione avviene dopo la fecondazione (stadi di morula e blastocisti) e potrebbe continuare nel corso dello sviluppo • La frequenza stimata di retrotrasposizione di L 1 è circa 10 volte maggiore in cellule somatiche di animali che hanno il transgene rispetto a quelli che ne sono privi. • La maggior parte degli eventi di trasposizione somatici sono dovuti a L 1 trascritto dopo al fecondazione, dando luogo a mosaicismo. • I risultati suggeriscono che le cellule germinali hanno un meccanismo di difesa posttrascrizionale che previene l’integrazione di L 1 nel genoma. • Cellule germinali embrionali hanno abbondanti quantità di RNA di L 1 in conseguenza della demetilazione nei testicoli fetali (Kuramochi-Miyagawa et al. 2008), mentre gli L 1 nei tessuti somatici differenziati sono silenziati. • Possibile ruolo della retrotrasposizione somatica di L 1 nello sviluppo precoce con effetti sull’apprendimento e sul comportamento
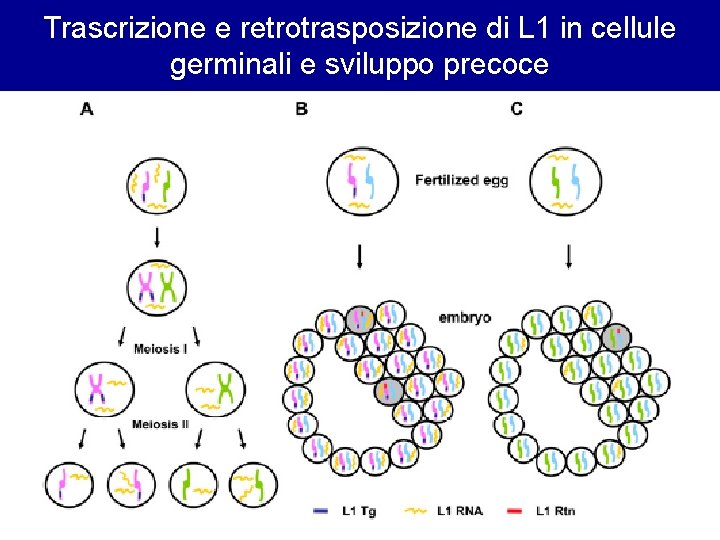
Trascrizione e retrotrasposizione di L 1 in cellule germinali e sviluppo precoce
Retrotrasposizione di L 1 nel cervello umano
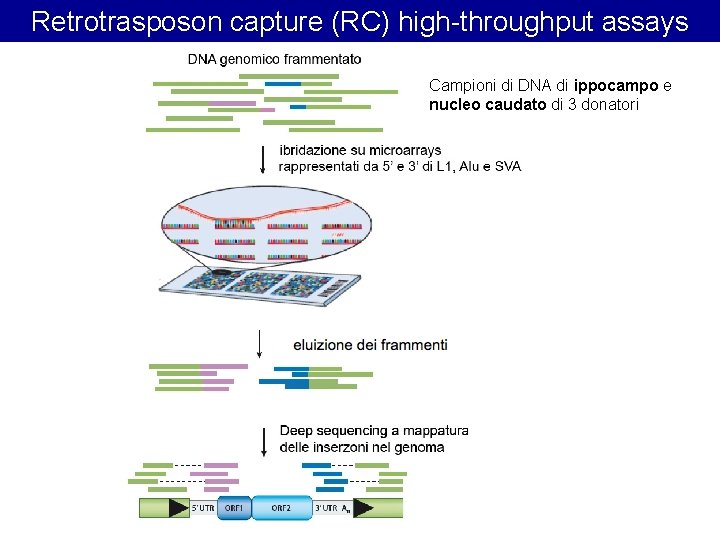
Retrotrasposon capture (RC) high-throughput assays Campioni di DNA di ippocampo e nucleo caudato di 3 donatori
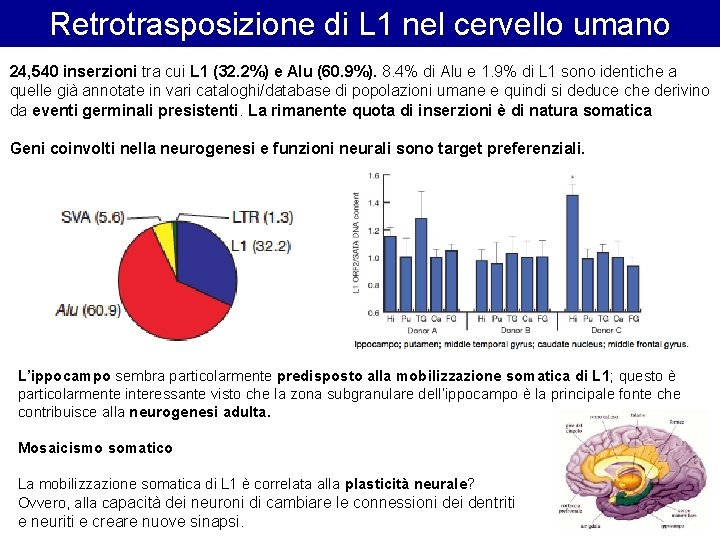
Retrotrasposizione di L 1 nel cervello umano 24, 540 inserzioni tra cui L 1 (32. 2%) e Alu (60. 9%). 8. 4% di Alu e 1. 9% di L 1 sono identiche a quelle già annotate in vari cataloghi/database di popolazioni umane e quindi si deduce che derivino da eventi germinali presistenti. La rimanente quota di inserzioni è di natura somatica Geni coinvolti nella neurogenesi e funzioni neurali sono target preferenziali. L’ippocampo sembra particolarmente predisposto alla mobilizzazione somatica di L 1; questo è particolarmente interessante visto che la zona subgranulare dell’ippocampo è la principale fonte che contribuisce alla neurogenesi adulta. Mosaicismo somatico La mobilizzazione somatica di L 1 è correlata alla plasticità neurale? Ovvero, alla capacità dei neuroni di cambiare le connessioni dentriti e neuriti e creare nuove sinapsi.
- Slides: 79