
Gntique des populations et volution B 61 ESPECE
Génétique des populations et Évolution (B 61) ESPECE ET SPECIATION Université du Sud – Toulon – Var Philippe Cosentino, professeur agrégé mars 2015 1
Face à la diversité du monde vivant … Entrée des animaux dans l’arche de Noé (Brueghel l’ancien) … les Hommes cherchent un ordre 2/59
Pourquoi cette barrière entre les espèces ? L’espèce est-elle un moule ? Ces groupes sont ils naturels ? L’espèce est elle immanente ? Pourquoi existet-il des espèces ? L’espèce est-elle immuable ? De nouvelles espèces peuventelles apparaître ? 3/59
De l’essentialisme au nominalisme (1) � Selon Platon � espèces = idées, pures, parfaites, éternelles = stade ultime de la réalité � individus = déclinaisons, reflets 4/59 imparfaits de ces idées
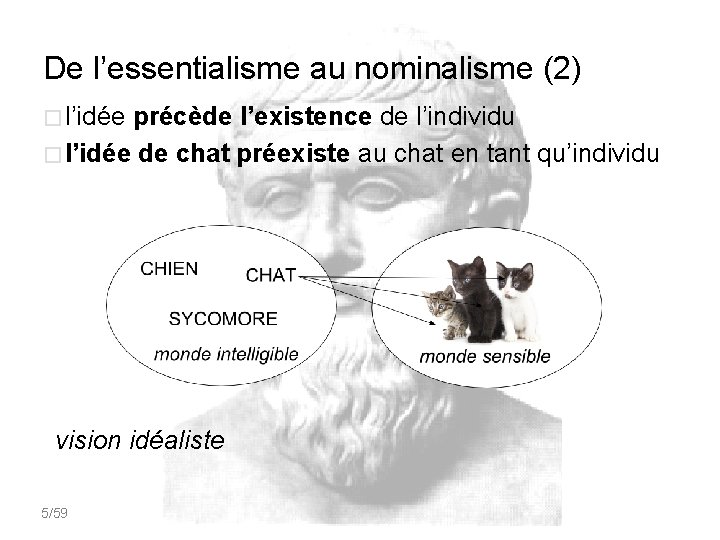
De l’essentialisme au nominalisme (2) � l’idée précède l’existence de l’individu � l’idée de chat préexiste au chat en tant qu’individu vision idéaliste 5/59
De l’essentialisme au nominalisme (3) � Aristote : rejet de l’idéalisme platonicien � individu = matière à laquelle une « cause formelle » va donner ses caractéristiques, lui conférant son essence 6/59
De l’essentialisme au nominalisme (4) � caractéristiques essentielles attribuées par ajouts successifs : Rochers = existence Végétaux = existence + vie Animaux = existence + vie + mouvement Hommes = existence + vie + mouvement + raison Essence spécifique , invariable, éternelle. Différences entre individus = variations accidentelles 7/59
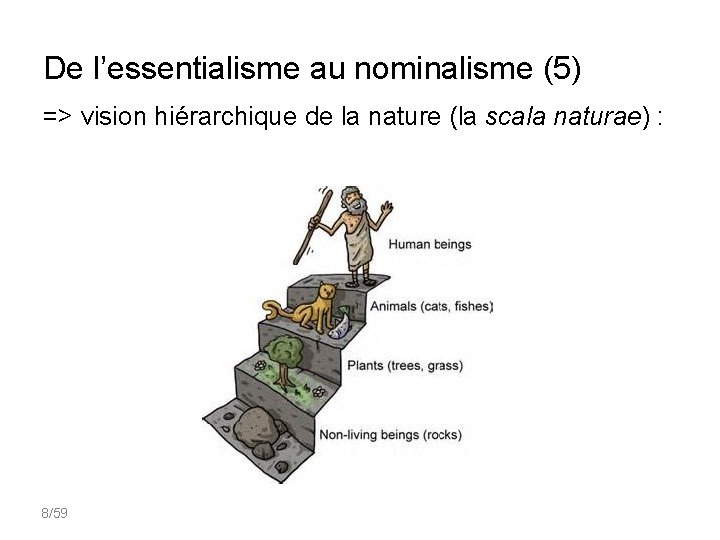
De l’essentialisme au nominalisme (5) => vision hiérarchique de la nature (la scala naturae) : 8/59
De l’essentialisme au nominalisme (6) Aristote : l’espèce relève de l’essence de l’individu Cette essence précède l’individu et en détermine les caractéristiques => conception essentialiste de l’espèce 9/59
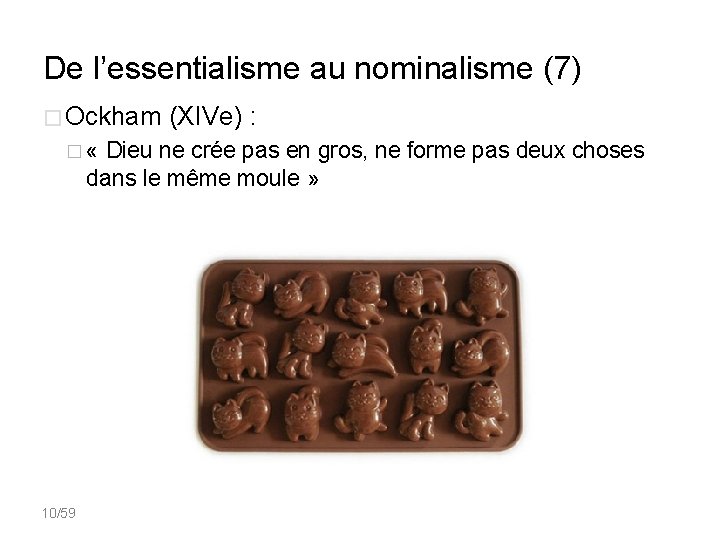
De l’essentialisme au nominalisme (7) � Ockham (XIVe) : � « Dieu ne crée pas en gros, ne forme pas deux choses dans le même moule » 10/59
De l’essentialisme au nominalisme (8) � Buffon (XVIIIe) reste essentialiste : différences individuelles = altération par rapport au modèle. � « Il y a dans la Nature un prototype général dans chaque espèce sur lequel chaque individu est modelé, mais qui semble, en se réalisant, s’altérer ou se perfectionner par les circonstances » . 11/59
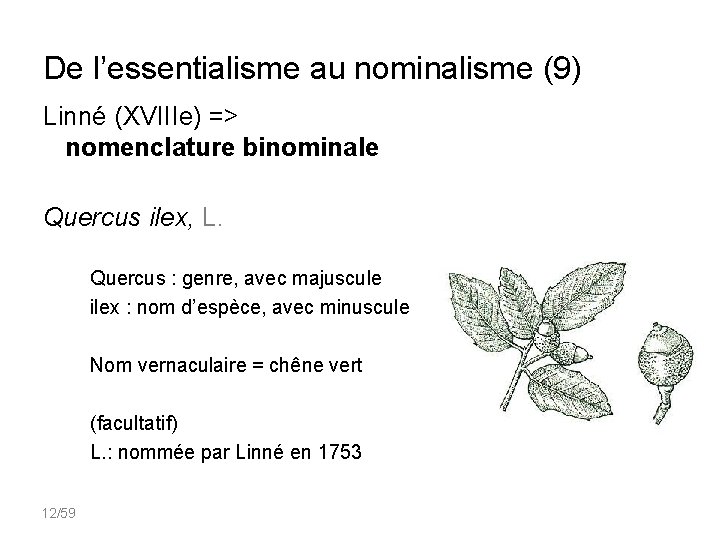
De l’essentialisme au nominalisme (9) Linné (XVIIIe) => nomenclature binominale Quercus ilex, L. Quercus : genre, avec majuscule ilex : nom d’espèce, avec minuscule Nom vernaculaire = chêne vert (facultatif) L. : nommée par Linné en 1753 12/59
De l’essentialisme au nominalisme (10) � Lamarck (XVIIIe): � « La nature n’a réellement formé ni classes, ni ordres, ni familles, ni genres, ni espèces constantes, mais seulement des individus qui se succèdent les uns aux autres, et qui ressemblent à ceux qui les ont produits. » 13/59
De l’essentialisme au nominalisme (11) � Lamarck : l’espèce s’inscrit dans le temps, elle est dynamique, variable � = regroupement d’individus qui se ressemblent pour des raisons héréditaires � = simple outil permettant d’étudier des objets réels, et non un objet réel en lui-même (nominalisme) => approche nominaliste de l’espèce 14/59
Vers une définition de l’espèce (1) � Darwin ( « Origine des espèces » ) : � « Je ne discuterai pas non plus ici les différentes définitions que l’on a données du terme espèce. Aucune de ces définitions n’a complètement satisfait tous les naturalistes (…) on a, dans un but de commodité appliqué arbitrairement le terme espèce à certains individus qui se ressemblent de très près » => logique profondément nominaliste. 15/59
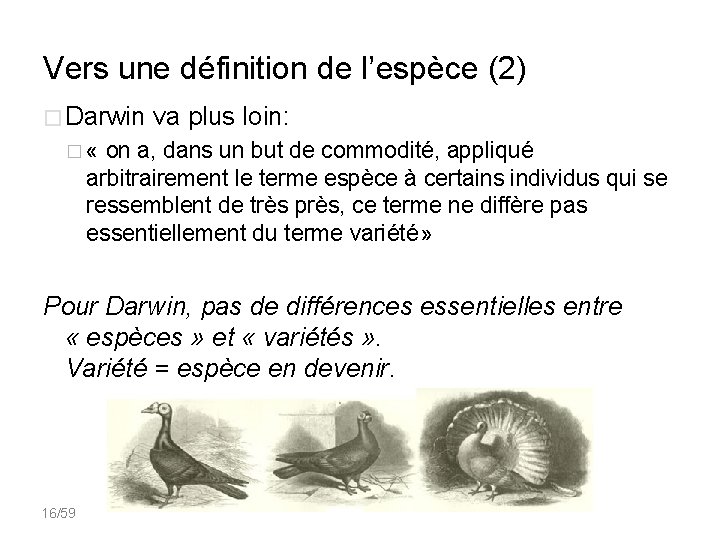
Vers une définition de l’espèce (2) � Darwin va plus loin: � « on a, dans un but de commodité, appliqué arbitrairement le terme espèce à certains individus qui se ressemblent de très près, ce terme ne diffère pas essentiellement du terme variété» Pour Darwin, pas de différences essentielles entre « espèces » et « variétés » . Variété = espèce en devenir. 16/59
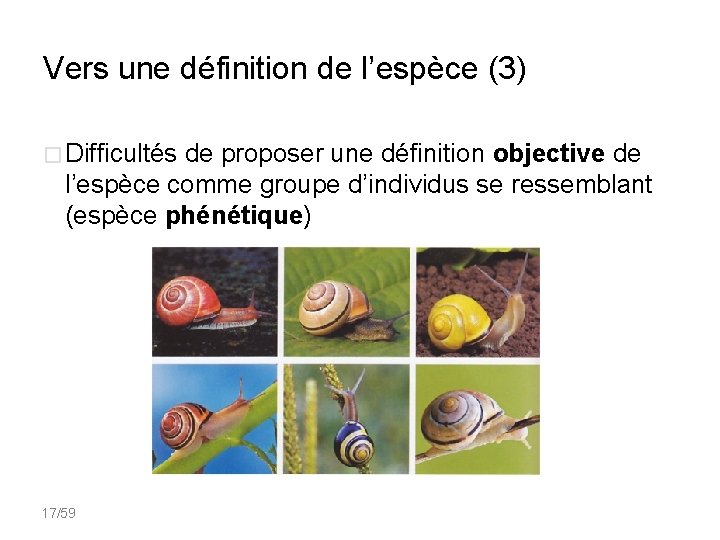
Vers une définition de l’espèce (3) � Difficultés de proposer une définition objective de l’espèce comme groupe d’individus se ressemblant (espèce phénétique) 17/59
Vers une définition de l’espèce (4) � Ernst Mayr propose en 1942 une définition basée sur l’interfécondité (espèce biologique) : « Espèce biologique = population ou ensemble de populations dont les individus peuvent effectivement ou potentiellement se reproduire entre eux et engendrer une descendance viable et féconde, dans des conditions naturelles. » Définition, la plus utilisée actuellement 18/59
Vers une définition de l’espèce (5) D’autres définitions de l’espèce encore en usage, lorsqu’il n’est pas possible de tester l’interfécondité (fossiles, organismes asexués …). Notamment : � Espèce phénétique : ensemble d’organismes vivants se ressemblant plus entre eux qu’à d’autres ensembles équivalents. � Espèce morphologique : groupe d'individus défini par des caractéristiques structurales (taille, forme…). 19/59
Vers une définition de l’espèce (6) Aujourd’hui la notion d’espèce est mise à mal : � Hybrides fertiles ? � Limite entre espèces, sous-espèces et variétés ? � Peut-on parler d’espèces chez les bactéries ? Chez les virus ? 20/59
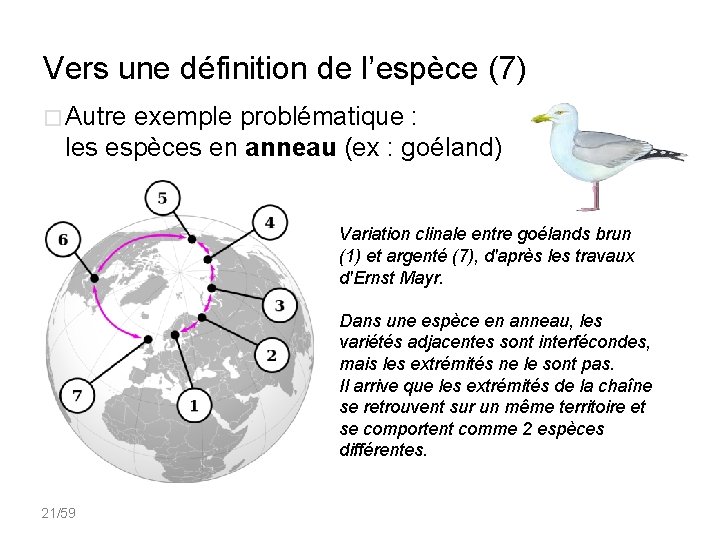
Vers une définition de l’espèce (7) � Autre exemple problématique : les espèces en anneau (ex : goéland) Variation clinale entre goélands brun (1) et argenté (7), d'après les travaux d'Ernst Mayr. Dans une espèce en anneau, les variétés adjacentes sont interfécondes, mais les extrémités ne le sont pas. Il arrive que les extrémités de la chaîne se retrouvent sur un même territoire et se comportent comme 2 espèces différentes. 21/59
Vers une définition de l’espèce (8) … et pourtant on ne peut pas s’en passer. � Extraits du programme de Terminale S : � « La définition de l'espèce est délicate et peut reposer sur des critères variés » � « Il ne s'agit pas de conduire à une définition incontestable de l'espèce ou de la spéciation, mais simplement de montrer que ce concept dont on ne peut aujourd'hui se passer pour décrire le monde vivant est pourtant d'une nature très délicate. » 22/59
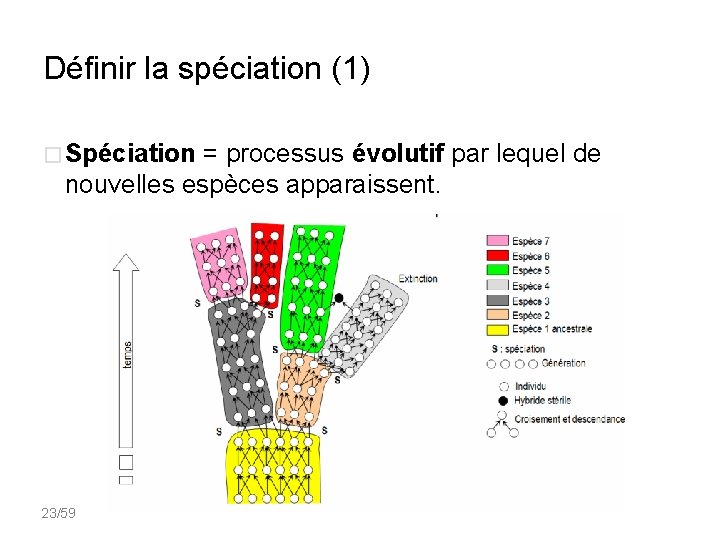
Définir la spéciation (1) � Spéciation = processus évolutif par lequel de nouvelles espèces apparaissent. 23/59
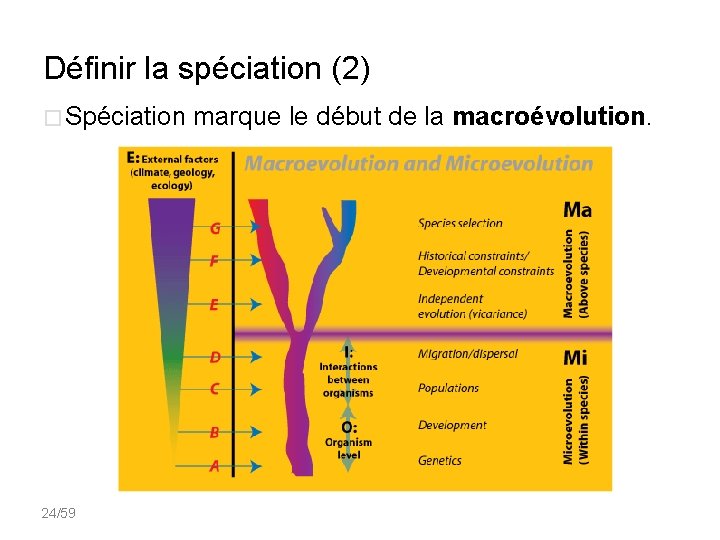
Définir la spéciation (2) � Spéciation marque le début de la macroévolution. 24/59
A l’origine de la spéciation (1) � L’espèce biologique reposant sur l’existence de « barrières reproductives » , il est tentant de considérer ces barrières comme la cause de la spéciation. 25/59
A l’origine de la spéciation (2) Ernst Mayr : � « les croisements entre espèces ont (ils) été frappées de stérilité uniquement pour que les formes organiques ne puissent pas se confondre ? Je ne le crois pas. La stérilité est simplement une conséquence (…) et n’est pas une propriété dont les espèces ont été spécialement douées. » Stérilité = conséquence et non cause de la spéciation. 26/59
A l’origine de la spéciation (3) � Spéciation résulte toujours d’un isolement. � Deux populations isolées vont diverger génétiquement jusqu’à ne plus pouvoir se reproduire entre elles. � Comprendre la spéciation revient à comprendre la nature de cet isolement. 27/59
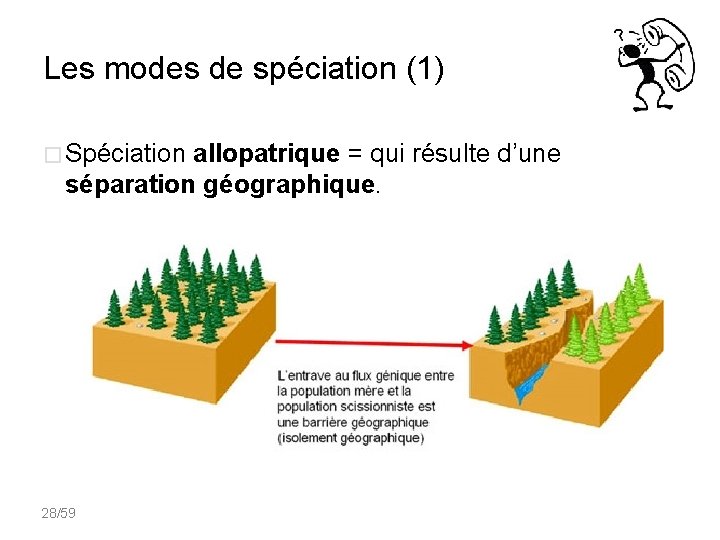
Les modes de spéciation (1) � Spéciation allopatrique = qui résulte d’une séparation géographique. 28/59
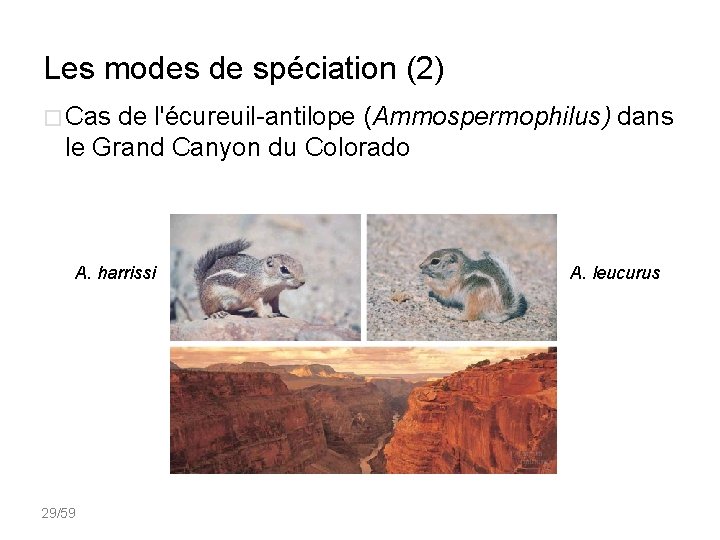
Les modes de spéciation (2) � Cas de l'écureuil-antilope (Ammospermophilus) dans le Grand Canyon du Colorado A. harrissi 29/59 A. leucurus
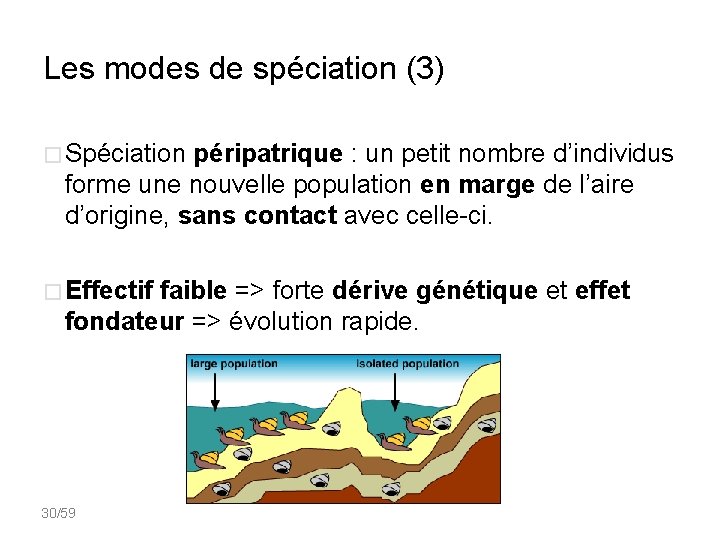
Les modes de spéciation (3) � Spéciation péripatrique : un petit nombre d’individus forme une nouvelle population en marge de l’aire d’origine, sans contact avec celle-ci. � Effectif faible => forte dérive génétique et effet fondateur => évolution rapide. 30/59
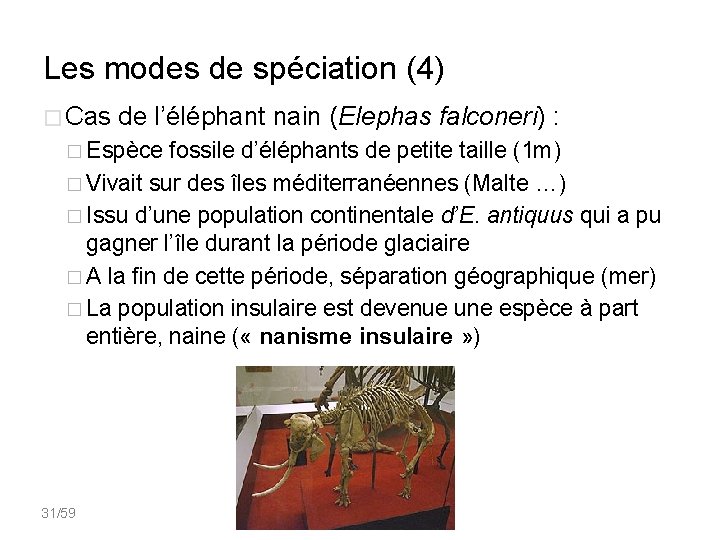
Les modes de spéciation (4) � Cas de l’éléphant nain (Elephas falconeri) : � Espèce fossile d’éléphants de petite taille (1 m) � Vivait sur des îles méditerranéennes (Malte …) � Issu d’une population continentale d’E. antiquus qui a pu gagner l’île durant la période glaciaire � A la fin de cette période, séparation géographique (mer) � La population insulaire est devenue une espèce à part entière, naine ( « nanisme insulaire » ) 31/59
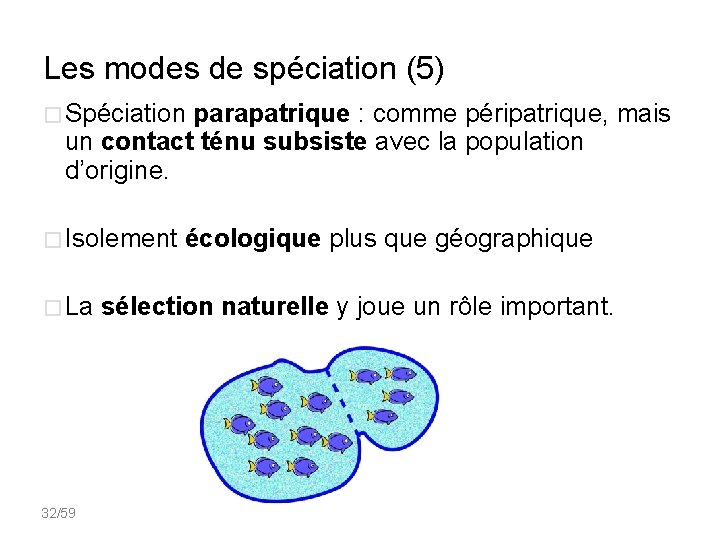
Les modes de spéciation (5) � Spéciation parapatrique : comme péripatrique, mais un contact ténu subsiste avec la population d’origine. � Isolement écologique plus que géographique � La sélection 32/59 naturelle y joue un rôle important.
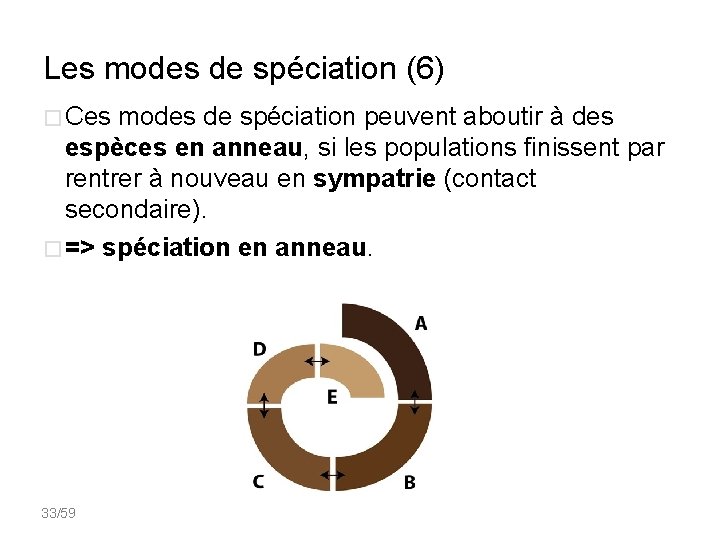
Les modes de spéciation (6) � Ces modes de spéciation peuvent aboutir à des espèces en anneau, si les populations finissent par rentrer à nouveau en sympatrie (contact secondaire). � => spéciation en anneau. 33/59
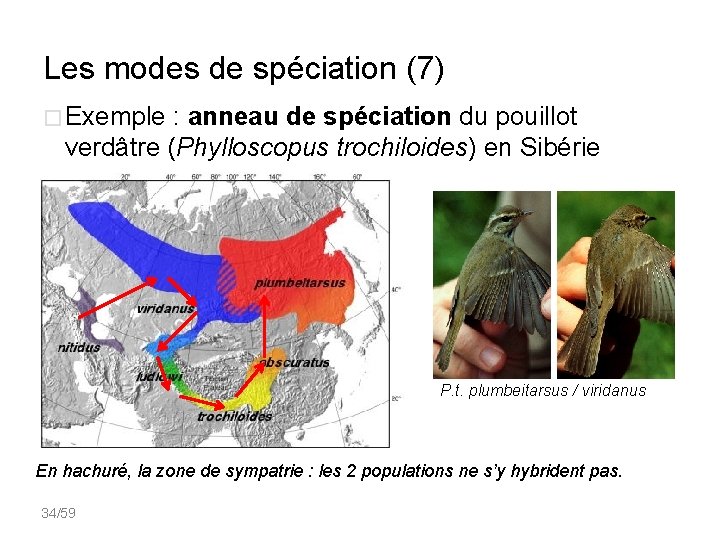
Les modes de spéciation (7) � Exemple : anneau de spéciation du pouillot verdâtre (Phylloscopus trochiloides) en Sibérie P. t. plumbeitarsus / viridanus En hachuré, la zone de sympatrie : les 2 populations ne s’y hybrident pas. 34/59
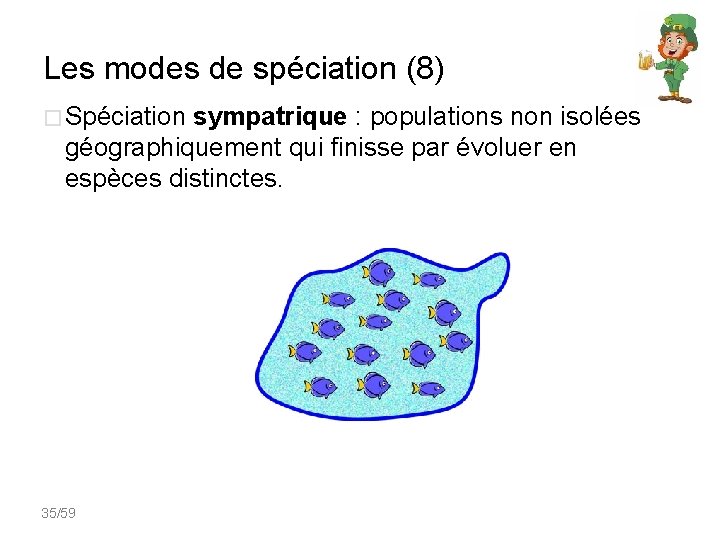
Les modes de spéciation (8) � Spéciation sympatrique : populations non isolées géographiquement qui finisse par évoluer en espèces distinctes. 35/59
Les modes de spéciation (9) � Une spéciation sympatrique peut résulter d’hybridations fertiles (avec ou sans polyploïdie), essentiellement chez les végétaux. � Dans ce cas l’isolement reproducteur des hybrides qui en résulte joue un rôle capital. 36/59
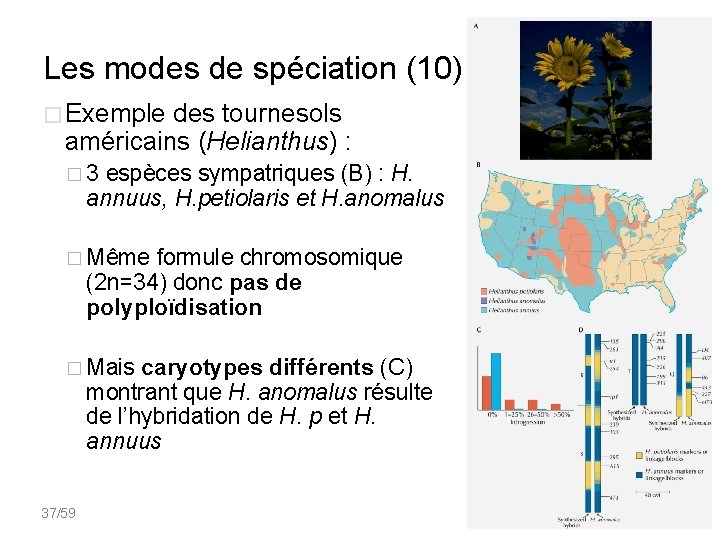
Les modes de spéciation (10) � Exemple des tournesols américains (Helianthus) : � 3 espèces sympatriques (B) : H. annuus, H. petiolaris et H. anomalus � Même formule chromosomique (2 n=34) donc pas de polyploïdisation � Mais caryotypes différents (C) montrant que H. anomalus résulte de l’hybridation de H. p et H. annuus 37/59
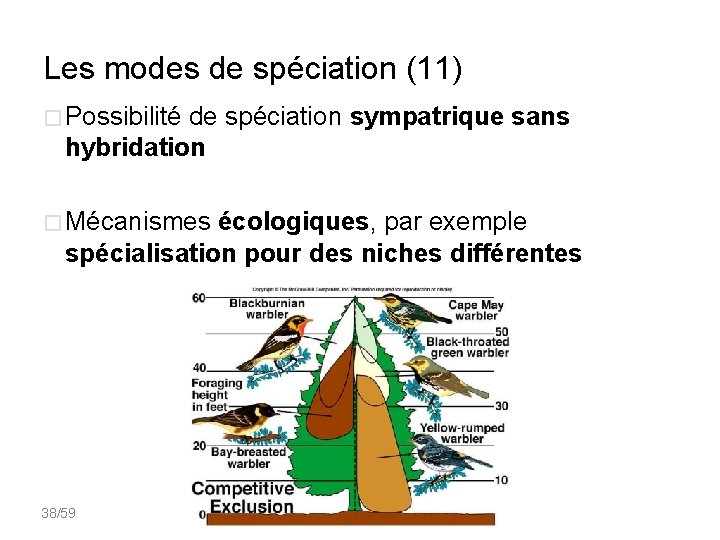
Les modes de spéciation (11) � Possibilité de spéciation sympatrique sans hybridation � Mécanismes écologiques, par exemple spécialisation pour des niches différentes 38/59
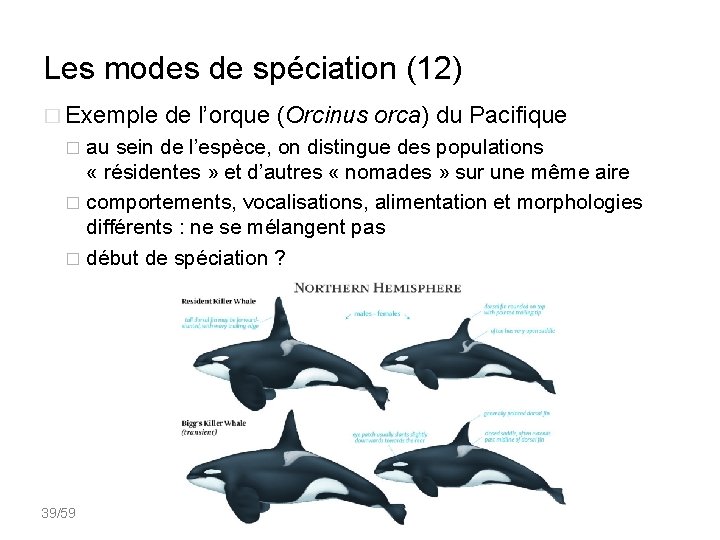
Les modes de spéciation (12) � Exemple de l’orque (Orcinus orca) du Pacifique au sein de l’espèce, on distingue des populations « résidentes » et d’autres « nomades » sur une même aire � comportements, vocalisations, alimentation et morphologies différents : ne se mélangent pas � début de spéciation ? � 39/59
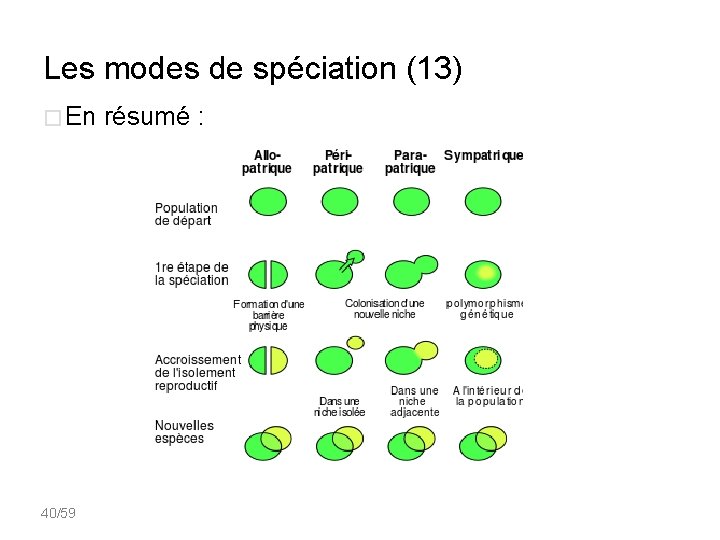
Les modes de spéciation (13) � En résumé : 40/59
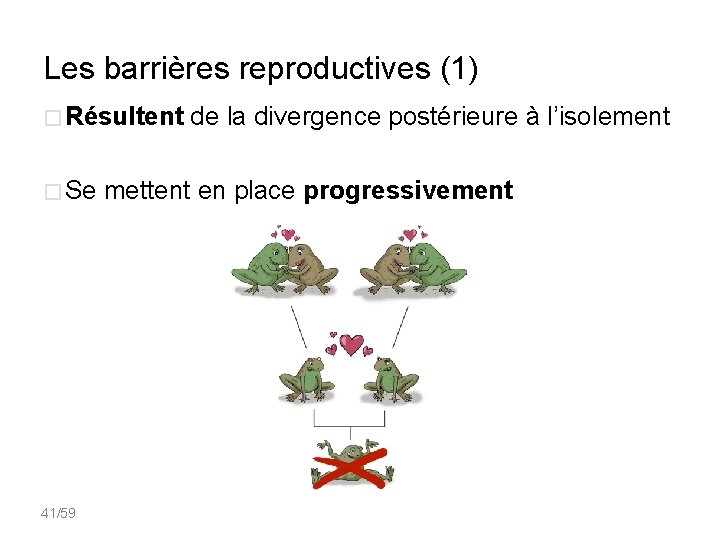
Les barrières reproductives (1) � Résultent de la divergence postérieure à l’isolement � Se mettent en place progressivement 41/59
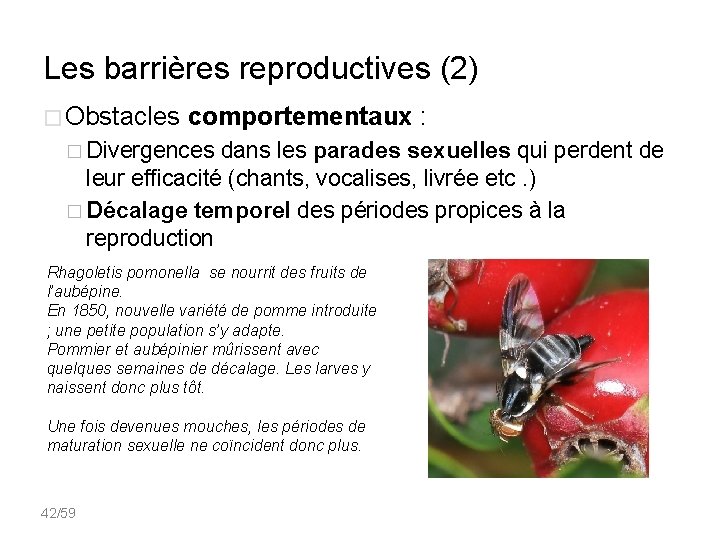
Les barrières reproductives (2) � Obstacles comportementaux : � Divergences dans les parades sexuelles qui perdent de leur efficacité (chants, vocalises, livrée etc. ) � Décalage temporel des périodes propices à la reproduction Rhagoletis pomonella se nourrit des fruits de l’aubépine. En 1850, nouvelle variété de pomme introduite ; une petite population s’y adapte. Pommier et aubépinier mûrissent avec quelques semaines de décalage. Les larves y naissent donc plus tôt. Une fois devenues mouches, les périodes de maturation sexuelle ne coïncident donc plus. 42/59
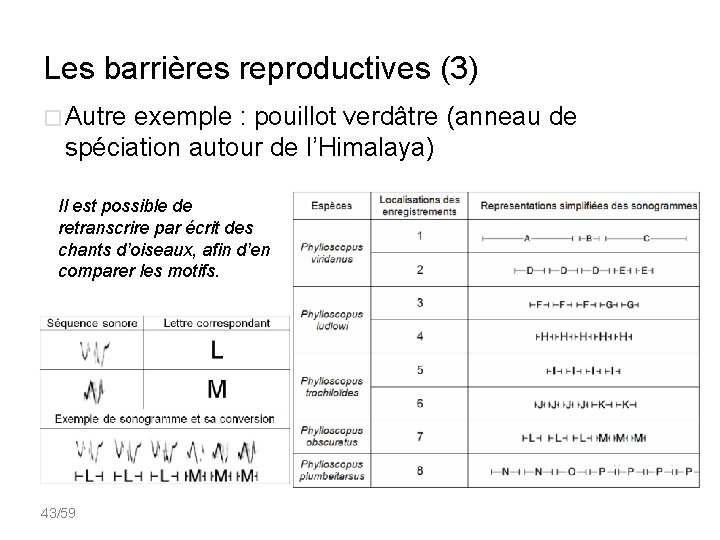
Les barrières reproductives (3) � Autre exemple : pouillot verdâtre (anneau de spéciation autour de l’Himalaya) Il est possible de retranscrire par écrit des chants d’oiseaux, afin d’en comparer les motifs. 43/59
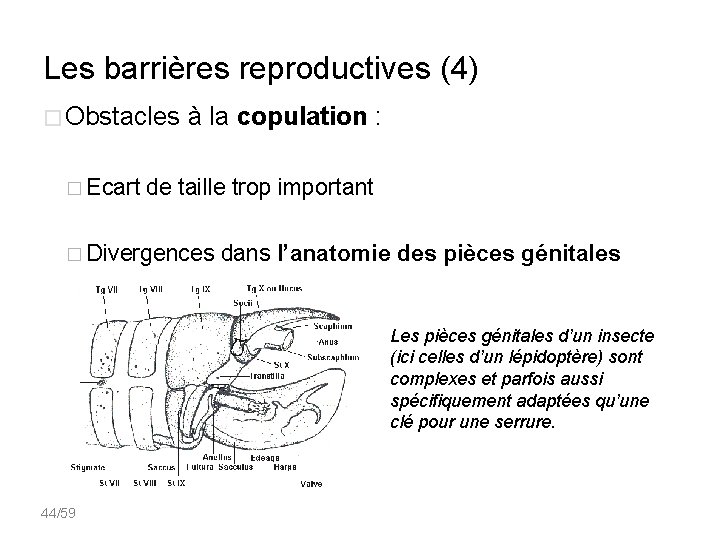
Les barrières reproductives (4) � Obstacles à la copulation : � Ecart de taille trop important � Divergences dans l’anatomie des pièces génitales Les pièces génitales d’un insecte (ici celles d’un lépidoptère) sont complexes et parfois aussi spécifiquement adaptées qu’une clé pour une serrure. 44/59
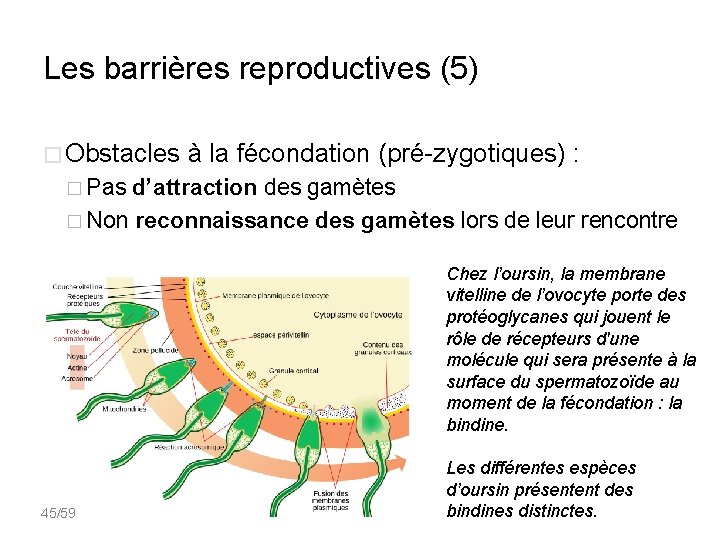
Les barrières reproductives (5) � Obstacles à la fécondation (pré-zygotiques) : � Pas d’attraction des gamètes � Non reconnaissance des gamètes lors de leur rencontre Chez l’oursin, la membrane vitelline de l’ovocyte porte des protéoglycanes qui jouent le rôle de récepteurs d'une molécule qui sera présente à la surface du spermatozoïde au moment de la fécondation : la bindine. 45/59 Les différentes espèces d’oursin présentent des bindines distinctes.
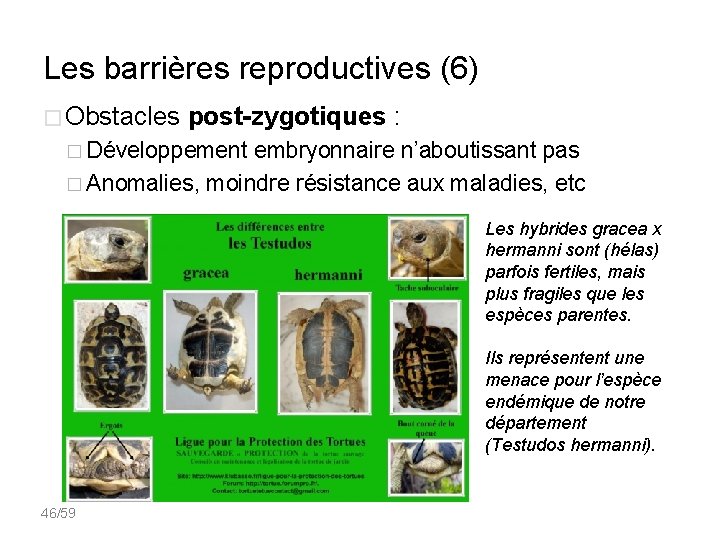
Les barrières reproductives (6) � Obstacles post-zygotiques : � Développement embryonnaire n’aboutissant pas � Anomalies, moindre résistance aux maladies, etc Les hybrides gracea x hermanni sont (hélas) parfois fertiles, mais plus fragiles que les espèces parentes. Ils représentent une menace pour l’espèce endémique de notre département (Testudos hermanni). 46/59
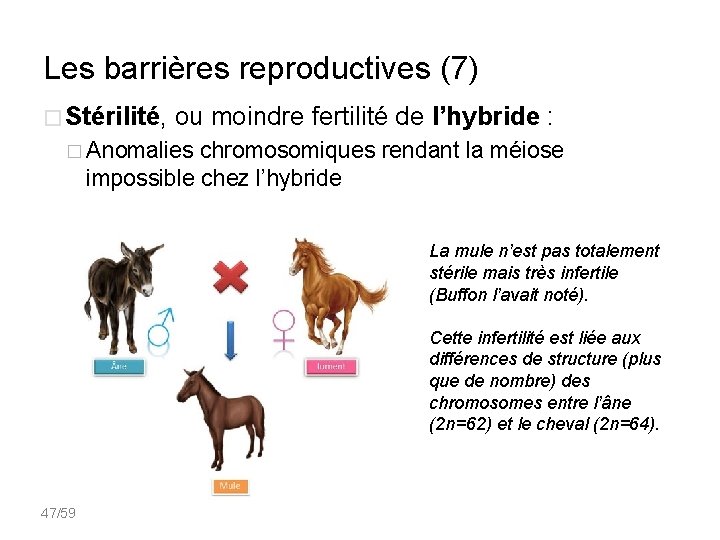
Les barrières reproductives (7) � Stérilité, ou moindre fertilité de l’hybride : � Anomalies chromosomiques rendant la méiose impossible chez l’hybride La mule n’est pas totalement stérile mais très infertile (Buffon l’avait noté). Cette infertilité est liée aux différences de structure (plus que de nombre) des chromosomes entre l’âne (2 n=62) et le cheval (2 n=64). 47/59
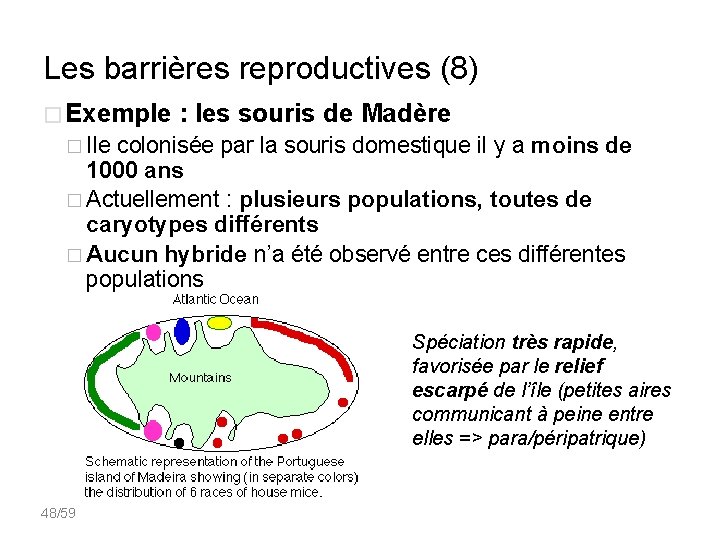
Les barrières reproductives (8) � Exemple : les souris de Madère � Ile colonisée par la souris domestique il y a moins de 1000 ans � Actuellement : plusieurs populations, toutes de caryotypes différents � Aucun hybride n’a été observé entre ces différentes populations Spéciation très rapide, favorisée par le relief escarpé de l’île (petites aires communicant à peine entre elles => para/péripatrique) 48/59
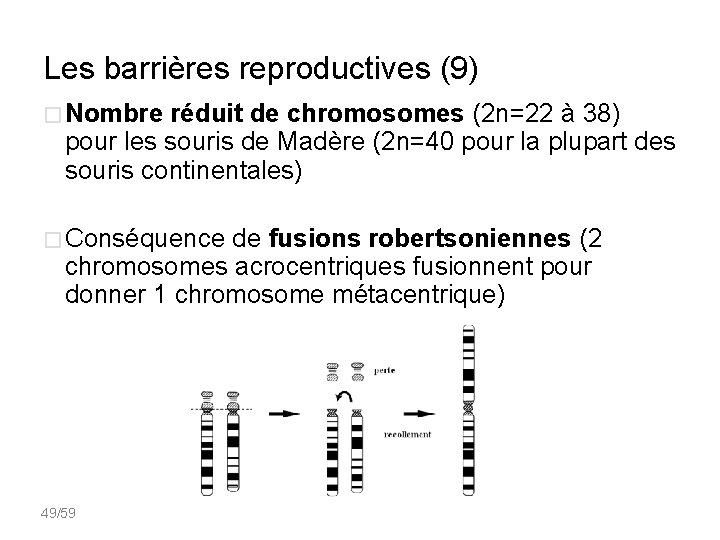
Les barrières reproductives (9) � Nombre réduit de chromosomes (2 n=22 à 38) pour les souris de Madère (2 n=40 pour la plupart des souris continentales) � Conséquence de fusions robertsoniennes (2 chromosomes acrocentriques fusionnent pour donner 1 chromosome métacentrique) 49/59
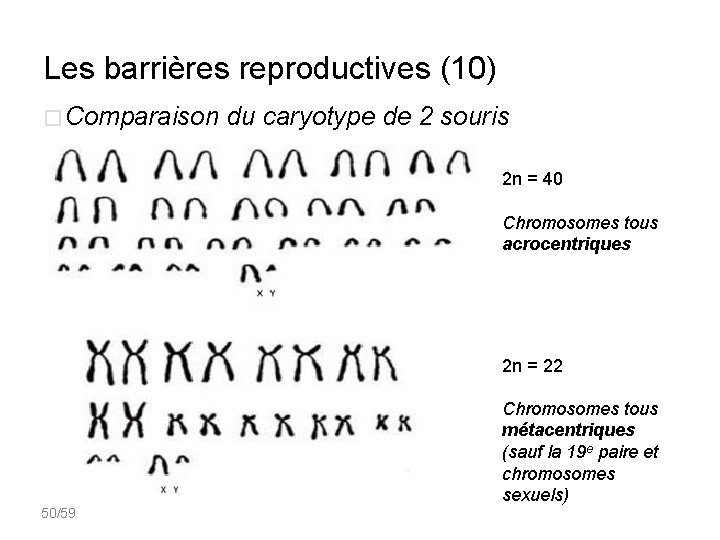
Les barrières reproductives (10) � Comparaison du caryotype de 2 souris 2 n = 40 Chromosomes tous acrocentriques 2 n = 22 Chromosomes tous métacentriques (sauf la 19 e paire et chromosomes sexuels) 50/59
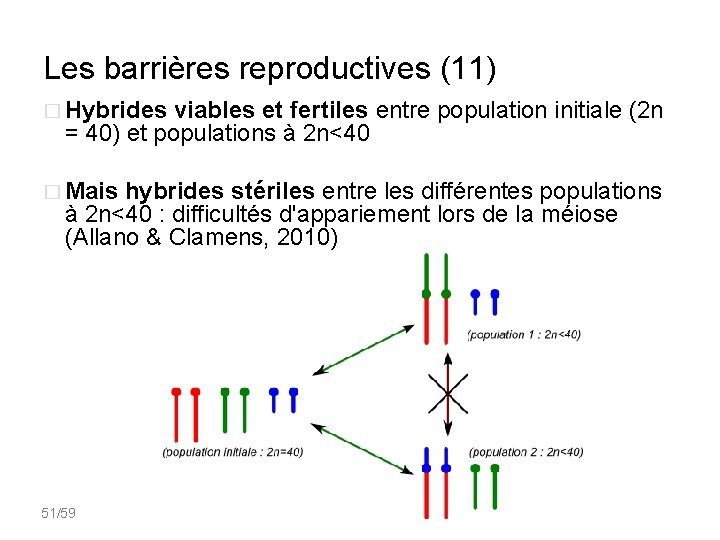
Les barrières reproductives (11) � Hybrides viables et fertiles entre population initiale (2 n = 40) et populations à 2 n<40 � Mais hybrides stériles entre les différentes populations à 2 n<40 : difficultés d'appariement lors de la méiose (Allano & Clamens, 2010) 51/59
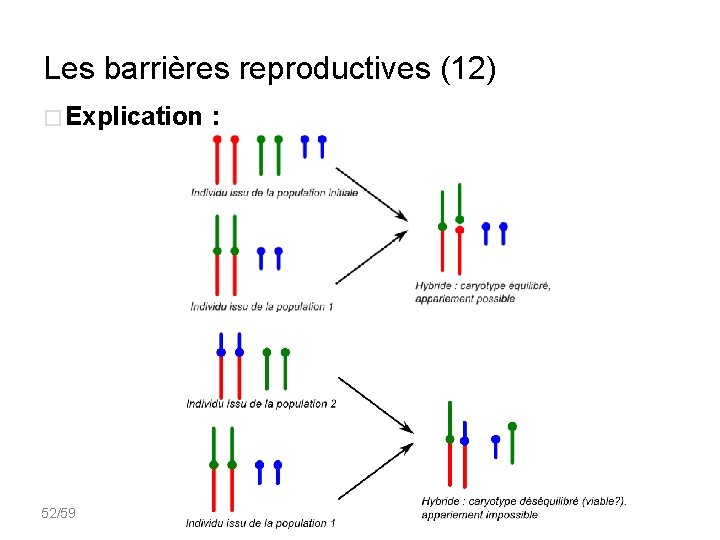
Les barrières reproductives (12) � Explication 52/59 :
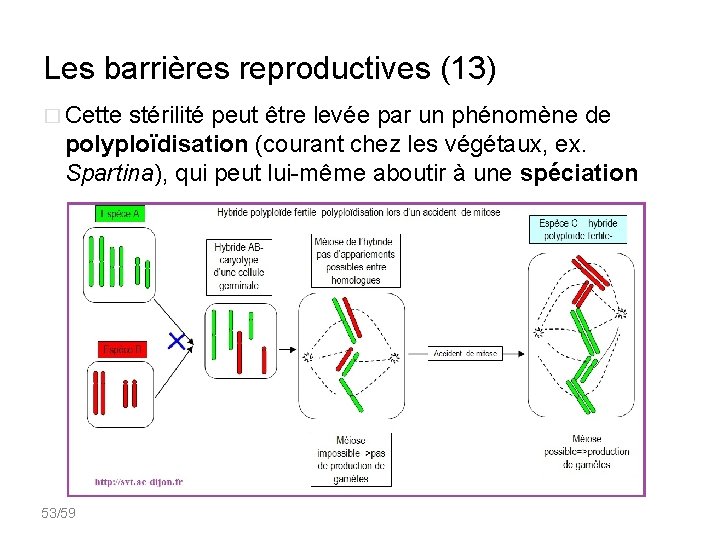
Les barrières reproductives (13) � Cette stérilité peut être levée par un phénomène de polyploïdisation (courant chez les végétaux, ex. Spartina), qui peut lui-même aboutir à une spéciation 53/59
Le rythme de la spéciation (1) � Sujet de débat, opposant : � gradualisme phylogénétique : mécanisme très progressif et lent � théorie des équilibres ponctués (SJ Gould) : mécanisme rapide (=>sans archives fossiles), ponctuant de longues périodes de stases 54/59
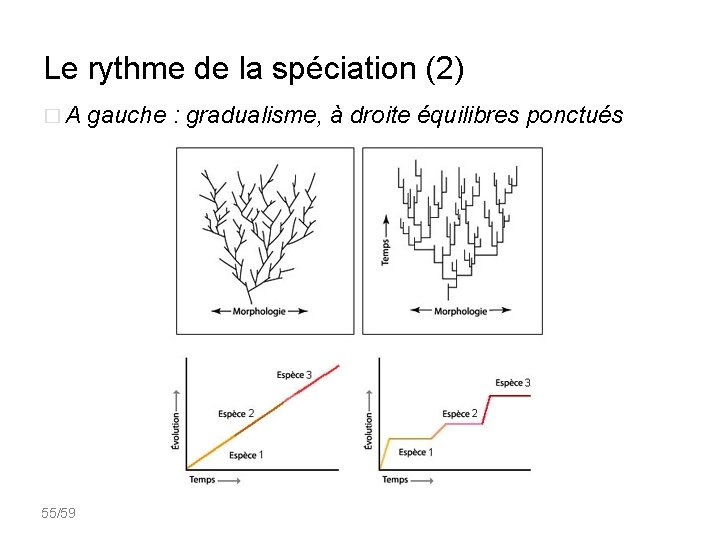
Le rythme de la spéciation (2) � A gauche : gradualisme, à droite équilibres ponctués 55/59
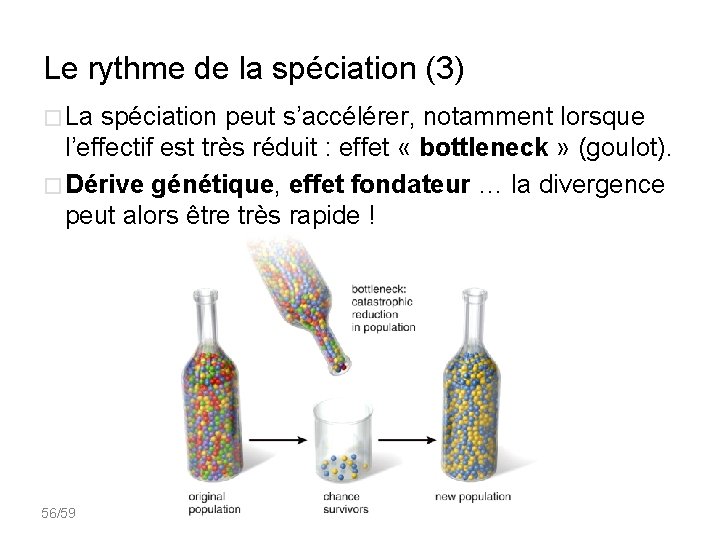
Le rythme de la spéciation (3) � La spéciation peut s’accélérer, notamment lorsque l’effectif est très réduit : effet « bottleneck » (goulot). � Dérive génétique, effet fondateur … la divergence peut alors être très rapide ! 56/59
Le rythme de la spéciation (4) � Un cas extrême : moustiques du métro de Londres � Morphologie très proche de Culex pipiens (espèce vivant en surface) � Se nourrit préférentiellement sur les mammifères (vs oiseaux pour pipiens) � Copulation en milieux confinés (vs ouverts) � Pas de diapause (vs diapause en hiver) � Ne se croisent plus entre eux, différences génétiques significatives (par rapport à pipiens, mais aussi d’une ligne de métro à l’autre !) � … en moins de 100 ans … 57/59
En conclusion � Notion d’espèce délicate à définir � Plusieurs critères possibles, l’interfécondité étant le plus important � Taxon aux contours parfois flous � Outil (nominalisme) et non principe immanent (idéalisme, essentialisme) � Point de départ spéciation = isolement � Barrières reproductrices = conséquence de la divergence et non leur cause � Vitesse très variable, et débattue 58/59
Bibliographie Les ouvrages suivant (liste non exhaustive) ont été largement utilisés pour élaborer ce cours. Buffon. Histoire naturelle. Folio classique Darwin Charles. L’origine des espèces. Flammarion Kupiec Jean-Jacques, Sonigo Pierre. Ni Dieu ni gène. Points Sciences, 2000 Lecointre Guillaume. Classification phylogénétique du vivant. Belin, 2009 Giordan André et al. Histoire de la biologie. Lavoisier, 1987 De La Cotardière Philippe et al. Histoire des sciences. Tallandier, 2004 59/59
- Slides: 59