
Fyziologie rostlin Asimilaty transport Asimilty a jejich transport
- Slides: 40
Fyziologie rostlin - Asimilaty, transport Asimiláty a jejich transport v rostlině Jiří Šantrůček Katedra fyziologie rostlin Přírodovědecká fakulta JU, České Budějovice lab. B 353; e-mail: jsan@umbr. cas. cz
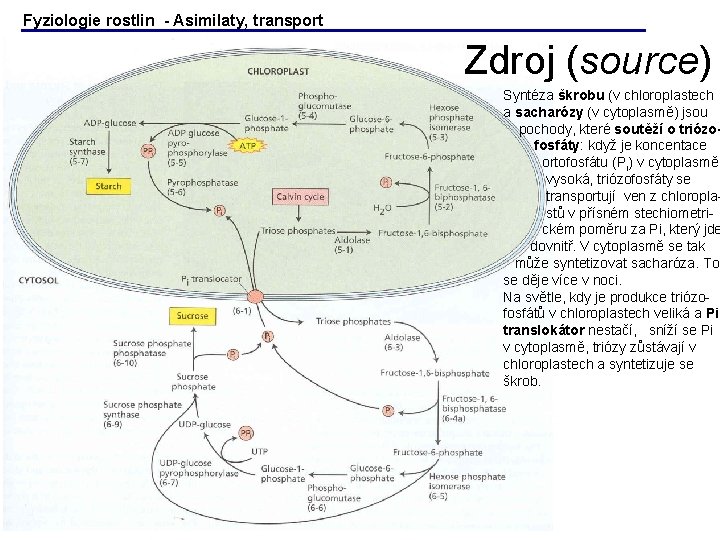
Fyziologie rostlin - Asimilaty, transport Zdroj (source) Syntéza škrobu (v chloroplastech a sacharózy (v cytoplasmě) jsou pochody, které soutěží o triózofosfáty: když je koncentace ortofosfátu (Pi) v cytoplasmě vysoká, triózofosfáty se transportují ven z chloroplastů v přísném stechiometrickém poměru za Pi, který jde dovnitř. V cytoplasmě se tak může syntetizovat sacharóza. To se děje více v noci. Na světle, kdy je produkce triózofosfátů v chloroplastech veliká a Pi translokátor nestačí, sníží se Pi v cytoplasmě, triózy zůstávají v chloroplastech a syntetizuje se škrob.
Fyziologie rostlin - Asimilaty, transport
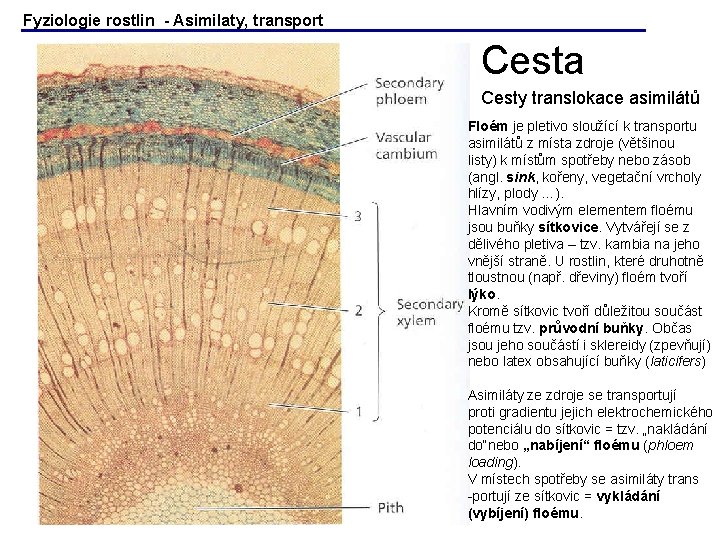
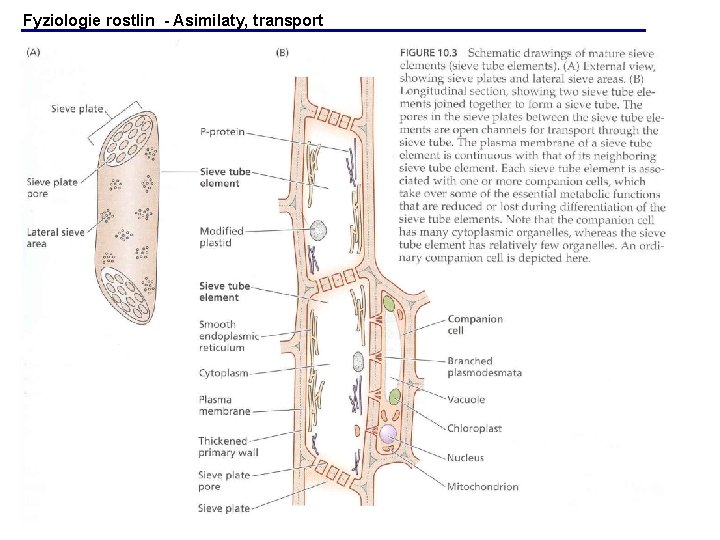
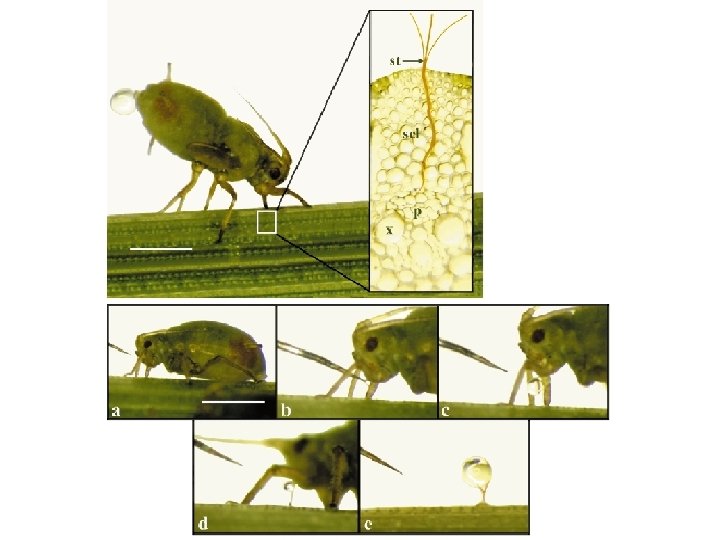
Fyziologie rostlin - Asimilaty, transport Cesta Cesty translokace asimilátů Floém je pletivo sloužící k transportu asimilátů z místa zdroje (většinou listy) k místům spotřeby nebo zásob (angl. sink, kořeny, vegetační vrcholy hlízy, plody …). Hlavním vodivým elementem floému jsou buňky sítkovice. Vytvářejí se z dělivého pletiva – tzv. kambia na jeho vnější straně. U rostlin, které druhotně tloustnou (např. dřeviny) floém tvoří lýko. Kromě sítkovic tvoří důležitou součást floému tzv. průvodní buňky. Občas jsou jeho součástí i sklereidy (zpevňují) nebo latex obsahující buňky (laticifers) Asimiláty ze zdroje se transportují proti gradientu jejich elektrochemického potenciálu do sítkovic = tzv. „nakládání do“nebo „nabíjení“ floému (phloem loading). V místech spotřeby se asimiláty trans -portují ze sítkovic = vykládání (vybíjení) floému.
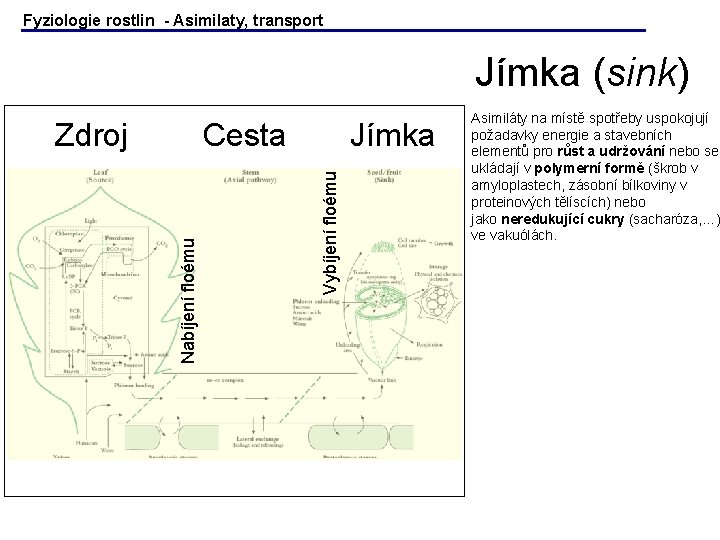
Fyziologie rostlin - Asimilaty, transport Jímka (sink) Jímka Vybíjení floému Cesta Nabíjení floému Zdroj Asimiláty na místě spotřeby uspokojují požadavky energie a stavebních elementů pro růst a udržování nebo se ukládají v polymerní formě (škrob v amyloplastech, zásobní bílkoviny v proteinových tělíscích) nebo jako neredukující cukry (sacharóza, …) ve vakuólách.
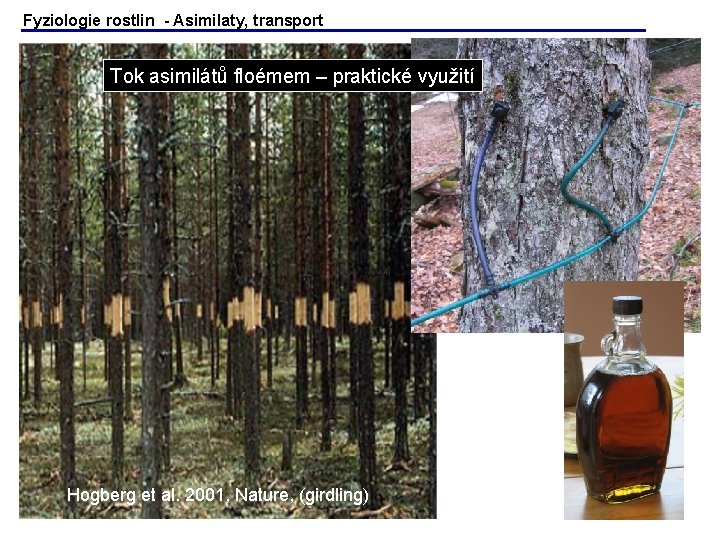
Fyziologie rostlin - Asimilaty, transport Tok asimilátů floémem – praktické využití Hogberg et al. 2001, Nature, (girdling)
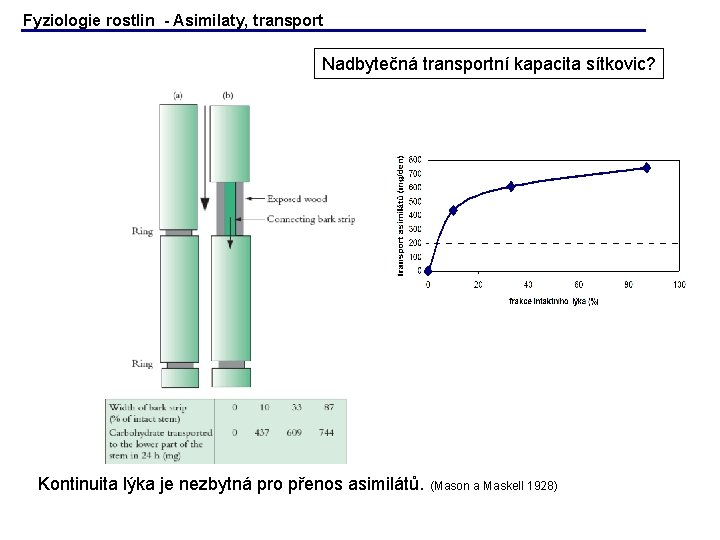
Fyziologie rostlin - Asimilaty, transport Nadbytečná transportní kapacita sítkovic? Kontinuita lýka je nezbytná pro přenos asimilátů. (Mason a Maskell 1928)
Anatomie transportní dráhy Křižovatky cest a asimilátů
Fyziologie rostlin - Asimilaty, transport
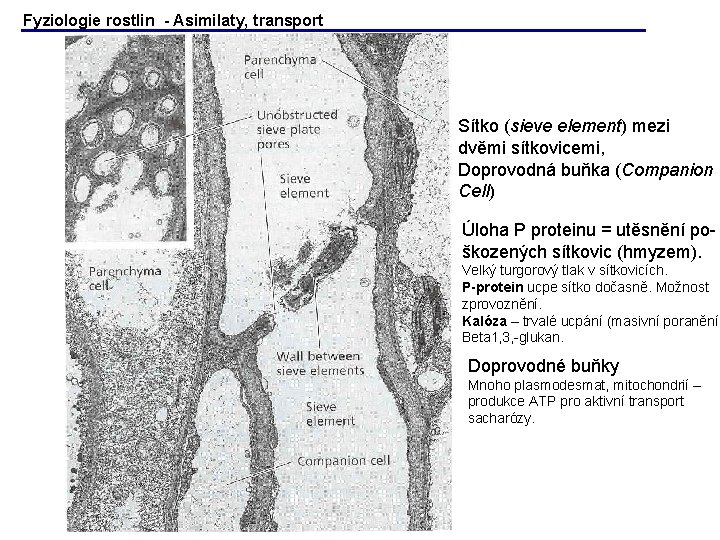
Fyziologie rostlin - Asimilaty, transport Sítko (sieve element) mezi dvěmi sítkovicemi, Doprovodná buňka (Companion Cell) Úloha P proteinu = utěsnění poškozených sítkovic (hmyzem). Velký turgorový tlak v sítkovicích. P-protein ucpe sítko dočasně. Možnost zprovoznění. Kalóza – trvalé ucpání (masivní poranění) Beta 1, 3, -glukan. Doprovodné buňky Mnoho plasmodesmat, mitochondrií – produkce ATP pro aktivní transport sacharózy.
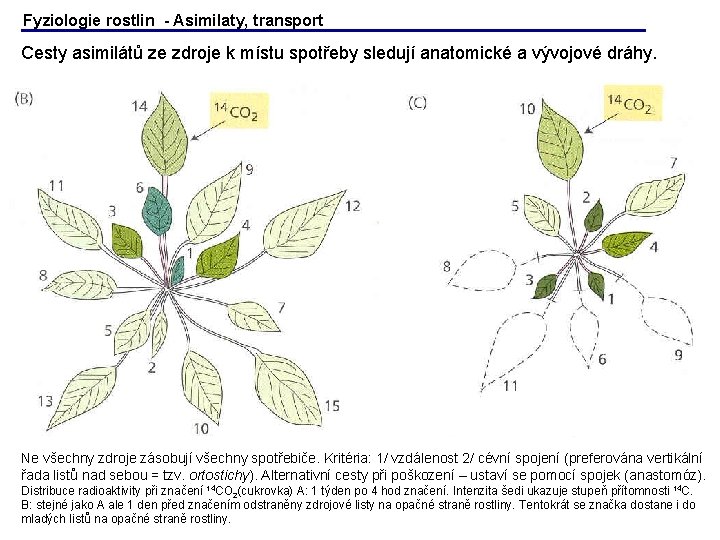
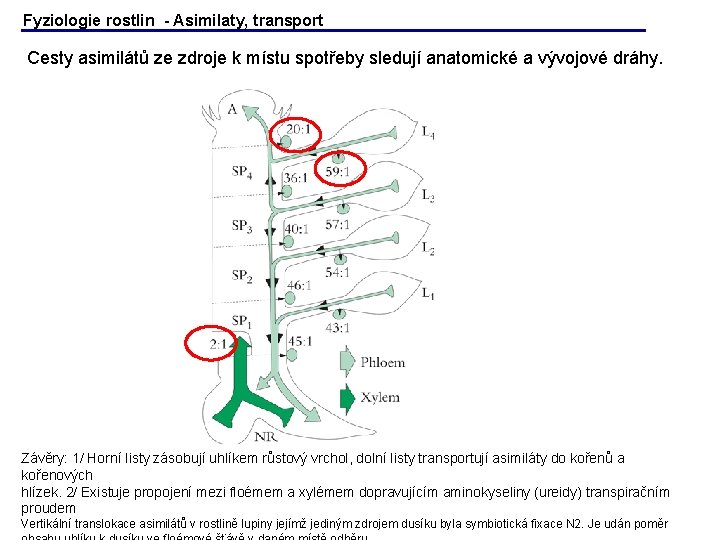
Fyziologie rostlin - Asimilaty, transport Cesty asimilátů ze zdroje k místu spotřeby sledují anatomické a vývojové dráhy. Ne všechny zdroje zásobují všechny spotřebiče. Kritéria: 1/ vzdálenost 2/ cévní spojení (preferována vertikální řada listů nad sebou = tzv. ortostichy). Alternativní cesty při poškození – ustaví se pomocí spojek (anastomóz). Distribuce radioaktivity při značení 14 CO 2(cukrovka) A: 1 týden po 4 hod značení. Intenzita šedi ukazuje stupeň přítomnosti 14 C. B: stejné jako A ale 1 den před značením odstraněny zdrojové listy na opačné straně rostliny. Tentokrát se značka dostane i do mladých listů na opačné straně rostliny.
Fyziologie rostlin - Asimilaty, transport Cesty asimilátů ze zdroje k místu spotřeby sledují anatomické a vývojové dráhy. Závěry: 1/ Horní listy zásobují uhlíkem růstový vrchol, dolní listy transportují asimiláty do kořenů a kořenových hlízek. 2/ Existuje propojení mezi floémem a xylémem dopravujícím aminokyseliny (ureidy) transpiračním proudem Vertikální translokace asimilátů v rostlině lupiny jejímž jediným zdrojem dusíku byla symbiotická fixace N 2. Je udán poměr
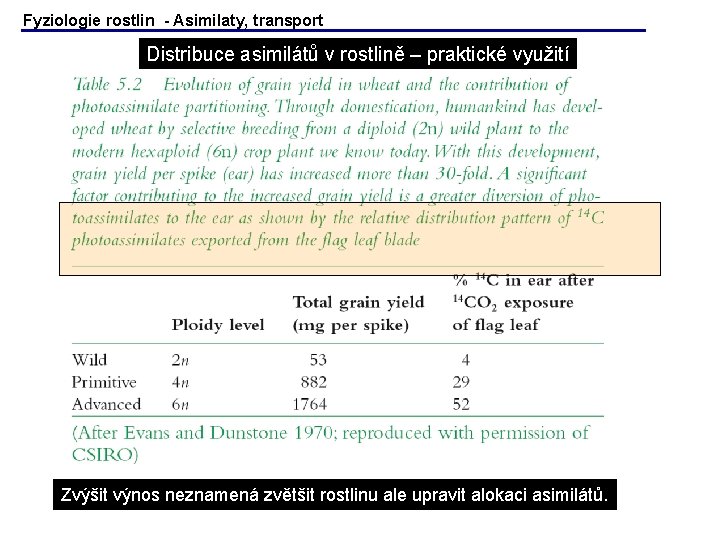
Fyziologie rostlin - Asimilaty, transport Distribuce asimilátů v rostlině – praktické využití Zvýšit výnos neznamená zvětšit rostlinu ale upravit alokaci asimilátů.
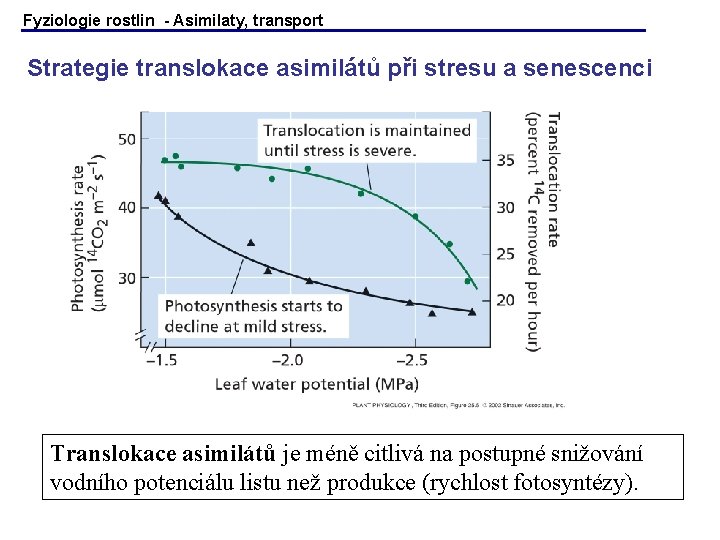
Fyziologie rostlin - Asimilaty, transport Strategie translokace asimilátů při stresu a senescenci Translokace asimilátů je méně citlivá na postupné snižování vodního potenciálu listu než produkce (rychlost fotosyntézy).
Co se floémem transportuje ? Čím je transport poháněn ?
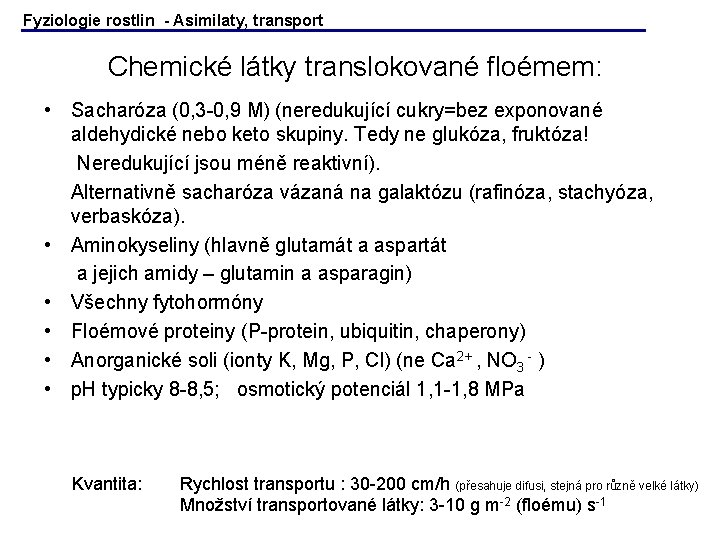
Fyziologie rostlin - Asimilaty, transport Chemické látky translokované floémem: • Sacharóza (0, 3 -0, 9 M) (neredukující cukry=bez exponované aldehydické nebo keto skupiny. Tedy ne glukóza, fruktóza! Neredukující jsou méně reaktivní). Alternativně sacharóza vázaná na galaktózu (rafinóza, stachyóza, verbaskóza). • Aminokyseliny (hlavně glutamát a aspartát a jejich amidy – glutamin a asparagin) • Všechny fytohormóny • Floémové proteiny (P-protein, ubiquitin, chaperony) • Anorganické soli (ionty K, Mg, P, Cl) (ne Ca 2+ , NO 3 - ) • p. H typicky 8 -8, 5; osmotický potenciál 1, 1 -1, 8 MPa Kvantita: Rychlost transportu : 30 -200 cm/h (přesahuje difusi, stejná pro různě velké látky) Množství transportované látky: 3 -10 g m-2 (floému) s-1
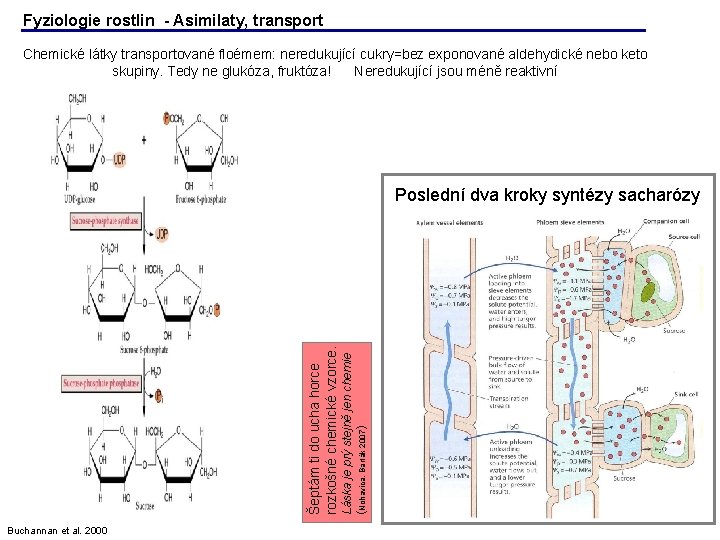
Fyziologie rostlin - Asimilaty, transport Chemické látky transportované floémem: neredukující cukry=bez exponované aldehydické nebo keto skupiny. Tedy ne glukóza, fruktóza! Neredukující jsou méně reaktivní Buchannan et al. 2000 Láska je prý stejně jen chemie (Nohavica, Barták 2007 ) Šeptám ti do ucha horce rozkošné chemické vzorce. Poslední dva kroky syntézy sacharózy
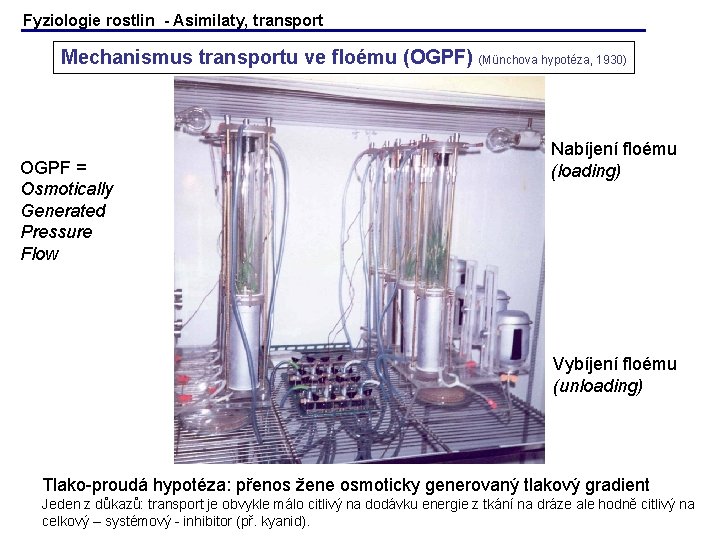
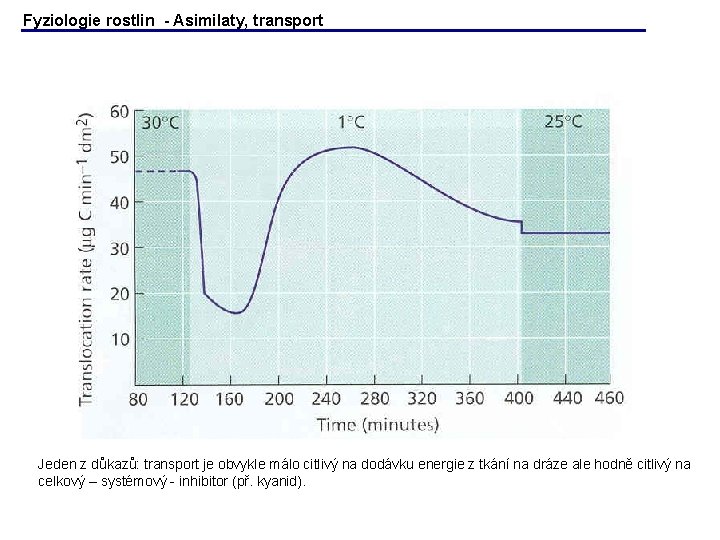
Fyziologie rostlin - Asimilaty, transport Mechanismus transportu ve floému (OGPF) (Münchova hypotéza, 1930) OGPF = Osmotically Generated Pressure Flow Nabíjení floému (loading) Vybíjení floému (unloading) Tlako-proudá hypotéza: přenos žene osmoticky generovaný tlakový gradient Jeden z důkazů: transport je obvykle málo citlivý na dodávku energie z tkání na dráze ale hodně citlivý na celkový – systémový - inhibitor (př. kyanid).
Fyziologie rostlin - Asimilaty, transport Jeden z důkazů: transport je obvykle málo citlivý na dodávku energie z tkání na dráze ale hodně citlivý na celkový – systémový - inhibitor (př. kyanid).
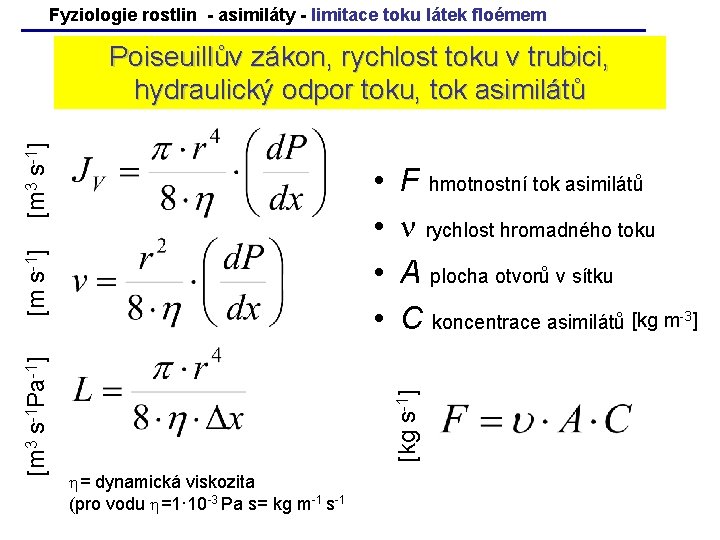
Fyziologie rostlin - asimiláty - limitace toku látek floémem [m 3 s-1] Poiseuillův zákon, rychlost toku v trubici, hydraulický odpor toku, tok asimilátů F hmotnostní tok asimilátů rychlost hromadného toku A plocha otvorů v sítku C koncentrace asimilátů [kg m-3] [kg s-1] [m 3 s-1 Pa-1] [m s-1] • • = dynamická viskozita (pro vodu =1· 10 -3 Pa s= kg m-1 s-1
Fyziologie rostlin - Asimilaty, transport Přenos asimilátů do floému – nabíjení floému (phloem loading)
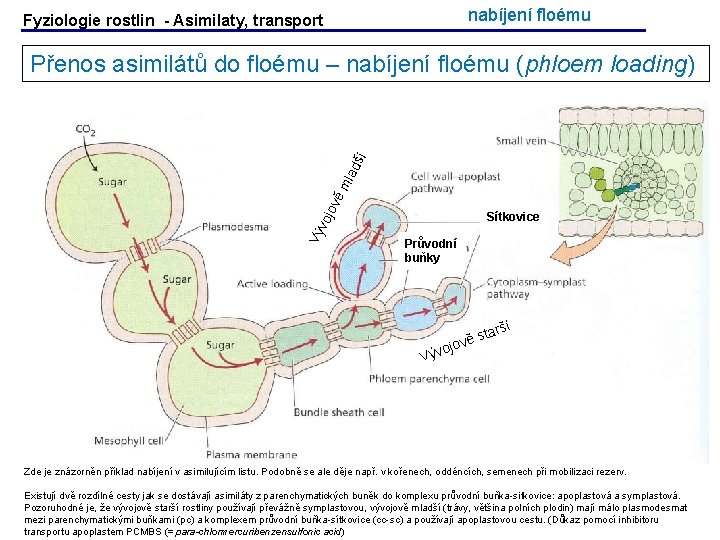
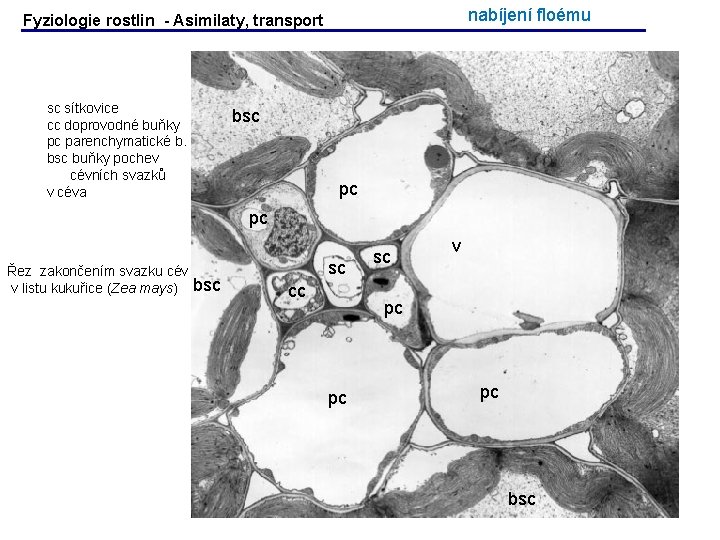
nabíjení floému Fyziologie rostlin - Asimilaty, transport Vý vo jov ěm lad ší Přenos asimilátů do floému – nabíjení floému (phloem loading) Sítkovice Průvodní buňky ší tar vě s ojo Výv Zde je znázorněn příklad nabíjení v asimilujícím listu. Podobně se ale děje např. v kořenech, oddéncích, semenech při mobilizaci rezerv. Existují dvě rozdílné cesty jak se dostávají asimiláty z parenchymatických buněk do komplexu průvodní buňka-sitkovice: apoplastová a symplastová. Pozoruhodné je, že vývojově starší rostliny používají převážně symplastovou, vývojově mladší (trávy, většina polních plodin) mají málo plasmodesmat mezi parenchymatickými buňkami (pc) a komplexem průvodní buňka-sítkovice (cc-sc) a používají apoplastovou cestu. (Důkaz pomocí inhibitoru transportu apoplastem PCMBS (= para-chlormercuribenzensulfonic acid)
nabíjení floému Fyziologie rostlin - Asimilaty, transport sc sítkovice cc doprovodné buňky pc parenchymatické b. bsc buňky pochev cévních svazků v céva bsc pc pc Řez zakončením svazku cév v listu kukuřice (Zea mays) bsc sc cc sc v pc pc pc bsc
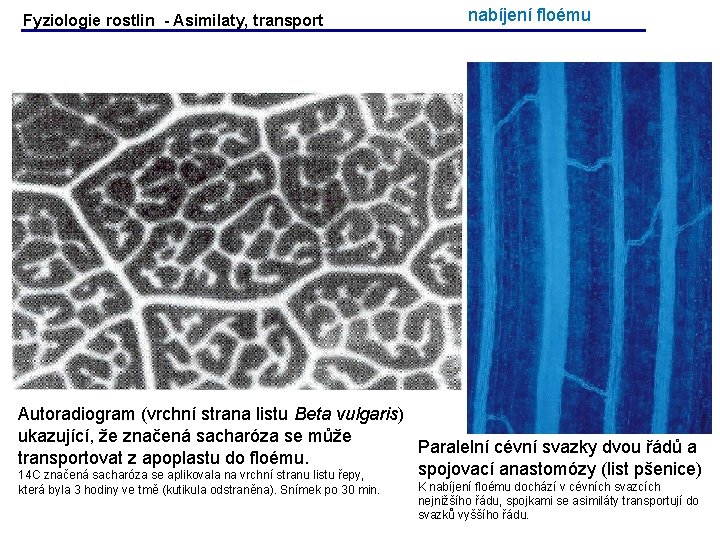
Fyziologie rostlin - Asimilaty, transport nabíjení floému Autoradiogram (vrchní strana listu Beta vulgaris) ukazující, že značená sacharóza se může Paralelní cévní svazky dvou řádů a transportovat z apoplastu do floému. spojovací anastomózy (list pšenice) 14 C značená sacharóza se aplikovala na vrchní stranu listu řepy, která byla 3 hodiny ve tmě (kutikula odstraněna). Snímek po 30 min. K nabíjení floému dochází v cévních svazcích nejnižšího řádu, spojkami se asimiláty transportují do svazků vyššího řádu.
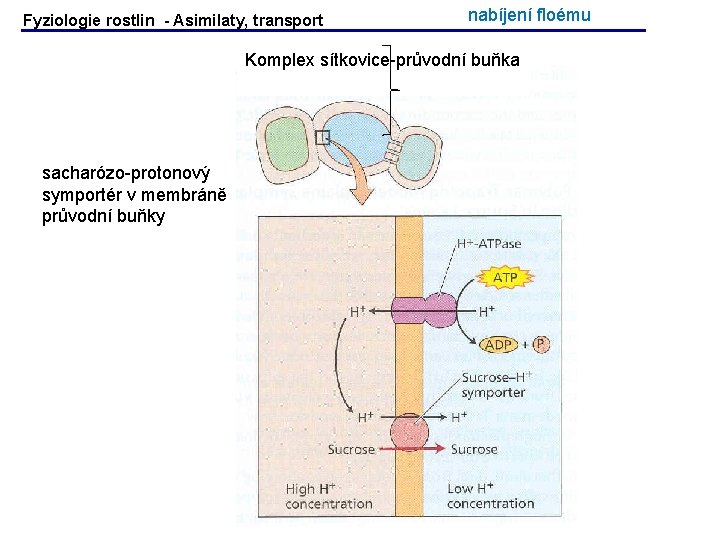
Fyziologie rostlin - Asimilaty, transport nabíjení floému Komplex sítkovice-průvodní buňka sacharózo-protonový symportér v membráně průvodní buňky
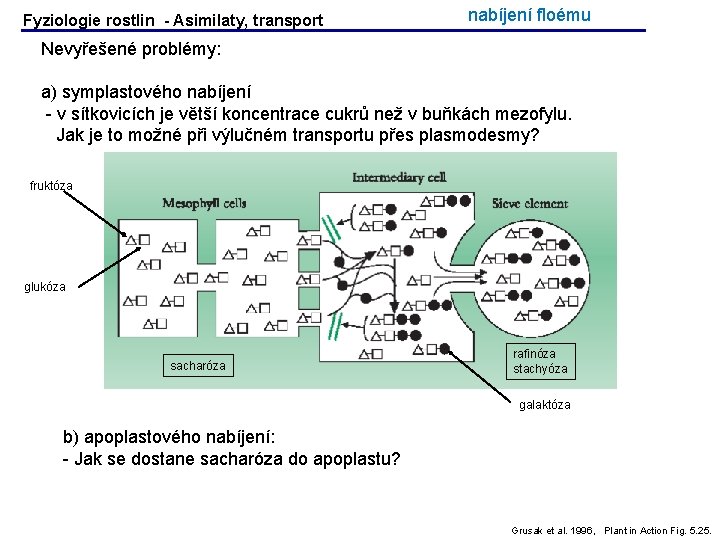
Fyziologie rostlin - Asimilaty, transport nabíjení floému Nevyřešené problémy: a) symplastového nabíjení - v sítkovicích je větší koncentrace cukrů než v buňkách mezofylu. Jak je to možné při výlučném transportu přes plasmodesmy? fruktóza glukóza sacharóza rafinóza stachyóza galaktóza b) apoplastového nabíjení: - Jak se dostane sacharóza do apoplastu? Grusak et al. 1996, Plant in Action Fig. 5. 25.
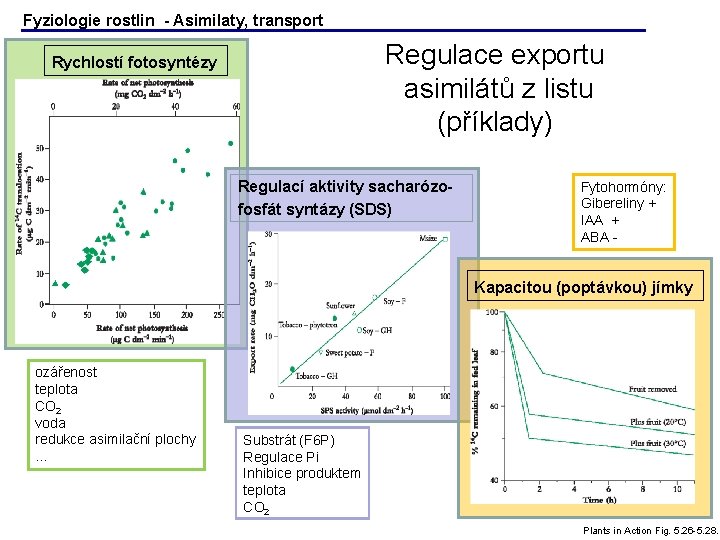
Fyziologie rostlin - Asimilaty, transport Regulace exportu asimilátů z listu (příklady) Rychlostí fotosyntézy Regulací aktivity sacharózofosfát syntázy (SDS) Fytohormóny: Gibereliny + IAA + ABA - Kapacitou (poptávkou) jímky ozářenost teplota CO 2 voda redukce asimilační plochy … Substrát (F 6 P) Regulace Pi Inhibice produktem teplota CO 2 Plants in Action Fig. 5. 26 -5. 28.
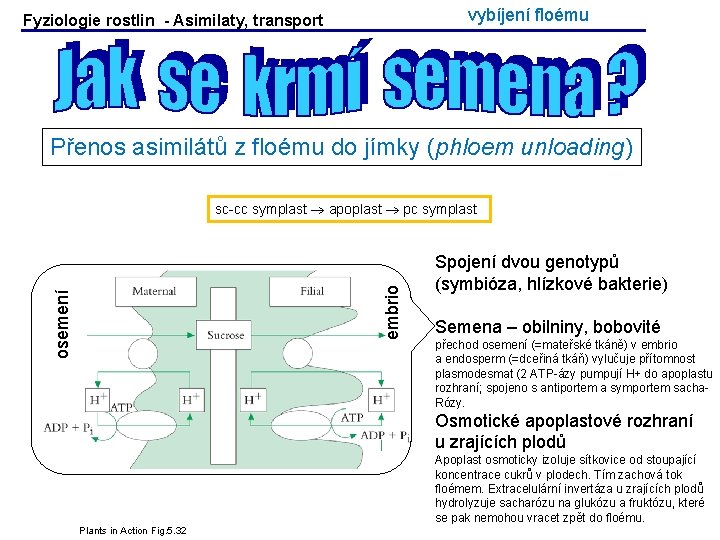
vybíjení floému Fyziologie rostlin - Asimilaty, transport Přenos asimilátů z floému do jímky (phloem unloading) osemení embrio sc-cc symplast apoplast pc symplast Spojení dvou genotypů (symbióza, hlízkové bakterie) Semena – obilniny, bobovité přechod osemení (=mateřské tkáně) v embrio a endosperm (=dceřiná tkáň) vylučuje přítomnost plasmodesmat (2 ATP-ázy pumpují H+ do apoplastu rozhraní; spojeno s antiportem a symportem sacha. Rózy. Osmotické apoplastové rozhraní u zrajících plodů Apoplast osmoticky izoluje sítkovice od stoupající koncentrace cukrů v plodech. Tím zachová tok floémem. Extracelulární invertáza u zrajících plodů hydrolyzuje sacharózu na glukózu a fruktózu, které se pak nemohou vracet zpět do floému. Plants in Action Fig. 5. 32
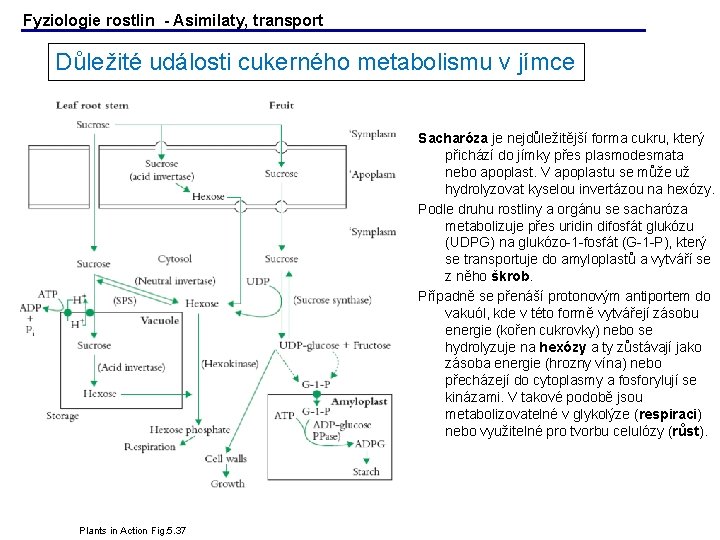
Fyziologie rostlin - Asimilaty, transport Důležité události cukerného metabolismu v jímce Sacharóza je nejdůležitější forma cukru, který přichází do jímky přes plasmodesmata nebo apoplast. V apoplastu se může už hydrolyzovat kyselou invertázou na hexózy. Podle druhu rostliny a orgánu se sacharóza metabolizuje přes uridin difosfát glukózu (UDPG) na glukózo-1 -fosfát (G-1 -P), který se transportuje do amyloplastů a vytváří se z něho škrob. Případně se přenáší protonovým antiportem do vakuól, kde v této formě vytvářejí zásobu energie (kořen cukrovky) nebo se hydrolyzuje na hexózy a ty zůstávají jako zásoba energie (hrozny vína) nebo přecházejí do cytoplasmy a fosforylují se kinázami. V takové podobě jsou metabolizovatelné v glykolýze (respiraci) nebo využitelné pro tvorbu celulózy (růst). Plants in Action Fig. 5. 37
Fyziologie rostlin - Stres Zachrání nás rostliny před skleníkovým efektem?
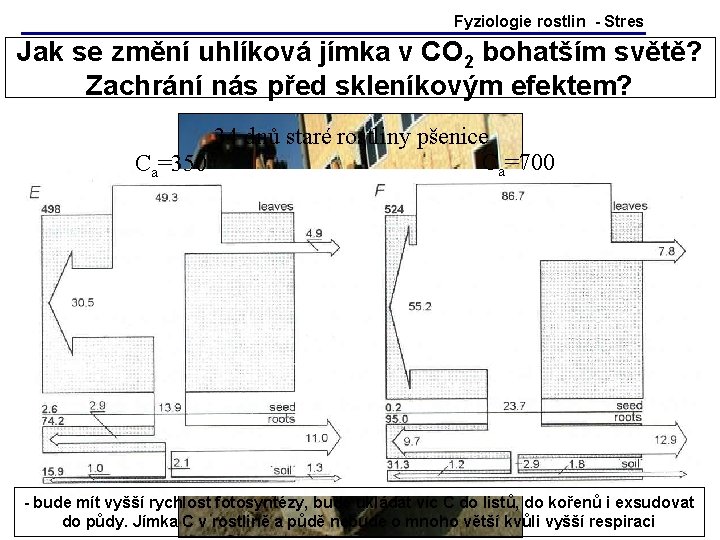
Fyziologie rostlin - Stres Jak se změní uhlíková jímka v CO 2 bohatším světě? Zachrání nás před skleníkovým efektem? 34 dnů staré rostliny pšenice Ca=700 Ca=350 - bude mít vyšší rychlost fotosyntézy, bude ukládat víc C do listů, do kořenů i exsudovat do půdy. Jímka C v rostlině a půdě nebude o mnoho větší kvůli vyšší respiraci
. . . natural forest CO 2 enrichment Ch Körner
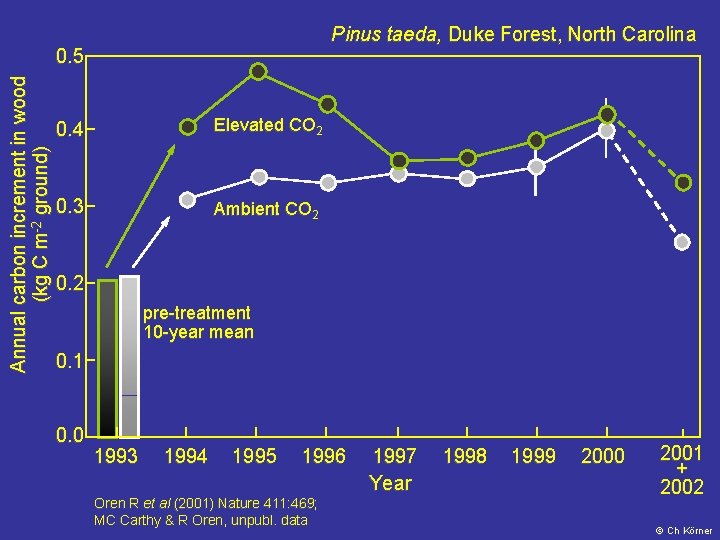
Pinus taeda, Duke Forest, North Carolina Annual carbon increment in wood (kg C m-2 ground) 0. 5 0. 4 Elevated CO 2 0. 3 Ambient CO 2 0. 2 pre-treatment 10 -year mean 0. 1 0. 0 1993 1994 1995 1996 Oren R et al (2001) Nature 411: 469; MC Carthy & R Oren, unpubl. data 1997 Year 1998 1999 2000 2001 + 2002 Ch Körner
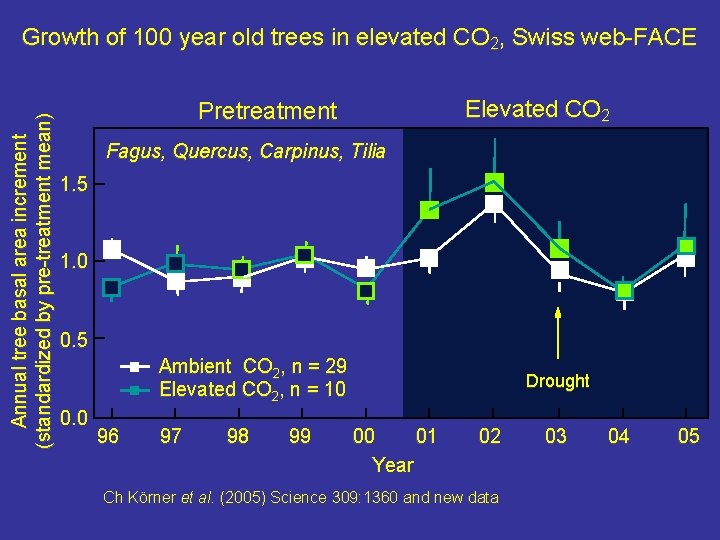
Annual tree basal area increment (standardized by pre-treatment mean) Growth of 100 year old trees in elevated CO 2, Swiss web-FACE Elevated CO 2 Pretreatment Fagus, Quercus, Carpinus, Tilia 1. 5 1. 0 0. 5 Ambient CO 2, n = 29 Elevated CO 2, n = 10 0. 0 96 97 98 99 Drought 00 01 Year 02 Ch Körner et al. (2005) Science 309: 1360 and new data 03 04 05
• Uzavřené porosty lesa exponované zvýšenému CO 2 nevykazují žádnou změnu indexu listové plochy (LAI) nebo jeho snížení (ale uzavření porostu může probíhat rychleji ve velmi mladých výsadbách). • Vyšší fotosyntetická asimilace CO 2 ale malé nebo žádné zvýšení biomasy (ve stacionárním stavu). Kam ten uhlík jde ? (1) C-obohacené tkáně (2) Recyklace do atmosféry (3) Půdní humus Ch Körner
If there is an increase of the humus pool, it is too small to be detected. Most likely, much of the extra carbon taken up is recycled to the atmosphere. There is a possibility that ecosystem C-emission becomes enhanced through more dynamic forests: Ch Körner (2004) Through enhanced tree dynamics carbon dioxide enrichment may cause tropical forests to lose carbon. Philos Trans R Soc Lond Ser B-Biol Sci 359: 493 Ch Körner
I tehdy když zvýšené CO 2 stimuluje růst, neznamená to že se trvale ukládá uhlík (větší sink, jímka pro uhlík) (C-pool).
• Triózy se zpracovávají v chloroplastech na škrob nebo v cytoplasmě na sacharózu (neredukující disacharid), který je nejčastější transportní formou cukrů • Zdroj (source) v chloroplastech a jímku (sink) v kořenech, růstových zónách, plodech, semenech … spojuje floém tvořený komplexem sítkovice - průvodní buňka a parenchymem. Floém má napojení na xylém a sleduje vývojové dráhy. • Hybnou silou toku asimilátů ve floému je osmoticky generovaný tlakový rozdíl mezi zdrojem a jímkou. • Sacharóza se „nakládá“ do floému a „vykládá“ z něj apoplastovou, symplastovou i kombinovanou cestou, specifickou druhově (vývojově) orgánově (semena-oddělené genotypy) i časově (zrání plodů). Oba procesy vyžadují aktivní membránový protein (protonový symport) a energii (ATP). • Praktické aplikace: výživa (cukr, škrob); genetické modifikace velikosti jímky (výnos); globální bilance uhlíku a klima.