
FLAGELLENSTRUKTUR SENSITIVITY ROBUSTNESS IN E COLI von Andrea
FLAGELLENSTRUKTUR & SENSITIVITY / ROBUSTNESS IN E COLI von Andrea Ebert
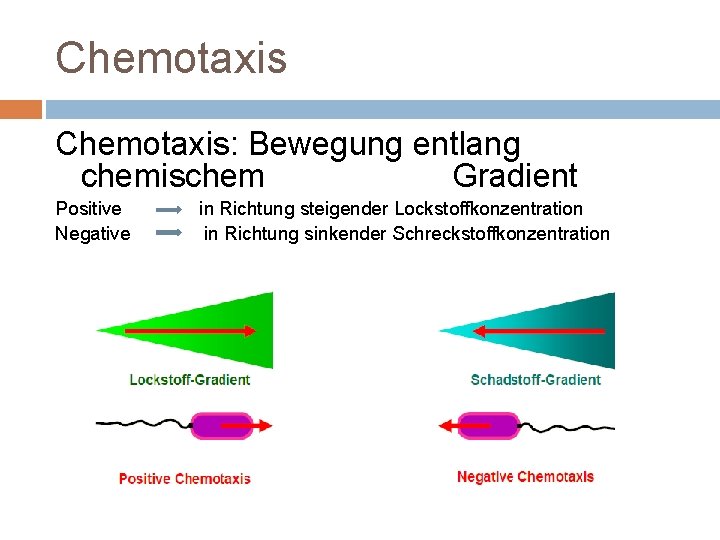
Chemotaxis: Bewegung entlang chemischem Gradient Positive Negative in Richtung steigender Lockstoffkonzentration in Richtung sinkender Schreckstoffkonzentration
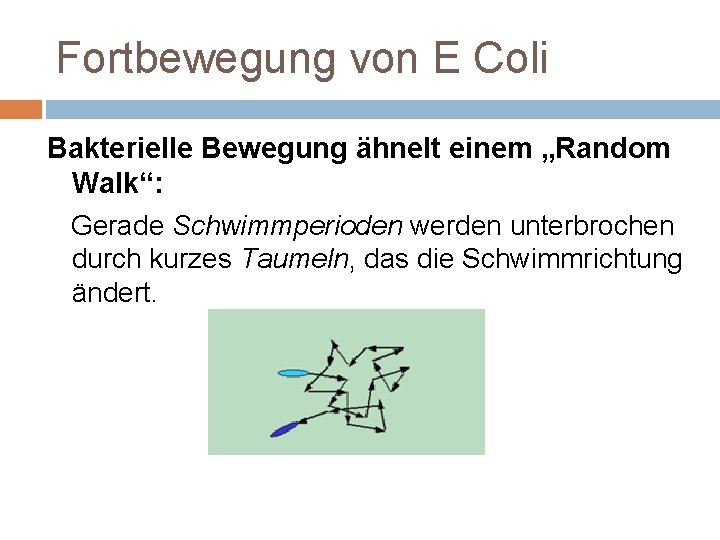
Fortbewegung von E Coli Bakterielle Bewegung ähnelt einem „Random Walk“: Gerade Schwimmperioden werden unterbrochen durch kurzes Taumeln, das die Schwimmrichtung ändert.
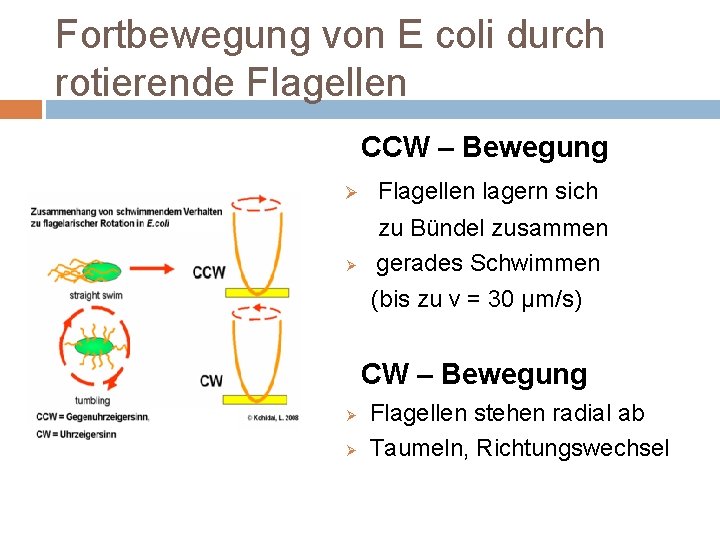
Fortbewegung von E coli durch rotierende Flagellen CCW – Bewegung Ø Flagellen lagern sich Ø zu Bündel zusammen gerades Schwimmen (bis zu v = 30 µm/s) CW – Bewegung Ø Ø Flagellen stehen radial ab Taumeln, Richtungswechsel
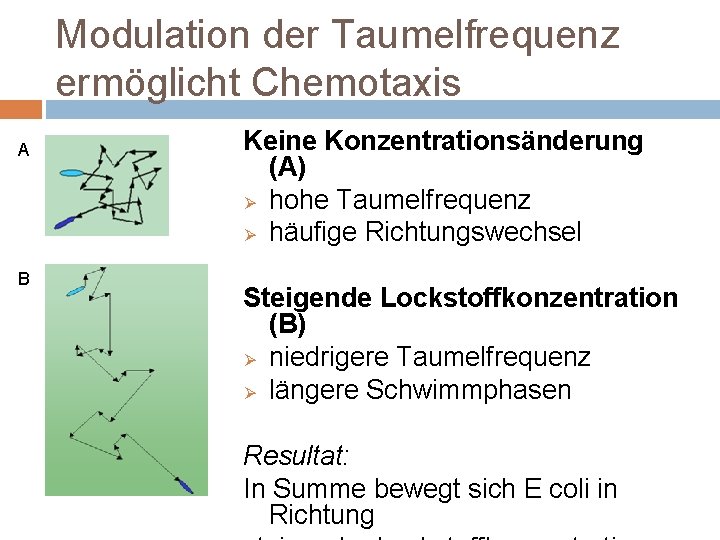
Modulation der Taumelfrequenz ermöglicht Chemotaxis A B Keine Konzentrationsänderung (A) Ø hohe Taumelfrequenz Ø häufige Richtungswechsel Steigende Lockstoffkonzentration (B) Ø niedrigere Taumelfrequenz Ø längere Schwimmphasen Resultat: In Summe bewegt sich E coli in Richtung
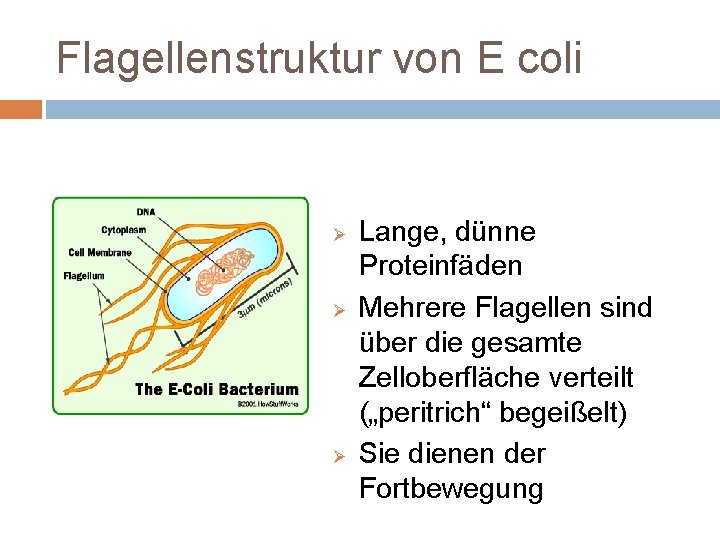
Flagellenstruktur von E coli Ø Ø Ø Lange, dünne Proteinfäden Mehrere Flagellen sind über die gesamte Zelloberfläche verteilt („peritrich“ begeißelt) Sie dienen der Fortbewegung
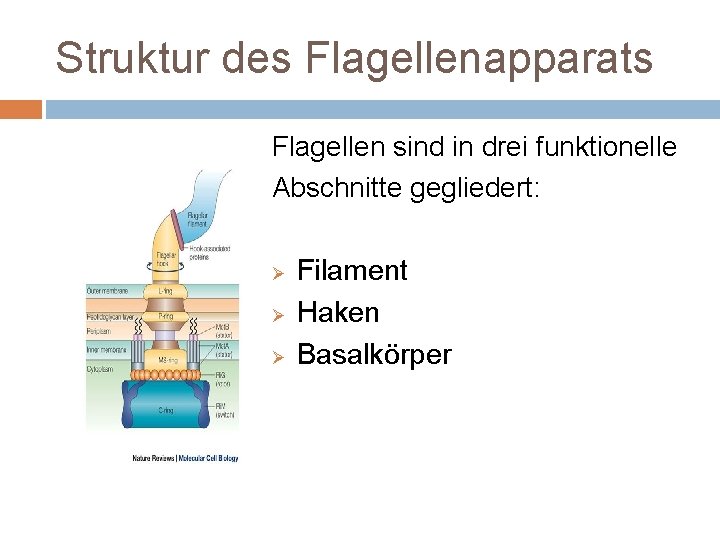
Struktur des Flagellenapparats Flagellen sind in drei funktionelle Abschnitte gegliedert: Ø Ø Ø Filament Haken Basalkörper
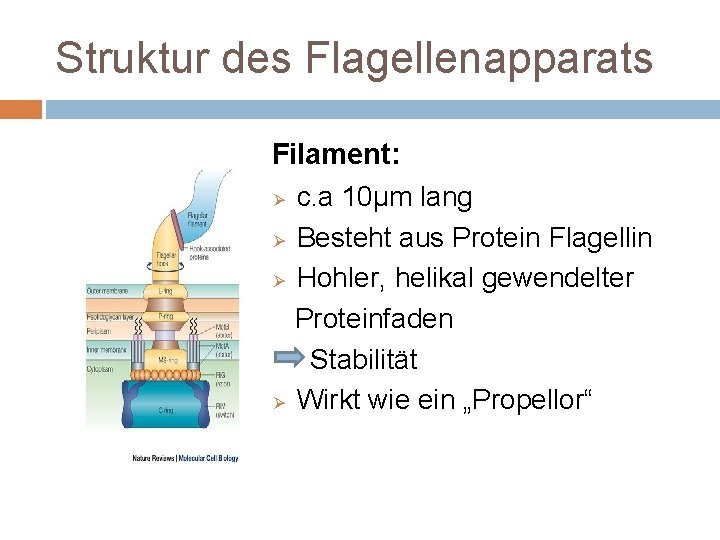
Struktur des Flagellenapparats Filament: Ø c. a 10µm lang Ø Besteht aus Protein Flagellin Ø Hohler, helikal gewendelter Proteinfaden Stabilität Ø Wirkt wie ein „Propellor“
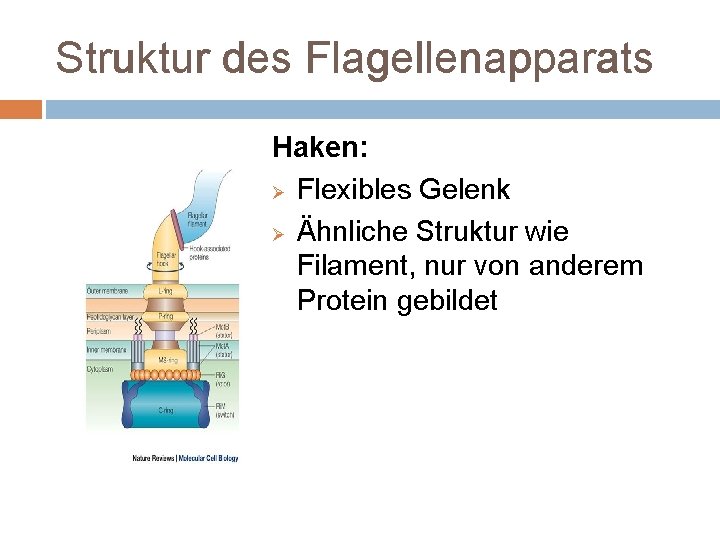
Struktur des Flagellenapparats Haken: Ø Flexibles Gelenk Ø Ähnliche Struktur wie Filament, nur von anderem Protein gebildet
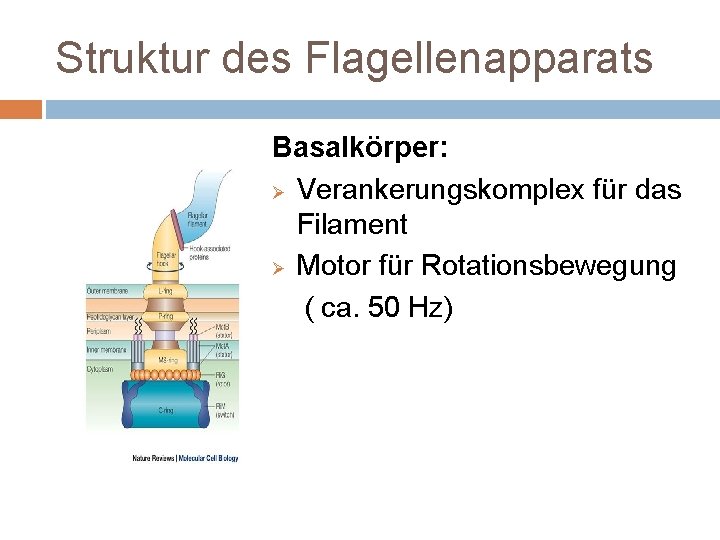
Struktur des Flagellenapparats Basalkörper: Ø Verankerungskomplex für das Filament Ø Motor für Rotationsbewegung ( ca. 50 Hz)
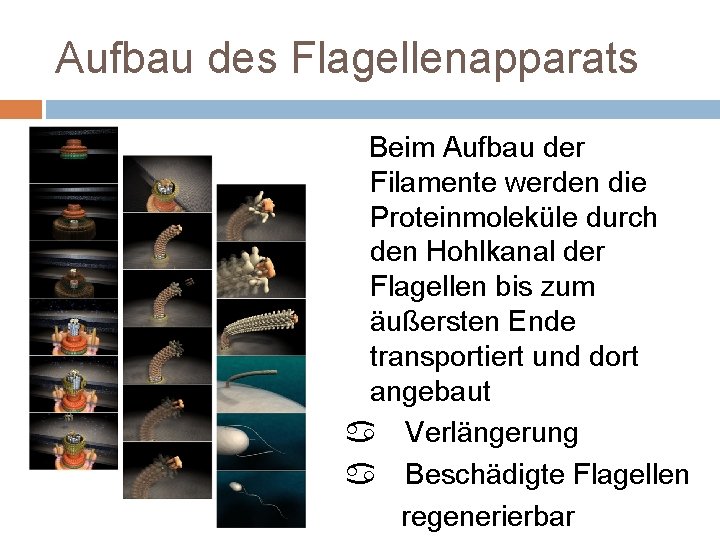
Aufbau des Flagellenapparats Beim Aufbau der Filamente werden die Proteinmoleküle durch den Hohlkanal der Flagellen bis zum äußersten Ende transportiert und dort angebaut a Verlängerung a Beschädigte Flagellen regenerierbar
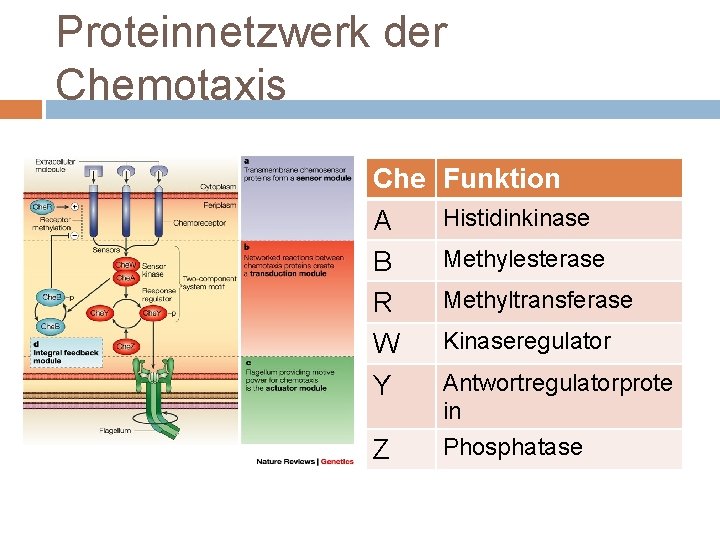
Proteinnetzwerk der Chemotaxis Che A B R W Y Z Funktion Histidinkinase Methylesterase Methyltransferase Kinaseregulator Antwortregulatorprote in Phosphatase
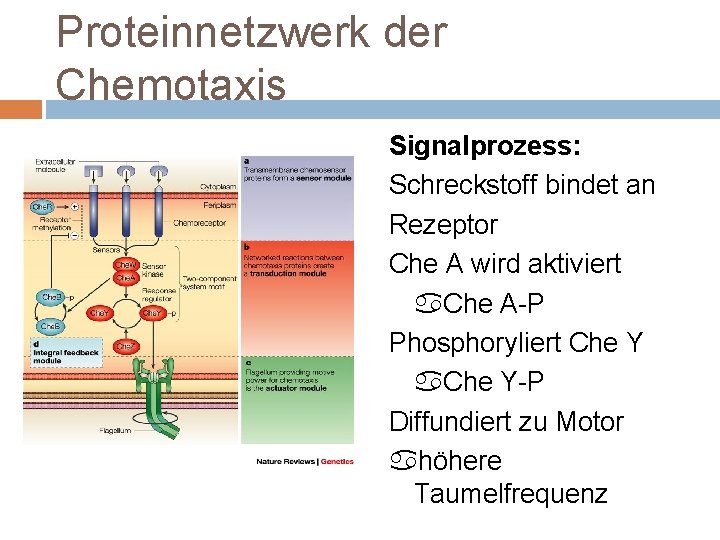
Proteinnetzwerk der Chemotaxis Signalprozess: Schreckstoff bindet an Rezeptor Che A wird aktiviert a. Che A-P Phosphoryliert Che Y a. Che Y-P Diffundiert zu Motor ahöhere Taumelfrequenz
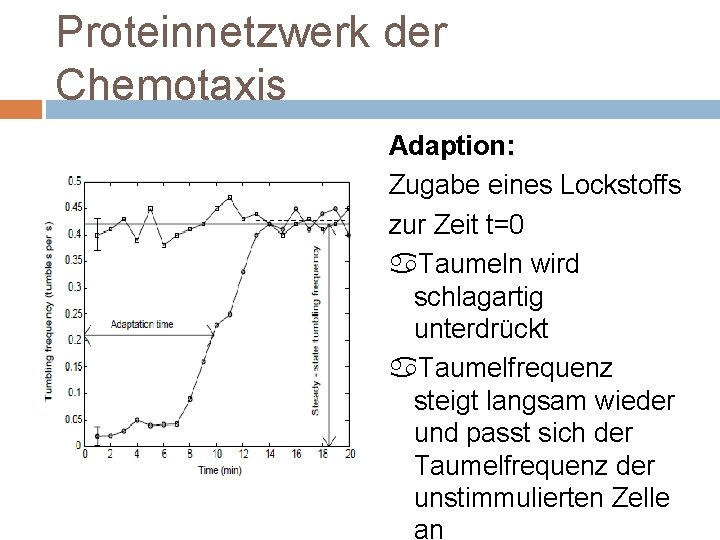
Proteinnetzwerk der Chemotaxis Adaption: Zugabe eines Lockstoffs zur Zeit t=0 a. Taumeln wird schlagartig unterdrückt a. Taumelfrequenz steigt langsam wieder und passt sich der Taumelfrequenz der unstimmulierten Zelle an
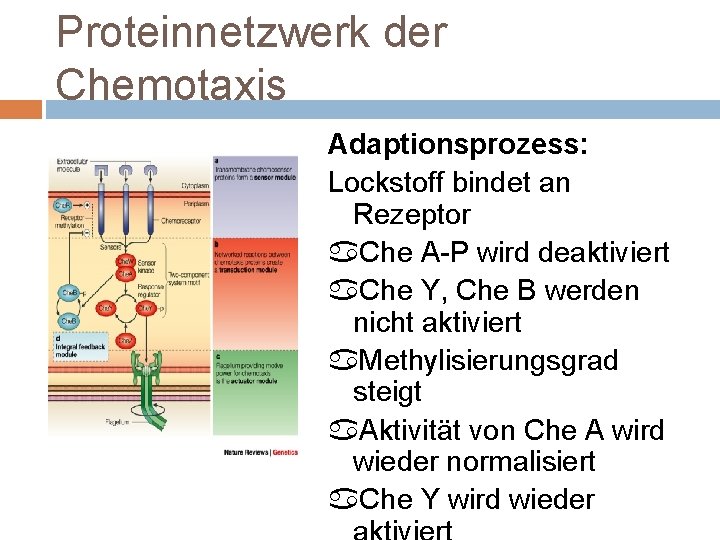
Proteinnetzwerk der Chemotaxis Adaptionsprozess: Lockstoff bindet an Rezeptor a. Che A-P wird deaktiviert a. Che Y, Che B werden nicht aktiviert a. Methylisierungsgrad steigt a. Aktivität von Che A wird wieder normalisiert a. Che Y wird wieder
Eigenschaften des Proteinnetzwerks Ø Ø Empfindlichkeit: Signal der Rezeptoren um Faktor 100 verstärkt Reize verschiedensten Ursprungs werden zu einem Signal kombiniert Exakte Adaption ermöglicht Bewegung entlang zeitlichem Konzentrationsgradienten Empfindlich auch für kleine Konzentrationsänderungen (<1%) in extremen Konzentrationen (n. M-m. M Bereich)
Robustness in bacterial Chemotaxis Experiment von Alon, Surette, Barkai & Leibler: Wie reagieren Response und Adaption auf systematische Konzentrationsveränderungen der Chemotaxis-Proteine?
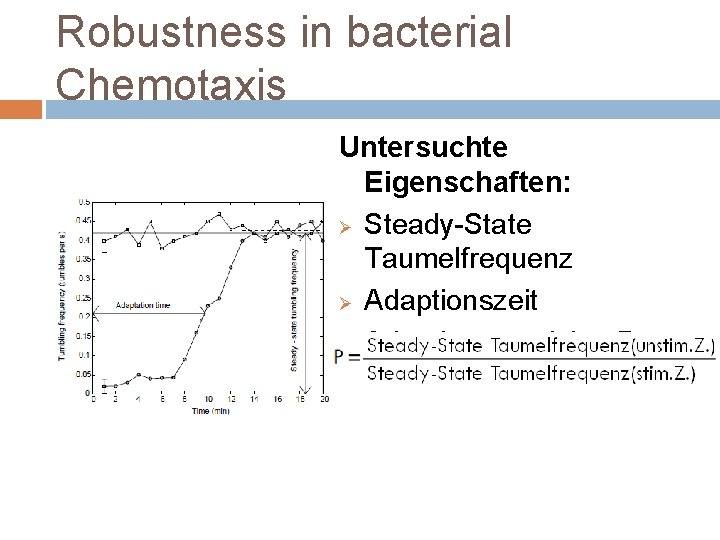
Robustness in bacterial Chemotaxis Untersuchte Eigenschaften: Ø Steady-State Taumelfrequenz Ø Adaptionszeit Ø Adaptionsprezision P
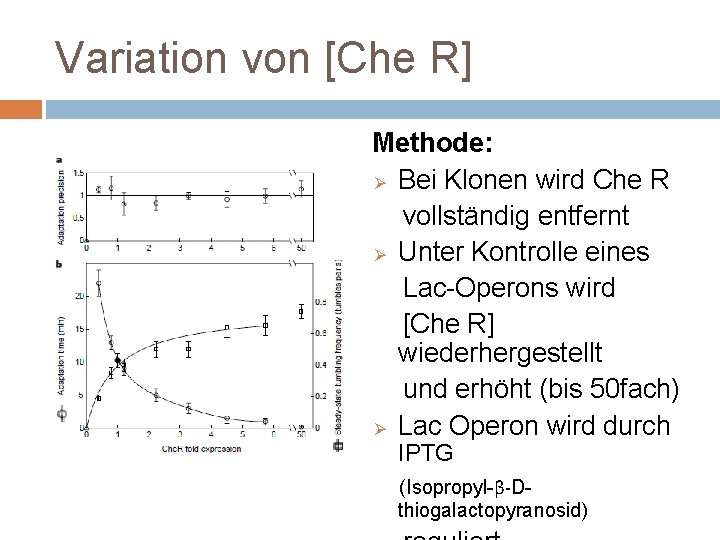
Variation von [Che R] Methode: Ø Bei Klonen wird Che R vollständig entfernt Ø Unter Kontrolle eines Lac-Operons wird [Che R] wiederhergestellt und erhöht (bis 50 fach) Ø Lac Operon wird durch IPTG (Isopropyl-β-Dthiogalactopyranosid)
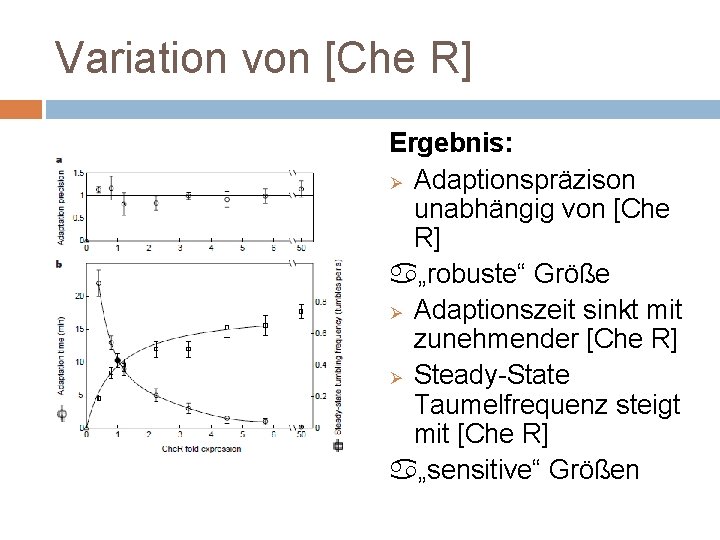
Variation von [Che R] Ergebnis: Ø Adaptionspräzison unabhängig von [Che R] a„robuste“ Größe Ø Adaptionszeit sinkt mit zunehmender [Che R] Ø Steady-State Taumelfrequenz steigt mit [Che R] a„sensitive“ Größen
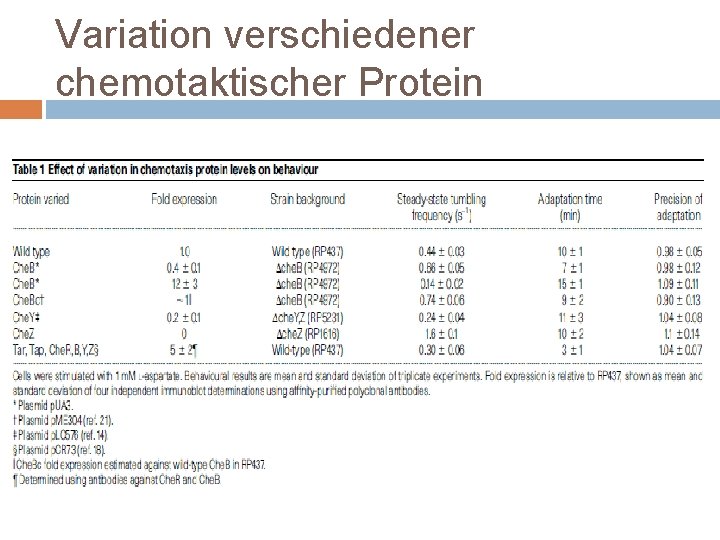
Variation verschiedener chemotaktischer Protein
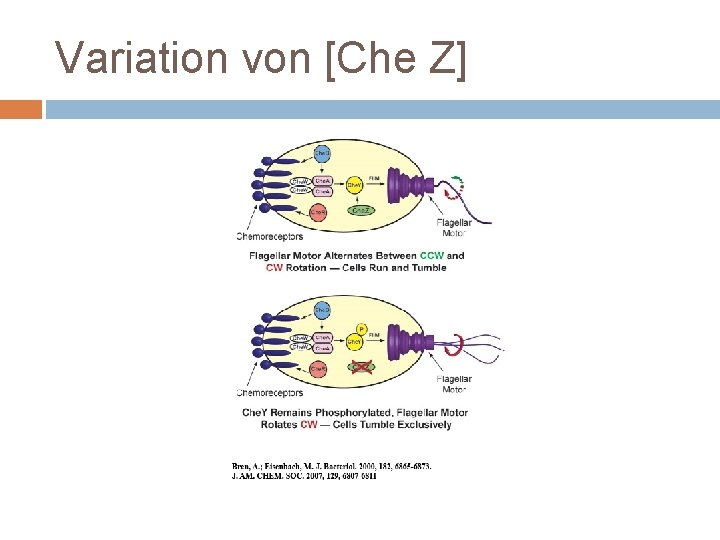
Variation von [Che Z]
Messung der Motor Signalübertragung Experiment von Leibler, Cluzel, Surette Messung des Motor Outputs als Funktion der Che Y-P Konzentration
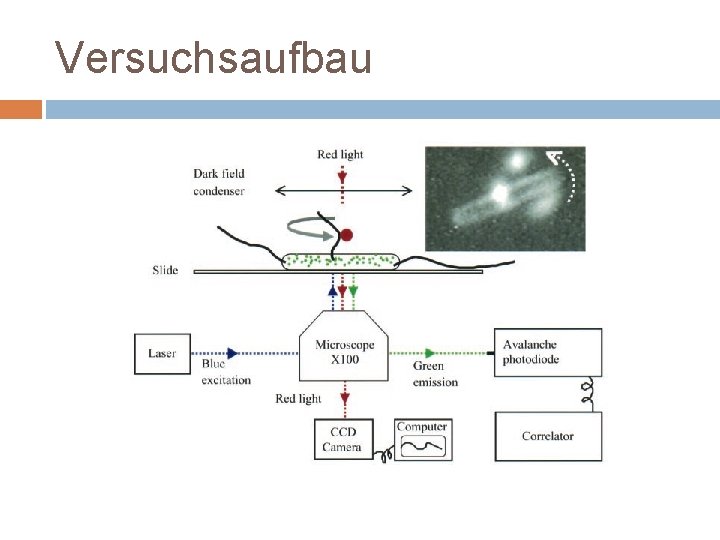
Versuchsaufbau
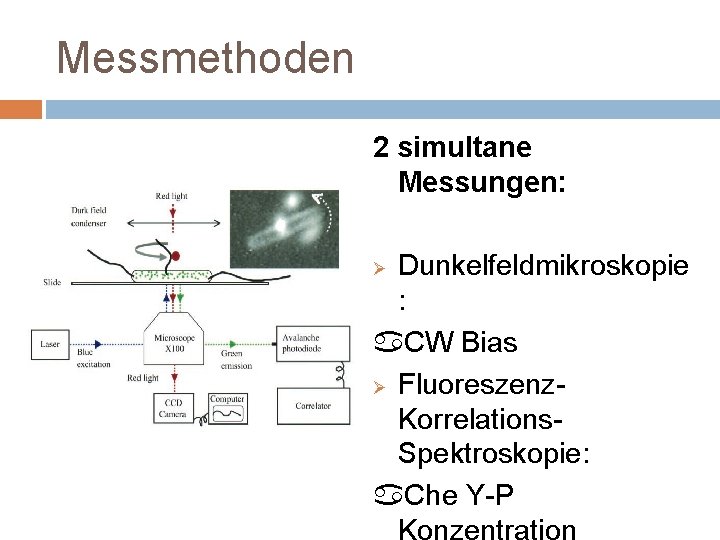
Messmethoden 2 simultane Messungen: Dunkelfeldmikroskopie : a. CW Bias Ø Fluoreszenz. Korrelations. Spektroskopie: a. Che Y-P Konzentration Ø
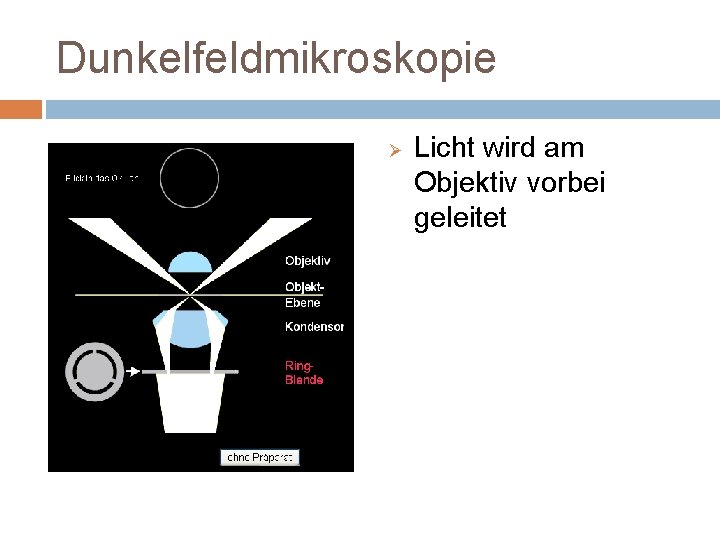
Dunkelfeldmikroskopie Ø Licht wird am Objektiv vorbei geleitet
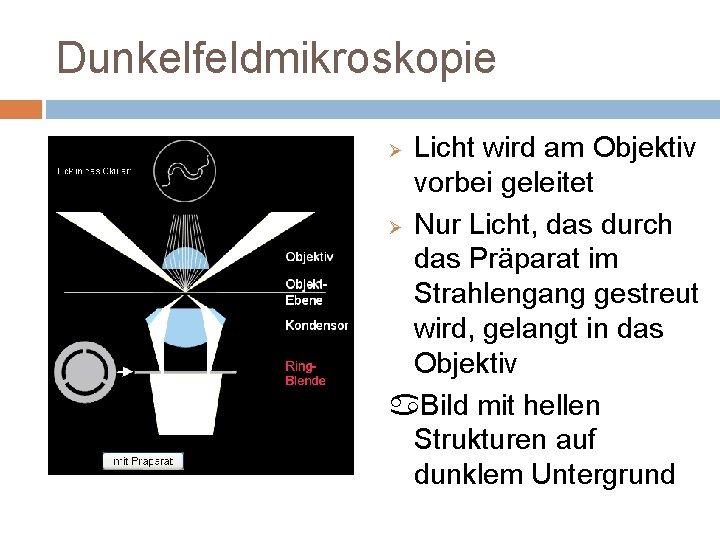
Dunkelfeldmikroskopie Licht wird am Objektiv vorbei geleitet Ø Nur Licht, das durch das Präparat im Strahlengang gestreut wird, gelangt in das Objektiv a. Bild mit hellen Strukturen auf dunklem Untergrund Ø
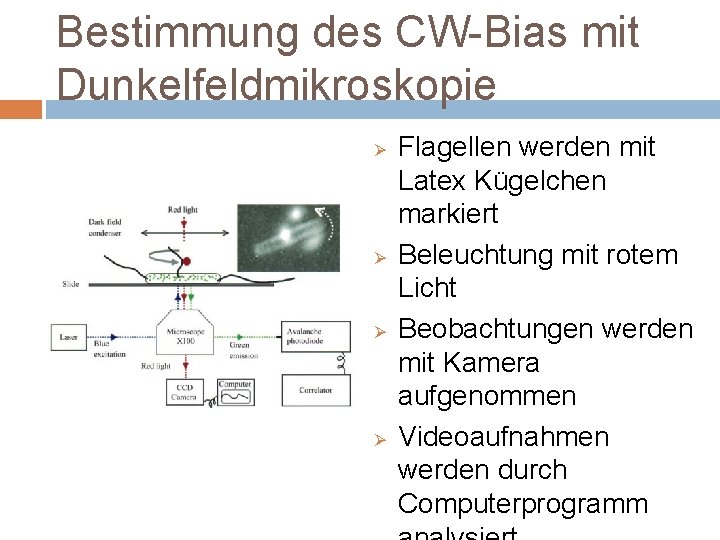
Bestimmung des CW-Bias mit Dunkelfeldmikroskopie Ø Ø Flagellen werden mit Latex Kügelchen markiert Beleuchtung mit rotem Licht Beobachtungen werden mit Kamera aufgenommen Videoaufnahmen werden durch Computerprogramm
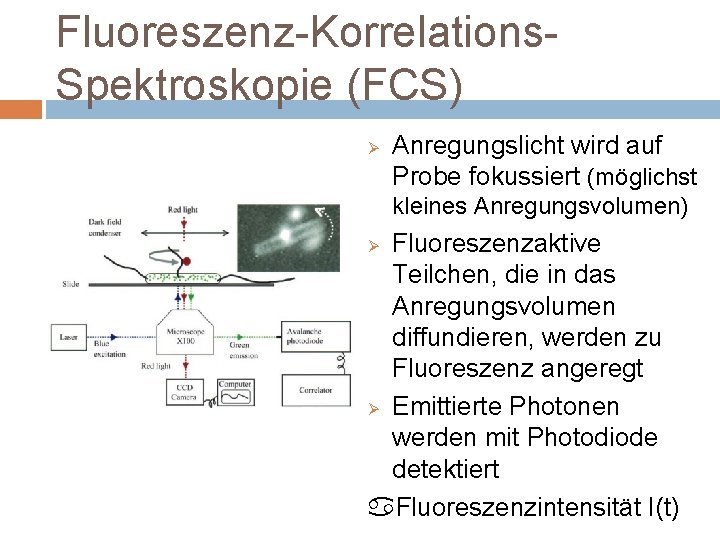
Fluoreszenz-Korrelations. Spektroskopie (FCS) Ø Anregungslicht wird auf Probe fokussiert (möglichst kleines Anregungsvolumen) Fluoreszenzaktive Teilchen, die in das Anregungsvolumen diffundieren, werden zu Fluoreszenz angeregt Ø Emittierte Photonen werden mit Photodiode detektiert a. Fluoreszenzintensität I(t) Ø
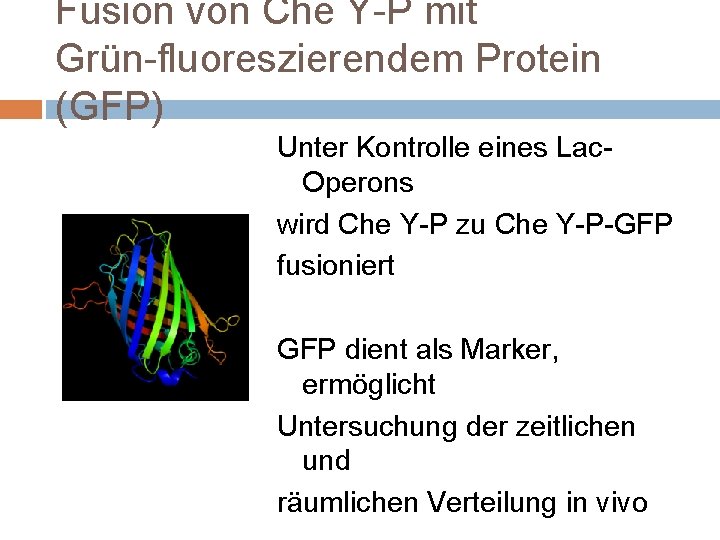
Fusion von Che Y-P mit Grün-fluoreszierendem Protein (GFP) Unter Kontrolle eines Lac. Operons wird Che Y-P zu Che Y-P-GFP fusioniert GFP dient als Marker, ermöglicht Untersuchung der zeitlichen und räumlichen Verteilung in vivo
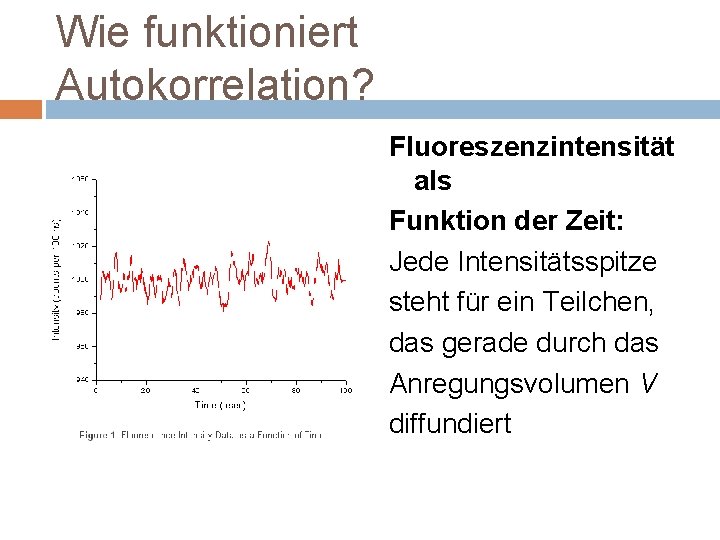
Wie funktioniert Autokorrelation? Fluoreszenzintensität als Funktion der Zeit: Jede Intensitätsspitze steht für ein Teilchen, das gerade durch das Anregungsvolumen V diffundiert
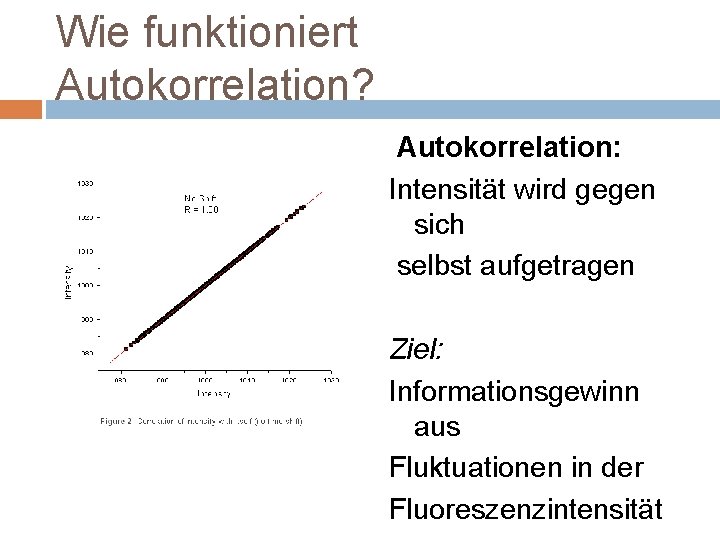
Wie funktioniert Autokorrelation? Autokorrelation: Intensität wird gegen sich selbst aufgetragen Ziel: Informationsgewinn aus Fluktuationen in der Fluoreszenzintensität
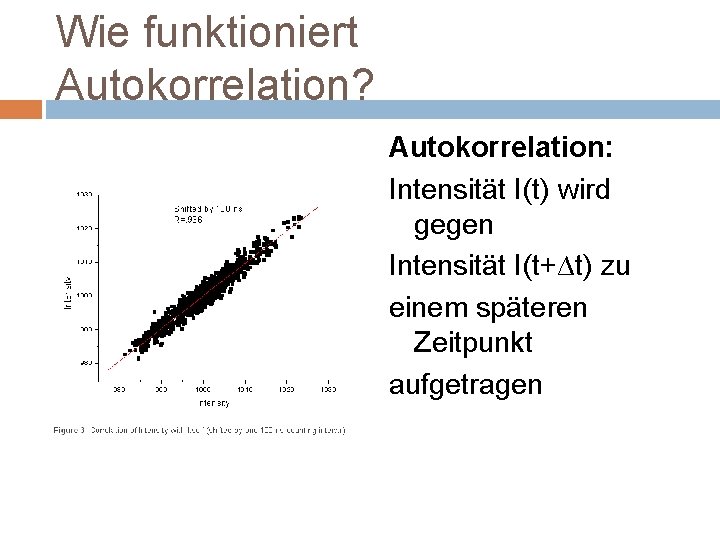
Wie funktioniert Autokorrelation? Autokorrelation: Intensität I(t) wird gegen Intensität I(t+∆t) zu einem späteren Zeitpunkt aufgetragen
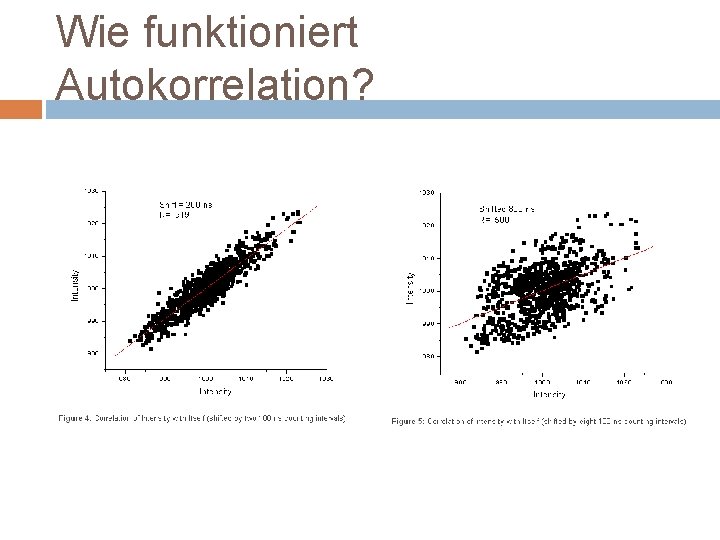
Wie funktioniert Autokorrelation?
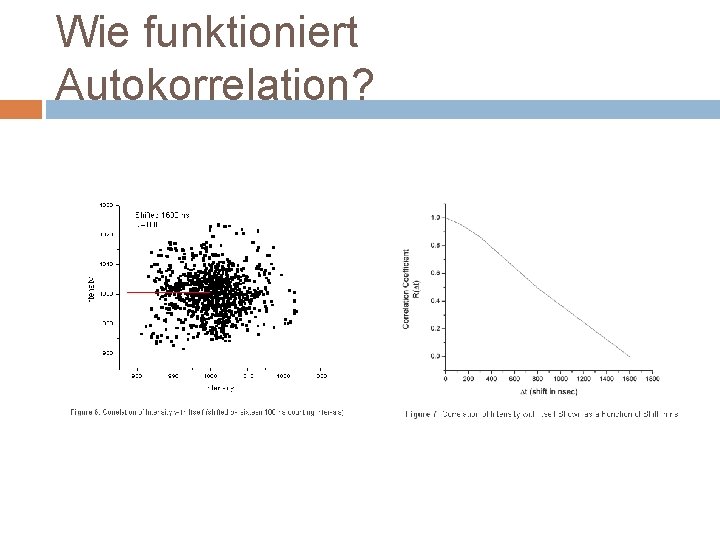
Wie funktioniert Autokorrelation?
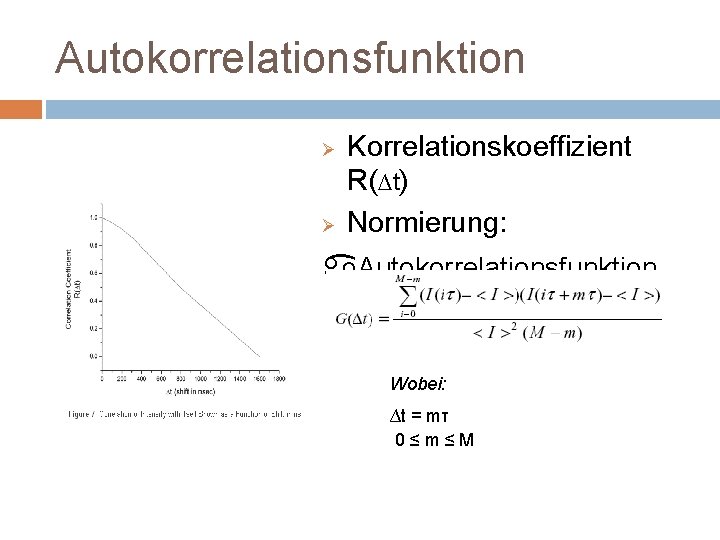
Autokorrelationsfunktion Ø Ø Korrelationskoeffizient R(∆t) Normierung: a. Autokorrelationsfunktion G(∆t) Wobei: ∆t = mτ 0≤m≤M
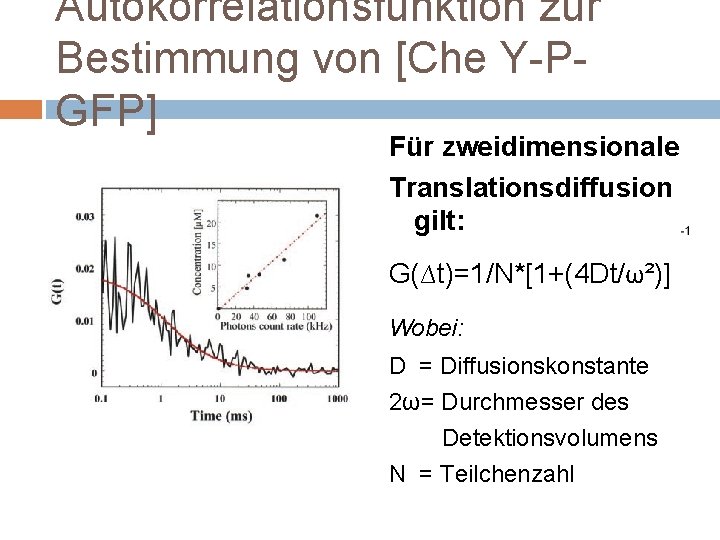
Autokorrelationsfunktion zur Bestimmung von [Che Y-PGFP] Für zweidimensionale Translationsdiffusion gilt: G(∆t)=1/N*[1+(4 Dt/ω²)] Wobei: D = Diffusionskonstante 2ω= Durchmesser des Detektionsvolumens N = Teilchenzahl
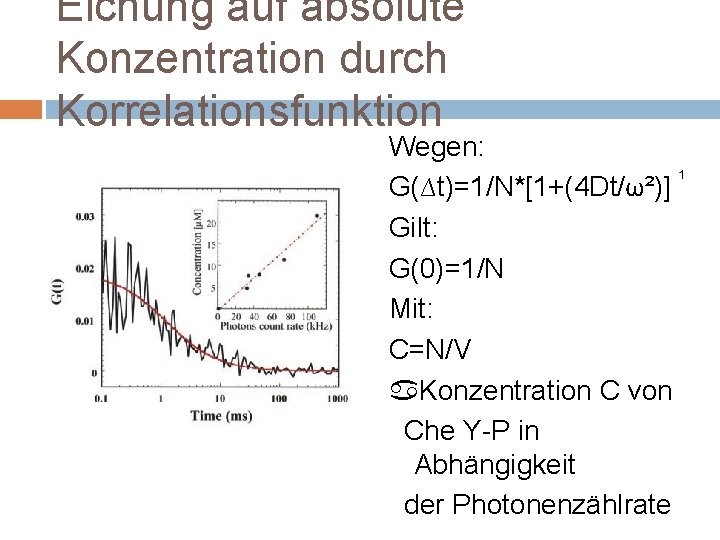
Eichung auf absolute Konzentration durch Korrelationsfunktion Wegen: G(∆t)=1/N*[1+(4 Dt/ω²)] Gilt: G(0)=1/N Mit: C=N/V a. Konzentration C von Che Y-P in Abhängigkeit der Photonenzählrate
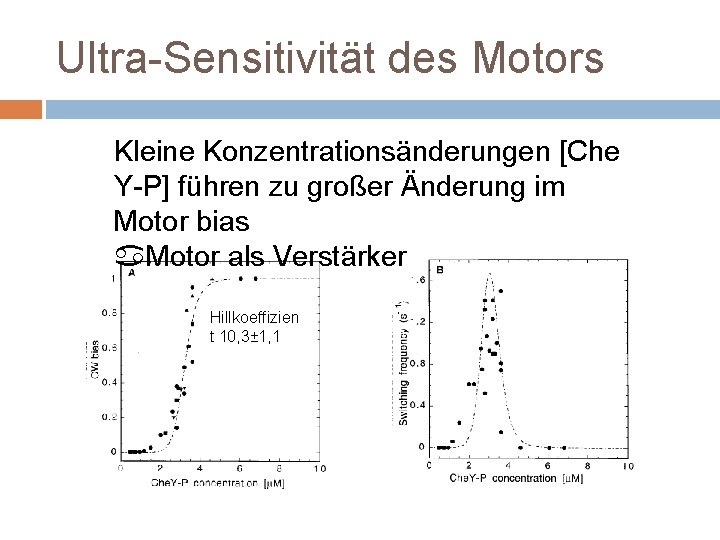
Ultra-Sensitivität des Motors Kleine Konzentrationsänderungen [Che Y-P] führen zu großer Änderung im Motor bias a. Motor als Verstärker Hillkoeffizien t 10, 3± 1, 1
Zusammenfassung Ø Ø Ø Extrazellulare Reize werden durch ein Proteinnetzwerk in Motor Output übersetzt Motor ist ultrasensitiv Exakte Adaption ist eine „robuste“ Größe und ermöglicht Bewegung entlang zeitlichem Gradient a Kritisch für Chemotaxis
- Slides: 40