
EVOLUCIONE NOVINE I INOVACIJE NOVINEINOVACIJE Evoluciona novine karakteristike
- Slides: 63
EVOLUCIONE NOVINE I INOVACIJE
NOVINE&INOVACIJE • Evoluciona novine- karakteristike koje na bitno drugačiji način u odnosu na prethodno stanje organizma odreduju njegov odnos sa okolinom • Inovacija- uvodjenje novih entiteta u fenotipove (na molekulskom, fiziološkom, razvojnom, morfološkom, ekološkom nivou) koje izlaze iz okvira normalne varijabilnosti taksona • Precizno razlikovanje novina i inovacija je važno jer se na taj način ističu 2 različita aspekta evolucije
INOVACIJA • Osnovni problem je karakteristika na odredjenom nivou organizacije (npr. morfološka karakteristika) “Gde se definicija može zasnivati na koncepciji homologije” Muller 2002 • Prema Muller-u morfološka inovacija je “Novi konstruktivni element u planu gradje koji nema homolog parnjaka ni kod predaka ni u okviru istog organizma” • Inovacija predstavlja kvantitativno, a ne samo kvalitativno odstupanje ood predačkih stanja karakteristika- npr. pojava perja, vilica, zuba. . .
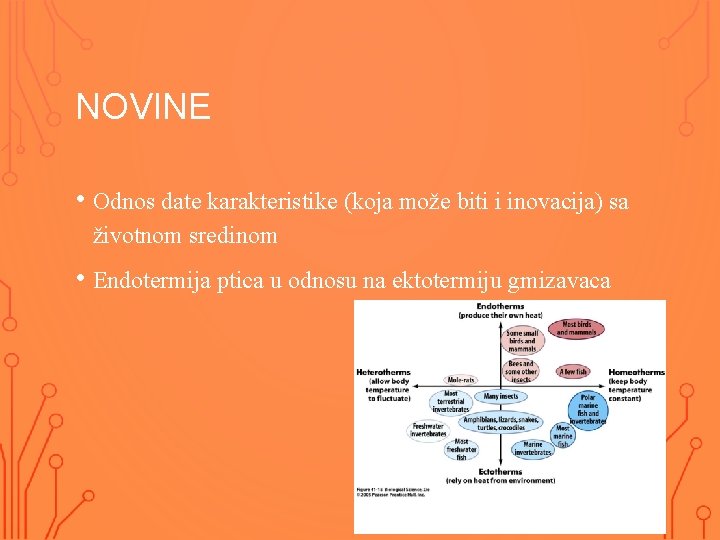
NOVINE • Odnos date karakteristike (koja može biti i inovacija) sa životnom sredinom • Endotermija ptica u odnosu na ektotermiju gmizavaca
EVOLUCIONE NOVINE, TAKSNONOMIJA I FILOGENIJA • Taksonomija- koriste se prilikom definisanja viših kategorija • Filogenija- osnova za definisanje stupnjeva i brzine evolucionih promena koje dovode do evolucionih novina
BRZINA EVOLUCIJE • Kojom brzinom nastaju evolucine novine? • Da li je evolucija brz ili spor proces?
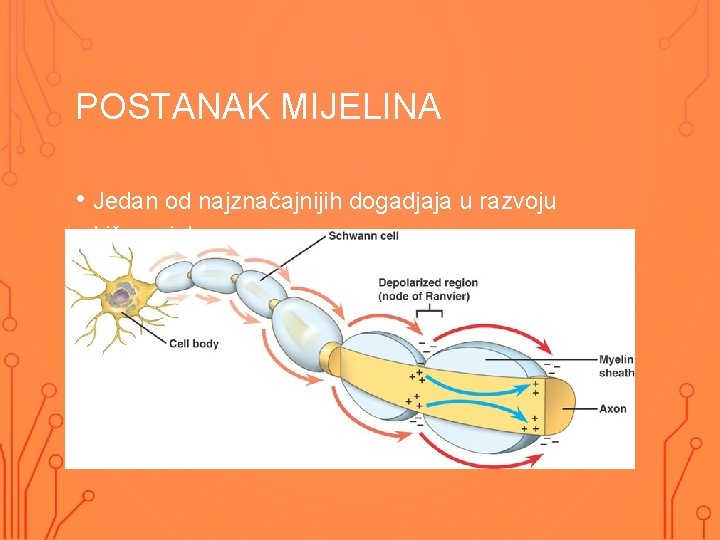
POSTANAK MIJELINA • Jedan od najznačajnijih dogadjaja u razvoju kičmenjaka
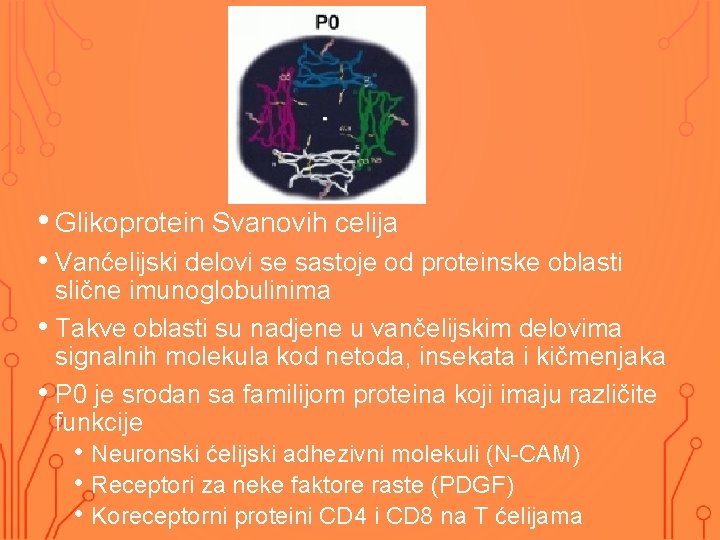
• Glikoprotein Svanovih celija • Vanćelijski delovi se sastoje od proteinske oblasti slične imunoglobulinima • Takve oblasti su nadjene u vančelijskim delovima signalnih molekula kod netoda, insekata i kičmenjaka • P 0 je srodan sa familijom proteina koji imaju različite funkcije • Neuronski ćelijski adhezivni molekuli (N-CAM) • Receptori za neke faktore raste (PDGF) • Koreceptorni proteini CD 4 i CD 8 na T ćelijama
• Smatra se da su imunoglobulinski delovi, kao adhezivne strukture morali nastati u Prekambriji, pre razdajanja kičmenjaka i zglavkara • Kod filogenetski mladjih riba (ajkule i raže) i svih tetrapoda P 0 u CNS je zamenjen oligodendrocitnim proteolipidom. • Pretpostavlja se da je ovaj proteolipid nastao tokom rane evolucije riba i da je predstavljao prvobitno jonski kanal • Posle vezivanja za vanćelijske adhezivne oblasti mogao je da preuzme funkciju P 0
POSTANAK KRILA KOD INSEKATA
Ako se uspešnost neke grupe meri brojem vrsta, onda insekti spadaju u najuspešnije životinje koje su ikada živele na Zemlji. Danas je u klasu Insecta svrstano oko 750 000 vrsta, a zajedno sa, još uvek, neidentifikovanim vrstama ih znatno više, pa se njihov broj procenjuje na oko 10 miliona. Smatra se da osnovnu ulogu, u razvoju insekata kao uspešne grupe, imaju njihove ključne morfološke adaptacije.
Prema Nelsonu (2002) postoji pet takvih morfoloških inovacija: 1. Postojanje 6 nogu 2. Podela tela na tri regiona (glava, toraks, abdomen) 3. Mandibule sa dve kondile 4. Potpuna metamorfoza 5. Krila
Najstariji letači su insekti, čija istorija krila je počela pre oko 320 miliona godina (Karon). Krila i aktivno letenje omogućavaju brzo pronalaženje odgovarajućih staništa, hrane i partnera za ukrštanje, kao i veću disperzivnost. Na primeru krila insekata se može ilustrovati interakcija različitih činilaca životne sredine i načina delovanja gena u nastanku i evoluciji složenih karakteristika, pri čemu moramo imati u vidu koliko različitih podataka moramo uzeti u obzir, kako bi smo odgovorili na pitanje postanka i evolucije složenih adaptacija.
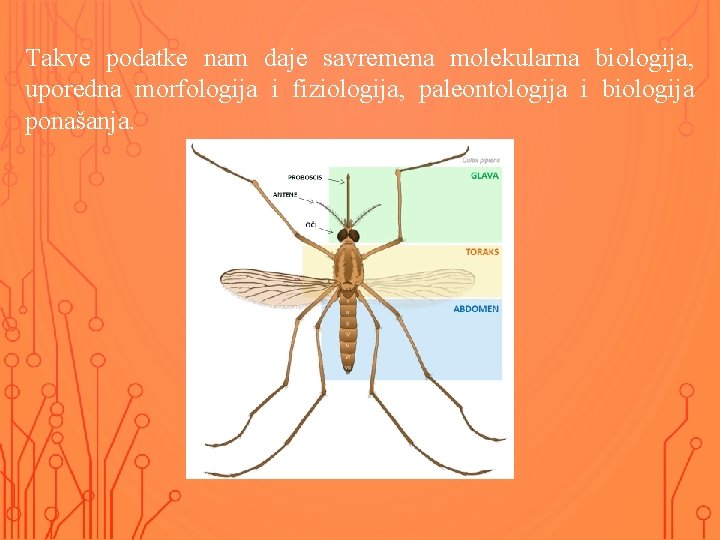
Takve podatke nam daje savremena molekularna biologija, uporedna morfologija i fiziologija, paleontologija i biologija ponašanja.
Danas postoje 2 osnovne hipoteze o postanku krila insekata: 1. Prema prvoj, krila su nastala od tankih produžetaka pojedinih segmenata toraksa. Ovu hipotezu podržavaju fosili krupnih Palaeodictyoptera (stari oko 300 miliona godina) sa velikim izbočinama na mestima gde insekti imaju krila. Problem sa ovom hipotezom je to što te izbočine nisu imale ni artikulaciju, ni neophodne mišiće za letenje.
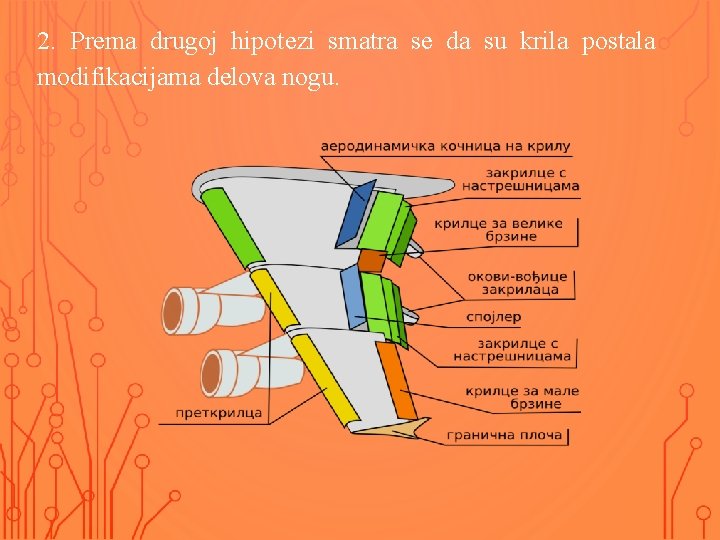
2. Prema drugoj hipotezi smatra se da su krila postala modifikacijama delova nogu.
Prema jednoj verziji ove hipoteze, prethodnici krila insekata bile su škržne ploče akvatičnih juvenilnih oblika insekata koji danas više ne postoje, ali čiji su dobro sačuvani fosilni ostaci nađeni. Međutim, problem sa ovom hipotezom je da se takvi tipovi škrga nikada ne nalaze na toraksu, kao i to što većina entomologa smatra da su beskrilni preci insekata bile suvozemne, a ne vodene životinje. Na osnovu zapažanja da neki insekti iz Karbona imaju na bazalnim delovima nogu tzv. izlazne režnjeve, data je još jedna modifikacija ove hipotezesmatra se da su ti izlazi mogli da se odvoje od glavnih struktura, koje podržavaju noge, i da migriraju u dorzalni deo insekatskog tela gde su, zajedno sa odgovarajućim mišićima i artikulacijom postali krila.
Bez obzira na poreklo krila, u evoluciji se često postavlja pitanje kako su kratka protokrila, koja su imala ograničenu mogućnost letenja, mogla postati tako savršen organ za letenje. Najčešće objašnjenje za to je da ako su se među potomcima insekata, koji su imali škržne ploče, našli i oni koji su te organe zadržali i posle metamorfoze u adultne oblike, one su im mogle služiti kao „jedra“ pomoću kojih su adultni insekti „klizili“ po površini vode. To je, za takve jedinke, mogla da bude velika prednost, jer su se uz pomoć vetra brže kretale po površini vode i na taj način izbegavale grabljivice (dokaz takvog scenarija su neki savremeni insekti iz roda Leuctra).
Intenzivna istraživanja koja se odnose na gene koji kontrolišu razviće insekata, doprinela su boljem razumevanju problema postanka krila. Tako, npr. imajući u vidu da postoje velike sličnosti u načinu ekspresije osmoregulatornih krilaca (epipoda) rakova, i načina formiranja insekatskih krila, Kerol i njegovi saradnici (1995) smatraju da su prvi insekti imali krila koja se začinju u svim segmentima tela (slično kao epipode kod rakova). Kod savremenih insekata je, prema ovoj hipotezi, došlo kod različitih homeotičkih gena do supresije njihove aktivnosti u većini segmenata, tj. do formiranja krila došlo je nezavisno od homeotičkih gena organizma. Postoji nekoliko eksperimentalnih podataka koji ovo potvrđuju.
Kombinovanjem molekularno-bioloških podataka, predožena je sledeća hipoteza postanka i evolucije krila kod insekata: kada su krila prvi put nastala, ona su bila na svim segmentima tela, jer tada nije bilo homeotične regulacije njihovog broja. Pod pretpostavkom da obrazac, prema kome deluju Hom-C geni, nije tokom evolucije menjan, proteini ovog sistema gena stekli su sposobnost regulacije procesa formiranja krila kod insekata, tako što su se pojavile mutacije u regulatornim regionima gena koji kontrolišu razviće krila koje su uslovile njihovu osetljivost na aktivnost tri gena Antp klase (Scr, Abd-a, Ubx).
Mutacije u odgovarajućim Scr elementima dovodile su do redukcije ili modifikacije protorakalnih TI krila, dok su odgovarajuće promene u Abd-A elementima dovodile do redukcije abdominalnih krila. Kod četvorokrilnih insekata Ubx sprečava formiranje krila na prvom abdominalnom segmentu, a kod dvokrilnih insekata, taj gen kontroliše razviće krila, kao i u adominalnom prvom segmentu, tako i u trećem torakalnom segmentu. Dakle, slobodno možemo reći da su, tokom evolucije homeotički geni insekata „stekli“ nove gene čiju aktivnost regulišu.
Kao što je već rečeno, prvi insekti, koji su bili u stanju da lete, su se pojavili u Karbonu. Upravo krajem tog perioda se uočava povećanje koncentracije kiseonika u atmosferi. Ova korelacija očigledno nije slučajna, ako imamo u vidu metaboličke „zahteve“ insekatskog letenja i viskoznost atmosfere sa povećanom koncentracijom kiseonika.
• Morfološke varijacije između vrsta i većina evolutivnih novina smatraju se poligeneskim. • QTL mapiranje se koristi za otkrivanje razlike u genetičkoj arhitekturi koje izazivaju pojave novina. • Mapiranje implicira da su regulatorni geni razvoja često uključeni u morfološke razlike između vrsta. • Ubx gen
PROMENE U GENISKIM SEKVENCAMA • Promene u regulatornim regionima gena su češće nego u samim genima, čime se potvrđuje značaj varijacija u regulaciji gena u evoluciji i morfološkim razlikama koje se javljaju. • Molekularne evolutivne studije pokazuju kod blisko srodnih vrsta pokazuju velike varijacije u cisregulatornim sekvencama, dok kod filogenetski udaljenih vrsta dolazi do konvergentne eveolucije.
EKSPERIMENT • Ludwig i Kreitman • Sekvenca i funkcionalne razlike u cis-regulatornom regionu eve gena kod 4 vrsta roda Drosophila • Eve (even-skipped) gen – transkripcioni faktor potreban za segmentaciju • Dovodi do stvaranja 7 pruga duž anterio-posteriorne ose blastoderma
• Drosophila melanogaster: eve stripe-2 enhenser – najbolje proučen cis-regulatorni element 670 bp Neophodan za ekspresiju 2. pruge 17 vezivnih krajeva
KREITMANOVO ISTRAŽIVANJE • Sekvencionisali eve stripe – 2 iz 5 vrsta Drosophila • Pozicije i broj “binding sites” • Funkcija enhensera svih vrsta u transgenoj D. melanogaster
REZULTATI • Samo je 3 od 17 “binding sites” sačuvano • 2 su u potpunosti odsutna kod 2 vrste koje su najudaljenije od D. melanogaster
• Da li je funkcija enhensera eve stripe-2 očuvana uprkos razlikama koje su se pojavile u sekvencama? • Individualni delovi enhensera su zadržali svoju nezavisnu ulogu? • Promene su praćene kompenzacionim promenama u drugim delovima?
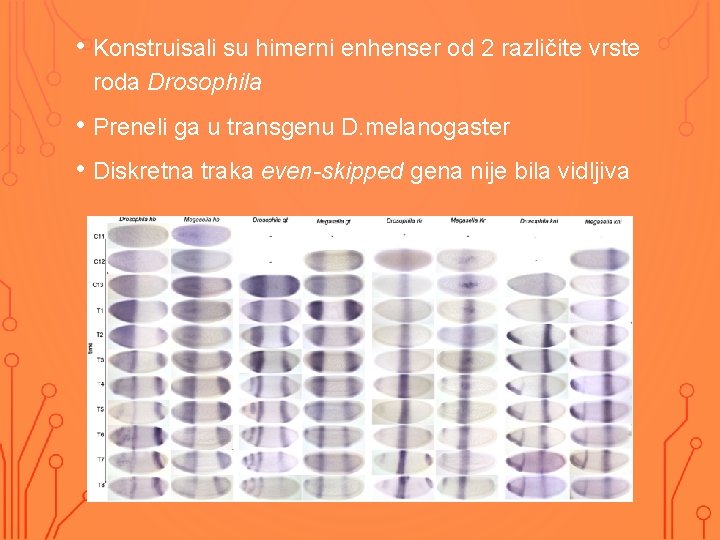
• Konstruisali su himerni enhenser od 2 različite vrste roda Drosophila • Preneli ga u transgenu D. melanogaster • Diskretna traka even-skipped gena nije bila vidljiva
• Rezultat: himerni enhenseri ne pokazuje normalnu transkripcionu aktivnost • Zaključak: U okviru svake vrste enhenseri su evoluirali i izmenili se tako da sačuvaju svoju funkciju. • Fiksacija u enhenseru promene u ekspresiji selekcioni pritisak promena u drugim delovima enhensera održavanje funkcije
• Razvojni genetički setovi uključuju drevni okvir regulatornih interakcija između pleiotropnih regulatornih proteina • Interakcije su u pozadini “binding sites” za druge transkripcione faktore • Kontrolišu aspekte genske ekspresije na finijoj skali, a koji su evoluirali tokom kraćih vremenskih perioda.
PROMENE U PROTEINSKIM SEKVENCAMA • Evolucija proteinskih sekvenci izvor regulatornih novina u evlociji • Supstitucija aminokiselina utiče na interakciju sa drugim regulatornim proteinima ili povezivanje sa ciselementima • Zašto je važno? Utiče na ekspresiju nizvodnih gena tokom razvoja.
EKSPERIMENT LYNCH-A • Lynch sa timom • Nova funkcija transkripcionog faktora CCAAT/enhenser vezujući protein-β (C/EBP-β) • C/EBP-β + FOXO 1 A prolaktinski gen za vreme razvoja endometrijalnih stromalnih ćelija • Endometrijum je bitan u inicijaciji razvoja placente kod sisara
• Placenta Eutheria – duže vreme trudnoće od torbara • Zajednički predak – kraće vreme trudnoće • Lynch i kolege su filogenetski odredili C/EBP-β proteinske sekvence prisutne kod najbližeg pretka placentalnih sisara i kod najbližeg zajdeničkog pretka Eutheria i Metatheria.
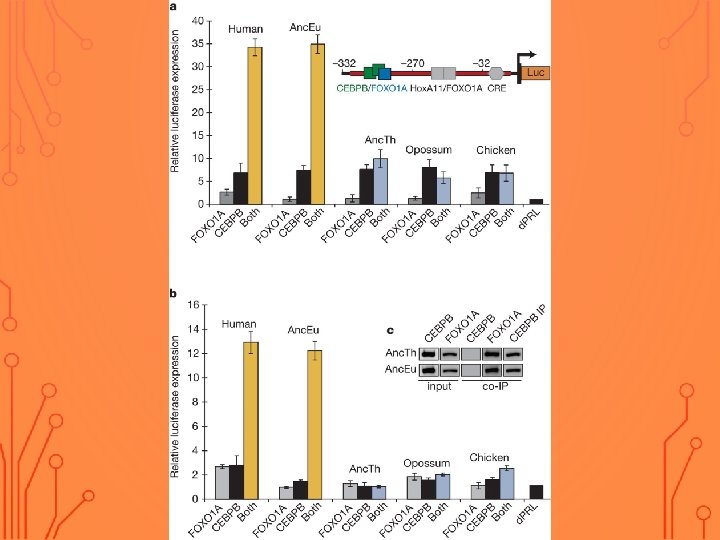
• Nakon niza eksperimenata konstruisali su gen da eksprimira predačke protine i proteine iz nekoliko postojećih vrsta u kulturama humanih ćelija • Testirali su interakciju C/EBP-β proteina sa FOXO 1 A proteinom iste vrste, kao i sposobnost da parovi proteina uključe ekspresiju PRL gena
REZULTATI • C/EBP-β i FOXO 1 A proteini iz Eutheria(čoveka), Metatheria(oposuma), oba rekonstruisana predka i vrste izvan grupe(kokoška) su sposobni da se vežu. • Samo proteinski parovi današnjih Eutheria(čovek) i predačkog Eutheria su pokazali sinergiju aktivirali su ekspresiju PRL gena
• Lynch i kolege su dokazali da je ova sinergija proteina omogućena zbog 3 zamena aminokiselina u C/EBP-β kod Eutheria • Čak i male promene u regulatornim proteinima dovode do važnih makroevolutivnih novina.
MAKROEVOLUCIJA I EVOLUCIJA NOVIH OSOBINA
• Nakon molekularnih i razvojnih mehanizama koji uslovljavaju evolucionarne promene na mikroplanu, možemo obratiti pažnju na to kako se dešavaju promene na makroplanu. Ideja da je „makroevolucija mikroevolucija samo zapisana kao makro“ Darvinu i stoga prethodi genetičkom znanju. Napredak u genomskoj i razvojnoj genetici omogućava istraživačima EDB da zaista testiraju ovu ideju i našli su jake indikacije u mnogim istraživanjima da su promene upotrebe genetičkog materijala jedne od glavnih tema makroevolucije. Ali opšti odgovori na mnoga pitanja tek treba da se pojave. Jedno od ovih, koje je bilo kontroverzno od početka evolucionarne sinteze, jeste da li je evolucija postepena, kao što je Darvin pretpostavio ili diskontinualna i uključuje velike fenotipske skokove.
• Genetske analize morfološke evolucije, otkrivaju da je veći broj genetskih struktura uključen, od pojedinih gena sa velikim uticajem do toga da svaki pojedinačni gen sa malim uticajem doprinosi diferencijaciji vrste. U prethodnom slučaju, mutacije sa velikim uticajem (Hox genske mutacije) mogu sigurno da utiču na diskontinuirani skok u morfologiji telesne strukture, otvarajući mogućnost da se usko povezane vrste mogu drastično razlikovati u svom razvoju. Jedan od najspektakularnijih primera takve razlike se odnosi na razvoj i životni razvoj dve vrste morskog ježa koje pripadaju istom rodu.
• Kod Helicocidaris tuberculata, razviće je indirektno: embrion se prvo razvija u pluteus larvu, koja kasnije metamorfozira u odraslu jedinku. Kod H. erythrogramma, s druge strane, razviće je direktno: embrion započinje razvoj odrasle jedinke bez faze pluteus larve. Opservacija da su obe vrste i dalje sposobne da formiraju hibride (Raff et all. 1999), sugeriše ne samo rapidnu evoluciju, već i sposobnost razvojnog sistema, jedne faze životnog razvoja, da se radikalno promeni, bez da poremeti druge faze.
• Pojava velikih promena u razvoju u kratkom evolutivnom vremenu sugeriše da imaju jednostavne genetičke osnove koje se sastoje od 1 ili nekoliko gena • Mnogi geni imaju višestruku ulogu u razvoju što izuzetno implicira da su tokom evolucije mnogi geni dobili nove funkcije • Primer: transkripcioni faktor Distal-less je neophodan za organizaciju razvoja noga, krila i antena kod svih insekata, ali kod nekih leptira, takođe se javlja i kasnije u razvoju i utiče na obrazac boja očiju
• Promene u funkciji postojećih osobina u adaptivnoj evoluciji poznate su još od Darvina. • Stephan Jay Gould i Elisabeth Vrba uveli su termin “exaptation” koji se odnosi na novu ulogu već postojeće morfološke karakteristike • Termini koje su koristili u razviću su “regrutacija i koopcija”i odnose se na evoluciju novih funkcija postojećih gena i razvojnih puteva
• Nove strukture mogu da evoluiraju na dva načina putem ko-opcije razvojnih obrazaca: • Prvi način jeste produžena ekspresija gena koji učestvuju u morfogenezi, i to tako da se njihova ekspresija nastavlja i tokom narednog razvojnog stadijuma, za koji ekspresija ovih gena nije karakteristična • primer: produžena ekspresija žutog gena kod Drosophila, nakon ekspresije u toku formiranja krila i krilne nervature, dovodi do formiranja tačkica na krilima • Ako je to gen koji kodira neki transkripcioni faktor, onda i njegovi target geni bivaju pokrenuti, što rezultira novim morfogenetskim procesom u daljem razvoju • Alternativno, razvojni obrazac, karakterističan za tačno određeni region embriona, može se aktivirati u drugom regionu, što dovodi do dupliranja date strukture
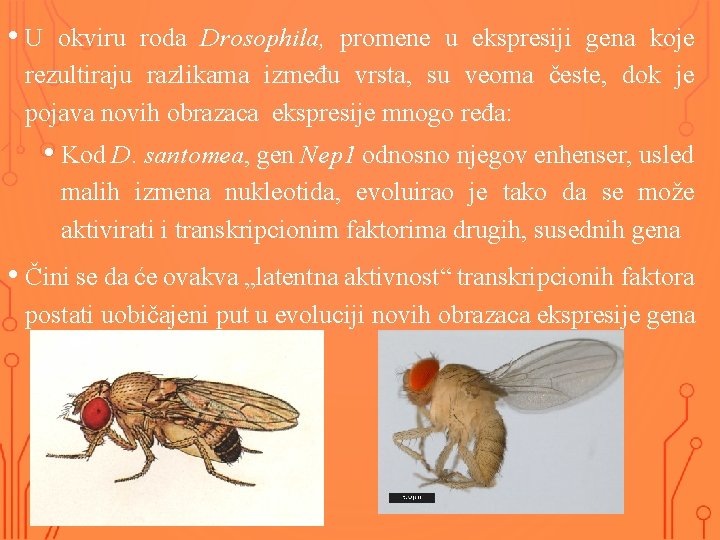
• U okviru roda Drosophila, promene u ekspresiji gena koje rezultiraju razlikama između vrsta, su veoma česte, dok je pojava novih obrazaca ekspresije mnogo ređa: • Kod D. santomea, gen Nep 1 odnosno njegov enhenser, usled malih izmena nukleotida, evoluirao je tako da se može aktivirati i transkripcionim faktorima drugih, susednih gena • Čini se da će ovakva „latentna aktivnost“ transkripcionih faktora postati uobičajeni put u evoluciji novih obrazaca ekspresije gena
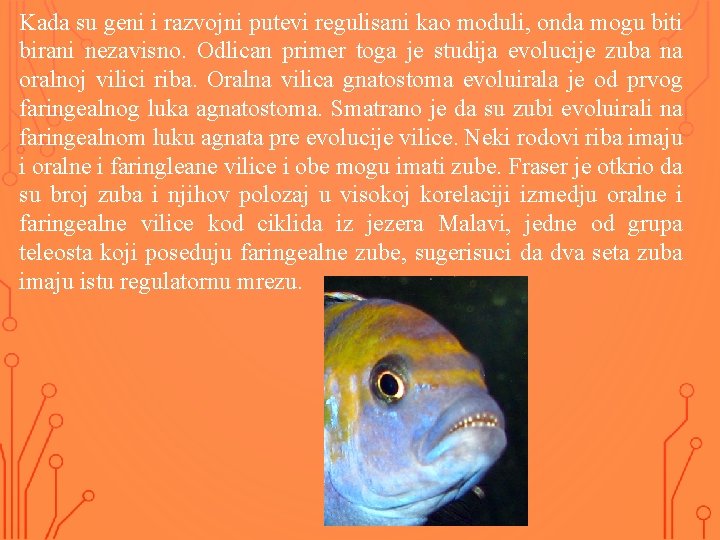
Kada su geni i razvojni putevi regulisani kao moduli, onda mogu biti birani nezavisno. Odlican primer toga je studija evolucije zuba na oralnoj vilici riba. Oralna vilica gnatostoma evoluirala je od prvog faringealnog luka agnatostoma. Smatrano je da su zubi evoluirali na faringealnom luku agnata pre evolucije vilice. Neki rodovi riba imaju i oralne i faringleane vilice i obe mogu imati zube. Fraser je otkrio da su broj zuba i njihov polozaj u visokoj korelaciji izmedju oralne i faringealne vilice kod ciklida iz jezera Malavi, jedne od grupa teleosta koji poseduju faringealne zube, sugerisuci da dva seta zuba imaju istu regulatornu mrezu.
Medjutim, uzvodni regulatori koji determinisu oralne i oni koji determinisu faringealne vilice su veoma razlliciti: razvoj faringealnog luka zahteva ucesce Hox gena, dok razvoj oralne vilice to ne zahteva. U stvari, gubitak ekspresije Hox gena se smatra jednim od glavnih genetickih faktora koji ucestvuju u evolucionom pojavljivanju oralne vilice. Prema tome, izgleda da je razvoj prvog zuba kod agnata bio regulisan Hox genima u zdrelu, ali da je ova mreza otisla pod drugu kontrolu tokom evolucije zuba na oralnoj vilici gnatostoma.
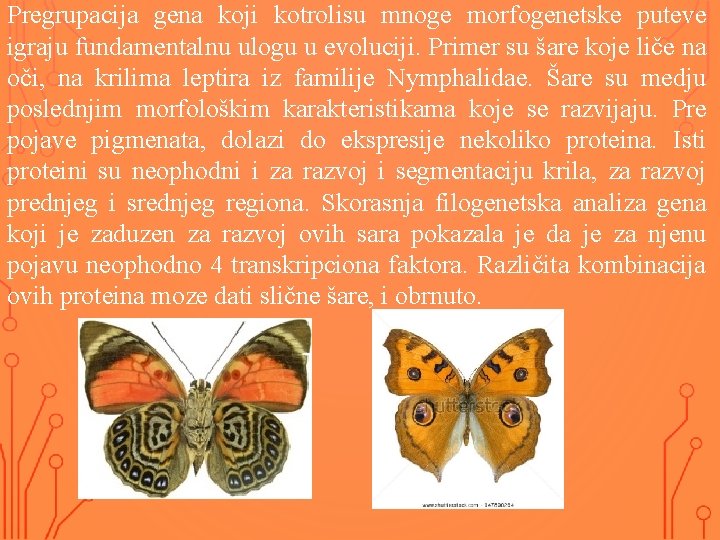
Pregrupacija gena koji kotrolisu mnoge morfogenetske puteve igraju fundamentalnu ulogu u evoluciji. Primer su šare koje liče na oči, na krilima leptira iz familije Nymphalidae. Šare su medju poslednjim morfološkim karakteristikama koje se razvijaju. Pre pojave pigmenata, dolazi do ekspresije nekoliko proteina. Isti proteini su neophodni i za razvoj i segmentaciju krila, za razvoj prednjeg i srednjeg regiona. Skorasnja filogenetska analiza gena koji je zaduzen za razvoj ovih sara pokazala je da je za njenu pojavu neophodno 4 transkripciona faktora. Različita kombinacija ovih proteina moze dati slične šare, i obrnuto.
EVOLUCIJA NOVINA • Kako je evolucija znatno izmenjenih karaktera moguća i kako nastaju nova svojstva? • Odnosno: Šta je genetska osnova takvih promena i da li, i u kolikoj meri, prirodna selekcija usmerava evoluciju novina?
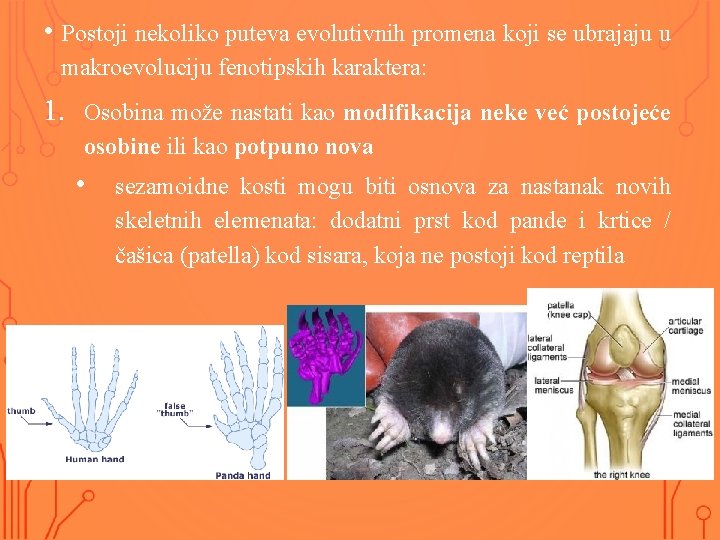
• Postoji nekoliko puteva evolutivnih promena koji se ubrajaju u makroevoluciju fenotipskih karaktera: 1. Osobina može nastati kao modifikacija neke već postojeće osobine ili kao potpuno nova • sezamoidne kosti mogu biti osnova za nastanak novih skeletnih elemenata: dodatni prst kod pande i krtice / čašica (patella) kod sisara, koja ne postoji kod reptila
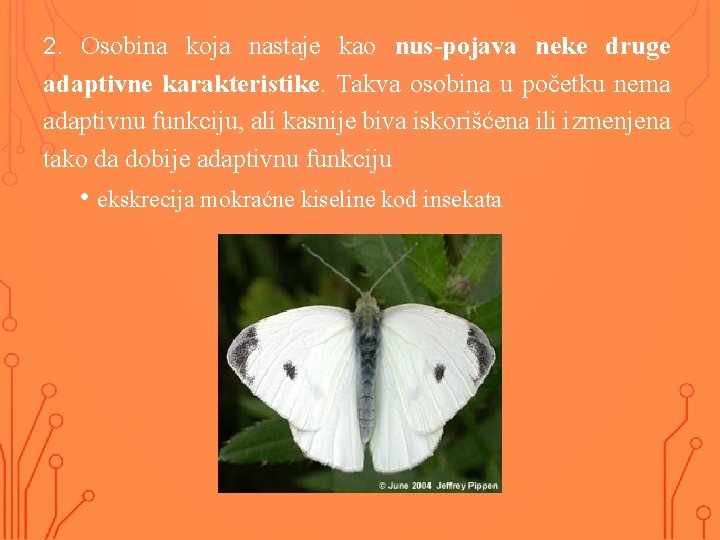
2. Osobina koja nastaje kao nus-pojava neke druge adaptivne karakteristike. Takva osobina u početku nema adaptivnu funkciju, ali kasnije biva iskorišćena ili izmenjena tako da dobije adaptivnu funkciju • ekskrecija mokraćne kiseline kod insekata
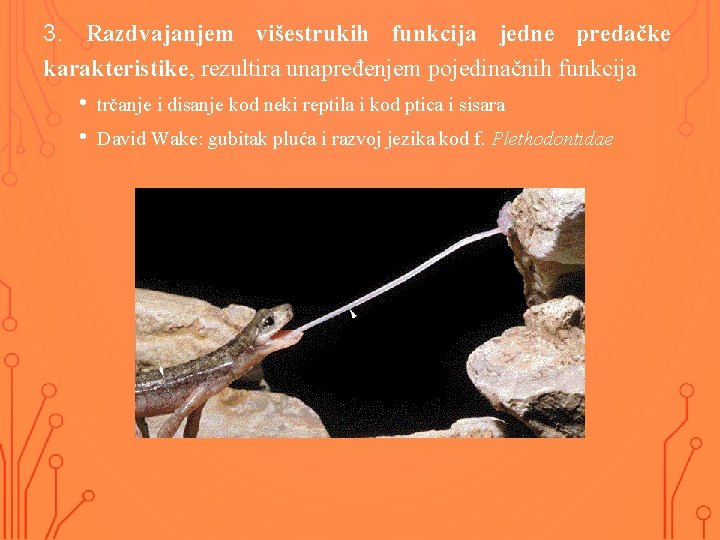
3. Razdvajanjem višestrukih funkcija jedne predačke karakteristike, rezultira unapređenjem pojedinačnih funkcija • • trčanje i disanje kod neki reptila i kod ptica i sisara David Wake: gubitak pluća i razvoj jezika kod f. Plethodontidae
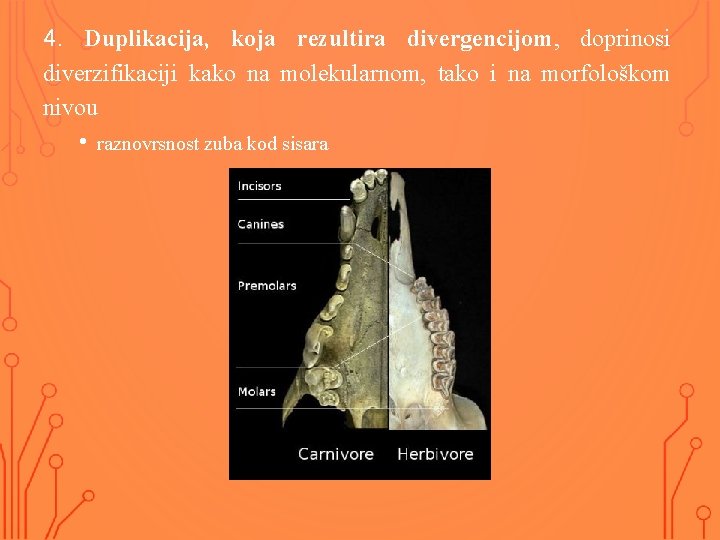
4. Duplikacija, koja rezultira divergencijom, doprinosi diverzifikaciji kako na molekularnom, tako i na morfološkom nivou • raznovrsnost zuba kod sisara
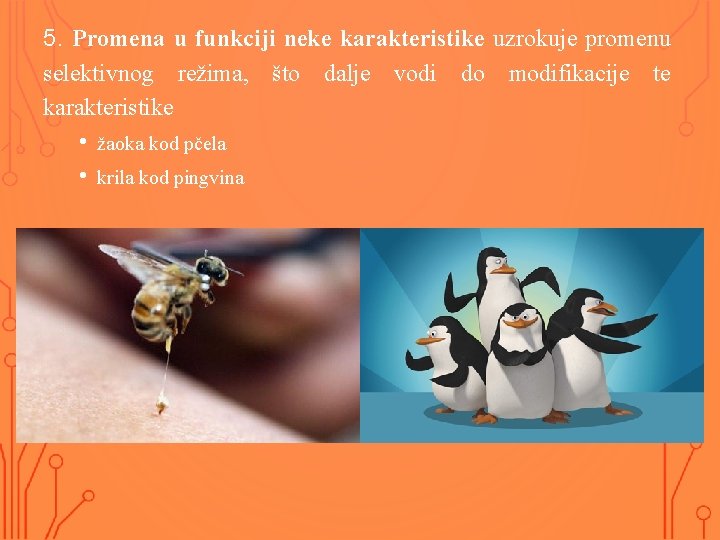
5. Promena u funkciji neke karakteristike uzrokuje promenu selektivnog režima, što dalje vodi do modifikacije te karakteristike • • žaoka kod pčela krila kod pingvina
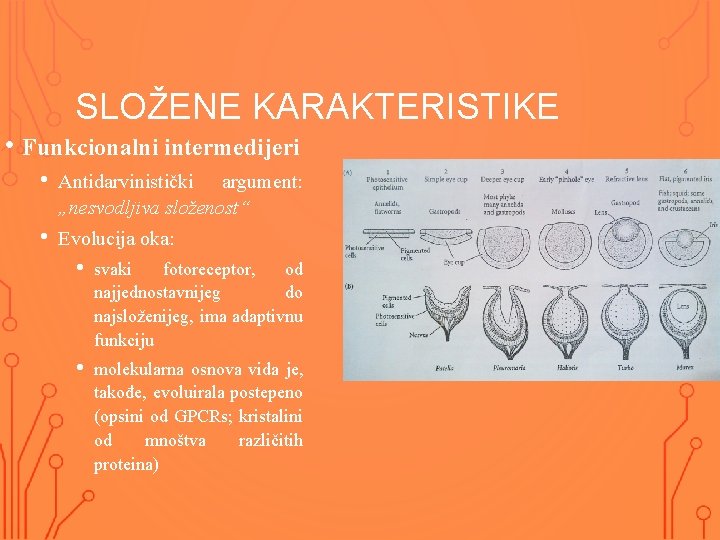
SLOŽENE KARAKTERISTIKE • Funkcionalni intermedijeri • Antidarvinistički argument: „nesvodljiva složenost“ • Evolucija oka: • svaki fotoreceptor, od najjednostavnijeg do najsloženijeg, ima adaptivnu funkciju • molekularna osnova vida je, takođe, evoluirala postepeno (opsini od GPCRs; kristalini od mnoštva različitih proteina)
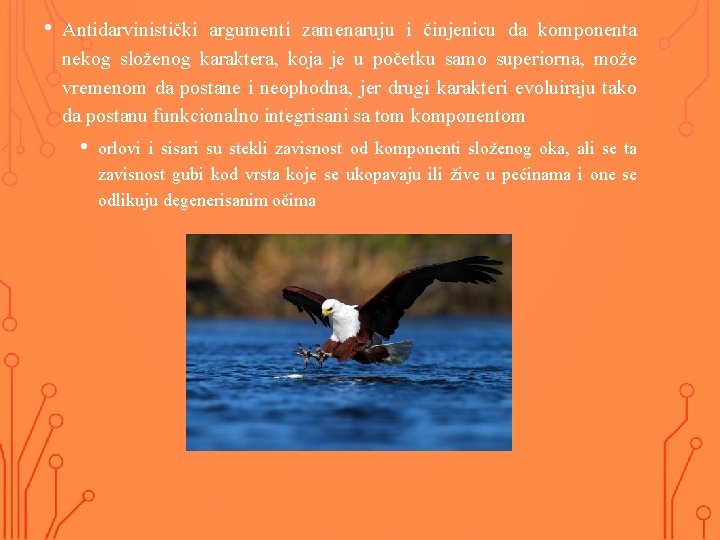
• Antidarvinistički argumenti zamenaruju i činjenicu da komponenta nekog složenog karaktera, koja je u početku samo superiorna, može vremenom da postane i neophodna, jer drugi karakteri evoluiraju tako da postanu funkcionalno integrisani sa tom komponentom • orlovi i sisari su stekli zavisnost od komponenti složenog oka, ali se ta zavisnost gubi kod vrsta koje se ukopavaju ili žive u pećinama i one se odlikuju degenerisanim očima
• Da bi se razumeli kompleksni sistemi, nekada se u nauci koristila disekcije, odn. rastavljanje sistema na nize sastavne komponente, njihova analizira, i na kraju rekonstrukcija elemenata veceg sistema. • Danas je razumevanje kompleksnosti evolucije fenotipova organizama dosta unapredjeno napretkom u molekularnoj, celijskoj i razvojnoj biologiji. • Sada znamo da je zivotinjski razvoj baziran na genima koji kodiraju transkripcione faktore i komponente signalnih puteva, i da su mnogi od njih sacuvani jos od nastanka prvih zivotinja, ili cak ranije. • Oko 79% gena misa, na primer, se mogu naci u homologom obliku u celom carstvu zivotinja, a datiraju jos iz Prekambrijuma. • Mnogi od ovih gena su sacuvali slicne funkcije, kao npr. Pax 6, koji inicira razvoj fotoreceptora, i Distal-less koji kontrolisu razvoj udova.
• Medjutim, znamo i da lokacija i vreme genske ekspresije mogu biti izmenjeni promenama u cis-regulatornim elementima gena koje regulisu transkripcioni faktori. • Takodje, promene u cis-regulatornim sekvencama mogu promeniti fnkcionalne veze izmedju kontrolisanog i kontrolnog gena. • Pr. Ø Distal-less Ø Ultrabithorax (Ubx) v Najmanja geneticka promena moze biti okidac za kaskadne promene u aktivnosti mnogih gena.
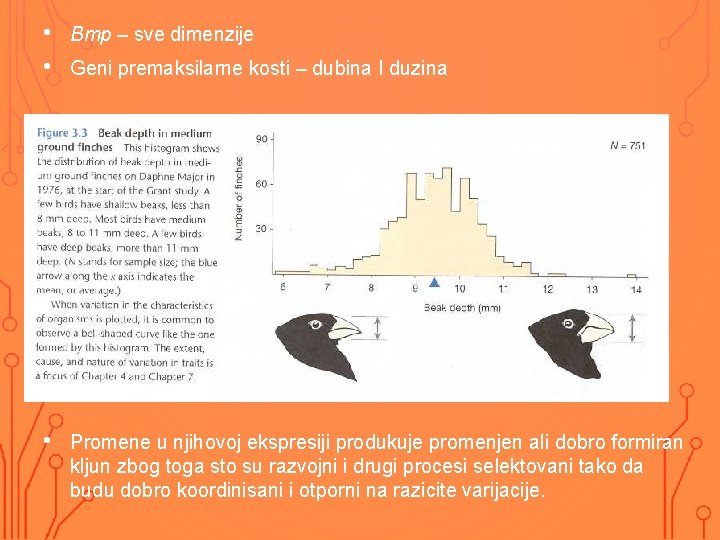
TEORIJA “OLAKSANE VARIJACIJE” • • Marc Kirschner i John Gerhart Osnovni procesi proteinske aktivnosti i celijskog i organskog razvoja su snazni I adaptibilni, I zajedno sa pojavom novih regulatornih interakcija izmedju gena sa velikim ucescem u bitnim procesima, izazivaju jacanje uticaja varijacija tako da one mogu “olaksati” evoluciju. • Pr. Ø razvoj misica, nerava, i krvnih sudova u udovima Ø velicina i oblik kljuna kod zeba sa Galapagosa roda Geospiza (Bmp)
• • Bmp – sve dimenzije • Promene u njihovoj ekspresiji produkuje promenjen ali dobro formiran kljun zbog toga sto su razvojni i drugi procesi selektovani tako da budu dobro koordinisani i otporni na razicite varijacije. Geni premaksilarne kosti – dubina I duzina
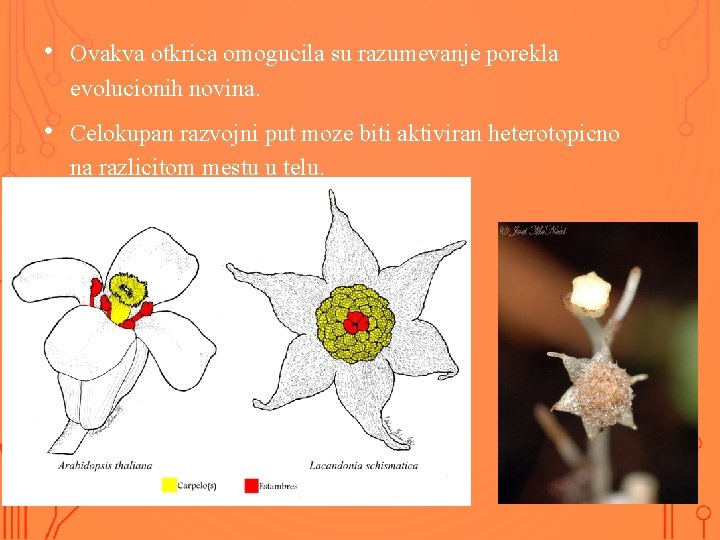
• Ovakva otkrica omogucila su razumevanje porekla evolucionih novina. • Celokupan razvojni put moze biti aktiviran heterotopicno na razlicitom mestu u telu.