
ESTs de frutilla involucrados en la interaccin incompatible
ESTs de frutilla involucrados en la interacción incompatible con Colletotrichum fragariae Juan C. Díaz Ricci, Ursula Tonello, Carlos Grellet y Atilio P. Castagnaro 2 1 Instituto Superior de Investigaciones Biológicas (INSIBIO), Universidad Nacional de Tucumán - CONICET, Chacabuco 461, 4000, Tucumán. 2 Sección Biotecnología, EEAOC, Las Talitas, 4101 - Tucumán, Argentina. Tel/Fax. : 054 -381 -4248921. Email: juan@fbqf. unt. edu. ar.
♦ ¿CUÁL ES LA PROBLEMÁTICA DE ORIGEN? ♦ ¿PUEDE LA BIOTECNOLOGÍA CONTRIBUIR A SOLUCIONAR EL PROBLEMA? ♦ ¿EN QUÉ MARCO CONCEPTUAL SE DESARROLLARÁ LA INVESTIGACIÓN?
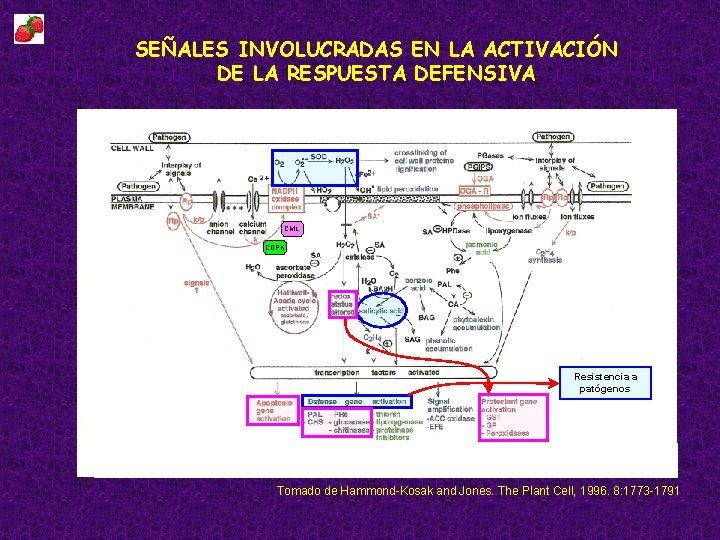
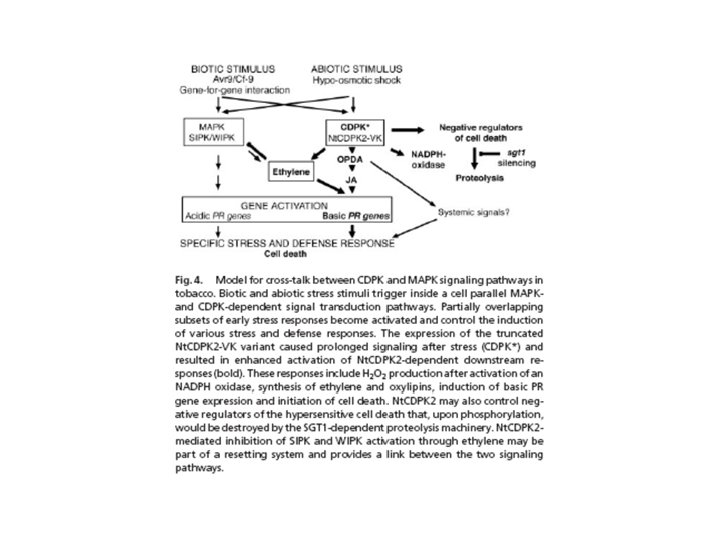
SEÑALES INVOLUCRADAS EN LA ACTIVACIÓN DE LA RESPUESTA DEFENSIVA CML CDPK Resistencia a patógenos Tomado de Hammond-Kosak and Jones. The Plant Cell, 1996. 8: 1773 -1791
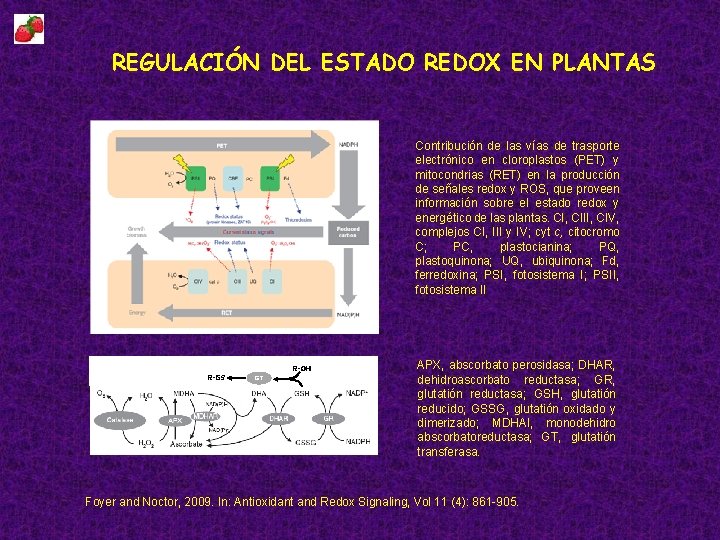
REGULACIÓN DEL ESTADO REDOX EN PLANTAS Contribución de las vías de trasporte electrónico en cloroplastos (PET) y mitocondrias (RET) en la producción de señales redox y ROS, que proveen información sobre el estado redox y energético de las plantas. CI, CIII, CIV, complejos CI, III y IV; cyt c, citocromo C; PC, plastocianina; PQ, plastoquinona; UQ, ubiquinona; Fd, ferredoxina; PSI, fotosistema I; PSII, fotosistema II R-OH R-GS GT APX, abscorbato perosidasa; DHAR, dehidroascorbato reductasa; GR, glutatión reductasa; GSH, glutatión reducido; GSSG, glutatión oxidado y dimerizado; MDHAI, monodehidro abscorbatoreductasa; GT, glutatión transferasa. Foyer and Noctor, 2009. In: Antioxidant and Redox Signaling, Vol 11 (4): 861 -905.
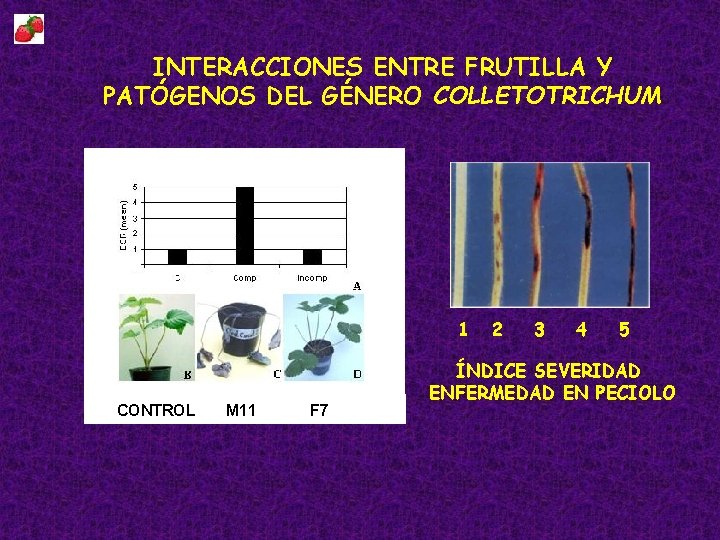
INTERACCIONES ENTRE FRUTILLA Y PATÓGENOS DEL GÉNERO COLLETOTRICHUM 1 CONTROL M 11 F 7 2 3 4 5 ÍNDICE SEVERIDAD ENFERMEDAD EN PECIOLO
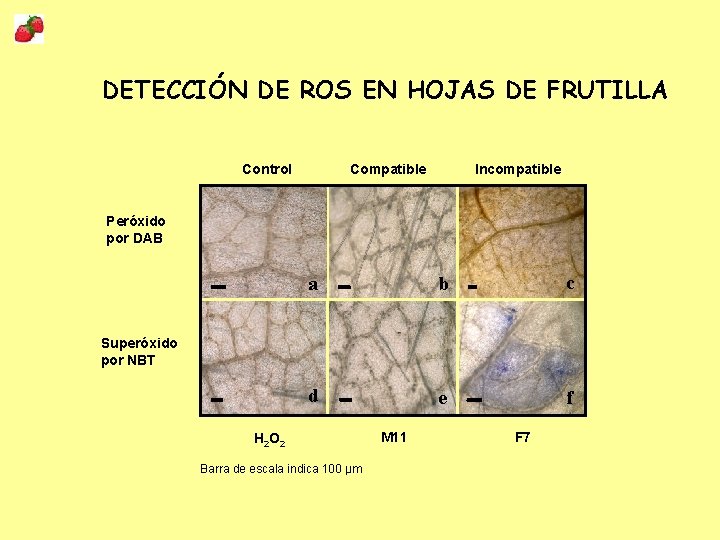
DETECCIÓN DE ROS EN HOJAS DE FRUTILLA Control Compatible Incompatible Peróxido por DAB a b c d e f Superóxido por NBT H 2 O 2 Barra de escala indica 100 µm M 11 F 7
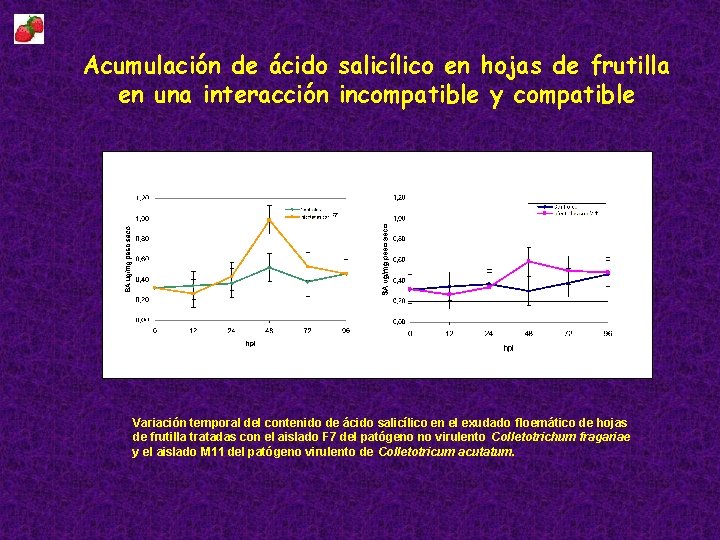
Acumulación de ácido salicílico en hojas de frutilla en una interacción incompatible y compatible F 7 Variación temporal del contenido de ácido salicílico en el exudado floemático de hojas de frutilla tratadas con el aislado F 7 del patógeno no virulento Colletotrichum fragariae y el aislado M 11 del patógeno virulento de Colletotricum acutatum.
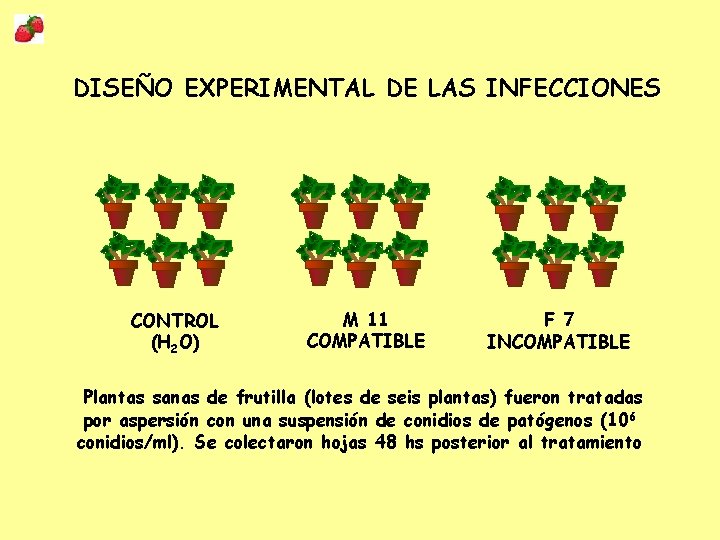
DISEÑO EXPERIMENTAL DE LAS INFECCIONES CONTROL (H 2 O) M 11 COMPATIBLE F 7 INCOMPATIBLE Plantas sanas de frutilla (lotes de seis plantas) fueron tratadas por aspersión con una suspensión de conidios de patógenos (106 conidios/ml). Se colectaron hojas 48 hs posterior al tratamiento
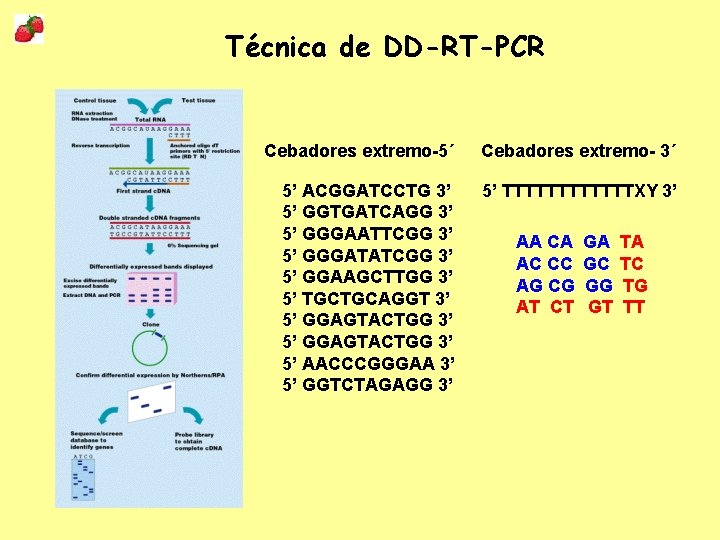
Técnica de DD-RT-PCR Cebadores extremo-5´ Cebadores extremo- 3´ 5’ ACGGATCCTG 3’ 5’ GGTGATCAGG 3’ 5’ GGGAATTCGG 3’ 5’ GGGATATCGG 3’ 5’ GGAAGCTTGG 3’ 5’ TGCTGCAGGT 3’ 5’ GGAGTACTGG 3’ 5’ AACCCGGGAA 3’ 5’ GGTCTAGAGG 3’ 5’ TTTTTTXY 3’ AA CA AC CC AG CG AT CT GA GC GG GT TA TC TG TT
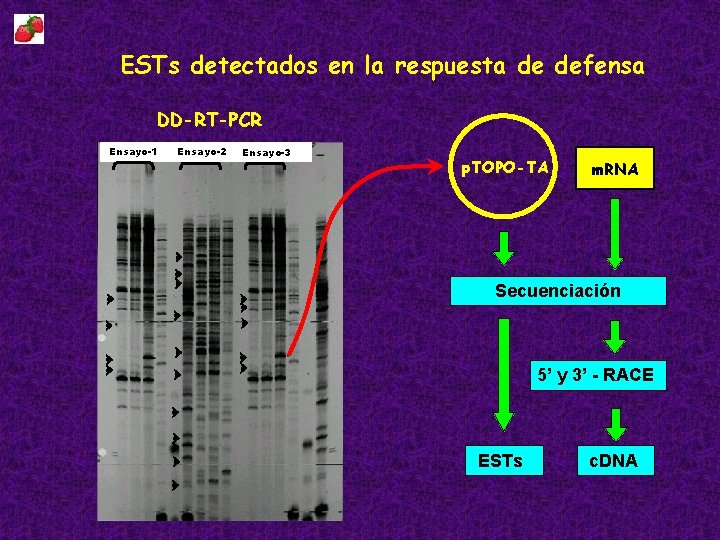
ESTs detectados en la respuesta de defensa DD-RT-PCR Ensayo-1 Ensayo-2 Ensayo-3 p. TOPO-TA m. RNA Secuenciación 5’ y 3’ - RACE ESTs c. DNA
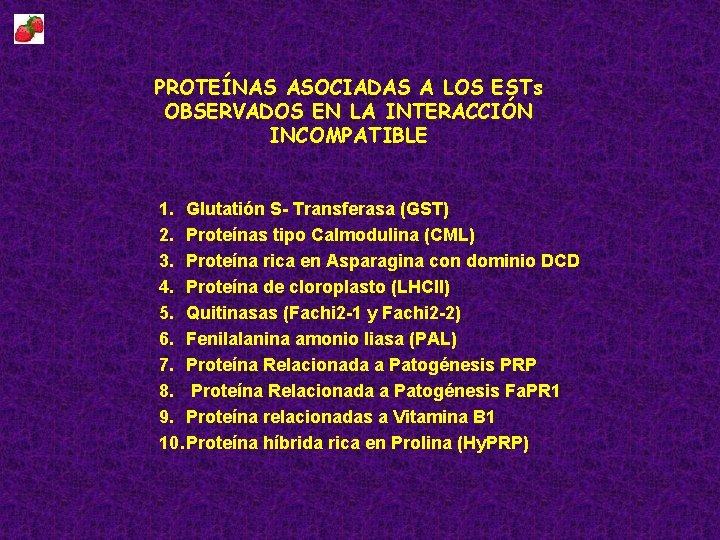
PROTEÍNAS ASOCIADAS A LOS ESTs OBSERVADOS EN LA INTERACCIÓN INCOMPATIBLE 1. Glutatión S- Transferasa (GST) 2. Proteínas tipo Calmodulina (CML) 3. Proteína rica en Asparagina con dominio DCD 4. Proteína de cloroplasto (LHCII) 5. Quitinasas (Fachi 2 -1 y Fachi 2 -2) 6. Fenilalanina amonio liasa (PAL) 7. Proteína Relacionada a Patogénesis PRP 8. Proteína Relacionada a Patogénesis Fa. PR 1 9. Proteína relacionadas a Vitamina B 1 10. Proteína híbrida rica en Prolina (Hy. PRP)
GLUTATIÓN S-TRANSFERASAS • Se trata de una superfamilia de Proteínas con miembros en diversos organismos aeróbicos desde bacterias hasta el hombre. • Están asociadas a la tolerancia al estrés y detoxificación de productos. • En bacterias estarían involucradas en la degradación químicos recalcitrantes y resistencia a antibióticos. • En plantas estarían involucradas en la detoxificación de herbicidas, polulantes orgánicos y toxinas naturales. • En mamíferos serían las responsables de la detoxificación de agentes oxidantes, carcinogénicos y quimioterapéuticos.
FUNCIONES ACTIVIDADES CATALÍTICAS - CONJUGACION DE SUSTRATOS ELECTROFILICOS A GSH - ISOMERIZACIONES DEPENDIENTES DE GSH - REDUCCION DE HIDROPEROXIDOS ORGANICOS ACTIVIDADES NO CATALITICAS - LIGANDINA DE HORMONAS, PORFIRINAS Y FLAVONOIDES - INHIBIDORA DE BAX - VIA DE TRANSDUCCION DE SEÑALES LUZ
GLUTATIÓN S-TRANSFERASAS SE DIVIDEN EN DISTINTAS CLASES SEGÚN: • Organización del gen: posición y número de intrones (Tipo I, III). • Similitud de secuencia de aminoácidos y conservación de residuos específicos en la proteína. • En plantas se encuentran las siguientes clases: Tau (1), Phi (2), Theta (6), Zeta (8 -9). • En animales se encuentran las siguientes clases: Alpha, Kappa, Mu, Pi, Sigma, Omega, Theta, Zeta.
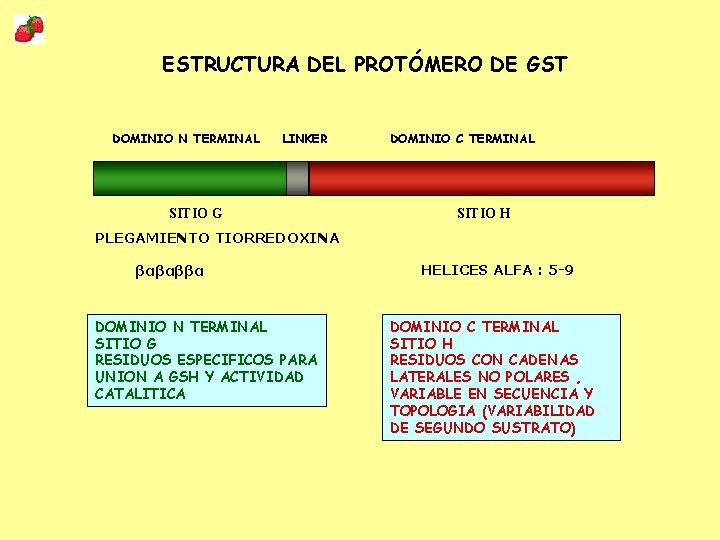
ESTRUCTURA DEL PROTÓMERO DE GST DOMINIO N TERMINAL LINKER SITIO G DOMINIO C TERMINAL SITIO H PLEGAMIENTO TIORREDOXINA βαβαββα DOMINIO N TERMINAL SITIO G RESIDUOS ESPECIFICOS PARA UNION A GSH Y ACTIVIDAD CATALITICA HELICES ALFA : 5 -9 DOMINIO C TERMINAL SITIO H RESIDUOS CON CADENAS LATERALES NO POLARES , VARIABLE EN SECUENCIA Y TOPOLOGIA (VARIABILIDAD DE SEGUNDO SUSTRATO)
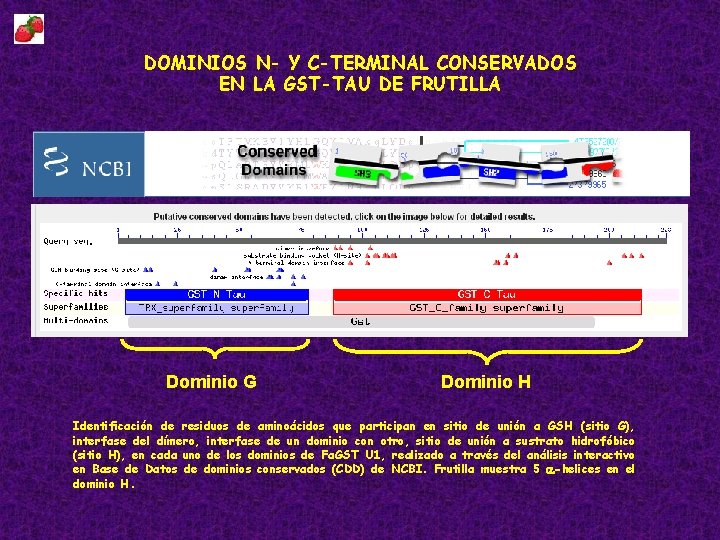
DOMINIOS N- Y C-TERMINAL CONSERVADOS EN LA GST-TAU DE FRUTILLA Dominio G Dominio H Identificación de residuos de aminoácidos que participan en sitio de unión a GSH (sitio G), interfase del dímero, interfase de un dominio con otro, sitio de unión a sustrato hidrofóbico (sitio H), en cada uno de los dominios de Fa. GST U 1, realizado a través del análisis interactivo en Base de Datos de dominios conservados (CDD) de NCBI. Frutilla muestra 5 a-helices en el dominio H.
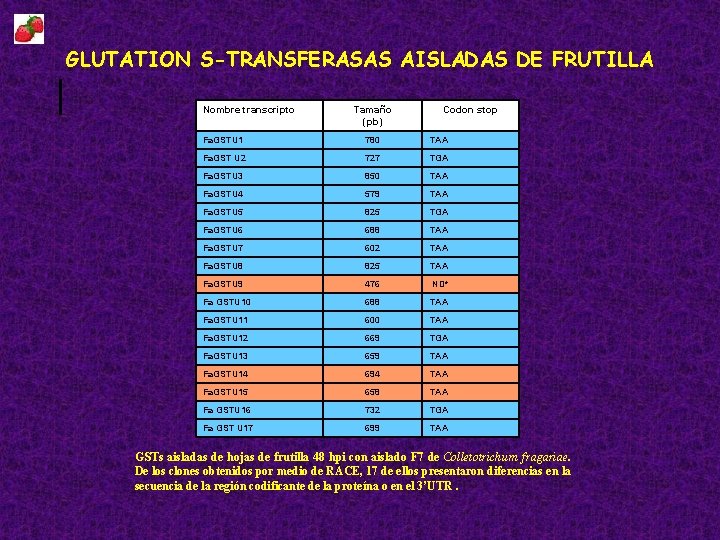
GLUTATION S-TRANSFERASAS AISLADAS DE FRUTILLA | Nombre transcripto Tamaño (pb) Codon stop Fa. GSTU 1 780 TAA Fa. GST U 2 727 TGA Fa. GSTU 3 850 TAA Fa. GSTU 4 579 TAA Fa. GSTU 5 825 TGA Fa. GSTU 6 688 TAA Fa. GSTU 7 602 TAA Fa. GSTU 8 825 TAA Fa. GSTU 9 476 ND* Fa GSTU 10 688 TAA Fa. GSTU 11 600 TAA Fa. GSTU 12 669 TGA Fa. GSTU 13 659 TAA Fa. GSTU 14 694 TAA Fa. GSTU 15 658 TAA Fa GSTU 16 732 TGA Fa GST U 17 699 TAA GSTs aisladas de hojas de frutilla 48 hpi con aislado F 7 de Colletotrichum fragariae. De los clones obtenidos por medio de RACE, 17 de ellos presentaron diferencias en la secuencia de la región codificante de la proteína o en el 3’UTR.
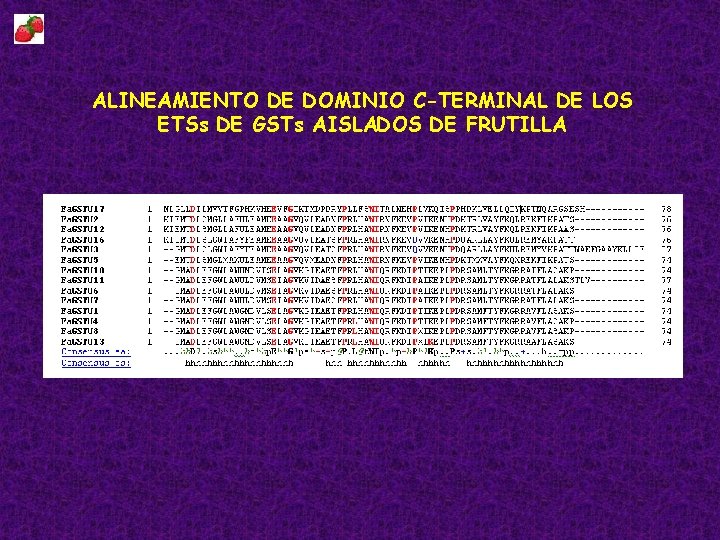
ALINEAMIENTO DE DOMINIO C-TERMINAL DE LOS ETSs DE GSTs AISLADOS DE FRUTILLA
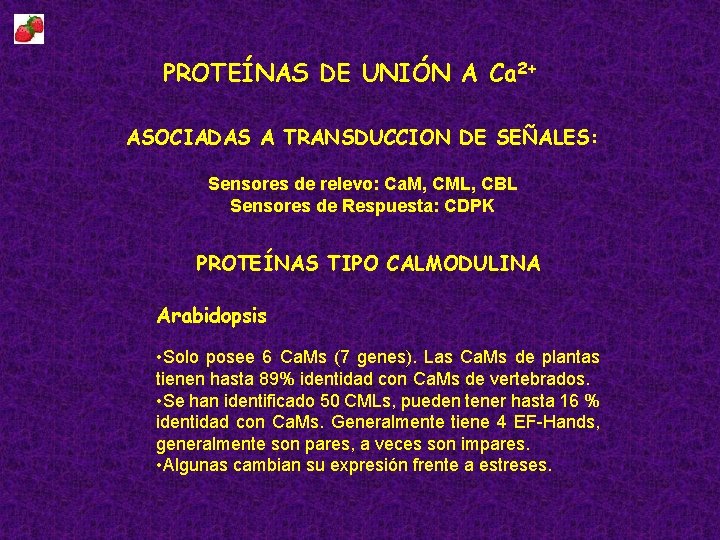
PROTEÍNAS DE UNIÓN A Ca 2+ ASOCIADAS A TRANSDUCCION DE SEÑALES: Sensores de relevo: Ca. M, CML, CBL Sensores de Respuesta: CDPK PROTEÍNAS TIPO CALMODULINA Arabidopsis • Solo posee 6 Ca. Ms (7 genes). Las Ca. Ms de plantas tienen hasta 89% identidad con Ca. Ms de vertebrados. • Se han identificado 50 CMLs, pueden tener hasta 16 % identidad con Ca. Ms. Generalmente tiene 4 EF-Hands, generalmente son pares, a veces son impares. • Algunas cambian su expresión frente a estreses.
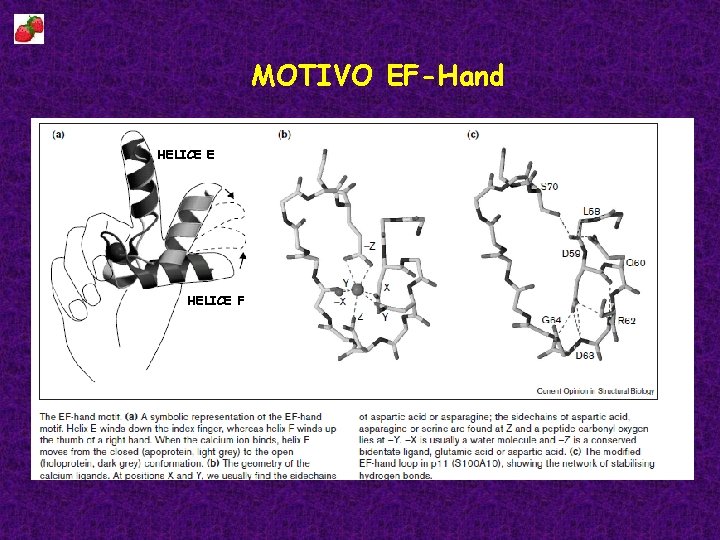
MOTIVO EF-Hand HELICE E HELICE F
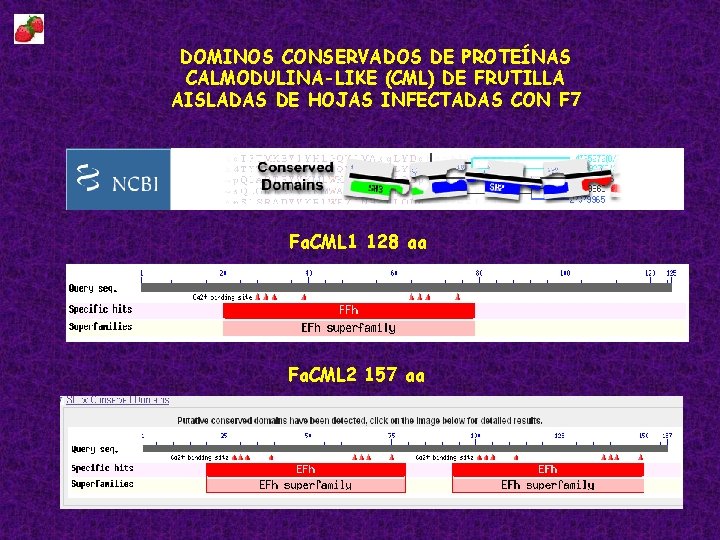
DOMINOS CONSERVADOS DE PROTEÍNAS CALMODULINA-LIKE (CML) DE FRUTILLA AISLADAS DE HOJAS INFECTADAS CON F 7 Fa. CML 1 128 aa Fa. CML 2 157 aa
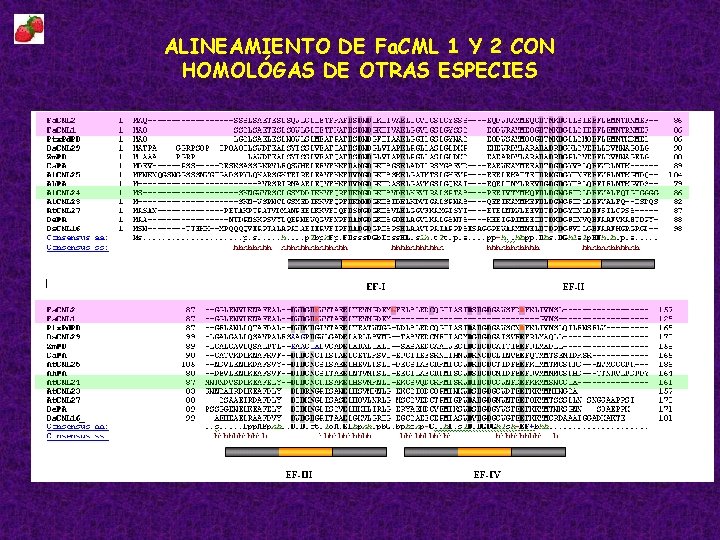
ALINEAMIENTO DE Fa. CML 1 Y 2 CON HOMOLÓGAS DE OTRAS ESPECIES
PROTEÍNAS RICAS EN ASPARAGINA CON DOMINIO DCD • Son proteínas involucradas en Desarrollo y muerte celular (Cell Death”) • Son específicas de plantas. Fueron descriptas por primera vez en soja (Tenhaken, Eur. J. Plant Pathol. 107: 323 -326, 2001). • Arabidopsis contiene 11 miembros, en tanto que arroz 7 • El dominio DCD contiene aproximadamente 130 aminoácidos, con motivos conservados FGLP LFL cerca del extremo N-terminal y PLx. E cerca del C-terminal. • La estructura secundaria está compuesta principalmente por láminas b y una hélice a en los extremos N-terminal y C-terminal
PROTEÍNA RICA EN ASPARAGINA CON DOMINIO DCD EN RESPUESTA DE DEFENSA • En soja se aisló un gen inducido fuertemente durante HR • No depende directamente a AS, pero puede ser amplificado en su presencia. • La proteína presenta dos dominios: N-terminal rico en Asparagina (N) y C-terminal DCD. • Su expresión se observa en interacción incompatible pero no en compatible. (Tenhaken, Eur. J. Plant Pathol. 107: 323 -326, 2001). • No se conoce aún su función. Se expresaría en pared celular.
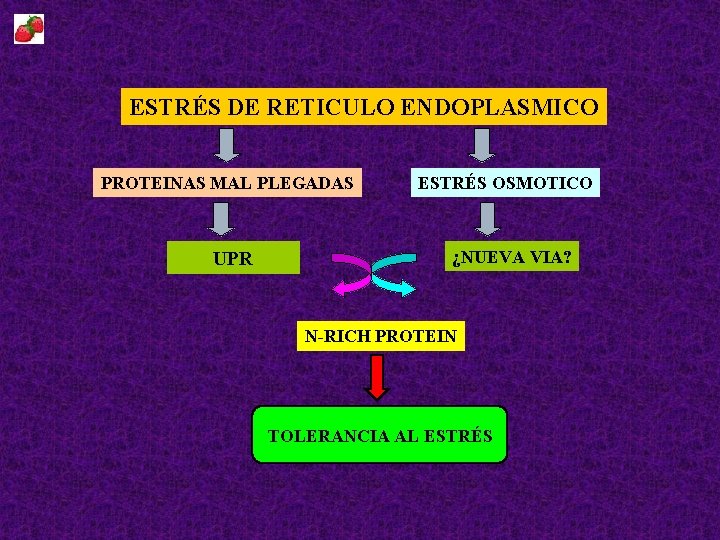
ESTRÉS DE RETICULO ENDOPLASMICO PROTEINAS MAL PLEGADAS UPR ESTRÉS OSMOTICO ¿NUEVA VIA? N-RICH PROTEIN TOLERANCIA AL ESTRÉS
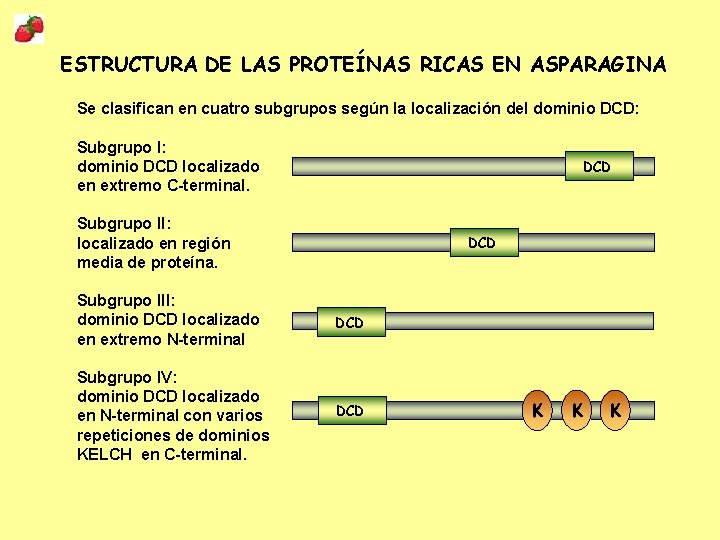
ESTRUCTURA DE LAS PROTEÍNAS RICAS EN ASPARAGINA Se clasifican en cuatro subgrupos según la localización del dominio DCD: Subgrupo I: dominio DCD localizado en extremo C-terminal. DCD Subgrupo II: localizado en región media de proteína. DCD Subgrupo III: dominio DCD localizado en extremo N-terminal DCD Subgrupo IV: dominio DCD localizado en N-terminal con varios repeticiones de dominios KELCH en C-terminal. DCD K K K
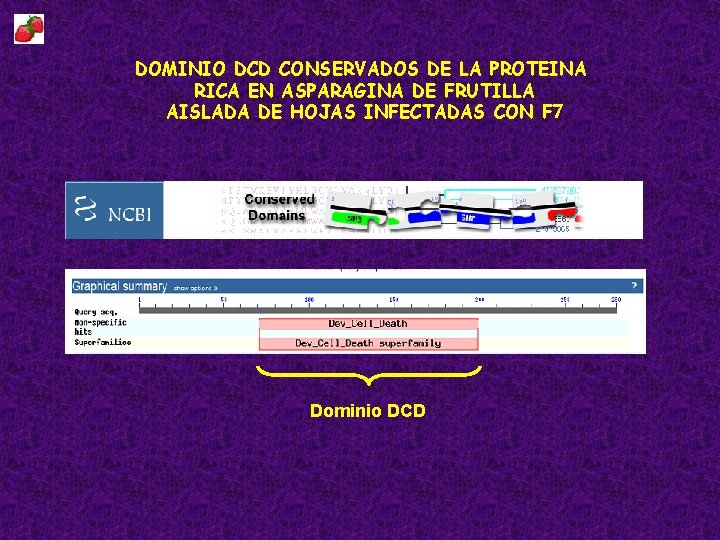
DOMINIO DCD CONSERVADOS DE LA PROTEINA RICA EN ASPARAGINA DE FRUTILLA AISLADA DE HOJAS INFECTADAS CON F 7 Dominio DCD
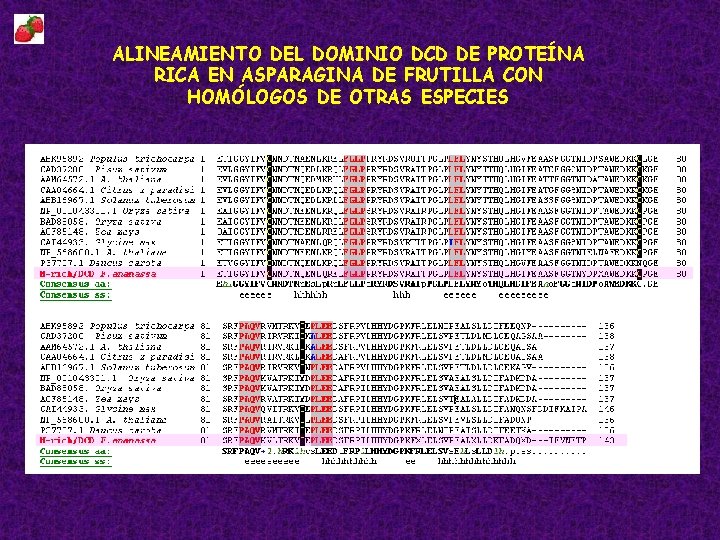
ALINEAMIENTO DEL DOMINIO DCD DE PROTEÍNA RICA EN ASPARAGINA DE FRUTILLA CON HOMÓLOGOS DE OTRAS ESPECIES
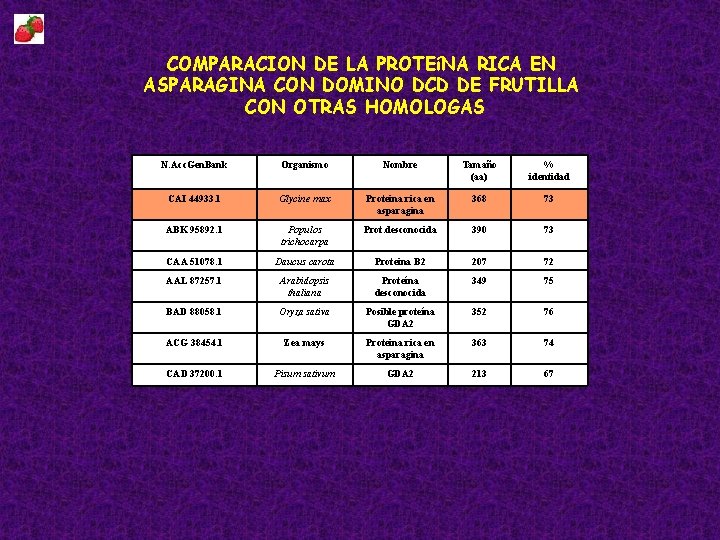
COMPARACION DE LA PROTEíNA RICA EN ASPARAGINA CON DOMINO DCD DE FRUTILLA CON OTRAS HOMOLOGAS N. Acc. Gen. Bank Organismo Nombre Tamaño (aa) % identidad CAI 44933. 1 Glycine max Proteina rica en asparagina 368 73 ABK 95892. 1 Populos trichocarpa Prot. desconocida 390 73 CAA 51078. 1 Daucus carota Proteina B 2 207 72 AAL 87257. 1 Arabidopsis thaliana Proteína desconocida 349 75 BAD 88058. 1 Oryza sativa Posible proteína GDA 2 352 76 ACG 38454. 1 Zea mays Proteina rica en asparagina 363 74 CAD 37200. 1 Pisum sativum GDA 2 213 67
PROTEÍNA DEL COMPLEJO CAPTADOR DE LUZ DEL FOTOSISTEMA II (LHCP II) • En plantas, los complejos captadores de luz (LHCs o light-harvesting complexes) están localizados en la membrana tilacoidal de cloroplastos. • Absorben la energía lumínica para los centros de reacción fotoquímica. • LHCPII es la principal proteína del complejo en el fotosistema II en plantas verdes • Codificado por familia de genes nucleares. • Se sintetiza como un polipéptido precursor en ribosomas libres citoplasmáticos. • Su péptido señal es reconocido por el cloroplasto, donde es clivado, así el polipéptido maduro es importado en dicha organela, acomplejándose a moléculas de clorofila e insertado en la membrana tilacoidal.
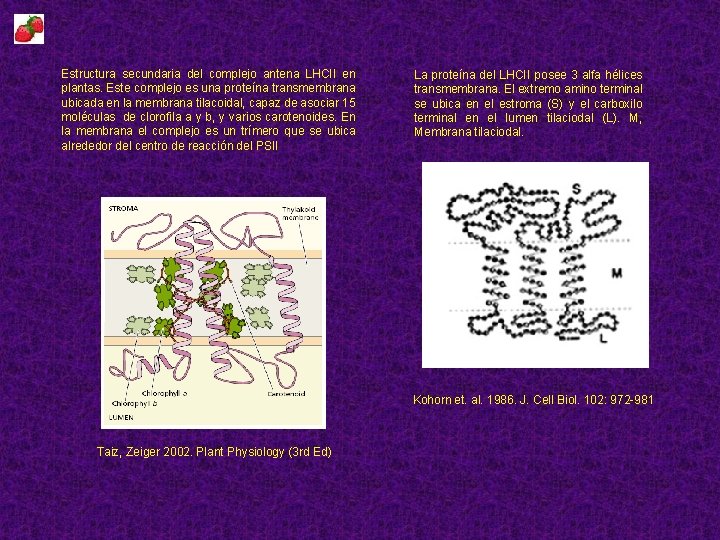
Estructura secundaria del complejo antena LHCII en plantas. Este complejo es una proteína transmembrana ubicada en la membrana tilacoidal, capaz de asociar 15 moléculas de clorofila a y b, y varios carotenoides. En la membrana el complejo es un trímero que se ubica alrededor del centro de reacción del PSII La proteína del LHCII posee 3 alfa hélices transmembrana. El extremo amino terminal se ubica en el estroma (S) y el carboxilo terminal en el lumen tilaciodal (L). M, Membrana tilaciodal. Kohorn et. al. 1986. J. Cell Biol. 102: 972 -981 Taiz, Zeiger 2002. Plant Physiology (3 rd Ed)
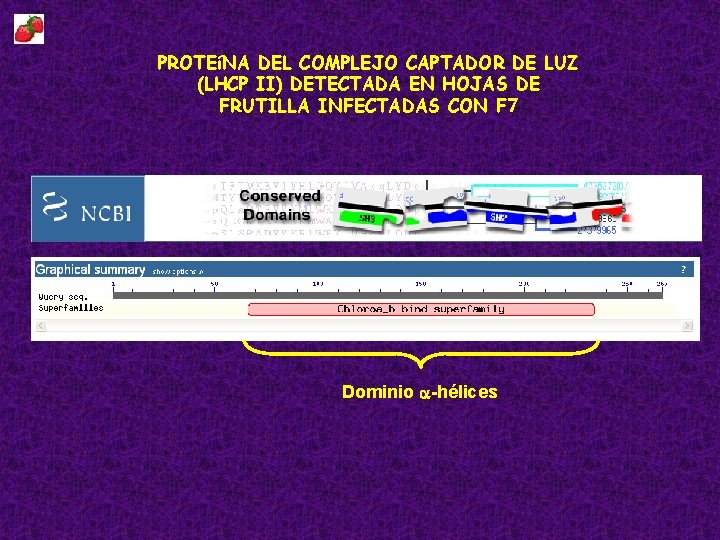
PROTEíNA DEL COMPLEJO CAPTADOR DE LUZ (LHCP II) DETECTADA EN HOJAS DE FRUTILLA INFECTADAS CON F 7 Dominio a-hélices
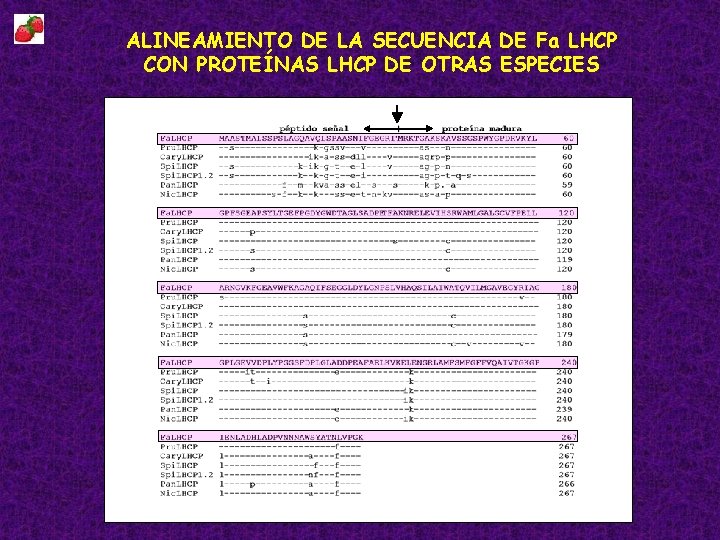
ALINEAMIENTO DE LA SECUENCIA DE Fa LHCP CON PROTEÍNAS LHCP DE OTRAS ESPECIES c
QUITINASAS TIPO II • Las quitinasas de plantas pertenecen a distintas familias de proteínas PRs, de acuerdo su secuencia de aminoácidos y estructura. • Tienen un efecto directo sobre patógenos fúngicos, catalizando la hidrólisis de la quitina de la pared de hongos, generando al mismo tiempo fragmentos con actividad elicitora. • Las quitinasas tipo II se caracterizan por la ausencia del dominio de unión a quitina (CBD o chitin-biding domain) presente en otros tipos de quitinasas. • Fachi 2; 1 y Fachi 2; 2 son quitinasas tipo II que ya fueron caracterizadas en plantas de frutilla, cuya expresión es inducida por infecciones de hongos del genero Colletotrichum (Khan A et. al. 2004. Plant. Science 166: 753 -762)
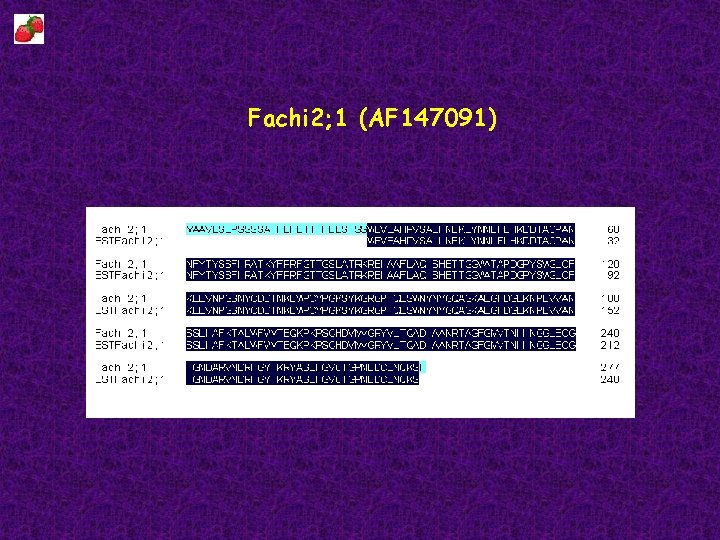
Fachi 2; 1 (AF 147091)
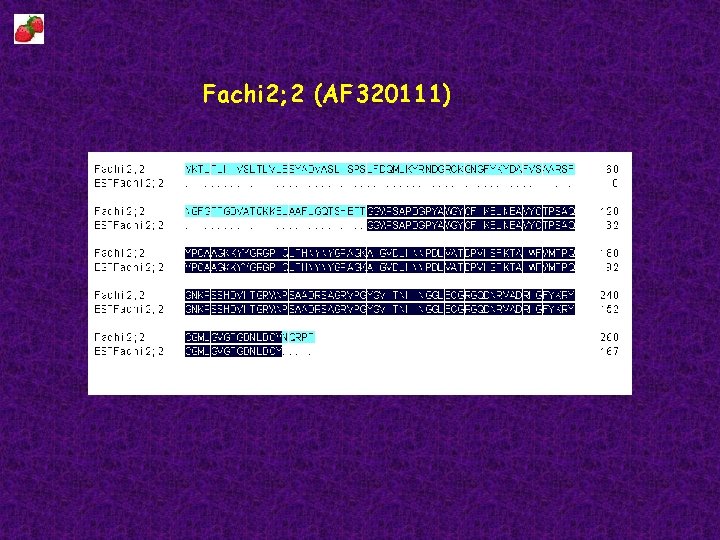
Fachi 2; 2 (AF 320111)
FENILALANINA AMONIO LIASA (PAL) • Pertenece a una superfamilia de enzimas Liasa clase I, que catalizan reacciones de beta eliminación y son activas como homotetrámeros. • Esta enzima en particular cataliza la eliminación del grupo –NH 2 del C-a del aminoácido fenilalanina. • Es la principal enzima en la vía de fenilpropanoides, a partir de la cual por vías secundarias se sintetizan importantes compuestos como el Acido Salicílico y otros compuestos fenólicos, ligninas, flavonoides y fitoalexinas. • Suele inducirse por infecciones fúngicas, para promover la síntesis y acumulación de acido salicílico y desencadenar SAR, como se observó en plantas de frutilla. (Usami, et al. , 2007. Cloning of disease resistance response genes of strawberry. Published Only in Database Gen. Bank: AB 360390. 1)
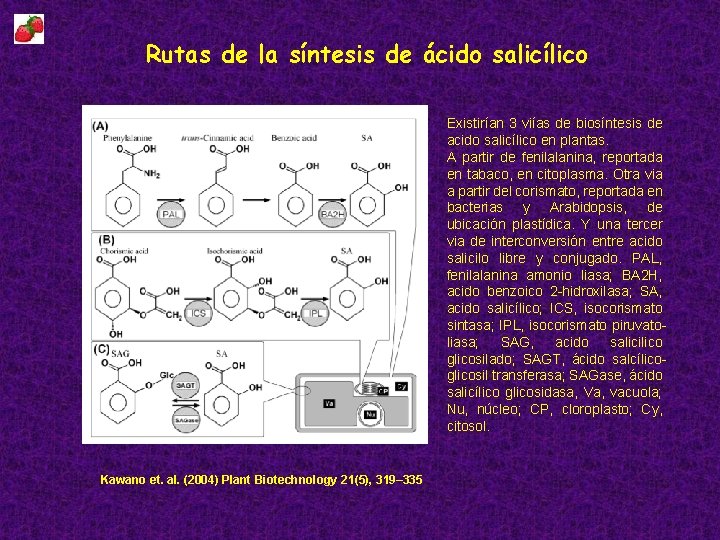
Rutas de la síntesis de ácido salicílico Existirían 3 viías de biosíntesis de acido salicílico en plantas. A partir de fenilalanina, reportada en tabaco, en citoplasma. Otra via a partir del corismato, reportada en bacterias y Arabidopsis, de ubicación plastídica. Y una tercer via de interconversión entre acido salicilo libre y conjugado. PAL, fenilalanina amonio liasa; BA 2 H, acido benzoico 2 -hidroxilasa; SA, acido salicílico; ICS, isocorismato sintasa; IPL, isocorismato piruvatoliasa; SAG, acido salicilico glicosilado; SAGT, ácido salcílicoglicosil transferasa; SAGase, ácido salicílico glicosidasa, Va, vacuola; Nu, núcleo; CP, cloroplasto; Cy, citosol. Kawano et. al. (2004) Plant Biotechnology 21(5), 319– 335
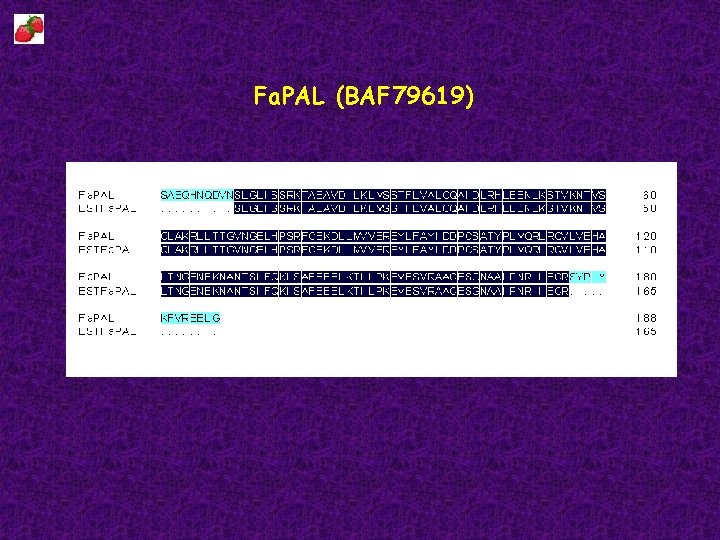
Fa. PAL (BAF 79619)
PROTEÍNA RELACIONADA A PATOGENESIS EN RESPUESTA DE DEFENSA (PRP) • Pertenece a la Super. Familia de Factores de Transporte Nuclear 2 (NTF 2). CDD: 10855. (181 aa). • Se piensa que participa en la transducción de señales que llevan a SAR. • Fue aislado en plantas de pepino tratadas con BTH y luego infectado con Colletotrichum. Bovie C, Ongena M, Thonhart P, Dommes J. (2004) Cloning and expression analysis of c. DNAs orresponding to genes activated in cucumber showing systemic acquired ressitance after BTH treatment. BMC Plant Biology 4: 15
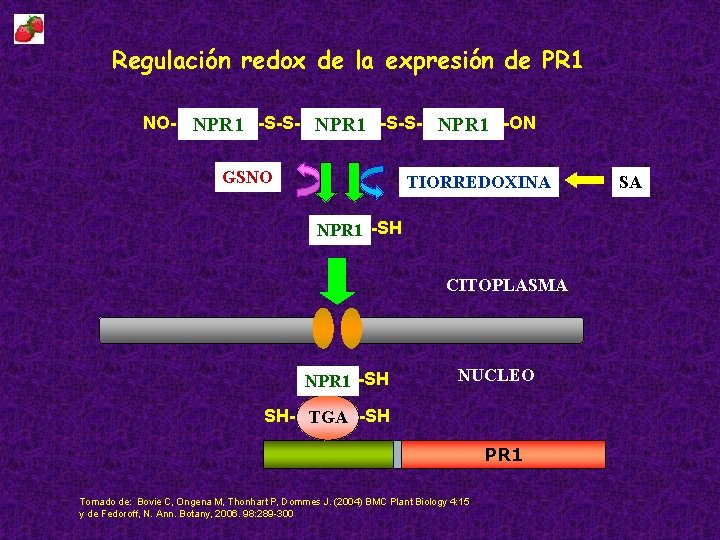
Regulación redox de la expresión de PR 1 NO- NPR 1 -S-S- NPR 1 -ON GSNO TIORREDOXINA NPR 1 -SH CITOPLASMA NPR 1 -SH NUCLEO SH- TGA -SH PR 1 Tomado de: Bovie C, Ongena M, Thonhart P, Dommes J. (2004) BMC Plant Biology 4: 15 y de Fedoroff, N. Ann. Botany, 2006. 98: 289 -300 SA
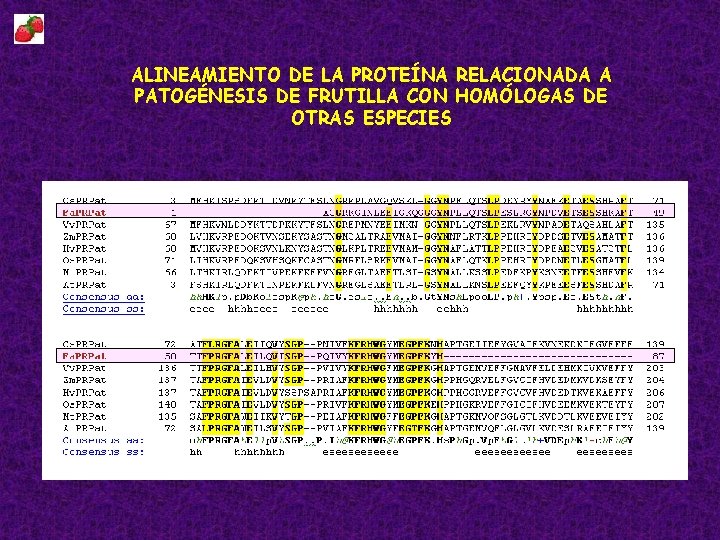
ALINEAMIENTO DE LA PROTEÍNA RELACIONADA A PATOGÉNESIS DE FRUTILLA CON HOMÓLOGAS DE OTRAS ESPECIES
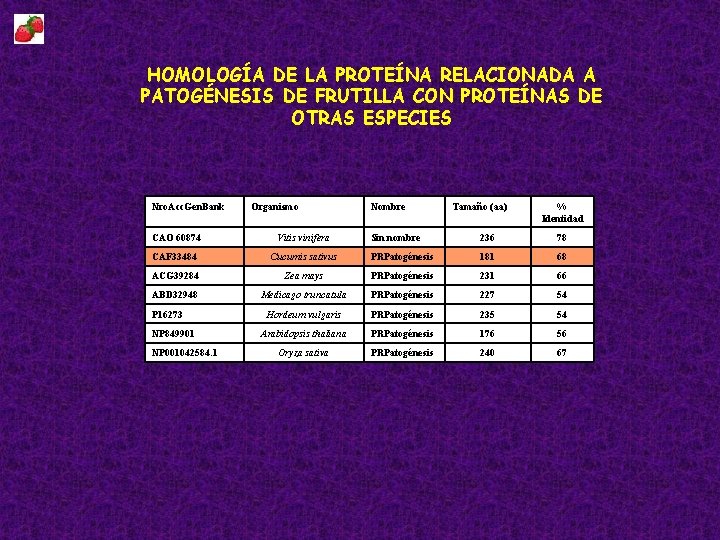
HOMOLOGÍA DE LA PROTEÍNA RELACIONADA A PATOGÉNESIS DE FRUTILLA CON PROTEÍNAS DE OTRAS ESPECIES Nro. Acc. Gen. Bank Organismo CAO 60874 Vitis vinifera CAF 33484 Nombre Tamaño (aa) % Identidad Sin nombre 236 78 Cucumis sativus PRPatogénesis 181 68 ACG 39284 Zea mays PRPatogénesis 231 66 ABD 32948 Medicago truncatula PRPatogénesis 227 54 Hordeum vulgaris PRPatogénesis 235 54 Arabidopsis thaliana PRPatogénesis 176 56 Oryza sativa PRPatogénesis 240 67 P 16273 NP 849901 NP 001042584. 1
PROTEINA TIPO PR 1 • Las proteínas que pertenecen a la familia PR-1 en plantas (type 1 pathogenesis-related proteins) son inducidas por patógenos o por acido salicílico, y es usualmente utilizado como marcador de SAR. • Su función aun no esta dilucidada, posee cierta actividad antifúngica e incluso esta involucrada en la flexibilización de la pared celular. • La proteína inmadura posee un péptido señal hidrofóbico para ser clivado e internalizado en el retículo endoplásmico, ya que es una proteína de secreción. • Las proteínas tipo PR 1 poseen alrededor de 135 aa, con 6 cisteínas muy conservadas que determinan su plegamiento mediante puentes disulfuro. Van Loon and Van Serien, 1999. Plant Pathol. 55: 85 -97.
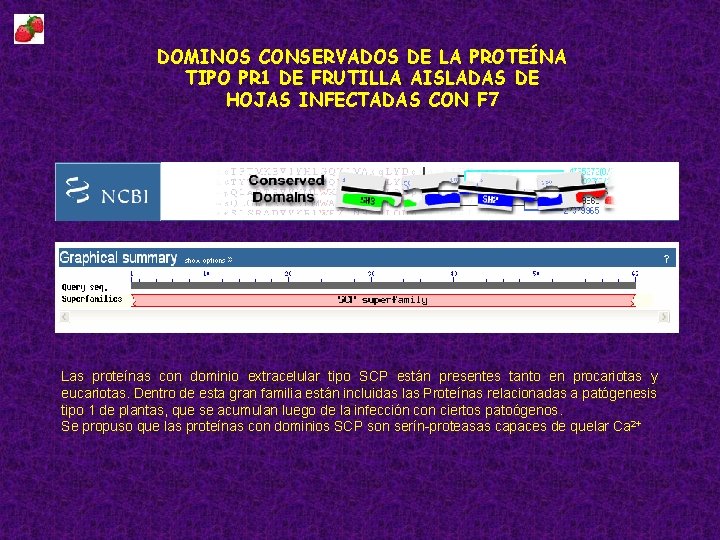
DOMINOS CONSERVADOS DE LA PROTEÍNA TIPO PR 1 DE FRUTILLA AISLADAS DE HOJAS INFECTADAS CON F 7 Las proteínas con dominio extracelular tipo SCP están presentes tanto en procariotas y eucariotas. Dentro de esta gran familia están incluidas las Proteínas relacionadas a patógenesis tipo 1 de plantas, que se acumulan luego de la infección con ciertos patoógenos. Se propuso que las proteínas con dominios SCP son serín-proteasas capaces de quelar Ca 2+
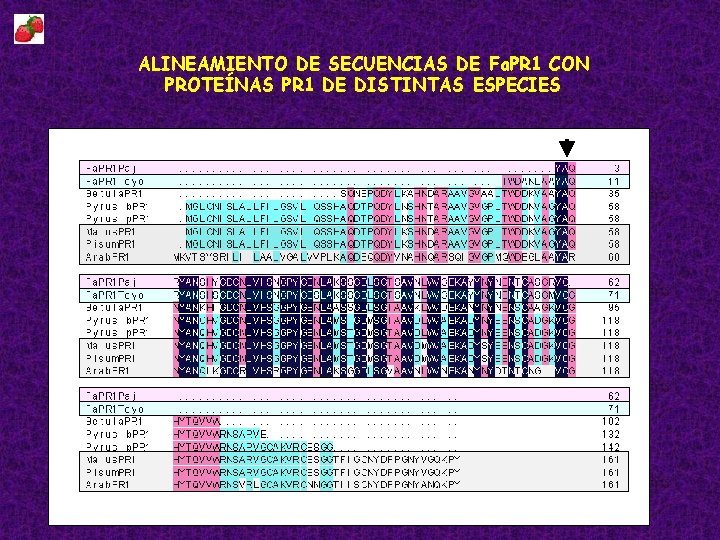
ALINEAMIENTO DE SECUENCIAS DE Fa. PR 1 CON PROTEÍNAS PR 1 DE DISTINTAS ESPECIES
PROTEíNAS DE PARED CELULAR GLICOPROTEINAS RICAS EN HIDROXIPROLINA (GPRP) PROTEINAS RICAS EN GLICINA (GRP) PROTEINAS RICAS EN PROLINA (PRP) PROTEINAS ESTRUCTURALES PARED CELULAR PROTEÍNAS HIBRIDAS RICAS EN PROLINA (Hy. PRP) QUINASAS DE PARED CELULAR (WAK) PROTEINAS ARABINOGALACTANO PROTEINAS CON ACTIVIDAD ENZIMATICA
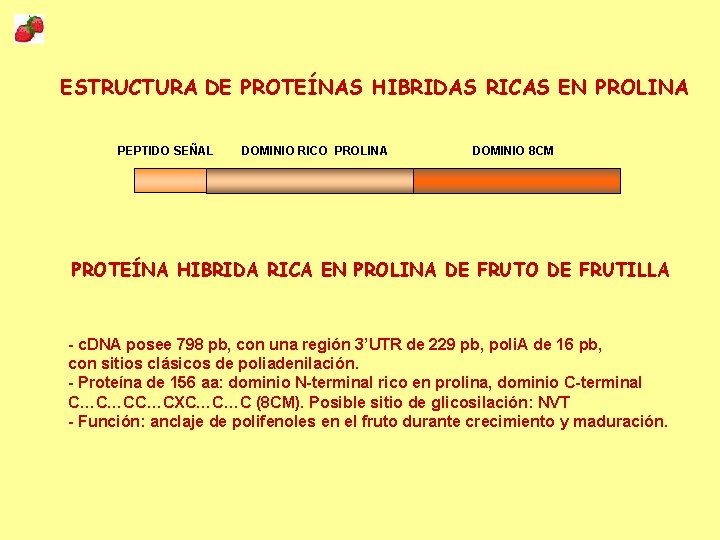
ESTRUCTURA DE PROTEÍNAS HIBRIDAS RICAS EN PROLINA PEPTIDO SEÑAL DOMINIO RICO PROLINA DOMINIO 8 CM PROTEÍNA HIBRIDA RICA EN PROLINA DE FRUTO DE FRUTILLA - c. DNA posee 798 pb, con una región 3’UTR de 229 pb, poli. A de 16 pb, con sitios clásicos de poliadenilación. - Proteína de 156 aa: dominio N-terminal rico en prolina, dominio C-terminal C…C…CC…CXC…C…C (8 CM). Posible sitio de glicosilación: NVT - Función: anclaje de polifenoles en el fruto durante crecimiento y maduración.
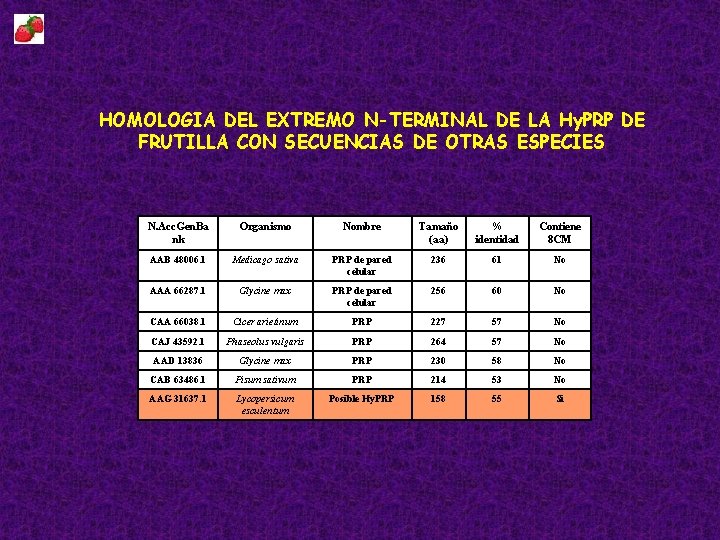
HOMOLOGIA DEL EXTREMO N-TERMINAL DE LA Hy. PRP DE FRUTILLA CON SECUENCIAS DE OTRAS ESPECIES N. Acc. Gen. Ba nk Organismo Nombre Tamaño (aa) % identidad Contiene 8 CM AAB 48006. 1 Medicago sativa PRP de pared celular 236 61 No AAA 66287. 1 Glycine max PRP de pared celular 256 60 No CAA 66038. 1 Cicer arietinum PRP 227 57 No CAJ 43592. 1 Phaseolus vulgaris PRP 264 57 No AAD 13836 Glycine max PRP 230 58 No CAB 63486. 1 Pisum sativum PRP 214 53 No AAG 31637. 1 Lycopersicum esculentum Posible Hy. PRP 158 55 Si
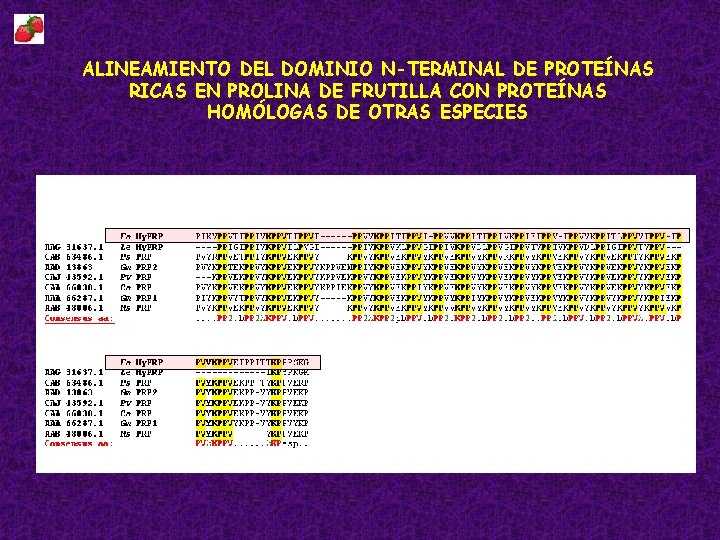
ALINEAMIENTO DEL DOMINIO N-TERMINAL DE PROTEÍNAS RICAS EN PROLINA DE FRUTILLA CON PROTEÍNAS HOMÓLOGAS DE OTRAS ESPECIES
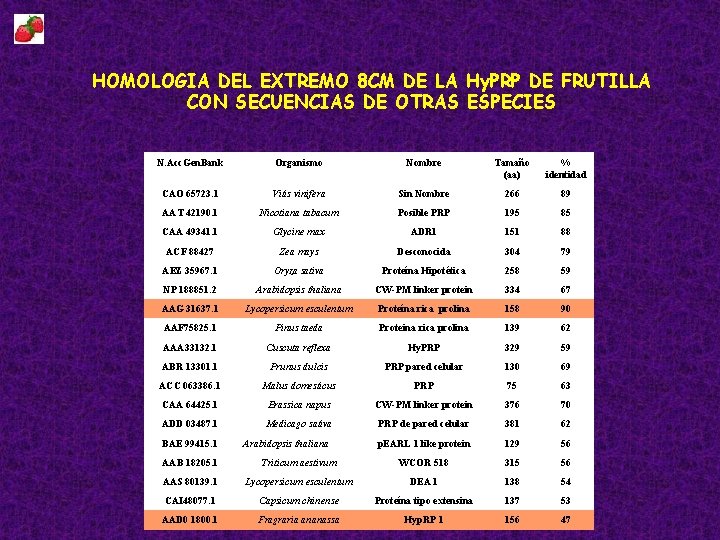
HOMOLOGIA DEL EXTREMO 8 CM DE LA Hy. PRP DE FRUTILLA CON SECUENCIAS DE OTRAS ESPECIES N. Acc. Gen. Bank Organismo Nombre Tamaño (aa) % identidad CAO 65723. 1 Vitis vinifera Sin Nombre 266 89 AAT 42190. 1 Nicotiana tabacum Posible PRP 195 85 CAA 49341. 1 Glycine max ADR 1 151 88 ACF 88427 Zea mays Desconocida 304 79 AEZ 35967. 1 Oryza sativa Proteína Hipotética 258 59 NP 188851. 2 Arabidopsis thaliana CW-PM linker protein 334 67 AAG 31637. 1 Lycopersicum esculentum Proteína rica prolina 158 90 AAF 75825. 1 Pinus taeda Proteina rica prolina 139 62 AAA 33132. 1 Cuscuta reflexa Hy. PRP 329 59 ABR 13301. 1 Prunus dulcis PRP pared celular 130 69 ACC 063386. 1 Malus domesticus PRP 75 63 CAA 64425. 1 Brassica napus CW-PM linker protein 376 70 ADD 03487. 1 Medicago sativa PRP de pared celular 381 62 p. EARL 1 like protein 129 56 BAE 99415. 1 Arabidopsis thaliana AAB 18205. 1 Triticum aestivum WCOR 518 315 56 AAS 80139. 1 Lycopersicum esculentum DEA 1 138 54 CAI 48077. 1 Capsicum chinense Proteína tipo extensina 137 53 AAD 0 1800. 1 Fragraria ananassa Hyp. RP 1 156 47
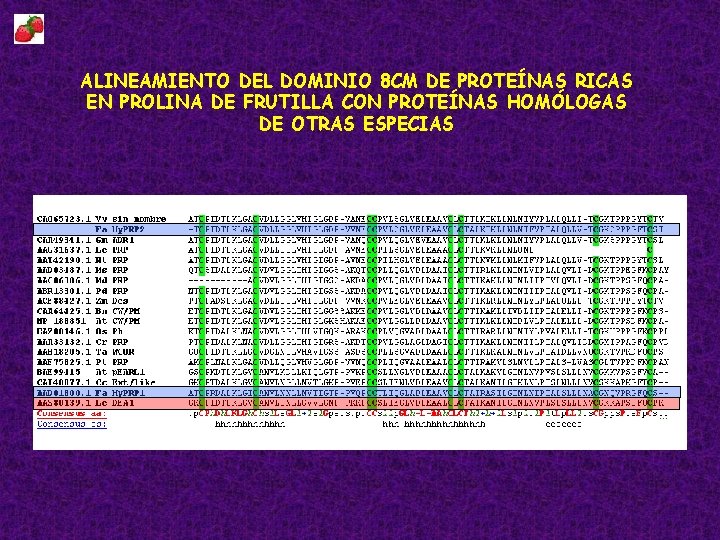
ALINEAMIENTO DEL DOMINIO 8 CM DE PROTEÍNAS RICAS EN PROLINA DE FRUTILLA CON PROTEÍNAS HOMÓLOGAS DE OTRAS ESPECIAS
VITAMINA B 1 EN RESPUESTA DE DEFENSA EN PLANTAS Tiamina • Activador de defensa en plantas que induce SAR. • Activa la expresión de genes relacionados a SAR en distintas plantas. • Previene enfermedades causadas por un amplio espectro de patógenos. • En experimentos con distintas mutantes de Arabidopsis se demostró que la inducción de los genes de defensa por tiamina depende del AS. • Sus efectos sistémicos son a través de una vía dependiente de Ca 2+. • Tiamina agregada a medio de cultivo in vitro no inhibió el crecimiento patógenos. • Tiamina desencadena “priming” en plantas que persiste por un largo período. I Ahn, S Kim, Y-H Lee, Plant Physiol 138: 1505 -1515. 2005.
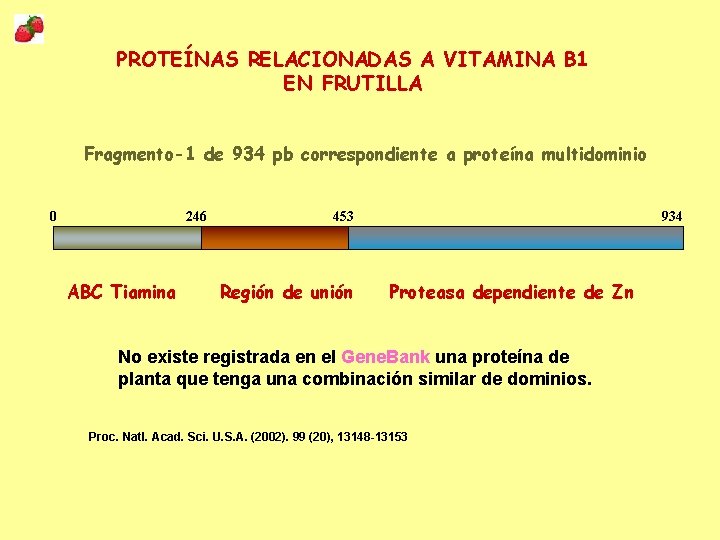
PROTEÍNAS RELACIONADAS A VITAMINA B 1 EN FRUTILLA Fragmento-1 de 934 pb correspondiente a proteína multidominio 0 246 ABC Tiamina 453 Región de unión 934 Proteasa dependiente de Zn No existe registrada en el Gene. Bank una proteína de planta que tenga una combinación similar de dominios. Proc. Natl. Acad. Sci. U. S. A. (2002). 99 (20), 13148 -13153
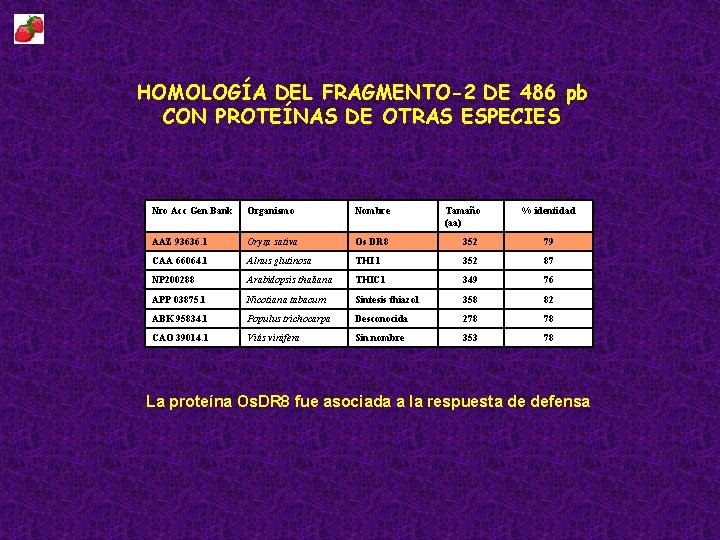
HOMOLOGÍA DEL FRAGMENTO-2 DE 486 pb CON PROTEÍNAS DE OTRAS ESPECIES Nro Acc Gen Bank Organismo Nombre Tamaño (aa) % identidad AAZ 93636. 1 Oryza sativa Os DR 8 352 79 CAA 66064. 1 Alnus glutinosa THI 1 352 87 NP 200288 Arabidopsis thaliana THIC 1 349 76 APP 03875. 1 Nicotiana tabacum Sintesis thiazol 358 82 ABK 95834. 1 Populus trichocarpa Desconocida 278 78 CAO 39014. 1 Vitis vinifera Sin nombre 353 78 La proteína Os. DR 8 fue asociada a la respuesta de defensa
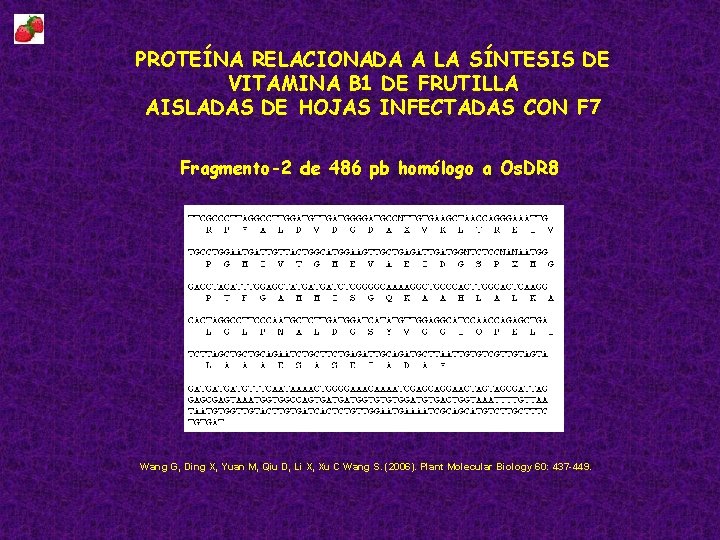
PROTEÍNA RELACIONADA A LA SÍNTESIS DE VITAMINA B 1 DE FRUTILLA AISLADAS DE HOJAS INFECTADAS CON F 7 Fragmento-2 de 486 pb homólogo a Os. DR 8 Wang G, Ding X, Yuan M, Qiu D, Li X, Xu C Wang S. (2006). Plant Molecular Biology 60: 437 -449.
Agradecimientos: Sergio Salazar, Gustavo Martínez Zamora, Nadia Chalfoun, Gabriel Vellicce, Cecila Lemme Otros agradecimientos: ♦ Agencia Nacional de Promoción Científica y Tencnológica (FONCy. T-UNT). PICTO 04 -759. ♦ Consejo Nacional de Investigaciones Científicas y Tecnológicas (CONICET). Proyecto PIP 6441. ♦ Consejo de Investigaciones de la Universidad Nacional de Tucumán. Proy. 26 -D 346.
Muchas Gracias
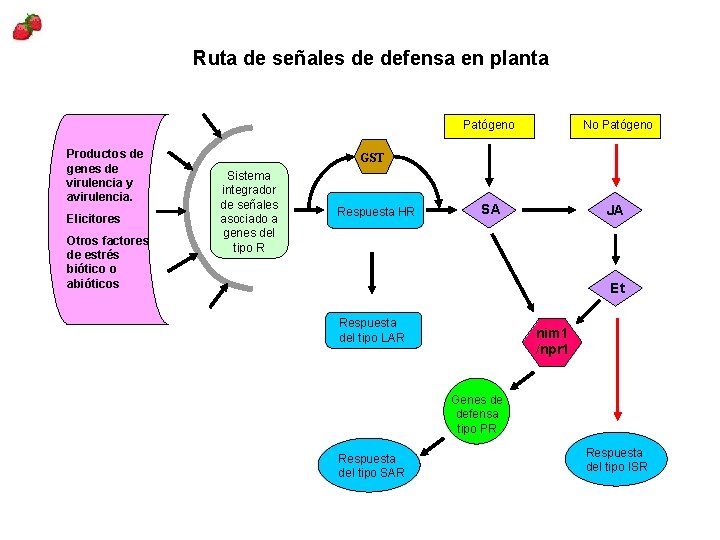
Ruta de señales de defensa en planta Productos de genes de virulencia y avirulencia. Elicitores Otros factores de estrés biótico o abióticos Patógeno No Patógeno SA JA GST Sistema integrador de señales asociado a genes del tipo R Respuesta HR Et Respuesta del tipo LAR nim 1 /npr 1 Genes de defensa tipo PR Respuesta del tipo SAR Respuesta del tipo ISR
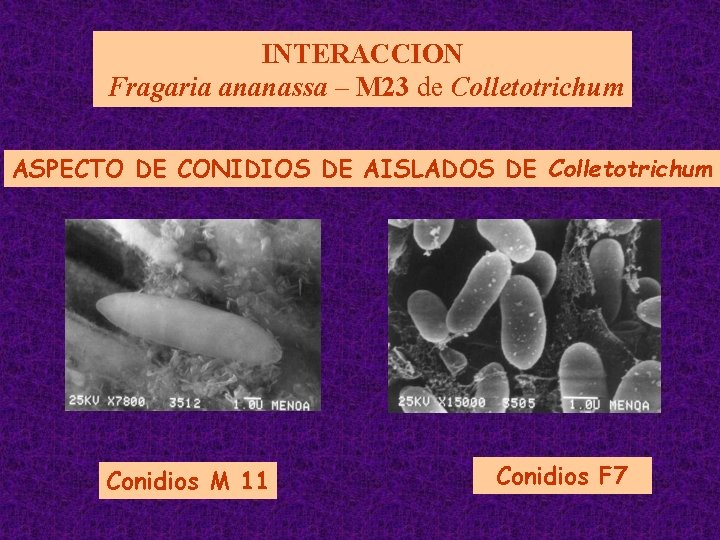
INTERACCION Fragaria ananassa – M 23 de Colletotrichum ASPECTO DE CONIDIOS DE AISLADOS DE Colletotrichum Conidios M 11 Conidios F 7
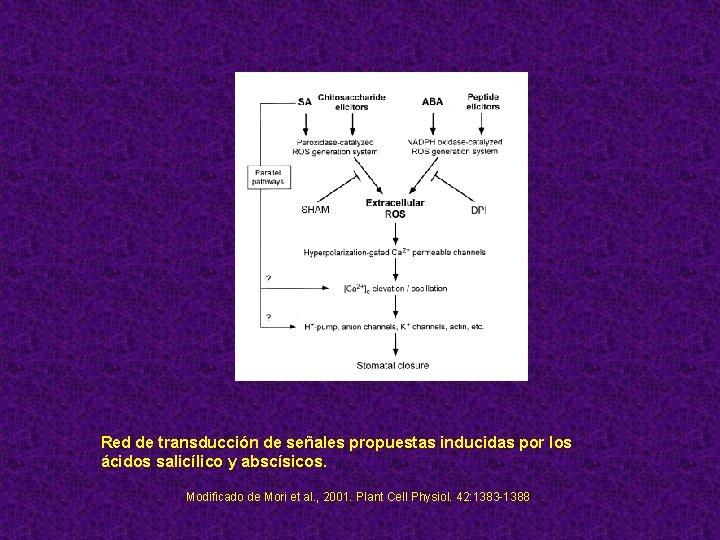
Red de transducción de señales propuestas inducidas por los ácidos salicílico y abscísicos. Modificado de Mori et al. , 2001. Plant Cell Physiol. 42: 1383 -1388
- Slides: 62