
Enzymer II Kinetikk Enzymkinetikk Underskelser av kinetikken til
- Slides: 34
Enzymer II Kinetikk
Enzymkinetikk • Undersøkelser av kinetikken til et gitt enzym gir kunnskaper om: – Den maksimale hastighet for produktdannelse – Den substratkonsentrasjon som gir halv maksimal hastighet – Styrken og virkningsmåten til forskjellige hemmere, regulatorer • • E +S ES E+P Konsentrasjonen av S påvirker hastigheten for dannelsen av P Økt konsentrasjon av S gir økt dannelse av P (når kons. S < kons. E) S forbrukes under reaksjonen => Konsentrasjonen av S synker og dermed reaksjonshastigheten • For å eliminere dette problemet utføres måling av P umiddelbart etter at S kommer i kontakt med E; vi måler initiell hastighet
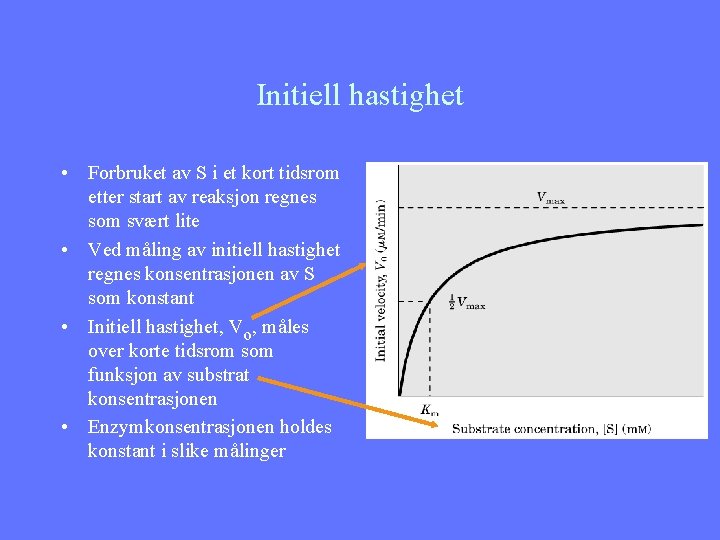
Initiell hastighet • Forbruket av S i et kort tidsrom etter start av reaksjon regnes som svært lite • Ved måling av initiell hastighet regnes konsentrasjonen av S som konstant • Initiell hastighet, Vo, måles over korte tidsrom som funksjon av substrat konsentrasjonen • Enzymkonsentrasjonen holdes konstant i slike målinger
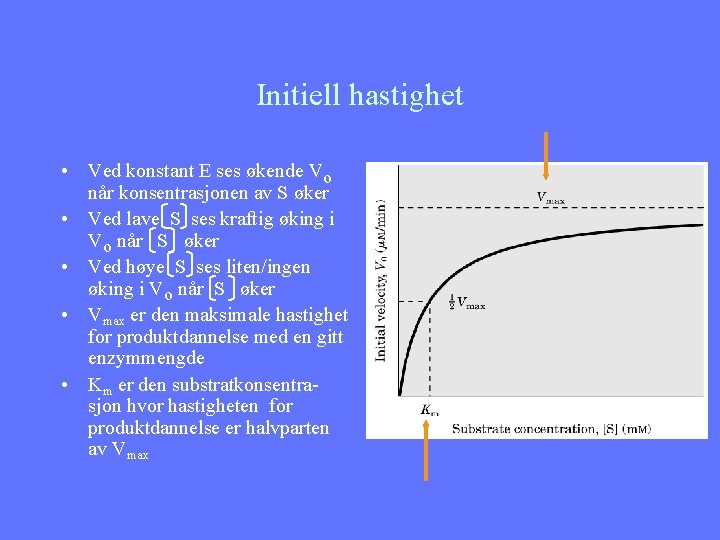
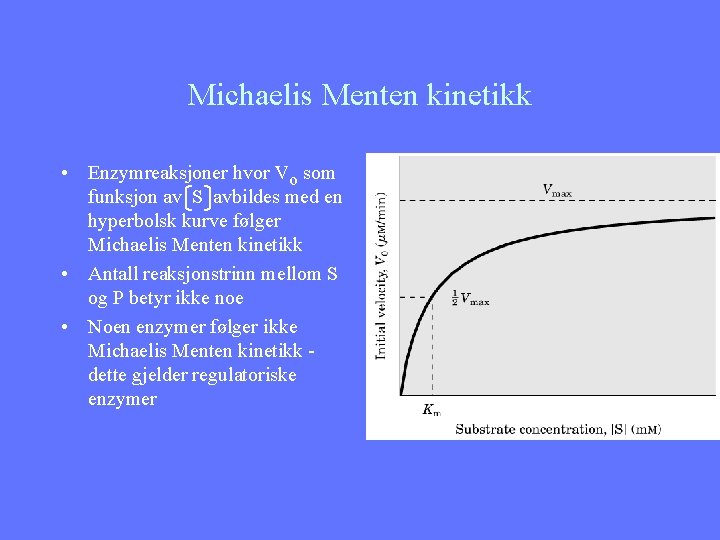
Initiell hastighet • Ved konstant E ses økende Vo når konsentrasjonen av S øker • Ved lave S ses kraftig øking i Vo når S øker • Ved høye S ses liten/ingen øking i Vo når S øker • Vmax er den maksimale hastighet for produktdannelse med en gitt enzymmengde • Km er den substratkonsentrasjon hvor hastigheten for produktdannelse er halvparten av Vmax
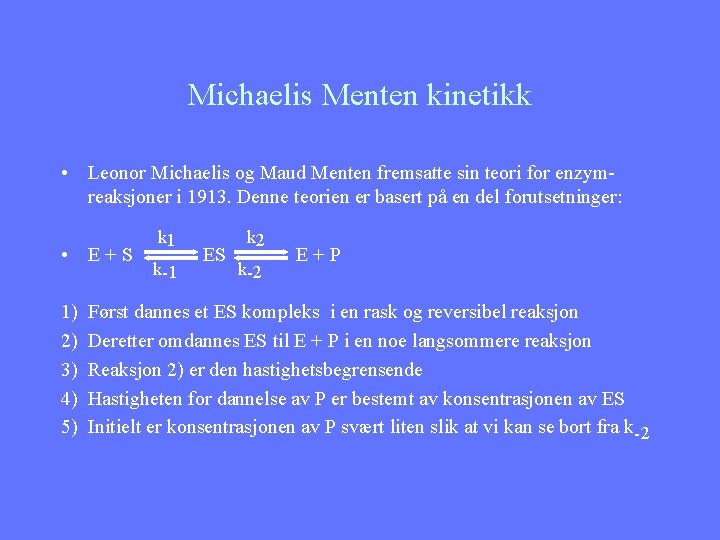
Michaelis Menten kinetikk • Leonor Michaelis og Maud Menten fremsatte sin teori for enzymreaksjoner i 1913. Denne teorien er basert på en del forutsetninger: • E+S 1) 2) 3) 4) 5) k 1 k-1 ES k 2 k-2 E+P Først dannes et ES kompleks i en rask og reversibel reaksjon Deretter omdannes ES til E + P i en noe langsommere reaksjon Reaksjon 2) er den hastighetsbegrensende Hastigheten for dannelse av P er bestemt av konsentrasjonen av ES Initielt er konsentrasjonen av P svært liten slik at vi kan se bort fra k-2
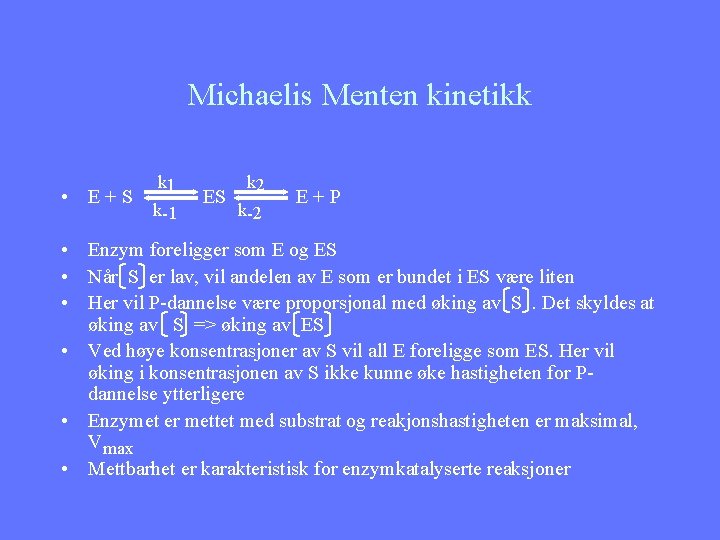
Michaelis Menten kinetikk • E+S k 1 k-1 ES k 2 k-2 E+P • Enzym foreligger som E og ES • Når S er lav, vil andelen av E som er bundet i ES være liten • Her vil P-dannelse være proporsjonal med øking av S. Det skyldes at øking av S => øking av ES • Ved høye konsentrasjoner av S vil all E foreligge som ES. Her vil øking i konsentrasjonen av S ikke kunne øke hastigheten for Pdannelse ytterligere • Enzymet er mettet med substrat og reakjonshastigheten er maksimal, Vmax • Mettbarhet er karakteristisk for enzymkatalyserte reaksjoner
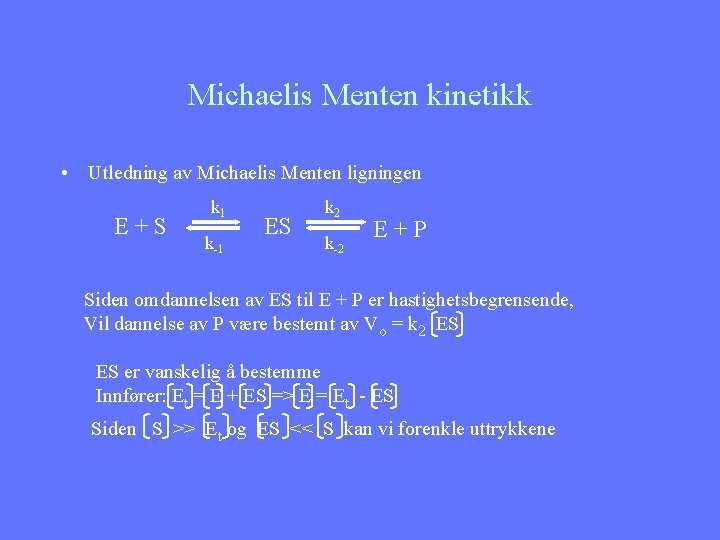
Michaelis Menten kinetikk • Utledning av Michaelis Menten ligningen E+S k 1 k-1 ES k 2 k-2 E+P Siden omdannelsen av ES til E + P er hastighetsbegrensende, Vil dannelse av P være bestemt av Vo = k 2 ES ES er vanskelig å bestemme Innfører: Et = E + ES => E = Et - ES Siden S >> Et og ES << S kan vi forenkle uttrykkene
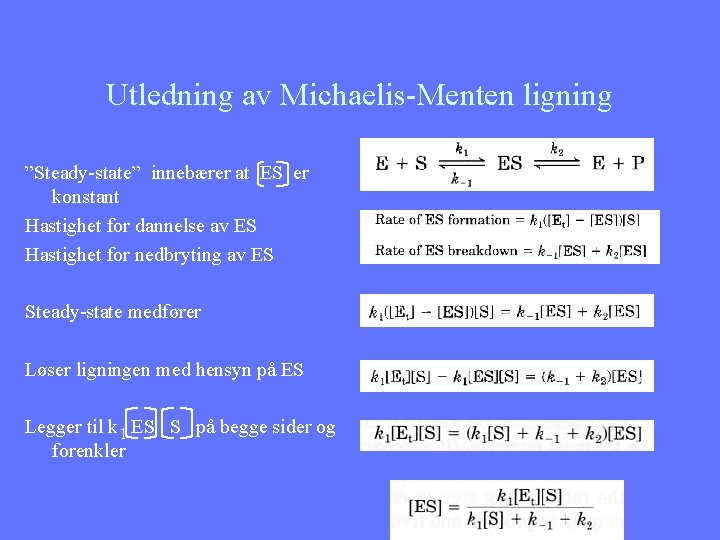
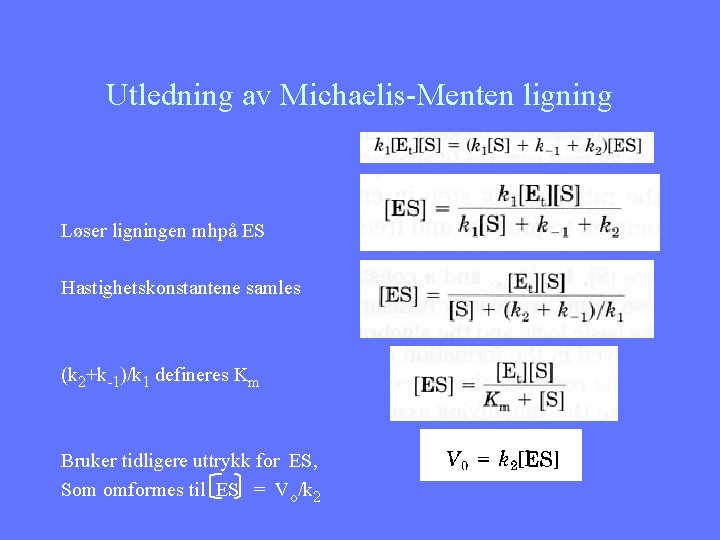
Utledning av Michaelis-Menten ligning ”Steady-state” innebærer at ES er konstant Hastighet for dannelse av ES Hastighet for nedbryting av ES Steady-state medfører Løser ligningen med hensyn på ES Legger til k 1 ES S på begge sider og forenkler
Utledning av Michaelis-Menten ligning Løser ligningen mhpå ES Hastighetskonstantene samles (k 2+k-1)/k 1 defineres Km Bruker tidligere uttrykk for ES, Som omformes til ES = Vo/k 2
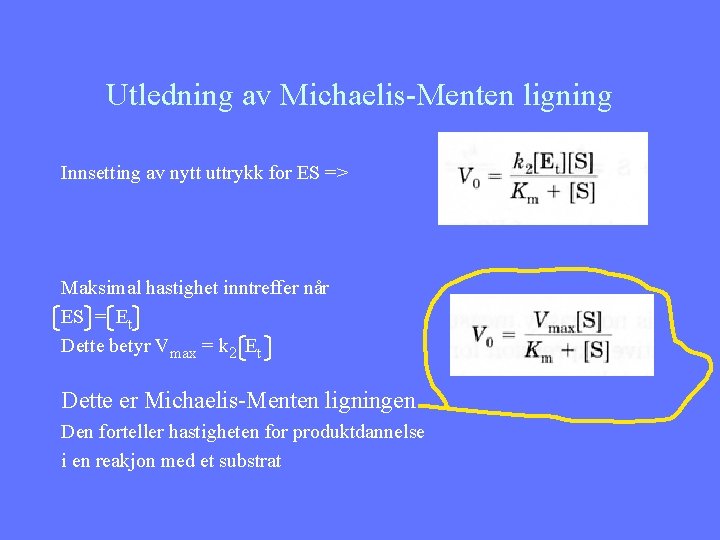
Utledning av Michaelis-Menten ligning Innsetting av nytt uttrykk for ES => Maksimal hastighet inntreffer når ES = Et Dette betyr Vmax = k 2 Et Dette er Michaelis-Menten ligningen Den forteller hastigheten for produktdannelse i en reakjon med et substrat
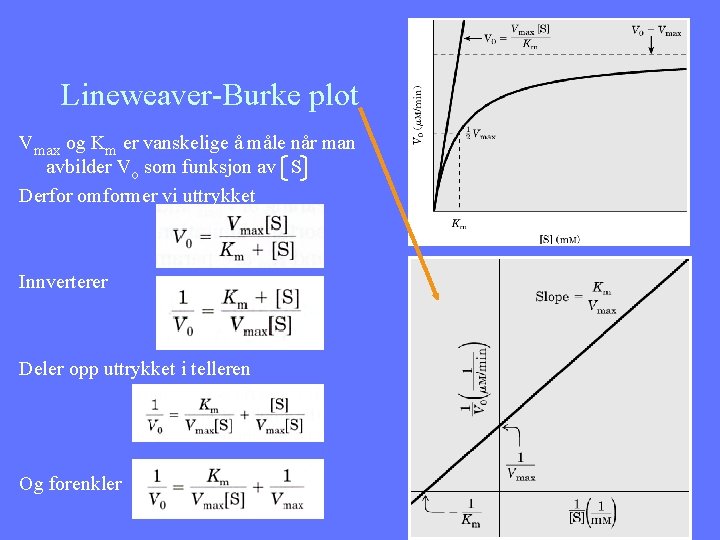
Lineweaver-Burke plot Vmax og Km er vanskelige å måle når man avbilder Vo som funksjon av S Derfor omformer vi uttrykket Innverterer Deler opp uttrykket i telleren Og forenkler
Michaelis Menten kinetikk • Enzymreaksjoner hvor Vo som funksjon av S avbildes med en hyperbolsk kurve følger Michaelis Menten kinetikk • Antall reaksjonstrinn mellom S og P betyr ikke noe • Noen enzymer følger ikke Michaelis Menten kinetikk dette gjelder regulatoriske enzymer
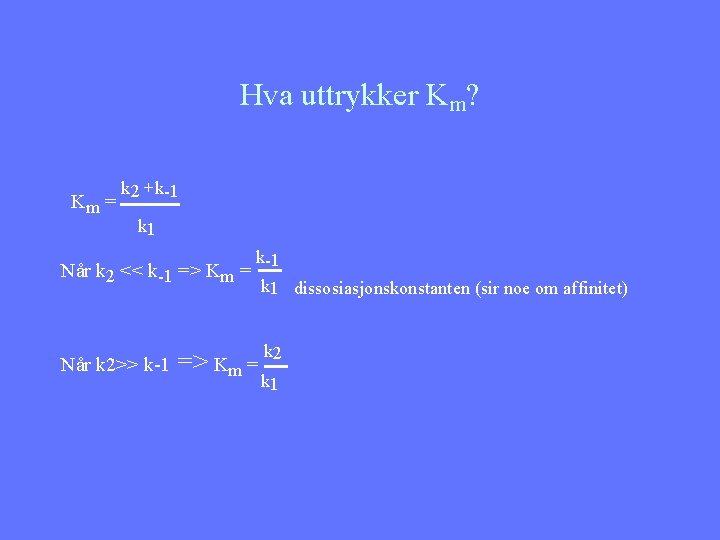
Hva uttrykker Km? Km = k 2 +k-1 k 1 Når k 2 << k-1 => Km = Når k 2>> k-1 k 1 dissosiasjonskonstanten (sir noe om affinitet) => Km = k 2 k 1
Hemmere av enzymaktivitet Deles i to hovedgrupper: • Reversibel hemming – Kompetitiv – Ikke-kompetitiv – Blandet hemming • Irreversibel hemming • Homotrof: enzymet hemmes av sitt eget produkt • Heterotrof: enzymet hemmes av annen forbindelse
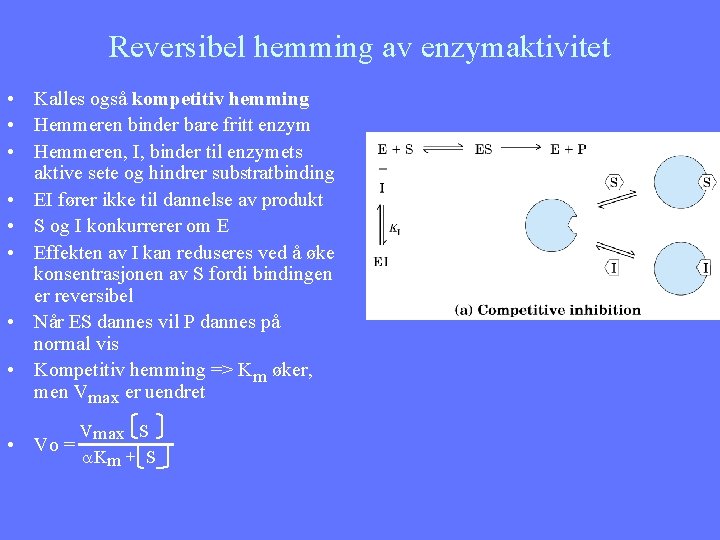
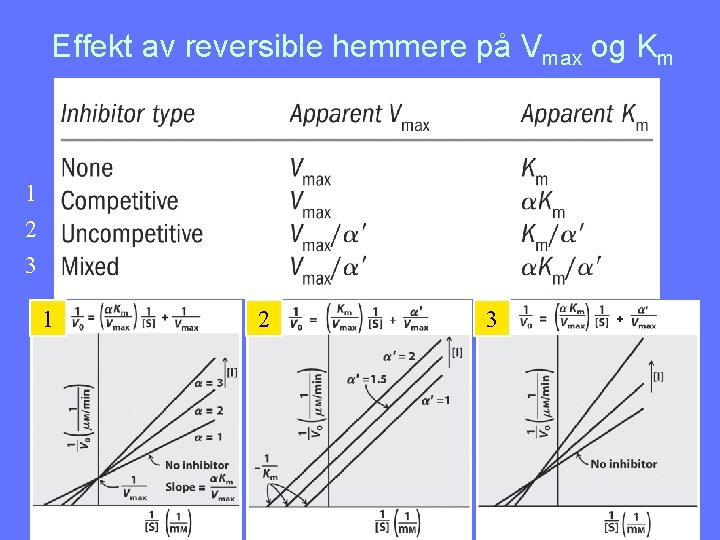
Reversibel hemming av enzymaktivitet • Kalles også kompetitiv hemming • Hemmeren binder bare fritt enzym • Hemmeren, I, binder til enzymets aktive sete og hindrer substratbinding • EI fører ikke til dannelse av produkt • S og I konkurrerer om E • Effekten av I kan reduseres ved å øke konsentrasjonen av S fordi bindingen er reversibel • Når ES dannes vil P dannes på normal vis • Kompetitiv hemming => Km øker, men Vmax er uendret • Vo = Vmax S a. Km + S
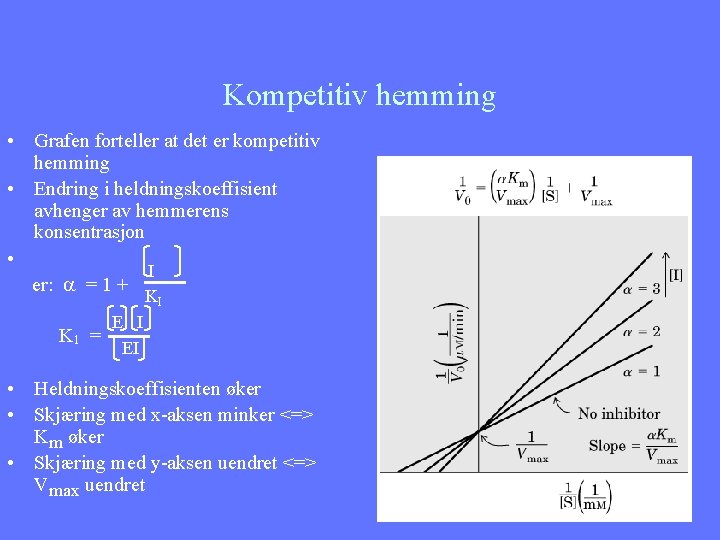
Kompetitiv hemming • Grafen forteller at det er kompetitiv hemming • Endring i heldningskoeffisient avhenger av hemmerens konsentrasjon • I er: a = 1 + KI E I K 1 = EI • Heldningskoeffisienten øker • Skjæring med x-aksen minker <=> Km øker • Skjæring med y-aksen uendret <=> Vmax uendret
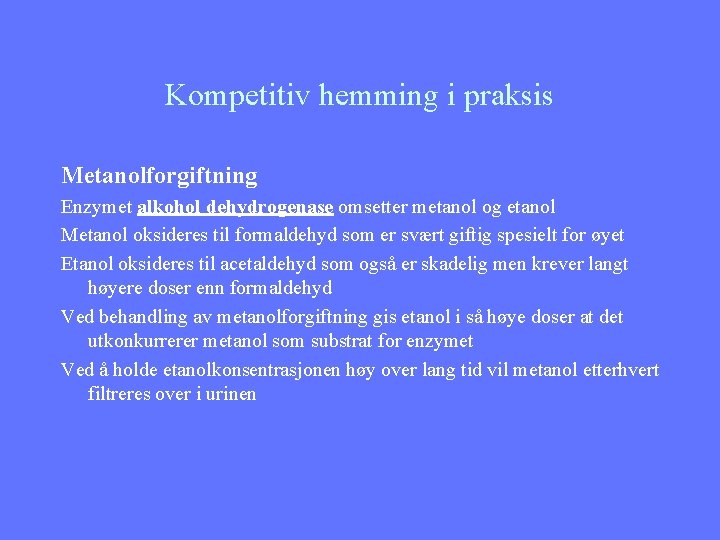
Kompetitiv hemming i praksis Metanolforgiftning Enzymet alkohol dehydrogenase omsetter metanol og etanol Metanol oksideres til formaldehyd som er svært giftig spesielt for øyet Etanol oksideres til acetaldehyd som også er skadelig men krever langt høyere doser enn formaldehyd Ved behandling av metanolforgiftning gis etanol i så høye doser at det utkonkurrerer metanol som substrat for enzymet Ved å holde etanolkonsentrasjonen høy over lang tid vil metanol etterhvert filtreres over i urinen
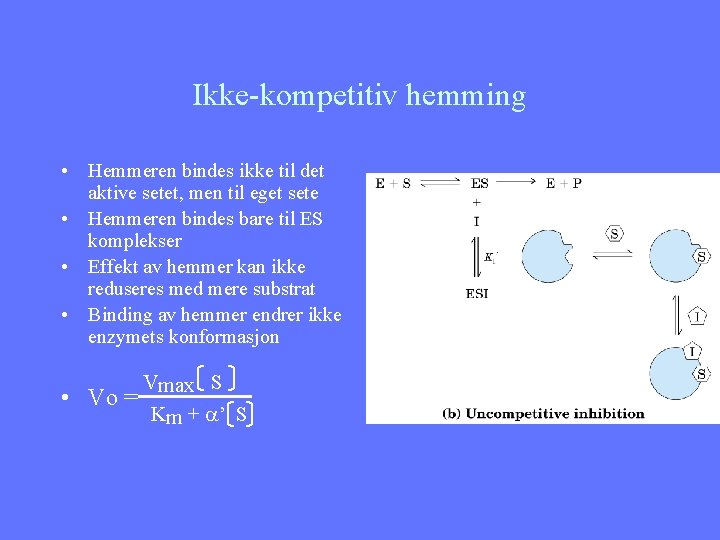
Ikke-kompetitiv hemming • Hemmeren bindes ikke til det aktive setet, men til eget sete • Hemmeren bindes bare til ES komplekser • Effekt av hemmer kan ikke reduseres med mere substrat • Binding av hemmer endrer ikke enzymets konformasjon • Vo = Vmax S Km + a’ S
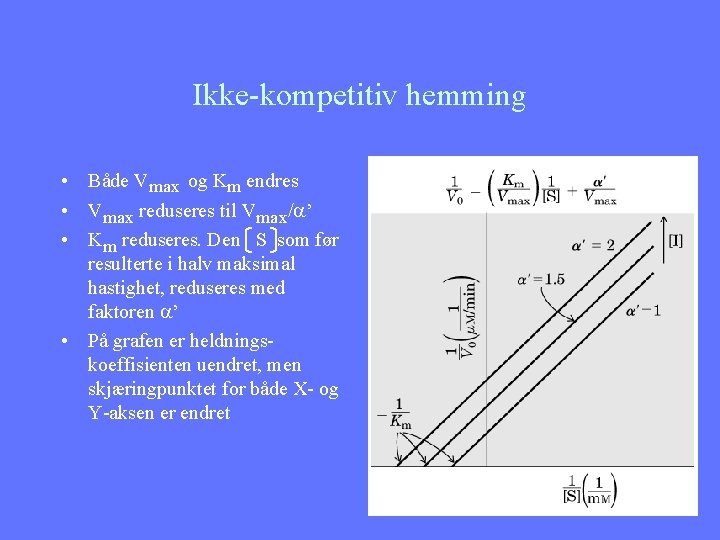
Ikke-kompetitiv hemming • Både Vmax og Km endres • Vmax reduseres til Vmax/a’ • Km reduseres. Den S som før resulterte i halv maksimal hastighet, reduseres med faktoren a’ • På grafen er heldningskoeffisienten uendret, men skjæringpunktet for både X- og Y-aksen er endret
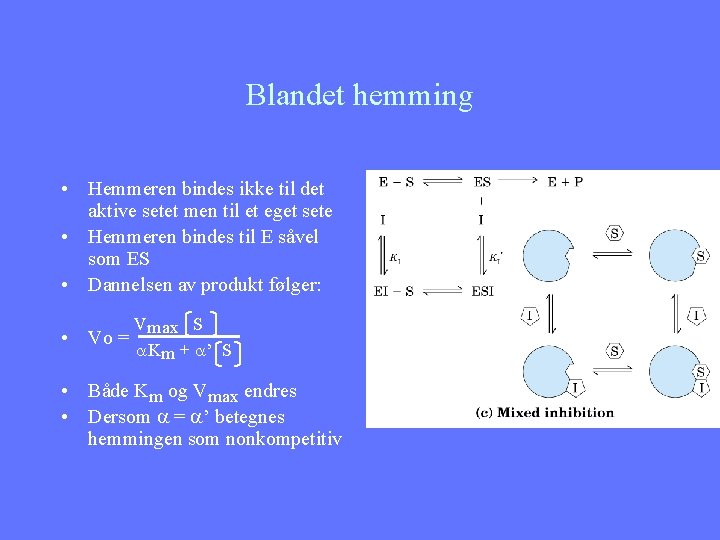
Blandet hemming • Hemmeren bindes ikke til det aktive setet men til et eget sete • Hemmeren bindes til E såvel som ES • Dannelsen av produkt følger: • Vo = Vmax S a. Km + a’ S • Både Km og Vmax endres • Dersom a = a’ betegnes hemmingen som nonkompetitiv
Hemmere av enzymaktivitet • Ikke-kompetitiv og blandet hemming opptrer i praksis bare i reaksjoner med to eller flere substrater. • E + S 1 + S 2 ES 1 S 2/ES 2 S 1 E+P • En hemmer kan opptre som kompetitiv hemmer av S 1 men som ikkekompetitiv eller blandet hemmer av S 2
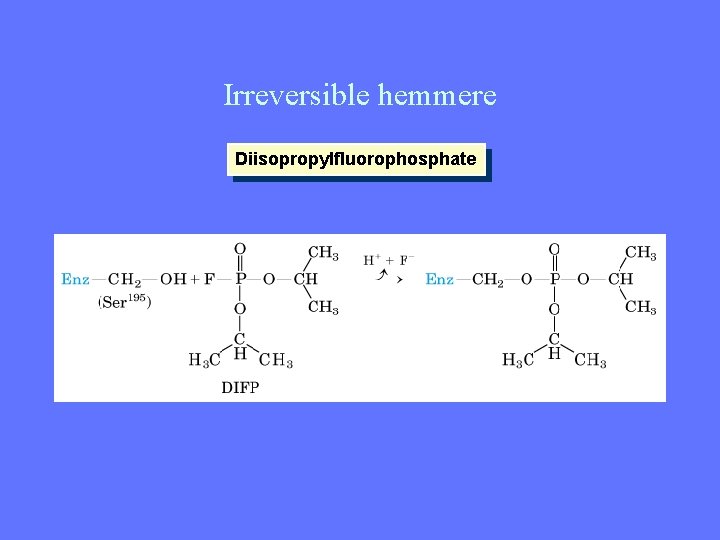
Irreversible hemmere • Binder seg irreversibelt til eller ødelegger enzymets aktive sete, f. eks. ved å endre en viktig funksjonell gruppe • Viktig undergruppe er ”selvmordshemmerne” eller ”mekanismebaserte hemmere” • Disse binder som substratet og gjennomgår første del av katalysen. Deretter bindes de kovalent til enzymets aktive sete og blokkerer all videre aktivitet • Farmasøytisk industri utnytter slike mekanismer i utforming av legemidler
Irreversible hemmere Diisopropylfluorophosphate
Effekt av reversible hemmere på Vmax og Km 1 2 3 11 2 3
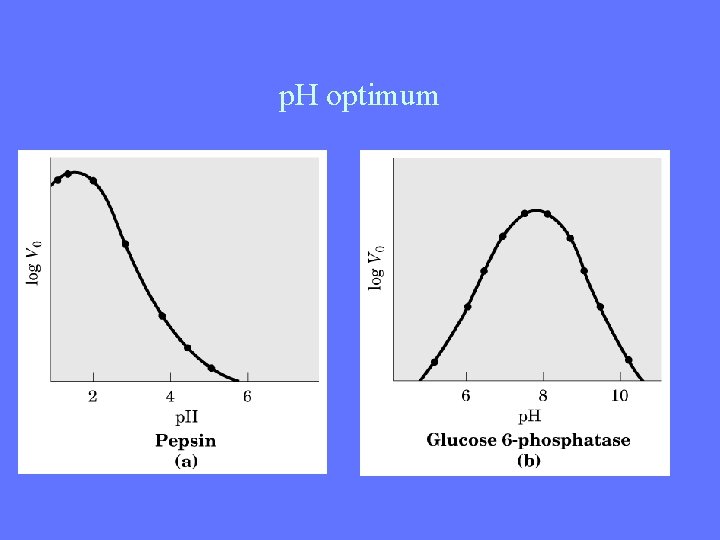
p. H optimum • p. H optimum er det p. H-område hvor enzymets aktivitet er maksimal • Varierer mye fra enzym til enzym • Katalytisk funksjon er ofte avhengig av aminosyresidekjeder som agerer som svake syrer eller baser. Dette er svært p. H avhengig • p. H optimum kan fortelle noe om hvilke aminosyrer som er involvert i den katalytiske mekanisme – p. H-optimum omkring p. H 7 indikerer at en His deltar i katalysen
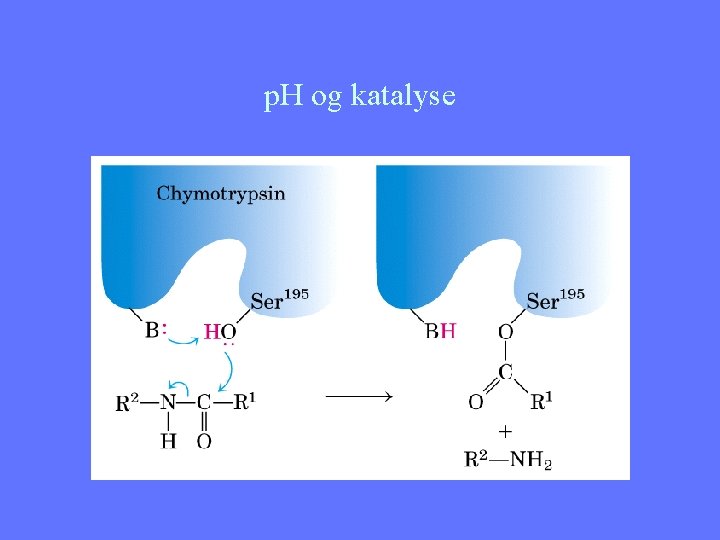
p. H og katalyse
p. H optimum
Regulatoriske enzymer Enzymer er organisert i reaksjonsveier, hvor produktet fra en reaksjon er substratet for den neste Regulatoriske enzymer kontrollerer hastigheten i hele reaksjonsveien Det regulatoriske enzymet er ofte det første enzymet i reaksjonsveien Regulatoriske enzymer følger ikke Michaelis Menten kinetikk Enzymenes aktivitet reguleres av allosteriske forbindelser og kalles selv allosteriske enzymer Allosteriske forbindelser kan være prekursere eller metabolitter og reguleringen er reversible Mekanisme: 1: Reversibel ikke-kovalent binding av allosterisk regulator 2: Reversibel kovalent modifikasjon Allosterisk regulering fungerer som finregulering Reguleringen kan også skje ved proteolytisk spaltning og er irreversibel Allosteriske enzymer er komplekse, de består av flere/mange subenheter
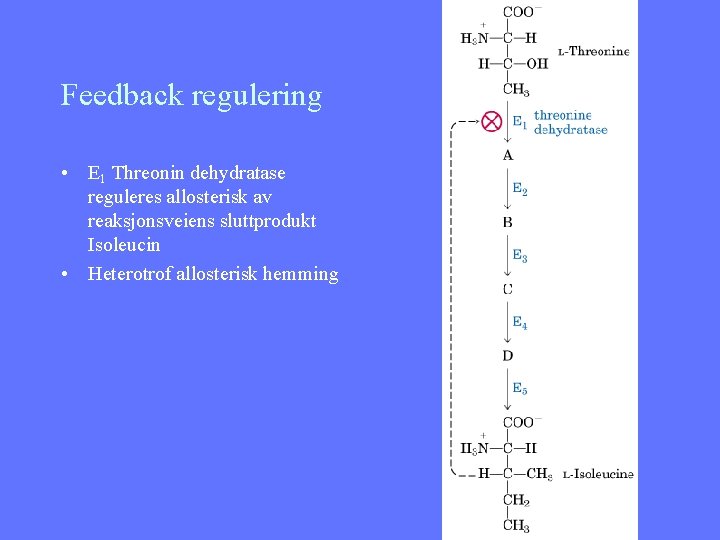
Feedback regulering • E 1 Threonin dehydratase reguleres allosterisk av reaksjonsveiens sluttprodukt Isoleucin • Heterotrof allosterisk hemming
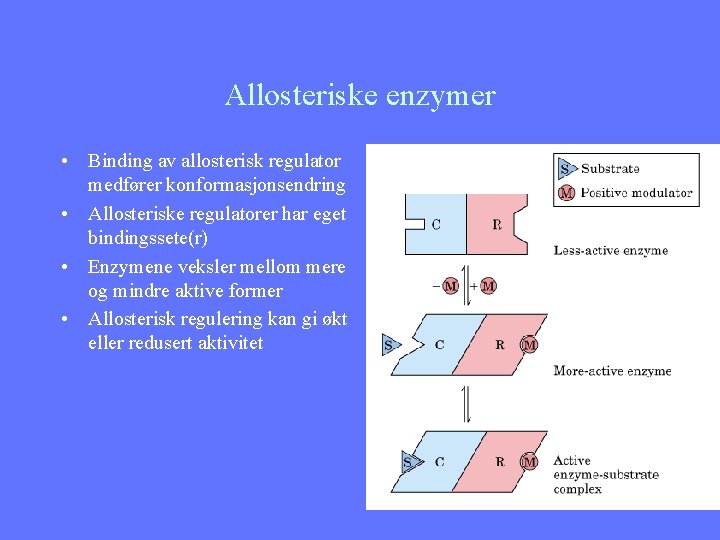
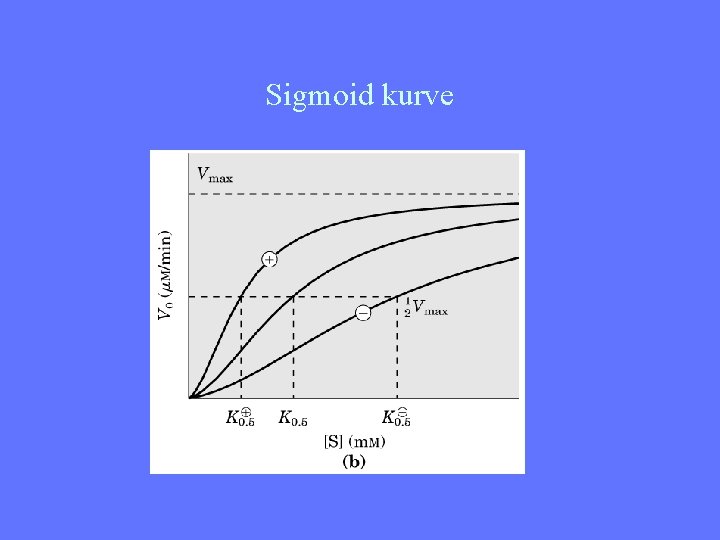
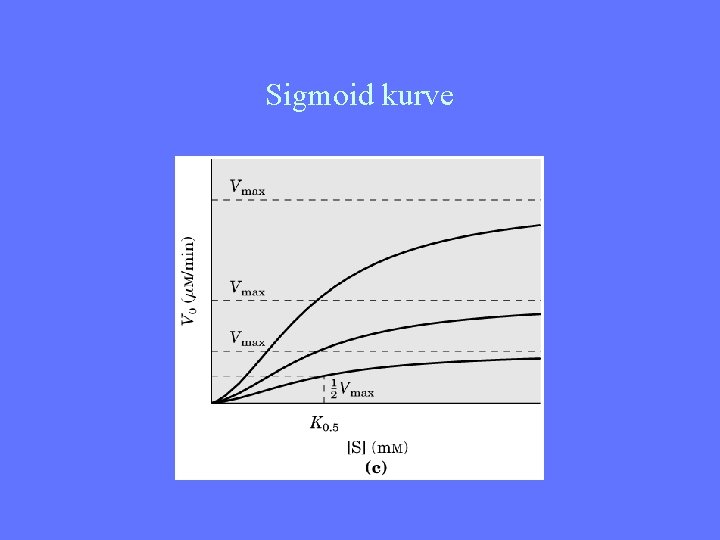
Allosteriske enzymer • Binding av allosterisk regulator medfører konformasjonsendring • Allosteriske regulatorer har eget bindingssete(r) • Enzymene veksler mellom mere og mindre aktive former • Allosterisk regulering kan gi økt eller redusert aktivitet
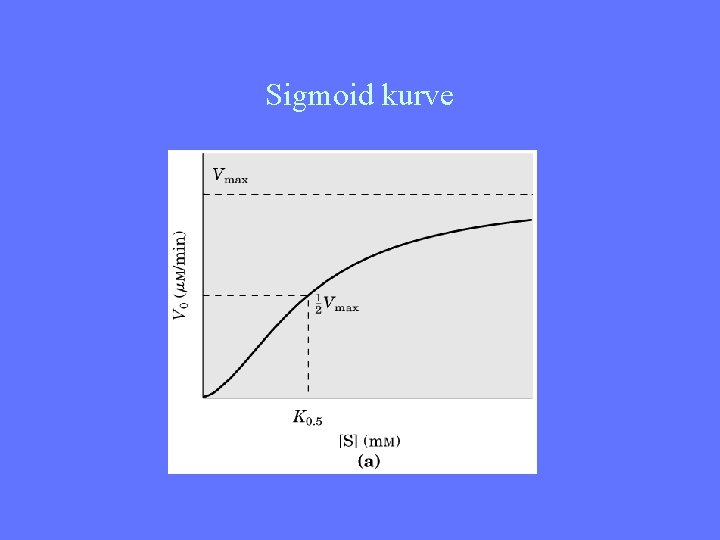
Allosteriske enzymer følger ikke Michaelis Menten kinetikk • • • Allosteriske enzymer er ikke mettbare Avbilding av Vo som funksjon av S gir sigmoid kurve Km begrepet er ikke gyldig K 0, 5 eller S 0, 5 brukes Sigmoid kurve signaliseres kooperativitet, subenhetene påvirker hverandres konformasjon og affinitet for substrat
Sigmoid kurve
Sigmoid kurve
Sigmoid kurve