
ENZIMAS Enzimas so polmeros biolgicos que catalisam as
ENZIMAS
• Enzimas são polímeros biológicos que catalisam as reacções químicas que tornam a vida possível como a conhecemos. • A presença e a manutenção dum conjunto completo e balanceado de enzimas é essencial na digestão dos nutrientes para o fornecimento de energia e de estruturas bioquímicas. • Essas estruturas serão depois sintetizadas em proteínas, DNA, membranas, células e tecidos.
• A energia produzida será necessária para fornecer a potência para a mobilidade celular e contração muscular. • Com a excepção de algumas moléculas catalíticas de RNA a grande maioria dos enzimas são constituídos por proteínas. • As deficiências na quantidade ou na actividade catalítica dos enzimas chave resultam das deficiências genéticas, défices nutricionais ou toxinas. • Os enzimas com defeitos podem ser resultado, também, de mutações genéticas, infecções virais ou genes patológicos de bactérias.
ENZIMAS SÃO CATALISADORES ALTAMENTE ESPECÍFICOS • Os enzimas que catalisam a conversão de um ou mais compostos (substratos) em um ou mais diferentes compostos (produtos), aumentam as velocidades de reacção em 105 a 1017 vezes superior à velocidade da mesma reacção não-catalisada. • Como todos os catalisadores, os enzimas não são consumidos ou permanentemente alterados como consequência da sua participação na reacção. • Especificidade muitíssimo elevada, que tem a ver com a natureza do substrato e dos produtos finais da reacção; o enzima “reconhece” o seu substrato e catalisa a sua reacção de tal forma que raramente são formados produtos laterais (indesejados) da reacção.
• Os enzimas são as biomoléculas mais importantes em qualquer processo bioquímico. • Catalisam centenas de passos reacionais que degradam as moléculas de nutrientes, conservam e transformam a energia química e produzem macromoléculas a partir de percursores simples. • Na acção dos enzimas regulatórios, os percursos metabólicos são muito bem coordenados para realizarem uma convivência harmoniosa das muitas actividades necessárias para a sustentação da vida.
PROPRIEDADES DOS ENZIMAS • Condições mais suaves de reacção, ou seja, as condições em que reacções catalisadas por enzimas são médias: temperaturas abaixo dos 100ºC, pressão atmosférica e p. H próximo do fisiológico. • Capacidade de regulação: a actividade catalítica de muitas enzimas varia de acordo com a concentração de substrato. • Os mecanismos de regulação incluem controlo alostérico, modificação covalente de enzimas e variação da quantidade de enzima sintetizada. .
• A actividade catalítica depende da integridade da conformação da proteína nativa. Se um enzima for desnaturado ou dissociado nas subunidades a actividade catalítica é normalmente perdida. • Se um enzima é dissociado nos seus aminoácidos, a sua actividade catalítica é sempre destruída. • As estruturas primária, secundária, terciária e quaternária dos enzimas proteicos são essenciais para a sua actividade catalítica.
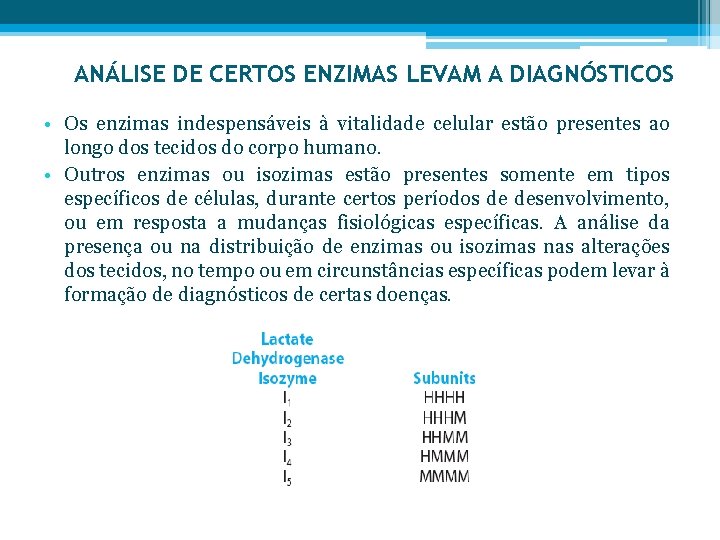
ANÁLISE DE CERTOS ENZIMAS LEVAM A DIAGNÓSTICOS • Os enzimas indespensáveis à vitalidade celular estão presentes ao longo dos tecidos do corpo humano. • Outros enzimas ou isozimas estão presentes somente em tipos específicos de células, durante certos períodos de desenvolvimento, ou em resposta a mudanças fisiológicas específicas. A análise da presença ou na distribuição de enzimas ou isozimas nas alterações dos tecidos, no tempo ou em circunstâncias específicas podem levar à formação de diagnósticos de certas doenças.
ENZIMAS FACILITAM O DIAGNÓSTICO DE DOENÇAS GENÉTICAS • Muitas doenças são há muito tempo conhecidas como resultado das alterações no DNA de cada indivíduo, as ferramentas para a detecção das mutações genéticas somente estão recentemente disponíveis mundialmente. • Estas técnicas estão baseadas na eficiência e especificidade catalítica dos enzimas. Por exemplo, a reaccção em cadeia da polimerase (PCR) baseia-se na habilidade dos enzimas servirem de amplificadores da análise de DNA presente nas amostras biológicas e forences.
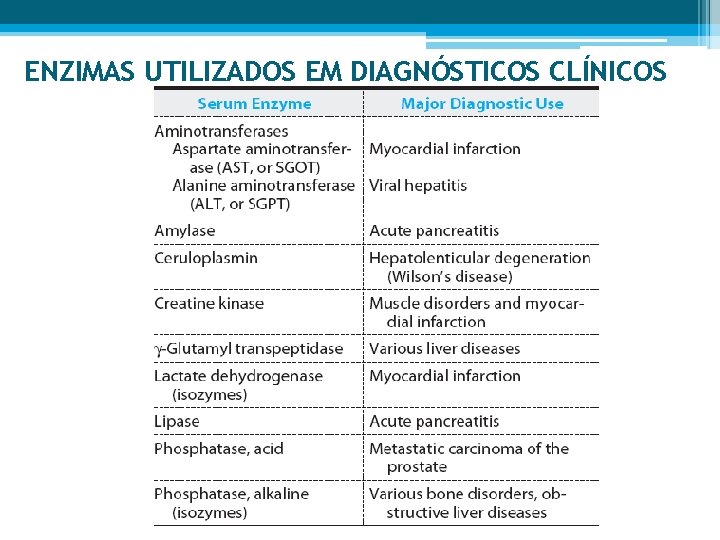
ENZIMAS UTILIZADOS EM DIAGNÓSTICOS CLÍNICOS
COFACTOES E COENZIMAS • Os grupos funcionais das proteínas podem facilmente participar em reacções ácido/base, formando certos tipos de ligações covalentes e tomam parte nas interacções carga/carga. • São assim piores para catalisar reacções redox mas, apesar disso, os enzimas catalisam estas reacções, graças à associação nestas de pequenas moléculas, cofactores, que agem como “dente químico” do enzima.
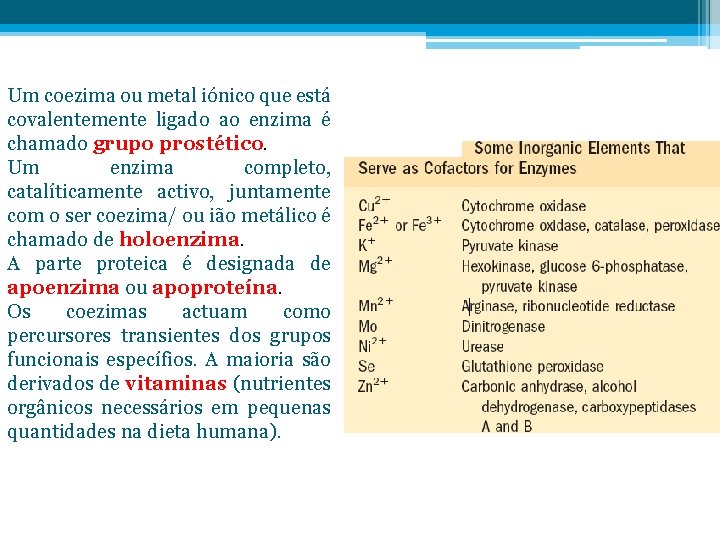
Um coezima ou metal iónico que está covalentemente ligado ao enzima é chamado grupo prostético. Um enzima completo, catalíticamente activo, juntamente com o ser coezima/ ou ião metálico é chamado de holoenzima. A parte proteica é designada de apoenzima ou apoproteína. Os coezimas actuam como percursores transientes dos grupos funcionais específios. A maioria são derivados de vitaminas (nutrientes orgânicos necessários em pequenas quantidades na dieta humana).
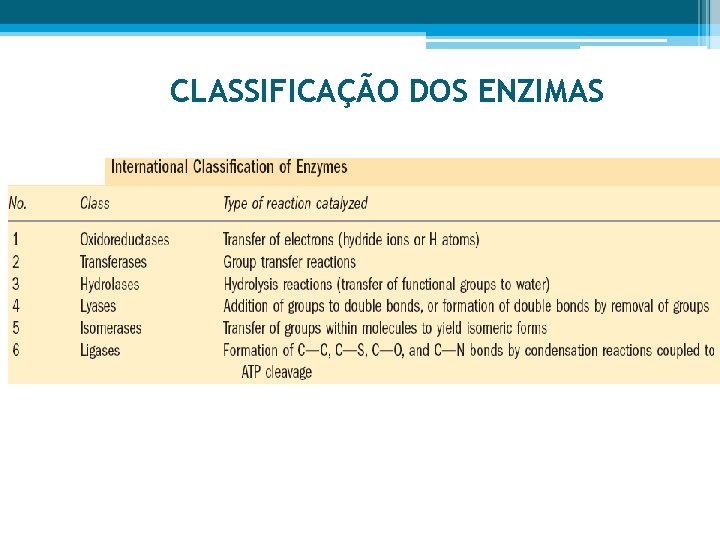
CLASSIFICAÇÃO DOS ENZIMAS
COENZIMAS TÊM QUE SER REGENERADOS • Os coenzimas são alterados quimicamente pela reacção enzimática em que participam. Assim, para completar o ciclo catalítico, o coenzima tem de voltar ao seu estado inicial. Nos grupos prostéticos a regeneração ocorre numa fase separada da sequência da reacção enzimática. • Muitos organismos não são capazes de sintetizar certos coenzimas. Assim, essas substâncias têm de estar presentes na dieta do organismo. • Certas vitaminas estão assim nesta lista de coenzimas e a sua carência pode provocar uma série de doenças provocadas por catálises enzimáticas incompletas.
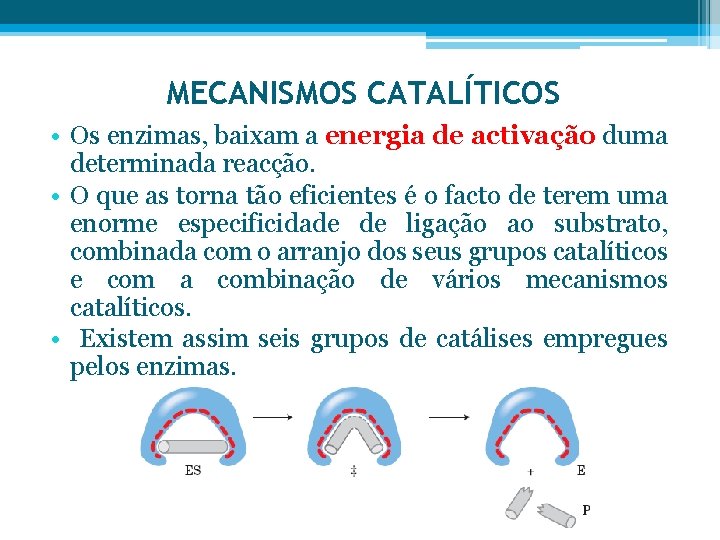
MECANISMOS CATALÍTICOS • Os enzimas, baixam a energia de activação duma determinada reacção. • O que as torna tão eficientes é o facto de terem uma enorme especificidade de ligação ao substrato, combinada com o arranjo dos seus grupos catalíticos e com a combinação de vários mecanismos catalíticos. • Existem assim seis grupos de catálises empregues pelos enzimas.
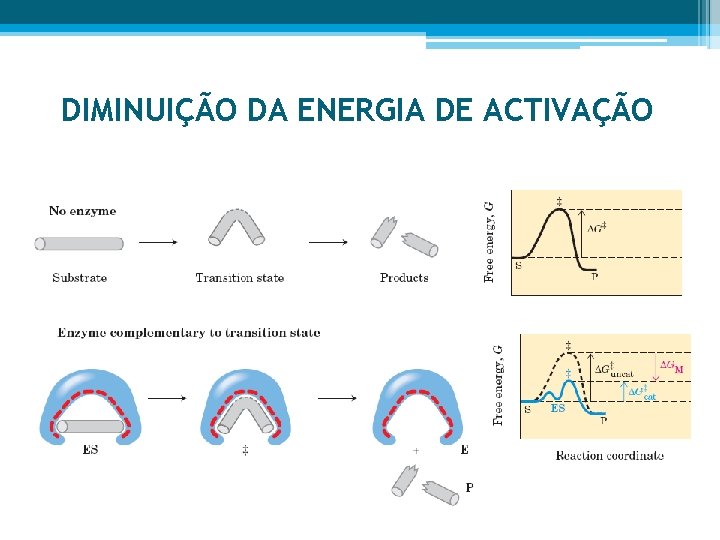
DIMINUIÇÃO DA ENERGIA DE ACTIVAÇÃO
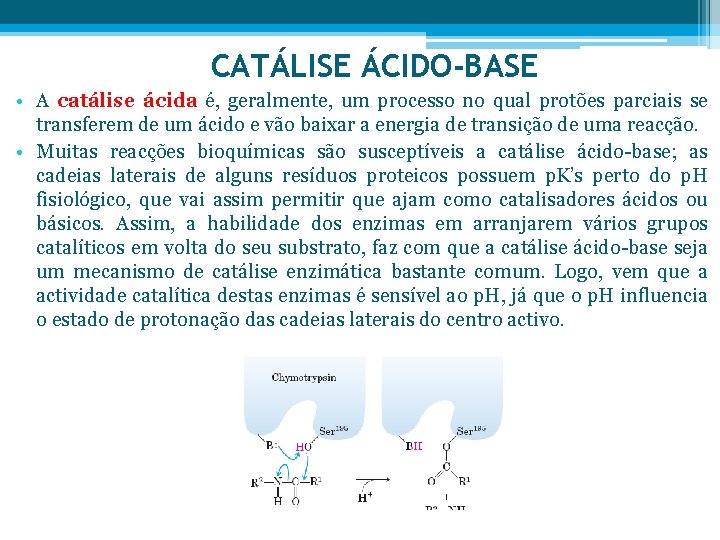
CATÁLISE ÁCIDO-BASE • A catálise ácida é, geralmente, um processo no qual protões parciais se transferem de um ácido e vão baixar a energia de transição de uma reacção. • Muitas reacções bioquímicas são susceptíveis a catálise ácido-base; as cadeias laterais de alguns resíduos proteicos possuem p. K’s perto do p. H fisiológico, que vai assim permitir que ajam como catalisadores ácidos ou básicos. Assim, a habilidade dos enzimas em arranjarem vários grupos catalíticos em volta do seu substrato, faz com que a catálise ácido-base seja um mecanismo de catálise enzimática bastante comum. Logo, vem que a actividade catalítica destas enzimas é sensível ao p. H, já que o p. H influencia o estado de protonação das cadeias laterais do centro activo.
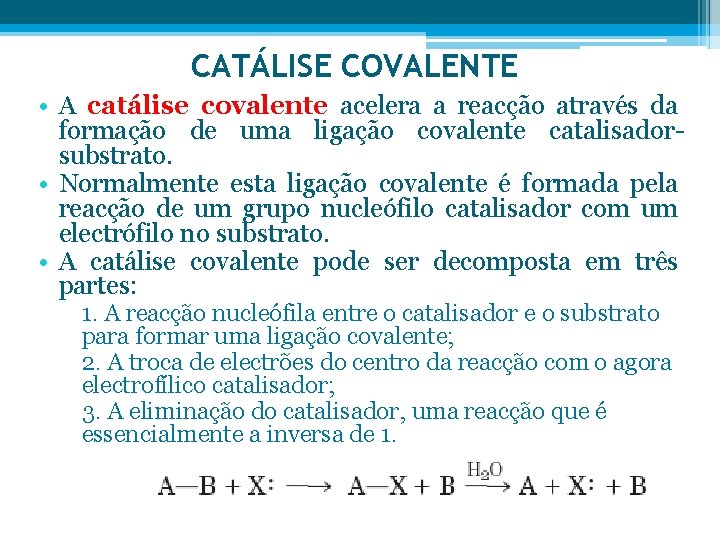
CATÁLISE COVALENTE • A catálise covalente acelera a reacção através da formação de uma ligação covalente catalisadorsubstrato. • Normalmente esta ligação covalente é formada pela reacção de um grupo nucleófilo catalisador com um electrófilo no substrato. • A catálise covalente pode ser decomposta em três partes: 1. A reacção nucleófila entre o catalisador e o substrato para formar uma ligação covalente; 2. A troca de electrões do centro da reacção com o agora electrofílico catalisador; 3. A eliminação do catalisador, uma reacção que é essencialmente a inversa de 1.
CATÁLISE METAL-IÓNICA • Perto de um terço de todos os enzimas conhecidos necessitam da presença de iões metálicos para a actividade catalítica. Este grupo de enzimas inclui as metaloenzimas que contêm como cofactores iões metálicos (como o próprio nome indica). • Os enzimas metal-activados, em contraste, ligam metais iónicos de soluções, usualmente metais alcalinos ou alcalino-terrosos.
• Os iões metálicos participam no processo catalítico de três formas principais: 1. Ligando-se aos substratos, de maneira a orientálos adequadamente para a reacção; 2. Permitindo reacções redox, através de mudanças reversíveis nos seus estados de oxidação; 3. Através de estabilização electrostática ou “blindando” cargas negativas.
CATÁLISE ELECTROSTÁTICA • A ligação de um substrato geralmente exclui a água do centro activo dum enzima. Assim, pode dizerse que o centro activo tem as características polares dum solvente orgânico, onde as interacções electrostáticas são muito mais fortes que numa solução aquosa. • As distribuições de carga à volta do centro activo de um enzima estão arranjadas de maneira a estabilizar os estados de transição das reacções catalisadas. • Por outro lado, em muitos enzimas as distribuições das cargas vão, aparentemente, guiar substratos polares aos sítios da ligação, aumentando assim a velocidade da reacção.
CATÁLISE ATRAVÉS DE PROXIMIDADE E EFEITOS DE ORIENTAÇÃO • Os efeitos mais óbvios são proximidade e orientação: os reagentes têm de se “unir” ao enzima com a relação espacial própria, de forma a poder dar-se a reacção. Assim, por simplesmente ligarem os seus substratos, os enzimas facilitam a reacção em três aspectos: 1. Os enzimas levam os substratos ao contacto com os seus grupos catalíticos; 2. Os enzimas ligam os seus substratos na orientação adequada para a reacção; 3. Os enzimas param as deslocações de translação e rotação dos substratos e grupos catalíticos. Este aspecto é importante pois favorece o aparecimento do estado de transição, onde os movimentos relativos aos compostos são mínimos.
CATÁLISE POR PREFERÊNCIA DE LIGAÇÃO E DE ESTADO DE TRANSIÇÃO • Um enzima pode ligar o estado de transição da reacção que catalisa com maior afinidade que os substratos ou produtos. • Assim, os enzimas que se ligam preferencialmente ao estado de transição aumentam a concentração deste, aumentando assim proporcionalmente a velocidade da reacção. • Por este facto, os estados de transição análogos são inibidores da reacção, uma vez que o enzima os “agarra” como se fossem a molécula a catalisar, inactivando-a. • Acontece por vezes que estes análogos tenham maior afinidade com o enzima do que a molécula que pretendemos catalisar.
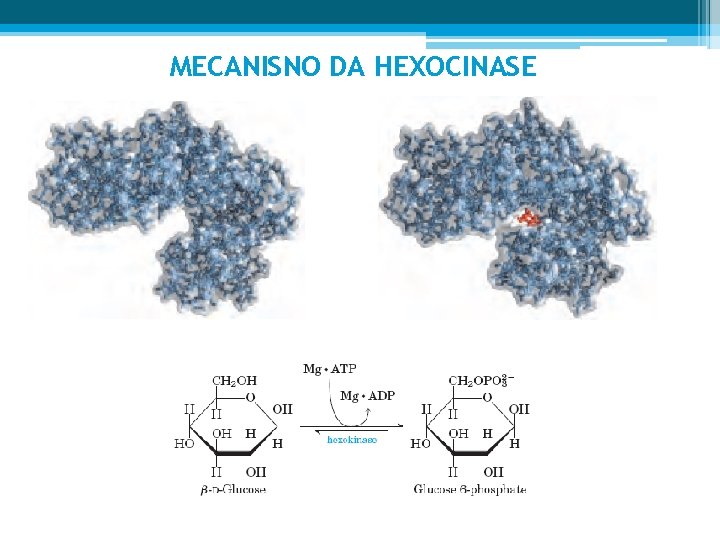
MECANISNO DA HEXOCINASE
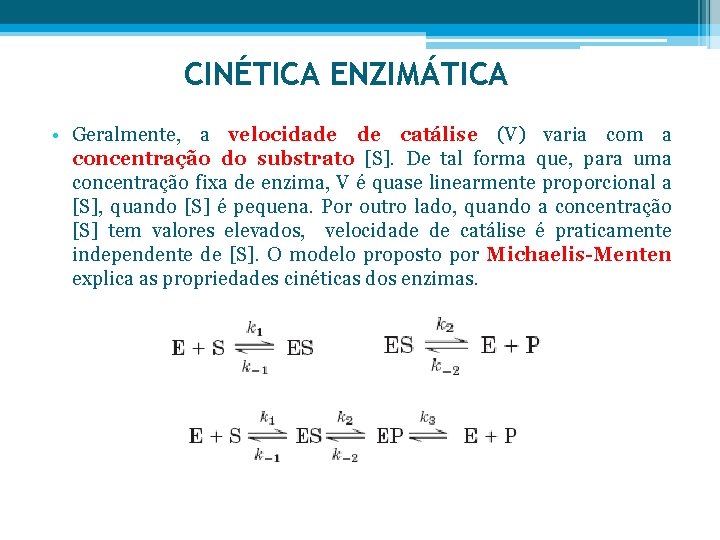
CINÉTICA ENZIMÁTICA • Geralmente, a velocidade de catálise (V) varia com a concentração do substrato [S]. De tal forma que, para uma concentração fixa de enzima, V é quase linearmente proporcional a [S], quando [S] é pequena. Por outro lado, quando a concentração [S] tem valores elevados, velocidade de catálise é praticamente independente de [S]. O modelo proposto por Michaelis-Menten explica as propriedades cinéticas dos enzimas.
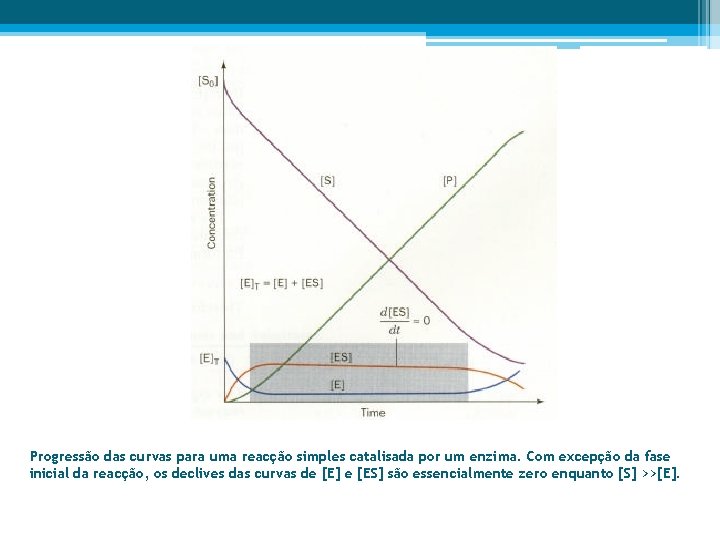
Progressão das curvas para uma reacção simples catalisada por um enzima. Com excepção da fase inicial da reacção, os declives das curvas de [E] e [ES] são essencialmente zero enquanto [S] >>[E].
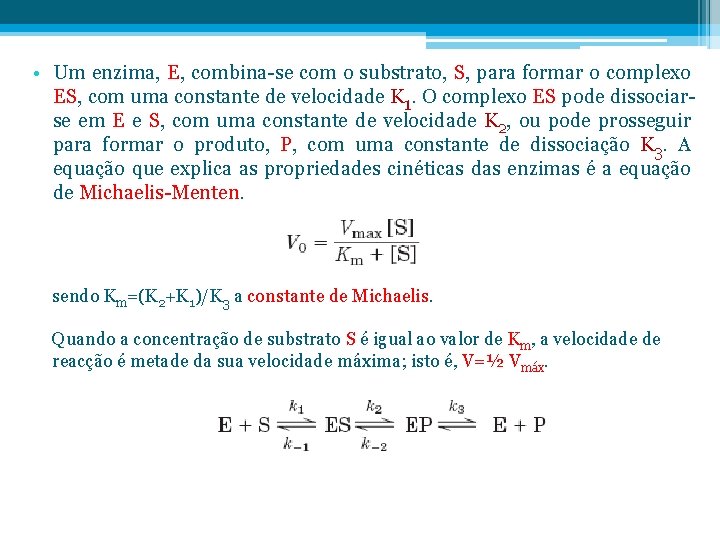
• Um enzima, E, combina-se com o substrato, S, para formar o complexo ES, com uma constante de velocidade K 1. O complexo ES pode dissociarse em E e S, com uma constante de velocidade K 2, ou pode prosseguir para formar o produto, P, com uma constante de dissociação K 3. A equação que explica as propriedades cinéticas das enzimas é a equação de Michaelis-Menten. sendo Km=(K 2+K 1)/K 3 a constante de Michaelis. Quando a concentração de substrato S é igual ao valor de Km, a velocidade de reacção é metade da sua velocidade máxima; isto é, V=½ Vmáx.
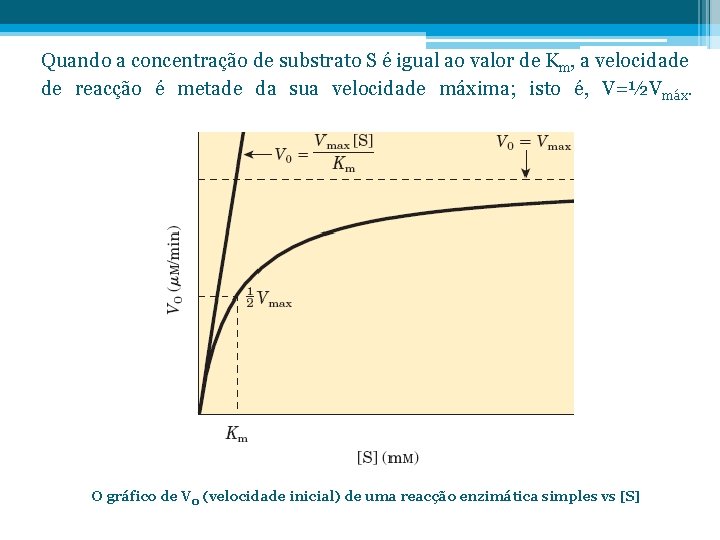
Quando a concentração de substrato S é igual ao valor de Km, a velocidade de reacção é metade da sua velocidade máxima; isto é, V=½Vmáx. O gráfico de V 0 (velocidade inicial) de uma reacção enzimática simples vs [S]
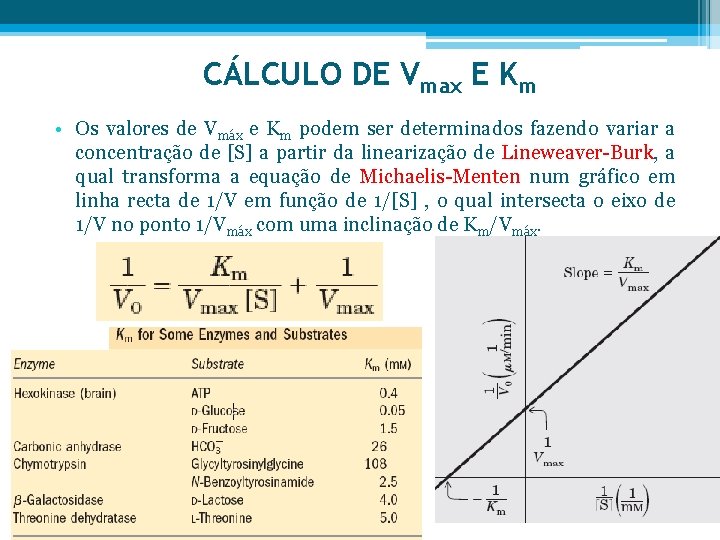
CÁLCULO DE Vmax E Km • Os valores de Vmáx e Km podem ser determinados fazendo variar a concentração de [S] a partir da linearização de Lineweaver-Burk, a qual transforma a equação de Michaelis-Menten num gráfico em linha recta de 1/V em função de 1/[S] , o qual intersecta o eixo de 1/V no ponto 1/Vmáx com uma inclinação de Km/Vmáx.
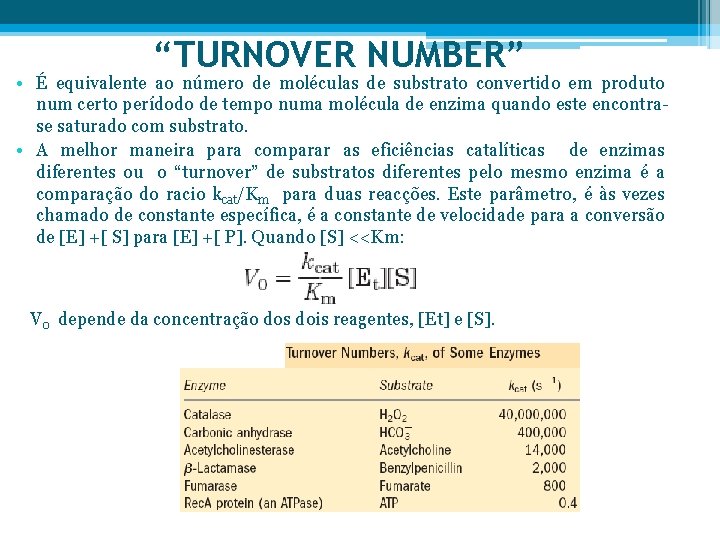
“TURNOVER NUMBER” • É equivalente ao número de moléculas de substrato convertido em produto num certo perídodo de tempo numa molécula de enzima quando este encontrase saturado com substrato. • A melhor maneira para comparar as eficiências catalíticas de enzimas diferentes ou o “turnover” de substratos diferentes pelo mesmo enzima é a comparação do racio kcat/Km para duas reacções. Este parâmetro, é às vezes chamado de constante específica, é a constante de velocidade para a conversão de [E] +[ S] para [E] +[ P]. Quando [S] <<Km: V 0 depende da concentração dos dois reagentes, [Et] e [S].
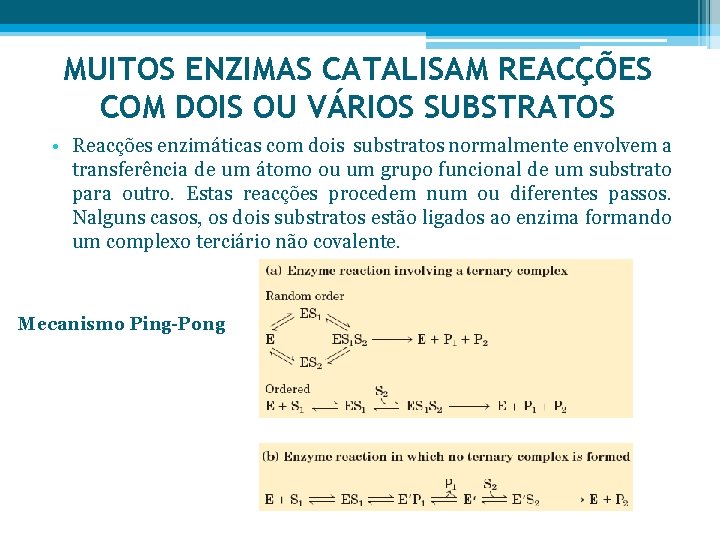
MUITOS ENZIMAS CATALISAM REACÇÕES COM DOIS OU VÁRIOS SUBSTRATOS • Reacções enzimáticas com dois substratos normalmente envolvem a transferência de um átomo ou um grupo funcional de um substrato para outro. Estas reacções procedem num ou diferentes passos. Nalguns casos, os dois substratos estão ligados ao enzima formando um complexo terciário não covalente. Mecanismo Ping-Pong
INIBIÇÃO ENZIMÁTICA • Os inibidores enzimáticos são agentes moleculares que interferem com a catálise, alterando ou tornado as reacções enzimáticas mais lentas. • Os enzimas catalisam praticamente todos os processos celulares. • Não é de surpreender que os inibidores enzimáticos são os agentes farmacológicos mais importantes. • Por exemplo, a aspirina (ácido acetilsalicílico) inibe o enzima que catalisa o primeiro passo da síntese de prostaglandis, compostos que estão involvidos em muitos processos, incluindo alguns que provocam a dor.
• Os enzimas podem sofrer dois tipos de inibição: 1. Inibição irreversível, na qual o inibidor se dissocia muito lentamente do “enzima-alvo”; 2. Inibição reversível, que é caracterizada por uma dissociação rápida do complexo enzima-inibidor.
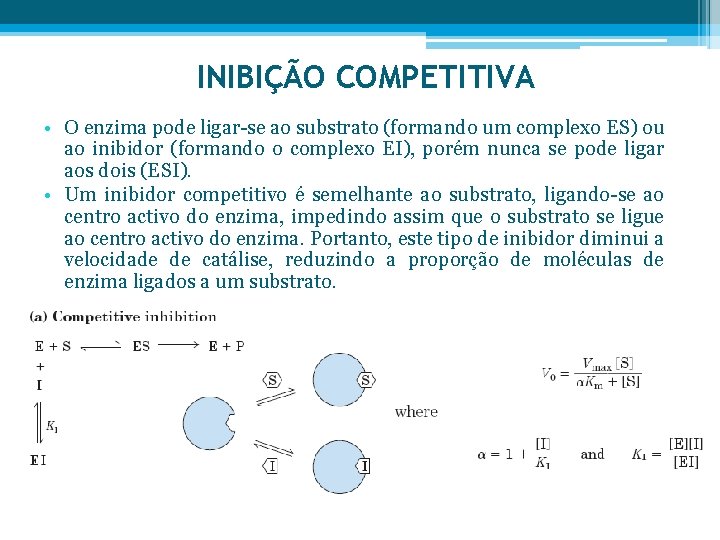
INIBIÇÃO COMPETITIVA • O enzima pode ligar-se ao substrato (formando um complexo ES) ou ao inibidor (formando o complexo EI), porém nunca se pode ligar aos dois (ESI). • Um inibidor competitivo é semelhante ao substrato, ligando-se ao centro activo do enzima, impedindo assim que o substrato se ligue ao centro activo do enzima. Portanto, este tipo de inibidor diminui a velocidade de catálise, reduzindo a proporção de moléculas de enzima ligados a um substrato.
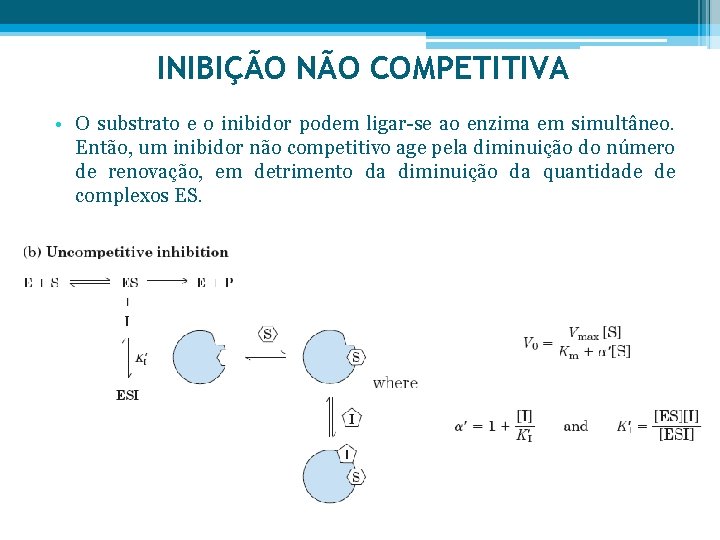
INIBIÇÃO NÃO COMPETITIVA • O substrato e o inibidor podem ligar-se ao enzima em simultâneo. Então, um inibidor não competitivo age pela diminuição do número de renovação, em detrimento da diminuição da quantidade de complexos ES.
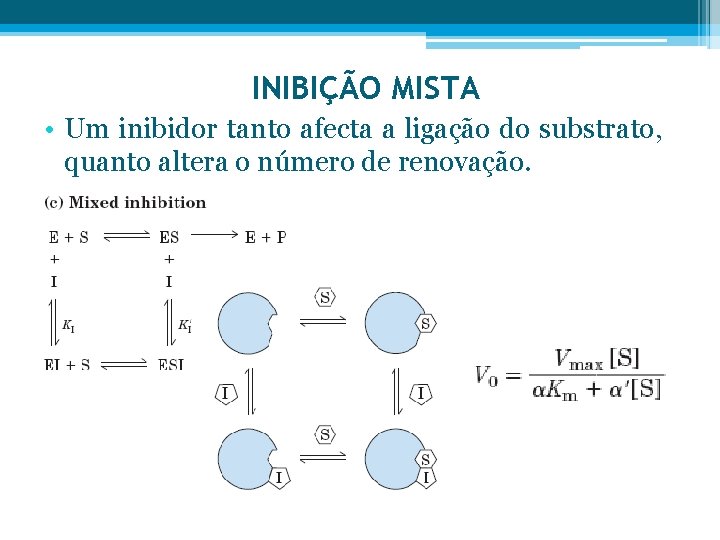
INIBIÇÃO MISTA • Um inibidor tanto afecta a ligação do substrato, quanto altera o número de renovação.
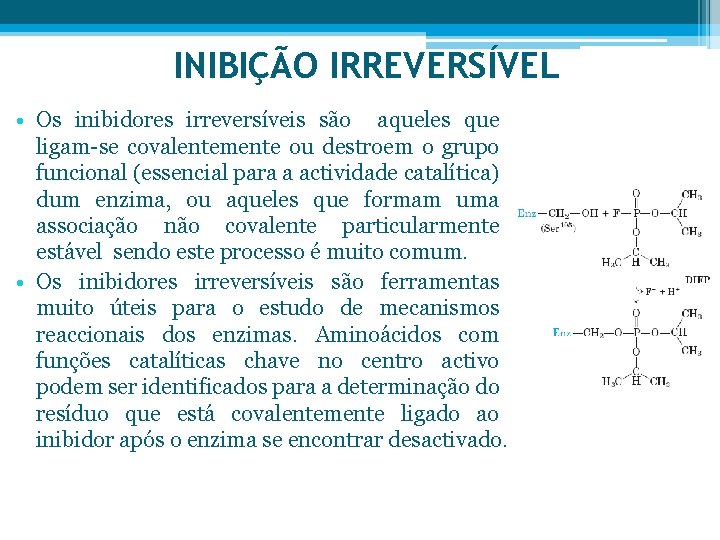
INIBIÇÃO IRREVERSÍVEL • Os inibidores irreversíveis são aqueles que ligam-se covalentemente ou destroem o grupo funcional (essencial para a actividade catalítica) dum enzima, ou aqueles que formam uma associação não covalente particularmente estável sendo este processo é muito comum. • Os inibidores irreversíveis são ferramentas muito úteis para o estudo de mecanismos reaccionais dos enzimas. Aminoácidos com funções catalíticas chave no centro activo podem ser identificados para a determinação do resíduo que está covalentemente ligado ao inibidor após o enzima se encontrar desactivado.
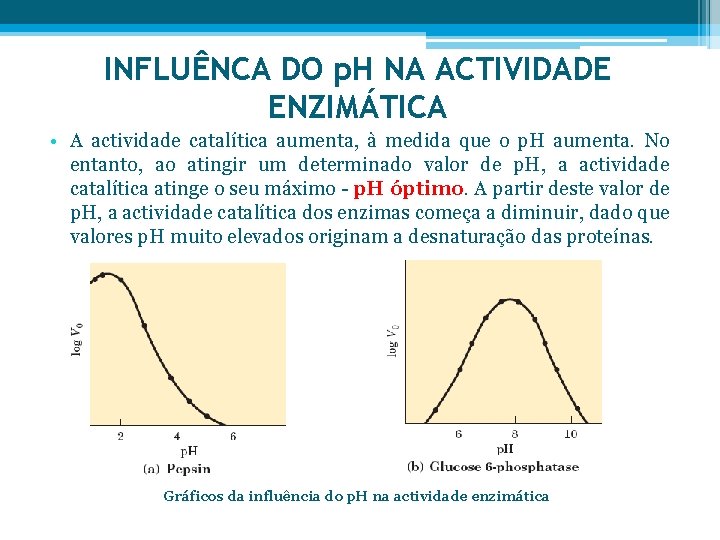
INFLUÊNCA DO p. H NA ACTIVIDADE ENZIMÁTICA • A actividade catalítica aumenta, à medida que o p. H aumenta. No entanto, ao atingir um determinado valor de p. H, a actividade catalítica atinge o seu máximo - p. H óptimo. A partir deste valor de p. H, a actividade catalítica dos enzimas começa a diminuir, dado que valores p. H muito elevados originam a desnaturação das proteínas. Gráficos da influência do p. H na actividade enzimática
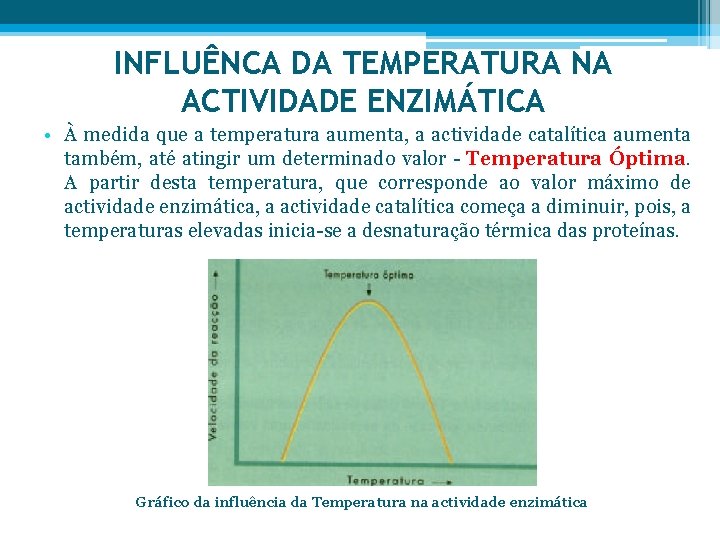
INFLUÊNCA DA TEMPERATURA NA ACTIVIDADE ENZIMÁTICA • À medida que a temperatura aumenta, a actividade catalítica aumenta também, até atingir um determinado valor - Temperatura Óptima. A partir desta temperatura, que corresponde ao valor máximo de actividade enzimática, a actividade catalítica começa a diminuir, pois, a temperaturas elevadas inicia-se a desnaturação térmica das proteínas. Gráfico da influência da Temperatura na actividade enzimática
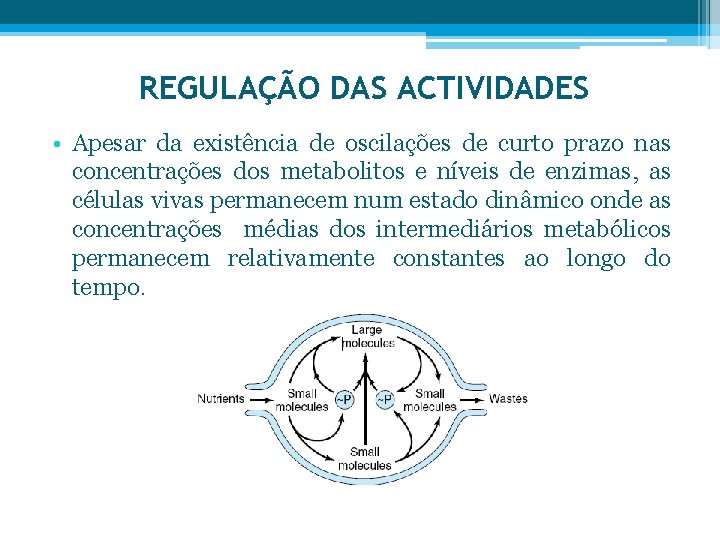
REGULAÇÃO DAS ACTIVIDADES • Apesar da existência de oscilações de curto prazo nas concentrações dos metabolitos e níveis de enzimas, as células vivas permanecem num estado dinâmico onde as concentrações médias dos intermediários metabólicos permanecem relativamente constantes ao longo do tempo.
- Slides: 40