
El anabolismo Anabolismo Es la parte constructiva del
El anabolismo
Anabolismo Es la parte constructiva del metabolismo, consiste en la síntesis de moléculas complejas a partir de otras más sencillas, con el consiguiente gasto de energía, tomada de los ATP producidos durante las fases catabólicas. Estas moléculas sintetizadas pueden: ► Formar parte de la propia estructura de la célula. ► Ser almacenadas y utilizada como fuente de energía. ► Ser exportadas al exterior de la célula.
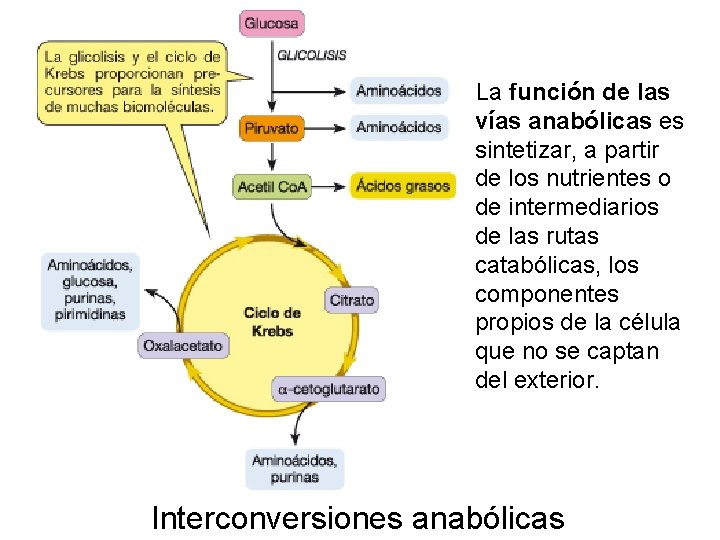
La función de las vías anabólicas es sintetizar, a partir de los nutrientes o de intermediarios de las rutas catabólicas, los componentes propios de la célula que no se captan del exterior. Interconversiones anabólicas
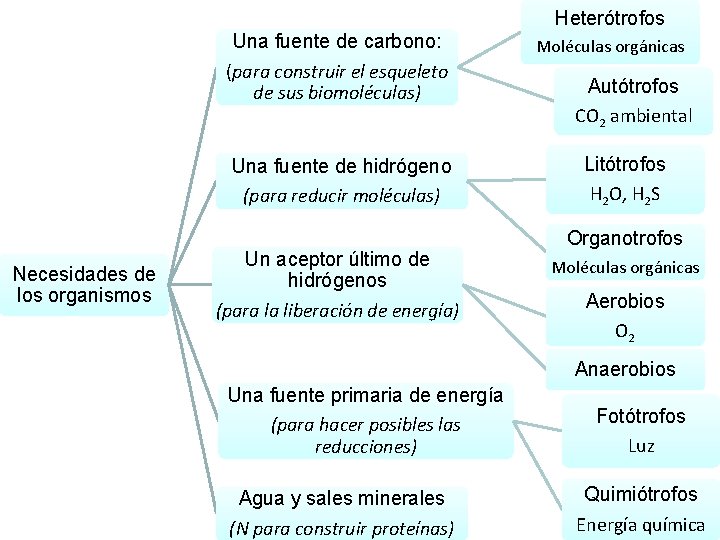
Heterótrofos Una fuente de carbono: (para construir el esqueleto de sus biomoléculas) Una fuente de hidrógeno (para reducir moléculas) Necesidades de los organismos Un aceptor último de hidrógenos (para la liberación de energía) Moléculas orgánicas Autótrofos CO 2 ambiental Litótrofos H 2 O, H 2 S Organotrofos Moléculas orgánicas Aerobios O 2 Anaerobios Una fuente primaria de energía (para hacer posibles las reducciones) Agua y sales minerales (N para construir proteínas) Fotótrofos Luz Quimiótrofos Energía química
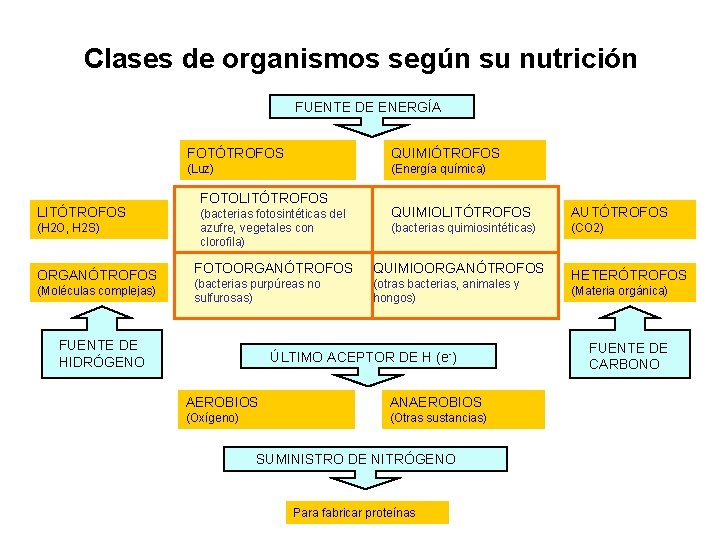
Clases de organismos según su nutrición FUENTE DE ENERGÍA LITÓTROFOS (H 2 O, H 2 S) ORGANÓTROFOS (Moléculas complejas) FOTÓTROFOS QUIMIÓTROFOS (Luz) (Energía química) FOTOLITÓTROFOS (bacterias fotosintéticas del azufre, vegetales con clorofila) QUIMIOLITÓTROFOS AUTÓTROFOS (bacterias quimiosintéticas) (CO 2) FOTOORGANÓTROFOS QUIMIOORGANÓTROFOS (bacterias purpúreas no sulfurosas) (otras bacterias, animales y hongos) FUENTE DE HIDRÓGENO ÚLTIMO ACEPTOR DE H (e-) AEROBIOS ANAEROBIOS (Oxígeno) (Otras sustancias) SUMINISTRO DE NITRÓGENO Para fabricar proteínas HETERÓTROFOS (Materia orgánica) FUENTE DE CARBONO
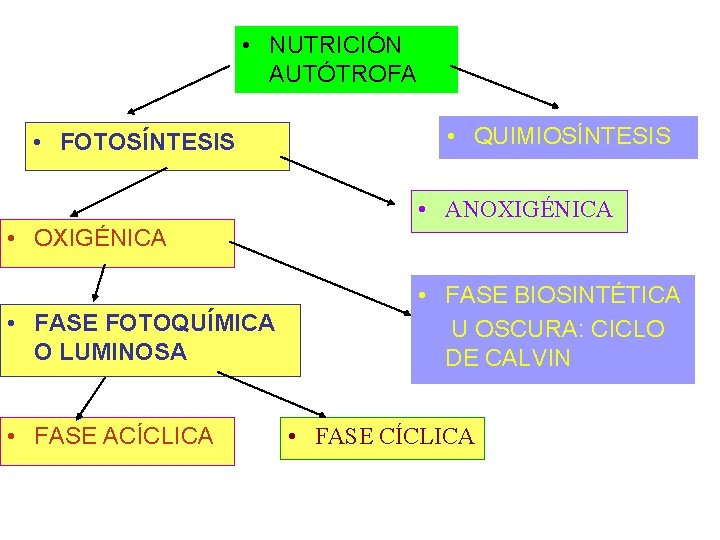
• NUTRICIÓN AUTÓTROFA • FOTOSÍNTESIS • QUIMIOSÍNTESIS • ANOXIGÉNICA • OXIGÉNICA • FASE FOTOQUÍMICA O LUMINOSA • FASE ACÍCLICA • FASE BIOSINTÉTICA U OSCURA: CICLO DE CALVIN • FASE CÍCLICA
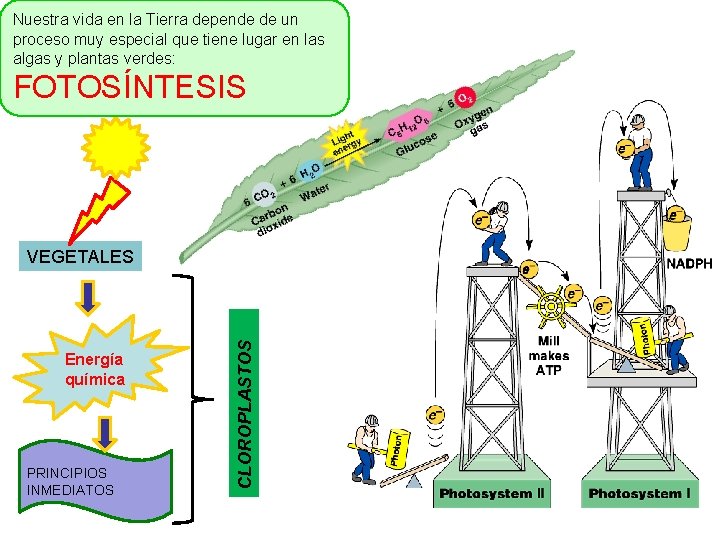
Nuestra vida en la Tierra depende de un proceso muy especial que tiene lugar en las algas y plantas verdes: FOTOSÍNTESIS Energía química PRINCIPIOS INMEDIATOS CLOROPLASTOS VEGETALES
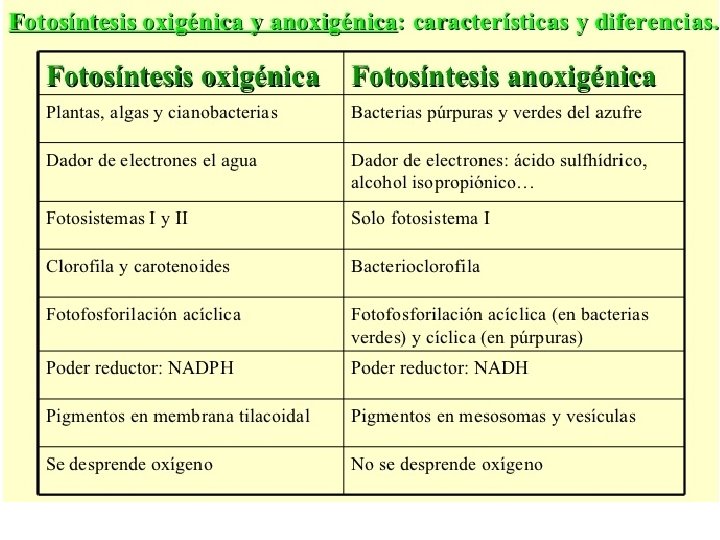
Proceso mediante el cual la materia inorgánica se transforma en orgánica y paralelamente se absorbe energía luminosa que se transforma en energía química, la cual queda almacenada en las sustancias orgánicas obtenidas. Existen dos tipos de fotosíntesis: Fotosíntesis oxigénica: el donador de electrones es el H 2 O por lo que en el proceso se desprende O 2, mientras que el aceptor de electrones es el NADP+ Fotosíntesis anoxigénica: el donador de electrones es una sustancia distinta del agua, como por ejemplo H 2 S, así no se desprende O 2, y el aceptor de electrones es el NAD+
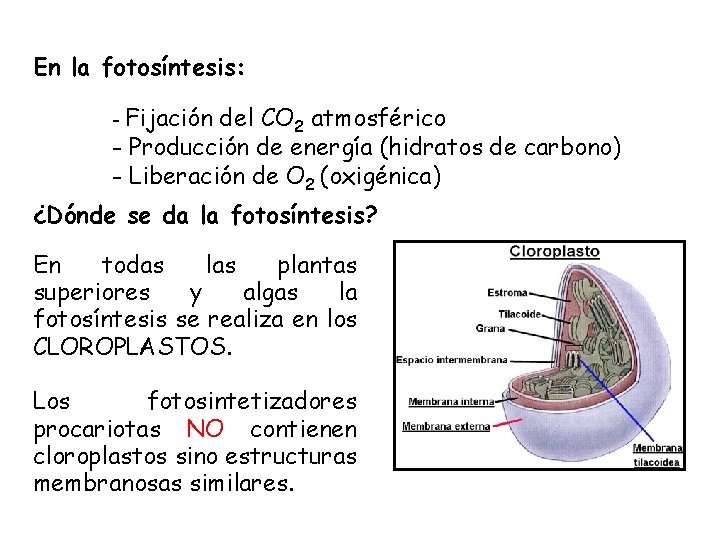
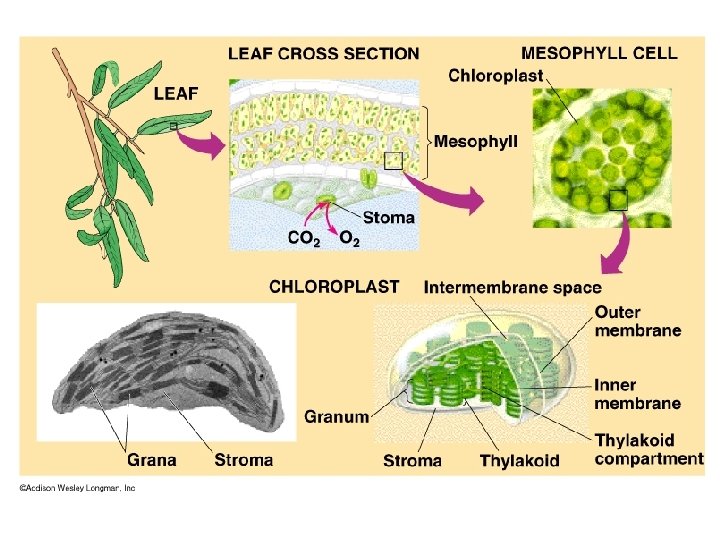
En la fotosíntesis: - Fijación del CO 2 atmosférico - Producción de energía (hidratos de carbono) - Liberación de O 2 (oxigénica) ¿Dónde se da la fotosíntesis? En todas las plantas superiores y algas la fotosíntesis se realiza en los CLOROPLASTOS. Los fotosintetizadores procariotas NO contienen cloroplastos sino estructuras membranosas similares.
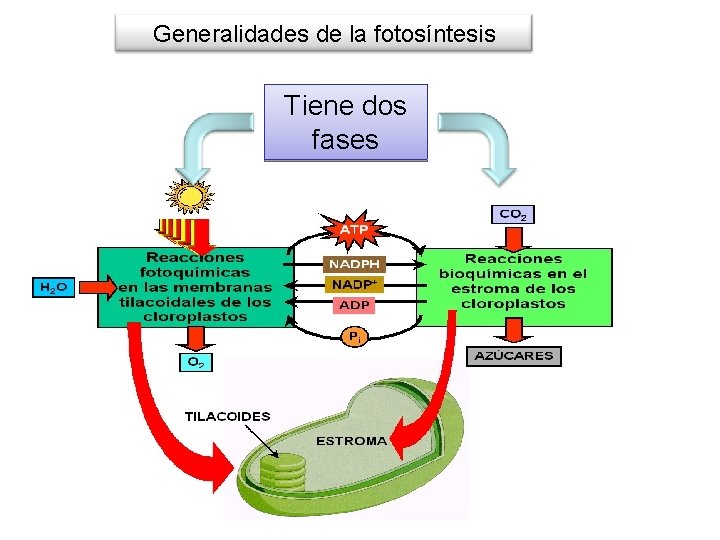
Generalidades de la fotosíntesis Tiene dos fases Fase luminosa Membrana de los tilacoides NADP+ NADPH Fotofosforilación (ATP) Fase oscura Estroma Fijación del CO 2 Obtención de biomoléculas Gasto de ATP y NADPH
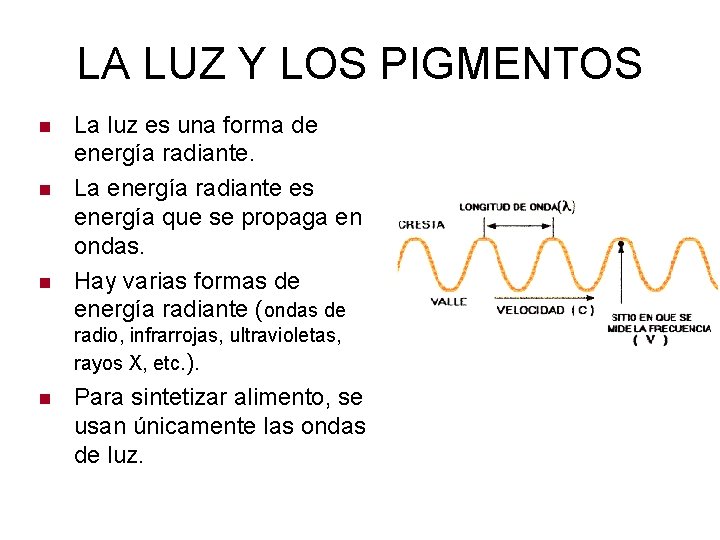
LA LUZ Y LOS PIGMENTOS La luz es una forma de energía radiante. La energía radiante es energía que se propaga en ondas. Hay varias formas de energía radiante (ondas de radio, infrarrojas, ultravioletas, rayos X, etc. ). Para sintetizar alimento, se usan únicamente las ondas de luz.
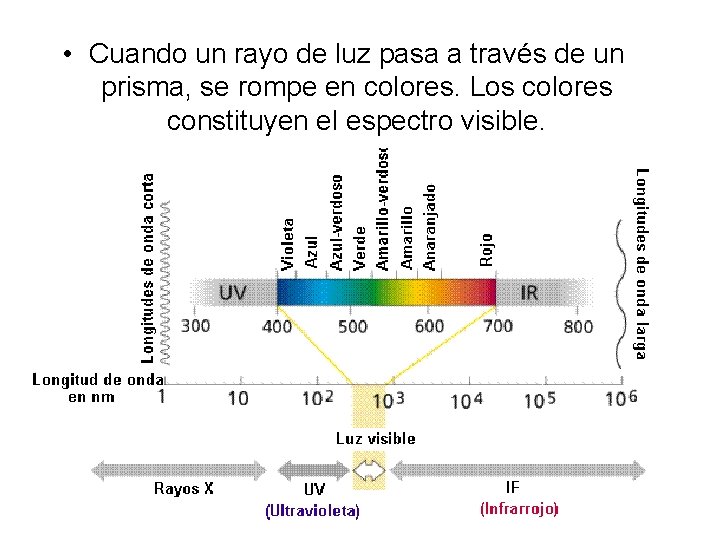
• Cuando un rayo de luz pasa a través de un prisma, se rompe en colores. Los colores constituyen el espectro visible.
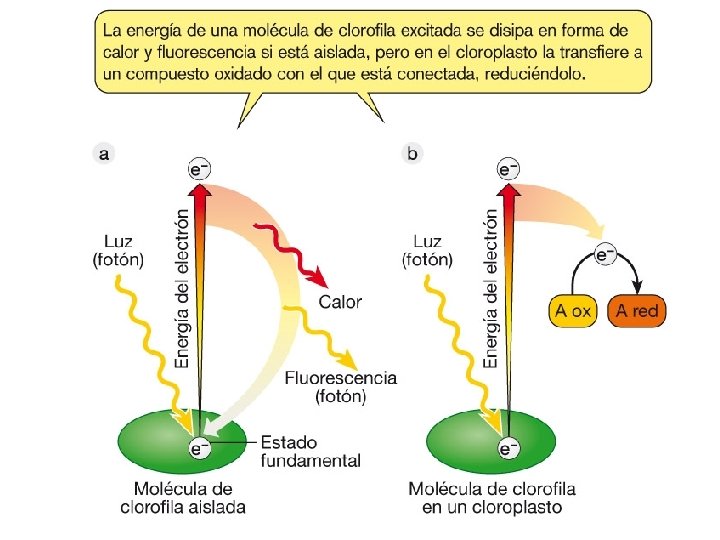
• Los electrones de una sustancia se encuentran en orbitales caracterizados por un determinado nivel energético. Lo normal es que estado sea lo más bajo posible y recibe el nombre de estado fundamental. • Los electrones pueden excitarse, es decir ocupar orbitales de mayor contenido energético. Naturalmente, el paso de un estado fundamental a uno excitado requiere un aporte de energía, que puede provenir de la luz.
• Como el estado excitado es inestable, cuando un electrón pasa a él, tiende a retornar al estado fundamental devolviendo energía: • Puede devolverla como radiación luminosa (fluorescencia). • También transfiriendo la excitación a otra molécula; el electrón originalmente excitado vuelve al estado fundamental y es uno de la otra molécula el queda excitado. • Pero aún queda otra posibilidad, ya que un electrón excitado puede cederse con más facilidad a un aceptor. En este caso, el resultado es que la sustancia que inicialmente se excitó queda oxidada y el aceptor reducido.
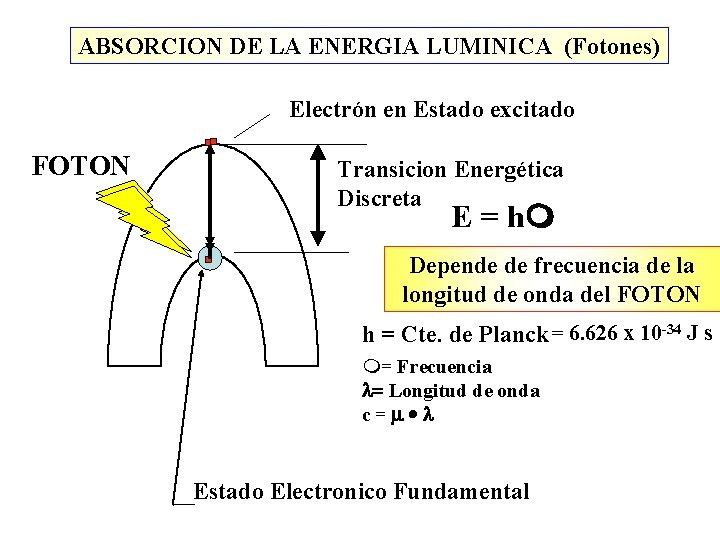
ABSORCION DE LA ENERGIA LUMINICA (Fotones) Electrón en Estado excitado FOTON Transicion Energética Discreta E = h Depende de frecuencia de la longitud de onda del FOTON h = Cte. de Planck = 6. 626 x 10 -34 J s m= Frecuencia l= Longitud de onda c=m·l Estado Electronico Fundamental
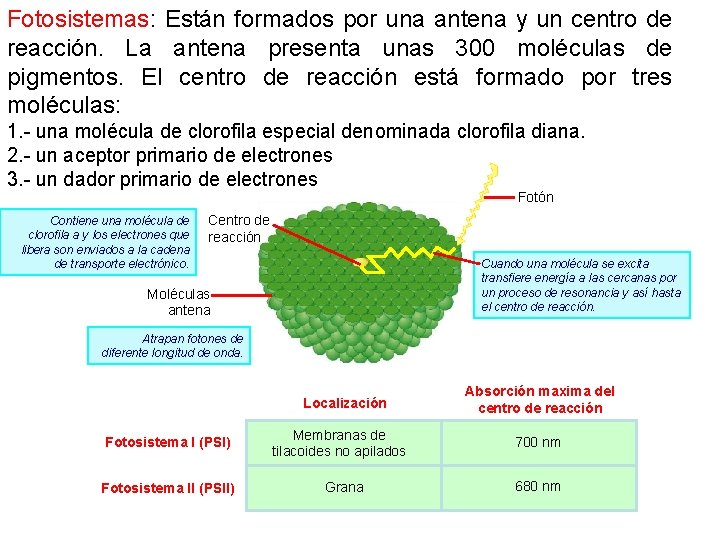
Fotosistemas: Están formados por una antena y un centro de reacción. La antena presenta unas 300 moléculas de pigmentos. El centro de reacción está formado por tres moléculas: 1. - una molécula de clorofila especial denominada clorofila diana. 2. - un aceptor primario de electrones 3. - un dador primario de electrones Fotón Contiene una molécula de clorofila a y los electrones que libera son enviados a la cadena de transporte electrónico. Centro de reacción Cuando una molécula se excita transfiere energía a las cercanas por un proceso de resonancia y así hasta el centro de reacción. Moléculas antena Atrapan fotones de diferente longitud de onda. Localización Fotosistema I (PSI) Fotosistema II (PSII) Membranas de tilacoides no apilados Grana Absorción maxima del centro de reacción 700 nm 680 nm
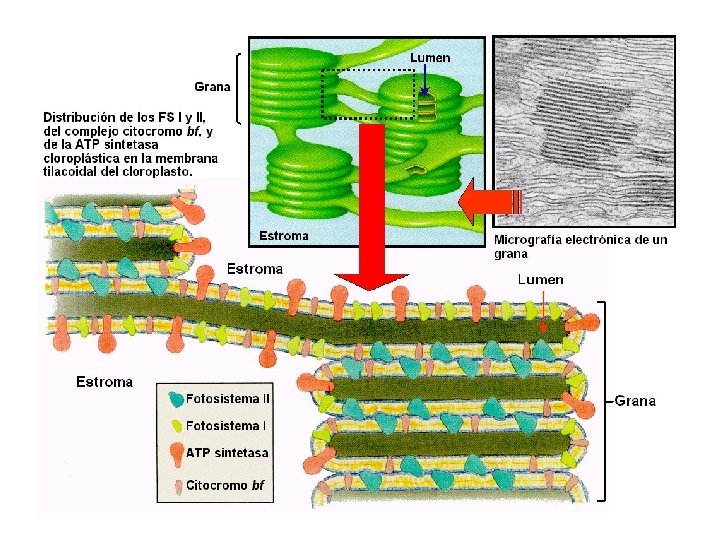
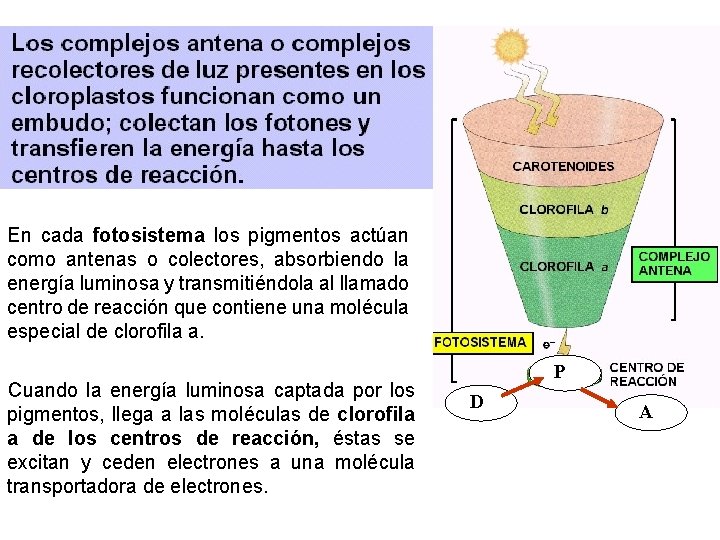
En cada fotosistema los pigmentos actúan como antenas o colectores, absorbiendo la energía luminosa y transmitiéndola al llamado centro de reacción que contiene una molécula especial de clorofila a. Cuando la energía luminosa captada por los pigmentos, llega a las moléculas de clorofila a de los centros de reacción, éstas se excitan y ceden electrones a una molécula transportadora de electrones. P D A
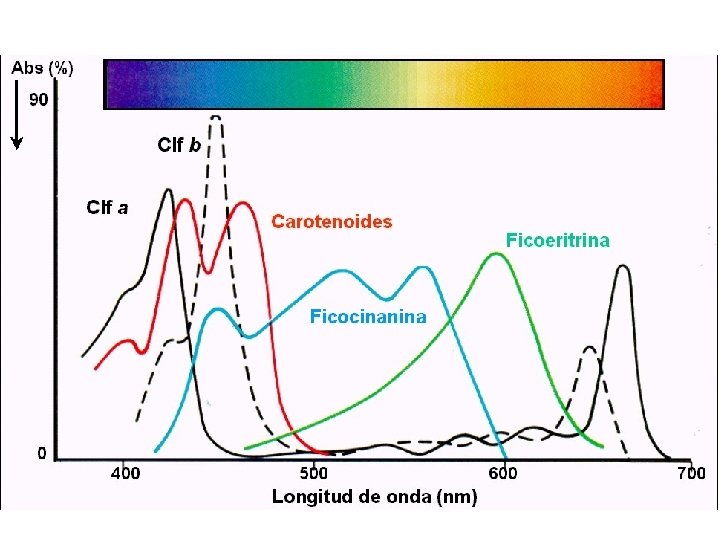
• • • Hay varias clases de clorofila, las cuales, generalmente se designan como a, b, c y d. Algunas bacterias poseen una clase de clorofila que no está en las plantas ni en las algas. Sin embargo, todas las moléculas de clorofila contienen el elemento magnesio (Mg). Los autótrofos también poseen unos pigmentos llamados carotenoides que pueden ser de color anaranjado, amarillo o rojo. El color verde de la clorofila generalmente enmascara estos pigmentos. Los cuales, sin embargo, se pueden ver en las hojas durante el otoño, cuando disminuye la cantidad de clorofila. Los carotenoides también absorben luz pero son menos importantes que la clorofila en este proceso.
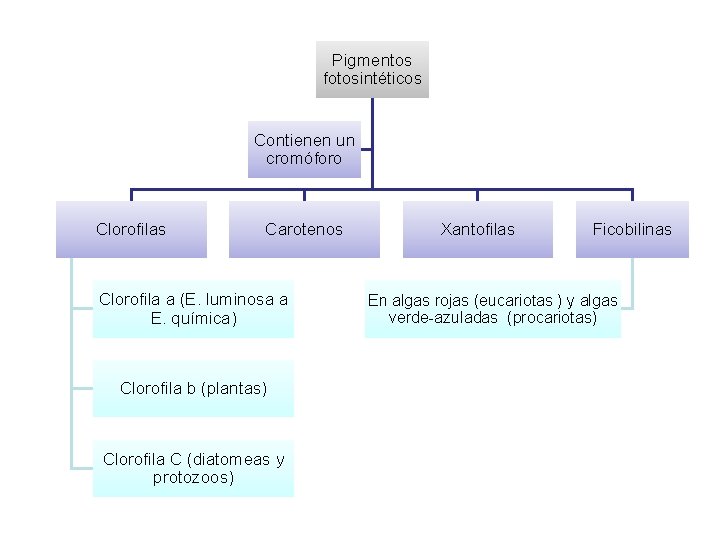
Pigmentos fotosintéticos Contienen un cromóforo Clorofilas Carotenos Clorofila a (E. luminosa a E. química) Clorofila b (plantas) Clorofila C (diatomeas y protozoos) Xantofilas Ficobilinas En algas rojas (eucariotas ) y algas verde-azuladas (procariotas)
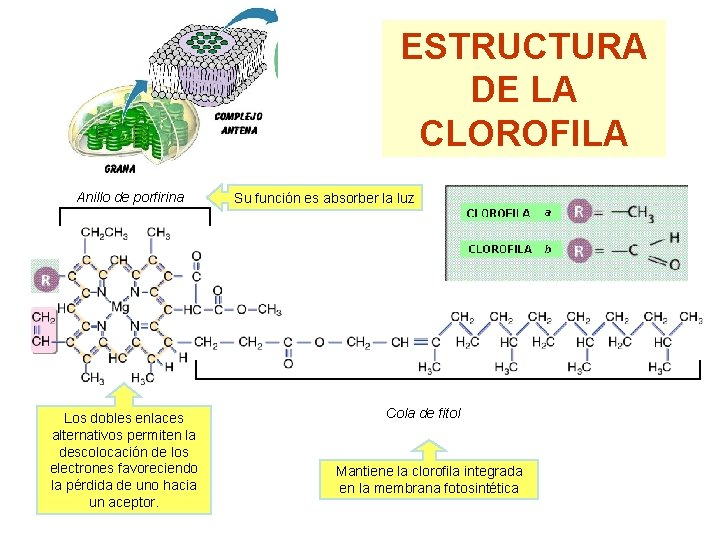
ESTRUCTURA DE LA CLOROFILA Anillo de porfirina Los dobles enlaces alternativos permiten la descolocación de los electrones favoreciendo la pérdida de uno hacia un aceptor. Su función es absorber la luz Cola de fitol Mantiene la clorofila integrada en la membrana fotosintética
Procesos que se llevan a cabo en la fase luminosa 1. Síntesis de ATP o fotofosforilación, que puede ser: acíclica (alternativa, genera ATP cuando abunda NADPH) 2. Síntesis de poder reductor (NADPH). 3. Fotolisis del agua. Implica transporte de electrones debido a la energía de la luz.
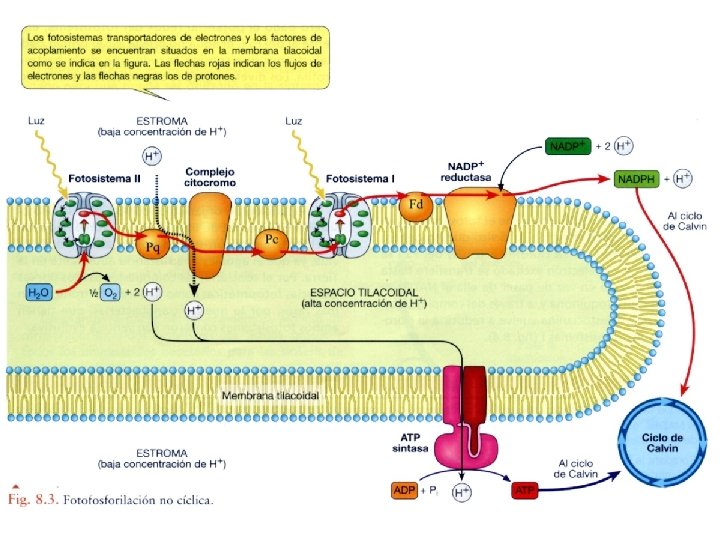
Ambos fotosistemas cooperan en el transporte de electrones desde el agua hasta el NADP+ que capta dos electrones y un protón y se convierte en NADPH 2 H 2 O + 2 NADP+ 2 NADPH + 2 H+ + O 2 El par H 2 O/O 2 es un sistema de alto potencial redox, mientras que el par NADP+/NADPH es un sistema de bajo potencial redox. Como de forma espontánea los electrones circulan desde los sistemas de bajo potencial a los de alto potencial, este flujo se realiza en sentido inverso gracias a la energía de la luz
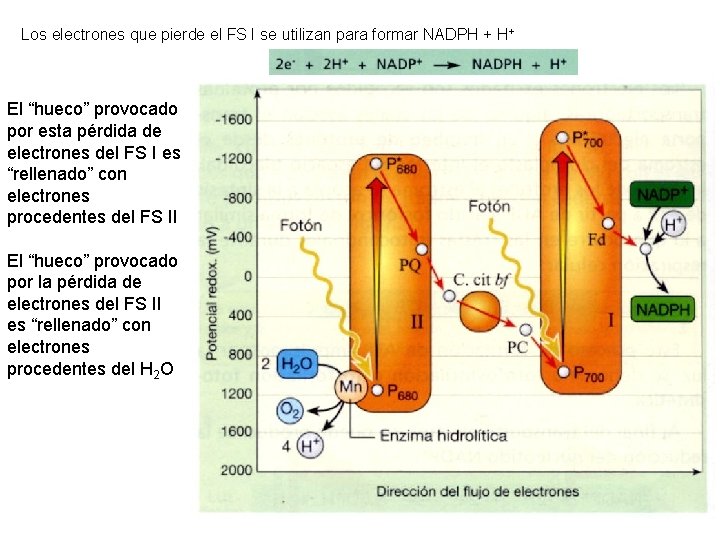
Los electrones que pierde el FS I se utilizan para formar NADPH + H+ El “hueco” provocado por esta pérdida de electrones del FS I es “rellenado” con electrones procedentes del FS II El “hueco” provocado por la pérdida de electrones del FS II es “rellenado” con electrones procedentes del H 2 O
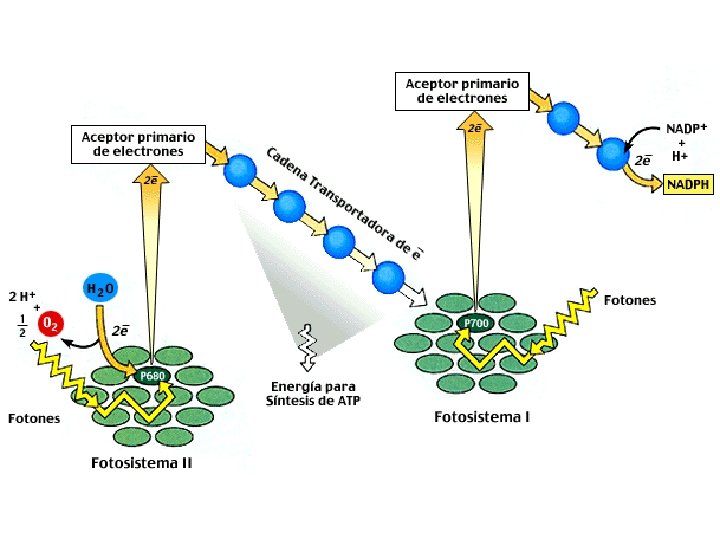
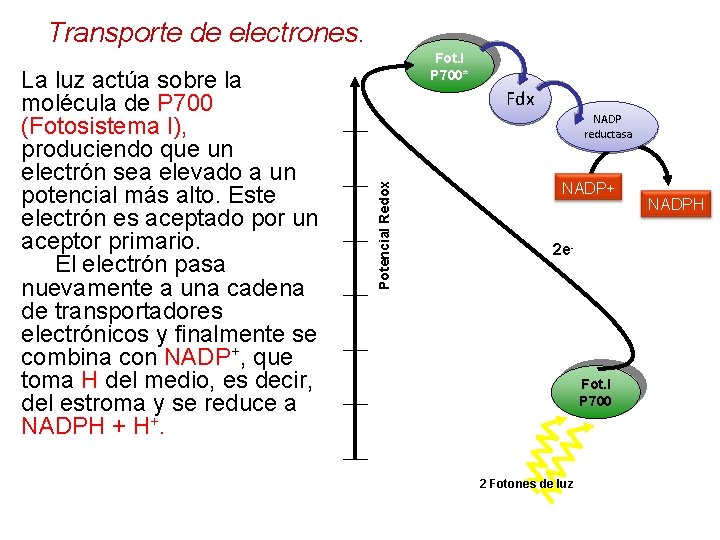
Transporte de electrones. Fdx NADP reductasa Potencial Redox La luz actúa sobre la molécula de P 700 (Fotosistema I), produciendo que un electrón sea elevado a un potencial más alto. Este electrón es aceptado por un aceptor primario. El electrón pasa nuevamente a una cadena de transportadores electrónicos y finalmente se combina con NADP+, que toma H del medio, es decir, del estroma y se reduce a NADPH + H+. Fot. I P 700* NADP+ 2 e- Fot. I P 700 2 Fotones de luz NADPH
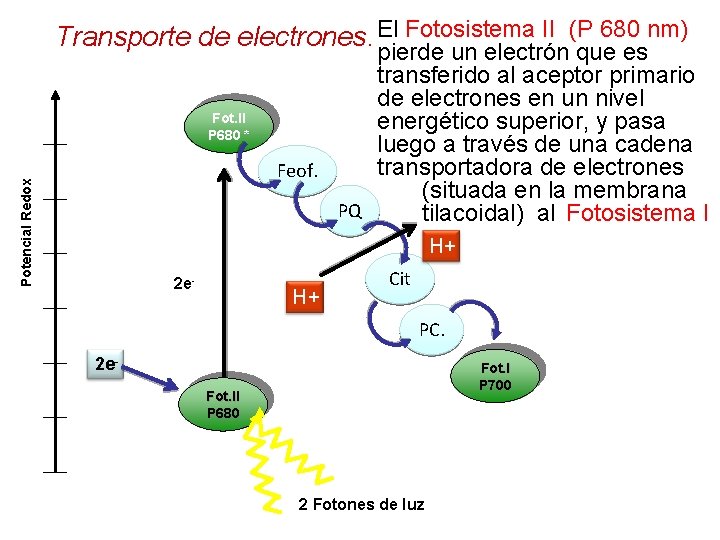
Transporte de electrones. El Fotosistema II (P 680 nm) Potencial Redox Fot. II P 680 * pierde un electrón que es transferido al aceptor primario de electrones en un nivel energético superior, y pasa luego a través de una cadena transportadora de electrones Feof. (situada en la membrana PQ tilacoidal) al Fotosistema I H+ 2 e- H+ Cit PC. 2 e- Fot. I P 700 Fot. II P 680 2 Fotones de luz
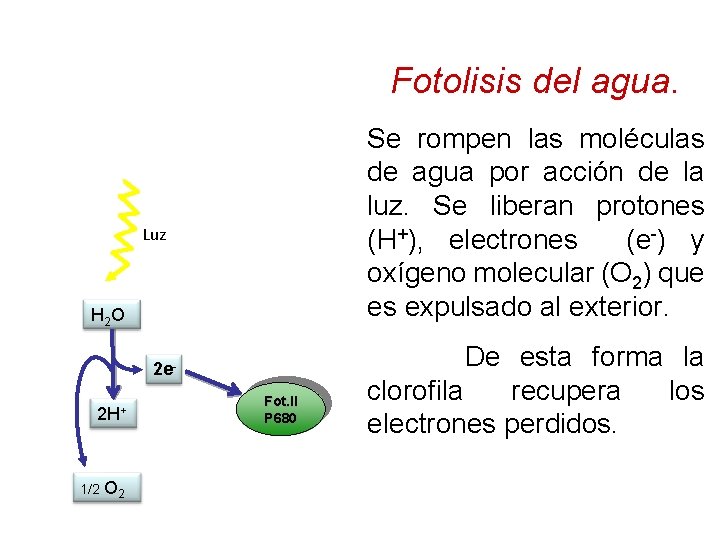
Fotolisis del agua. Se rompen las moléculas de agua por acción de la luz. Se liberan protones (H+), electrones (e-) y oxígeno molecular (O 2) que es expulsado al exterior. Luz H 2 O 2 e 2 H+ 1/2 O 2 Fot. II P 680 De esta forma la clorofila recupera los electrones perdidos.
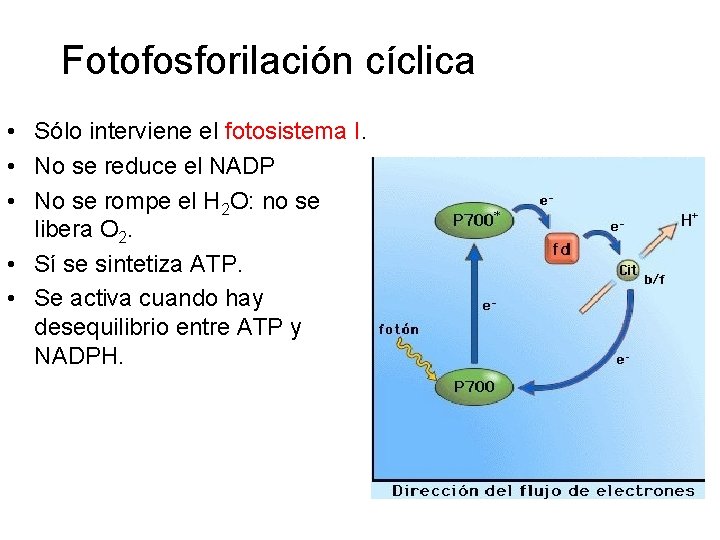
Fotofosforilación cíclica • Sólo interviene el fotosistema I. • No se reduce el NADP • No se rompe el H 2 O: no se libera O 2. • Sí se sintetiza ATP. • Se activa cuando hay desequilibrio entre ATP y NADPH.
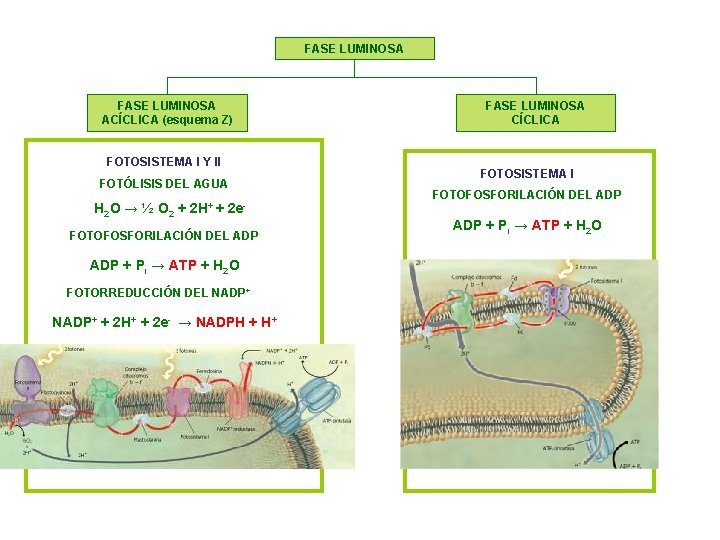
FASE LUMINOSA ACÍCLICA (esquema Z) FOTOSISTEMA I Y II FOTÓLISIS DEL AGUA H 2 O → ½ O 2 + 2 H+ + 2 e- FOTOFOSFORILACIÓN DEL ADP + Pi → ATP + H 2 O FOTORREDUCCIÓN DEL NADP+ + 2 H+ + 2 e- → NADPH + H+ FASE LUMINOSA CÍCLICA FOTOSISTEMA I FOTOFOSFORILACIÓN DEL ADP + Pi → ATP + H 2 O
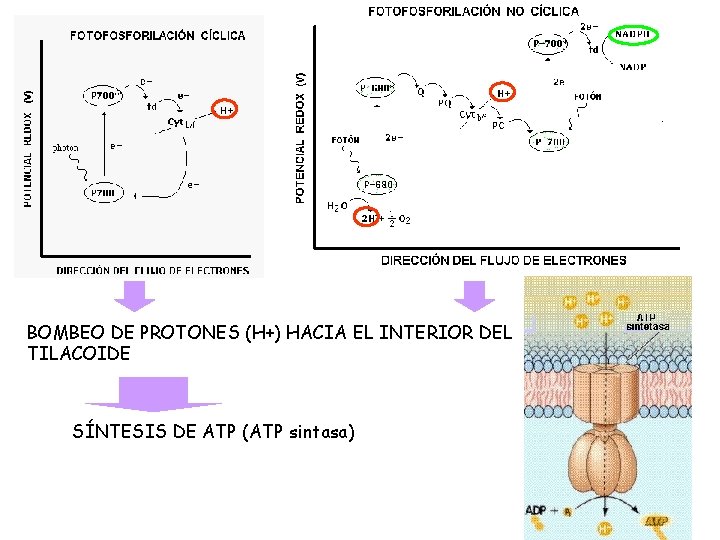
BOMBEO DE PROTONES (H+) HACIA EL INTERIOR DEL TILACOIDE SÍNTESIS DE ATP (ATP sintasa)
En el cloroplasto se emplean ambos procesos indistintamente en todo momento. El que se emplee uno más que otro va a depender de las necesidades de la célula o lo que en realidad es lo mismo, de la presencia o ausencia de los substratos y de los productos que se generan. Así, si se consume mucho NADPH+ H+ en la síntesis de sustancias orgánicas, habrá mucho NADP+ , y será éste el que capte los electrones produciéndose la fotofosforilación acíclica. Si en el tilacoide hay mucho ADP y Pi y no hay NADP+ , entonces se dará la fotofosforilación cíclica. Será el consumo por la planta de ATP y de NADPH+ H+ , o, lo que es lo mismo, la existencia de los substratos ADP y NADP+ , la que determinará uno u otro proceso.
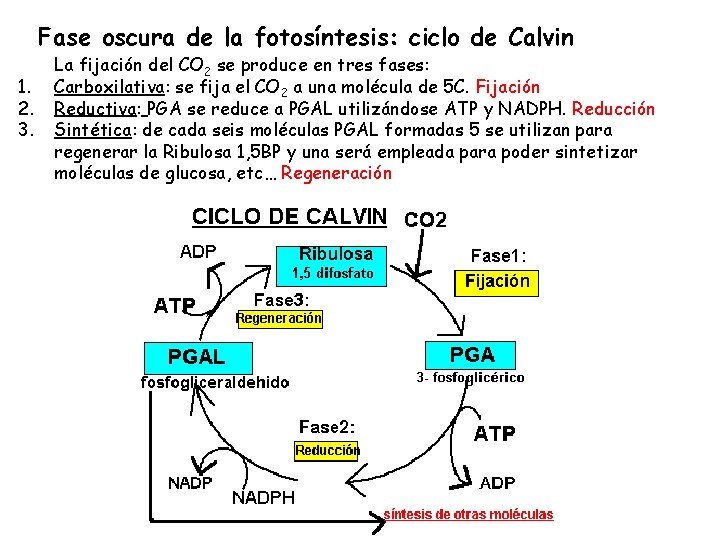
Fase oscura de la fotosíntesis: ciclo de Calvin 1. 2. 3. La fijación del CO 2 se produce en tres fases: Carboxilativa: se fija el CO 2 a una molécula de 5 C. Fijación Reductiva: PGA se reduce a PGAL utilizándose ATP y NADPH. Reducción Sintética: de cada seis moléculas PGAL formadas 5 se utilizan para regenerar la Ribulosa 1, 5 BP y una será empleada para poder sintetizar moléculas de glucosa, etc… Regeneración
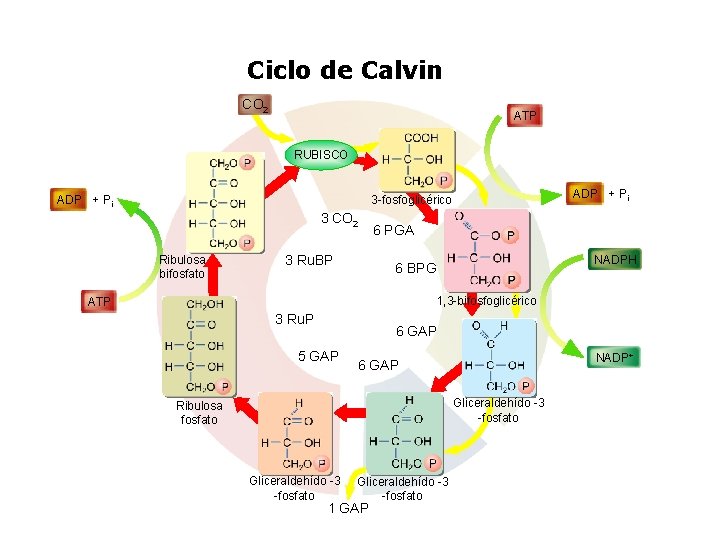
Ciclo de Calvin CO 2 ATP RUBISCO ADP + Pi 3 -fosfoglicérico 3 CO 2 Ribulosa bifosfato 3 Ru. BP 6 PGA NADPH 6 BPG 1, 3 -bifosfoglicérico ATP 3 Ru. P 6 GAP 5 GAP NADP+ 6 GAP Gliceraldehído -3 -fosfato Ribulosa fosfato Gliceraldehído -3 -fosfato 1 GAP
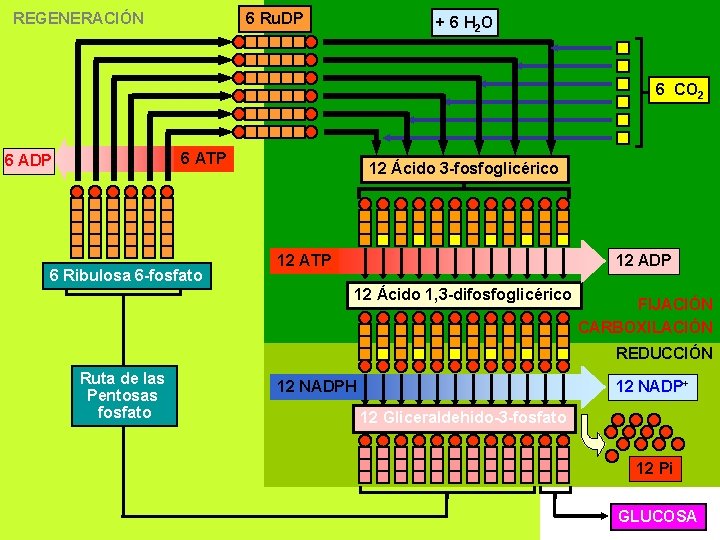
REGENERACIÓN 6 Ru. DP + 6 H 2 O 6 CO 2 6 ATP 6 ADP 6 Ribulosa 6 -fosfato 12 Ácido 3 -fosfoglicérico 12 ADP 12 ATP 12 Ácido 1, 3 -difosfoglicérico FIJACIÓN CARBOXILACIÓN REDUCCIÓN Ruta de las Pentosas fosfato 12 NADP+ 12 NADPH 12 Gliceraldehido-3 -fosfato 12 Pi GLUCOSA
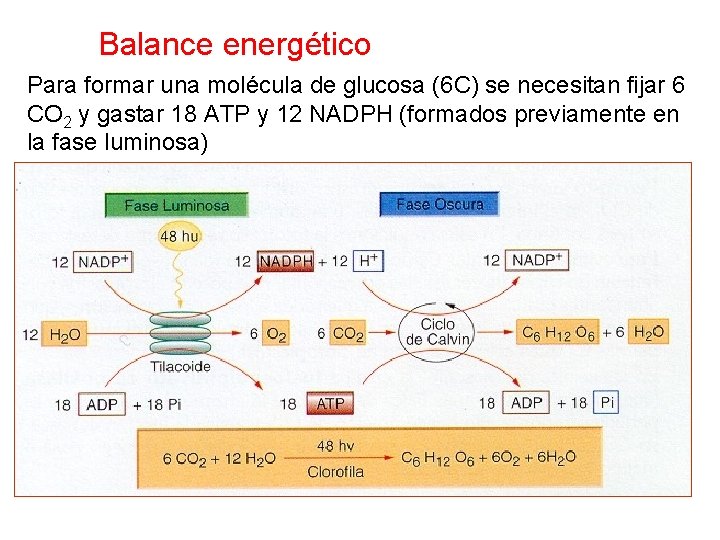
Balance energético Para formar una molécula de glucosa (6 C) se necesitan fijar 6 CO 2 y gastar 18 ATP y 12 NADPH (formados previamente en la fase luminosa)
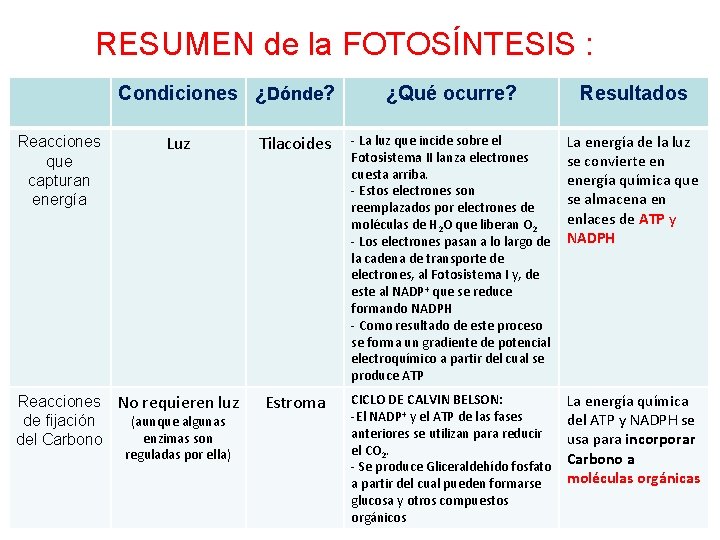
RESUMEN de la FOTOSÍNTESIS : Condiciones ¿Dónde? Reacciones que capturan energía Luz Reacciones No requieren luz (aunque algunas de fijación enzimas son del Carbono reguladas por ella) ¿Qué ocurre? Resultados Tilacoides - La luz que incide sobre el Fotosistema II lanza electrones cuesta arriba. - Estos electrones son reemplazados por electrones de moléculas de H 2 O que liberan O 2 - Los electrones pasan a lo largo de la cadena de transporte de electrones, al Fotosistema I y, de este al NADP+ que se reduce formando NADPH - Como resultado de este proceso se forma un gradiente de potencial electroquímico a partir del cual se produce ATP La energía de la luz se convierte en energía química que se almacena en enlaces de ATP y NADPH Estroma CICLO DE CALVIN BELSON: -El NADP+ y el ATP de las fases anteriores se utilizan para reducir el CO 2. - Se produce Gliceraldehído fosfato a partir del cual pueden formarse glucosa y otros compuestos orgánicos La energía química del ATP y NADPH se usa para incorporar Carbono a moléculas orgánicas
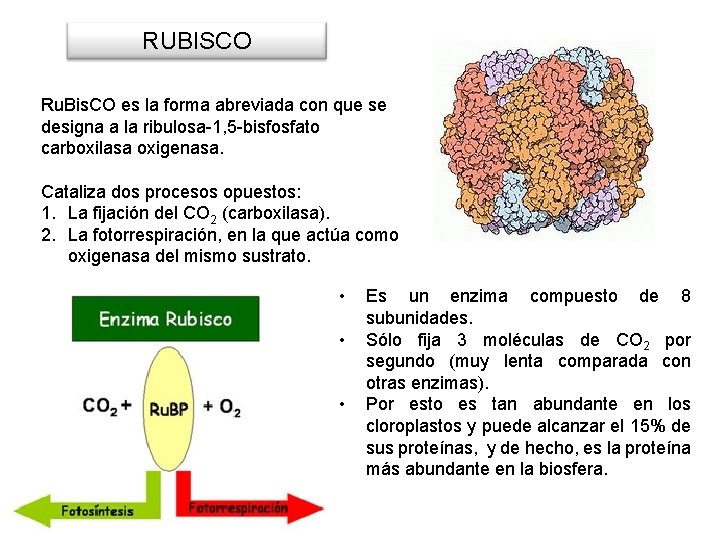
RUBISCO Ru. Bis. CO es la forma abreviada con que se designa a la ribulosa-1, 5 -bisfosfato carboxilasa oxigenasa. Cataliza dos procesos opuestos: 1. La fijación del CO 2 (carboxilasa). 2. La fotorrespiración, en la que actúa como oxigenasa del mismo sustrato. • • • Es un enzima compuesto de 8 subunidades. Sólo fija 3 moléculas de CO 2 por segundo (muy lenta comparada con otras enzimas). Por esto es tan abundante en los cloroplastos y puede alcanzar el 15% de sus proteínas, y de hecho, es la proteína más abundante en la biosfera.
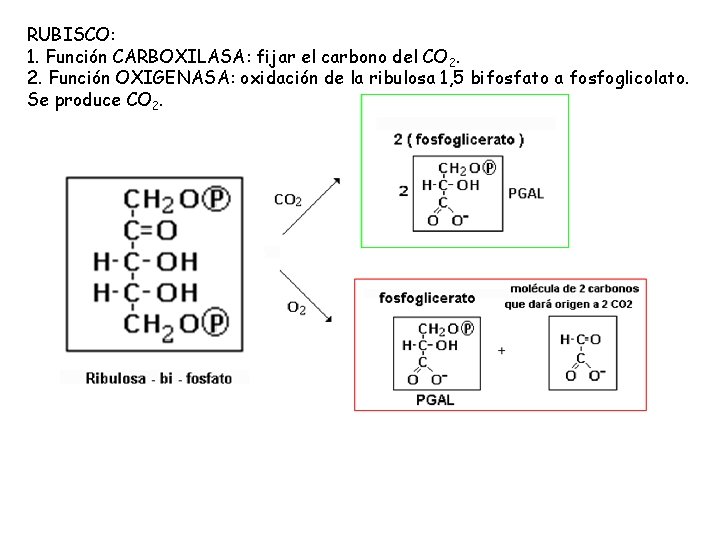
RUBISCO: 1. Función CARBOXILASA: fijar el carbono del CO 2. 2. Función OXIGENASA: oxidación de la ribulosa 1, 5 bifosfato a fosfoglicolato. Se produce CO 2.
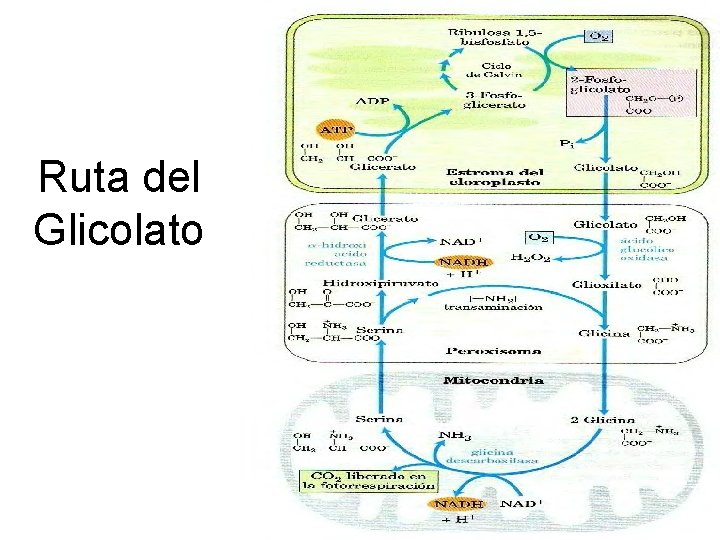
Ruta del Glicolato
Las condiciones que conducen a la fotorrespiración son bastante comunes. El CO 2 no siempre se encuentra disponible para las células fotosintéticas de la planta. Entra en la hoja por los estomas, que se abren y se cierran, dependiendo, entre otros factores de la cantidad de agua. Cuando la planta está sometida a unas condiciones calurosas y secas, debe cerrar sus estomas para evitar la pérdida de agua. Esto provoca también una disminución del CO 2 y permite que el oxígeno producido en la fotosíntesis se acumule. También, cuando las plantas crecen muy juntas y el aire está muy calmado, el intercambio de gases entre el aire que rodea la hoja y la atmósfera global puede ser muy reducido. En estas condiciones, el aire cercano a las hojas de la planta activa tendrá concentraciones de CO 2 demasiado pequeñas para sus actividades fotosintéticas. Incluso si los estomas están abiertos, el gradiente de concentración entre el exterior de la hoja y el interior será tan poco importante, que muy poco CO 2 se podrá difundir hacia la hoja. La combinación de concentraciones bajas de CO 2 y altas concentraciones de oxígeno conduce a la fotorrespiración.
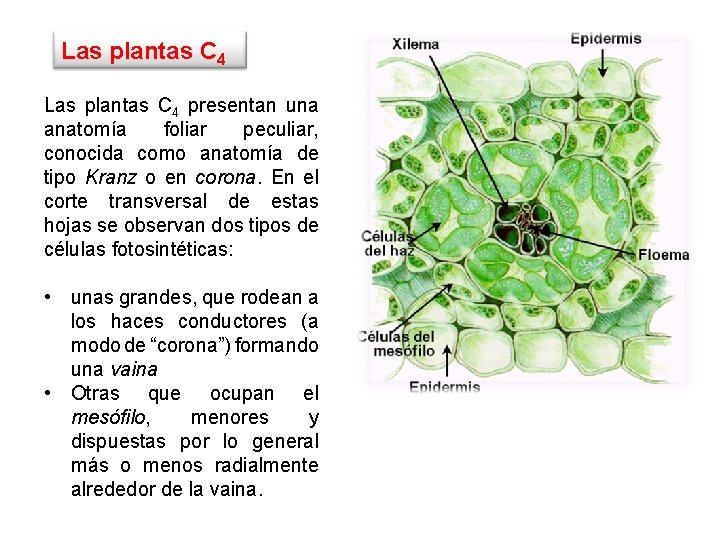
Las plantas C 4 presentan una anatomía foliar peculiar, conocida como anatomía de tipo Kranz o en corona. En el corte transversal de estas hojas se observan dos tipos de células fotosintéticas: • unas grandes, que rodean a los haces conductores (a modo de “corona”) formando una vaina • Otras que ocupan el mesófilo, menores y dispuestas por lo general más o menos radialmente alrededor de la vaina.
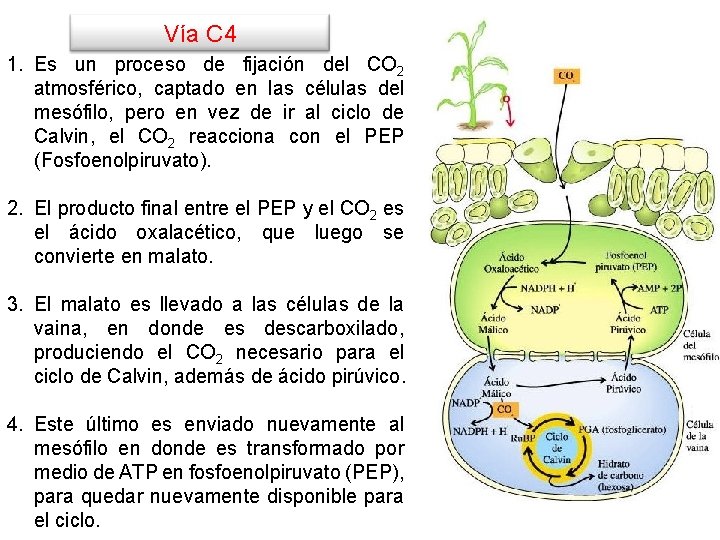
Vía C 4 1. Es un proceso de fijación del CO 2 atmosférico, captado en las células del mesófilo, pero en vez de ir al ciclo de Calvin, el CO 2 reacciona con el PEP (Fosfoenolpiruvato). 2. El producto final entre el PEP y el CO 2 es el ácido oxalacético, que luego se convierte en malato. 3. El malato es llevado a las células de la vaina, en donde es descarboxilado, produciendo el CO 2 necesario para el ciclo de Calvin, además de ácido pirúvico. 4. Este último es enviado nuevamente al mesófilo en donde es transformado por medio de ATP en fosfoenolpiruvato (PEP), para quedar nuevamente disponible para el ciclo.
Ventajas de las Plantas C 4 • Las ventajas radican en el hecho de que al tener la Rubisco situada en las células de la vaina, se le impide reaccionar con O 2 en situaciones en las cuales la concentración de CO 2 sea muy baja, por lo cual el CO 2 perdido a través de la fotorrespiración se reduce considerablemente. • Incluso las moléculas de CO 2 expulsadas por la fotorrespiración son reutilizadas a través del PEP, que las captura en el mesófilo para ingresar en el ciclo de Calvin. • Las plantas que usan esta vía para la fijación del carbono son denominadas C 4, entre las cuales se distinguen el maíz, la caña de azúcar, la invasora Cynodon dactylon (Bermuda grass), el sorgo y el amaranto. • La fijación de CO 2 por este sistema tiene un mayor coste energético que en las plantas de vía C 3, pero se compensa por la casí nula fotorrespiración que presentan. • Son especialmente eficientes en condiciones de altas temperaturas y baja humedad relativa (climas tropicales y sutropicales)
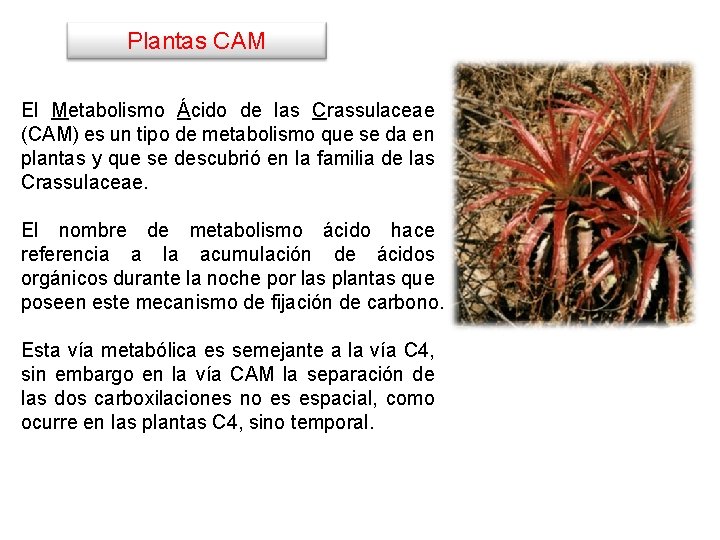
Plantas CAM El Metabolismo Ácido de las Crassulaceae (CAM) es un tipo de metabolismo que se da en plantas y que se descubrió en la familia de las Crassulaceae. El nombre de metabolismo ácido hace referencia a la acumulación de ácidos orgánicos durante la noche por las plantas que poseen este mecanismo de fijación de carbono. Esta vía metabólica es semejante a la vía C 4, sin embargo en la vía CAM la separación de las dos carboxilaciones no es espacial, como ocurre en las plantas C 4, sino temporal.
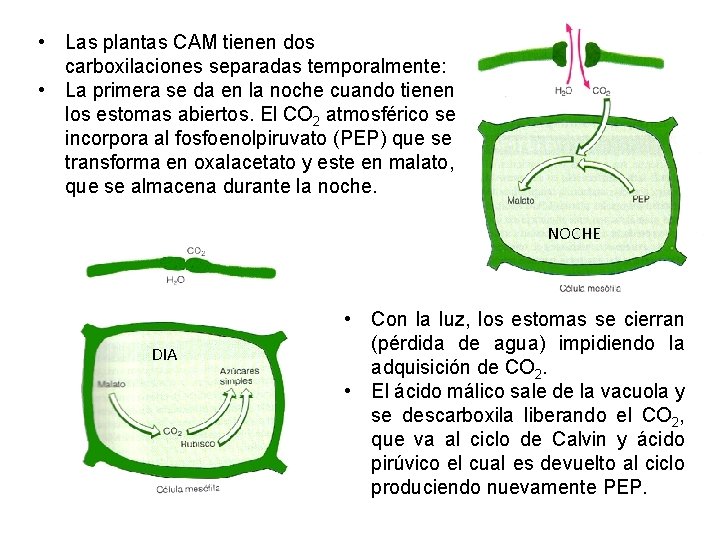
• Las plantas CAM tienen dos carboxilaciones separadas temporalmente: • La primera se da en la noche cuando tienen los estomas abiertos. El CO 2 atmosférico se incorpora al fosfoenolpiruvato (PEP) que se transforma en oxalacetato y este en malato, que se almacena durante la noche. NOCHE DIA • Con la luz, los estomas se cierran (pérdida de agua) impidiendo la adquisición de CO 2. • El ácido málico sale de la vacuola y se descarboxila liberando el CO 2, que va al ciclo de Calvin y ácido pirúvico el cual es devuelto al ciclo produciendo nuevamente PEP.
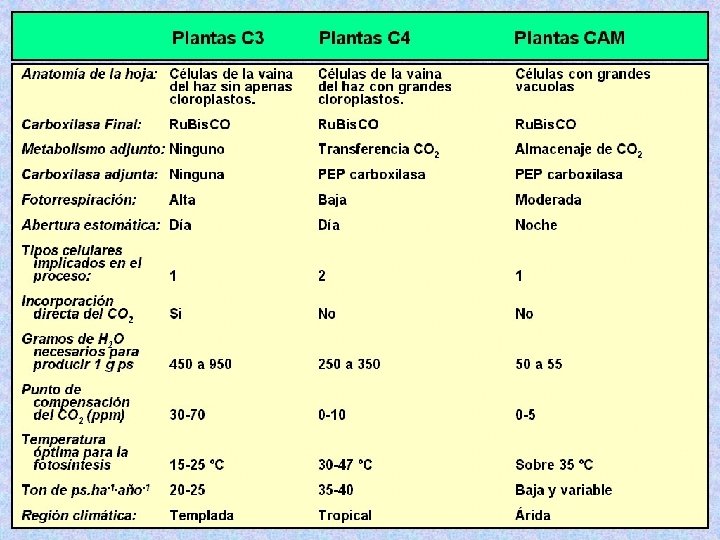
Ventajas de las Plantas CAM • La concentración elevada en el interior de CO 2 evita la fotorrespiración. • Las plantas CAM suelen ser crasas y relegadas a ambientes secos. • Su rendimiento total fotosintético es bajo (ya que la absorción de dióxido de carbono está limitado a la cantidad de ácido málico que se puede almacenar en la vacuola) por lo que son malas competidoras con las plantas C 3 o C 4. • El mecanismo CAM le permite a la planta maximizar la eficiencia en el uso de agua, por lo tanto, las CAM tienen una ventaja competitiva en ambientes con poco agua.
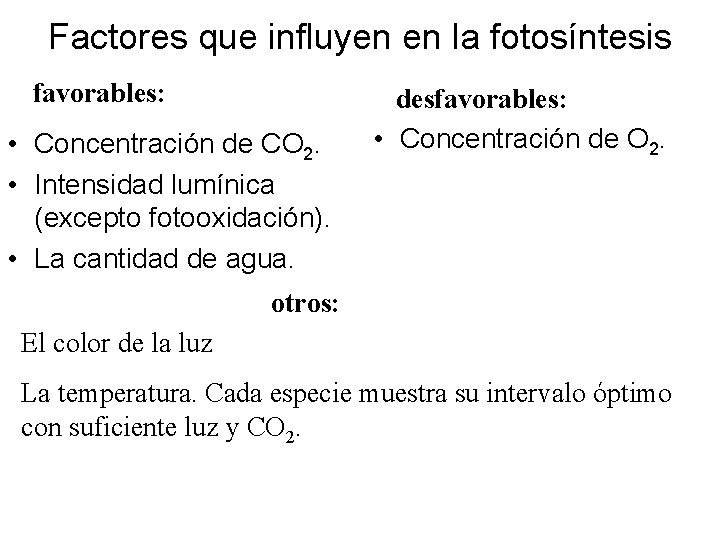
Factores que influyen en la fotosíntesis favorables: • Concentración de CO 2. • Intensidad lumínica (excepto fotooxidación). • La cantidad de agua. desfavorables: • Concentración de O 2. otros: El color de la luz La temperatura. Cada especie muestra su intervalo óptimo con suficiente luz y CO 2.
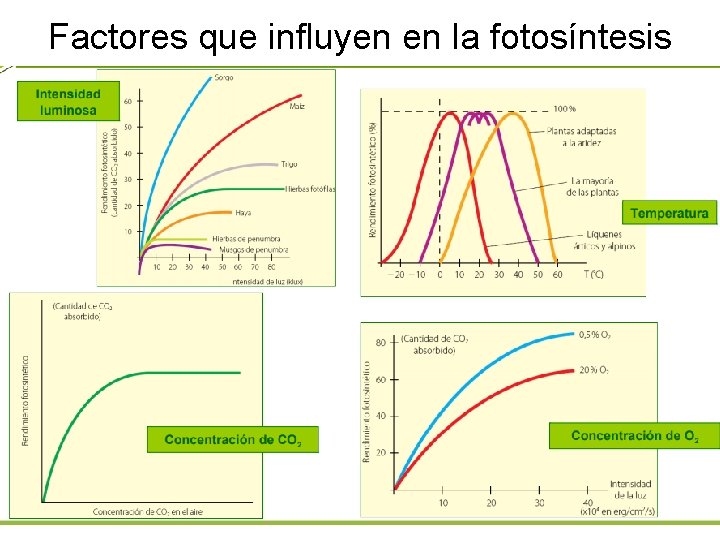
Factores que influyen en la fotosíntesis
Fotosíntesis anoxigénica No se utiliza agua en la fotolisis, sino que el hidrógeno para reducir la materia inorgánica lo aportan otras sustancias reducidas, diferentes según el grupo de microorganismos. Por lo tanto, no se produce oxígeno. Los pigmentos que fijan la energía de la luz son otros (destacan las bacterioclorofilas). El aparato fotosintético consta de un FSI en la membrana celular o derivados de ella. El proceso lo realizan tres grupos de bacterias, cada uno con una modalidad diferente: -Las bacterias verdes del azufre utilizan generalmente sulfuro de hidrógeno (H 2 S) como dador de hidrógeno, aunque también pueden hacerlo a partir de hidrógeno (H 2). El S resultante lo depositan en el exterior de las células. H 2 S + CO 2 [ H 2 C ] + S 2 mol. org. -Las bacterias púrpuras (rojas) del azufre utilizan también el H 2 S, almacenando el S en forma de gránulos en su interior. - Las bacterias púrpuras (rojas) no sulfúreas utilizan moléculas orgánicas sencillas (pirúvico, láctico, etanol) como dador de hidrógeno.
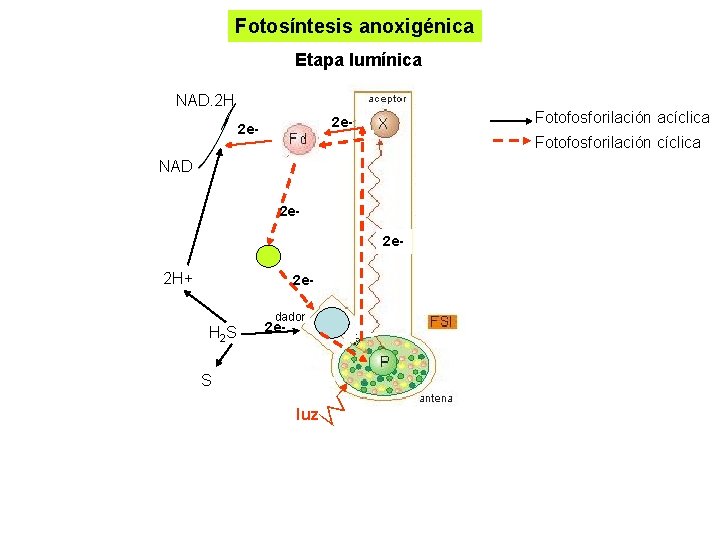
Fotosíntesis anoxigénica Etapa lumínica NAD. 2 H Fotofosforilación acíclica 2 e- Fotofosforilación cíclica NAD 2 e 2 e- 2 H+ 2 edador H 2 S 2 e- S luz
Importancia biológica de la fotosíntesis La fotosíntesis es seguramente el proceso bioquímico más importante de la Biosfera por varios motivos: 1. La síntesis de materia orgánica a partir de la inorgánica se realiza fundamentalmente mediante la fotosíntesis. Posteriormente irá pasando de unos seres vivos a otros mediante las cadenas tróficas, para ser finalmente transformada en materia propia por los diferentes seres vivos. 2. Produce la transformación de la energía luminosa en energía química, necesaria y utilizada por los seres vivos 3. En la fotosíntesis se libera oxígeno que será utilizado en la respiración aerobia como oxidante. 4. La fotosíntesis causó el cambio producido en la atmósfera primitiva, que era anaerobia y reductora. 5. De la fotosíntesis depende también la energía almacenada en combustibles fósiles como carbón, petróleo y gas natural. 6. El equilibrio necesario entre seres autótrofos y heterótrofos no sería posible sin la fotosíntesis. LA FOTOSÍNTESIS MANTIENE LA VIDA EN LA TIERRA.
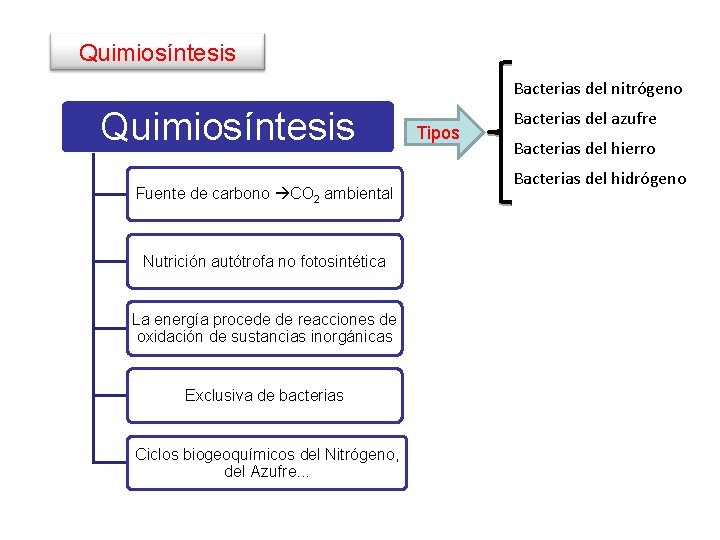
Quimiosíntesis Bacterias del nitrógeno Quimiosíntesis Fuente de carbono CO 2 ambiental Nutrición autótrofa no fotosintética La energía procede de reacciones de oxidación de sustancias inorgánicas Exclusiva de bacterias Ciclos biogeoquímicos del Nitrógeno, del Azufre. . . Tipos Bacterias del azufre Bacterias del hierro Bacterias del hidrógeno
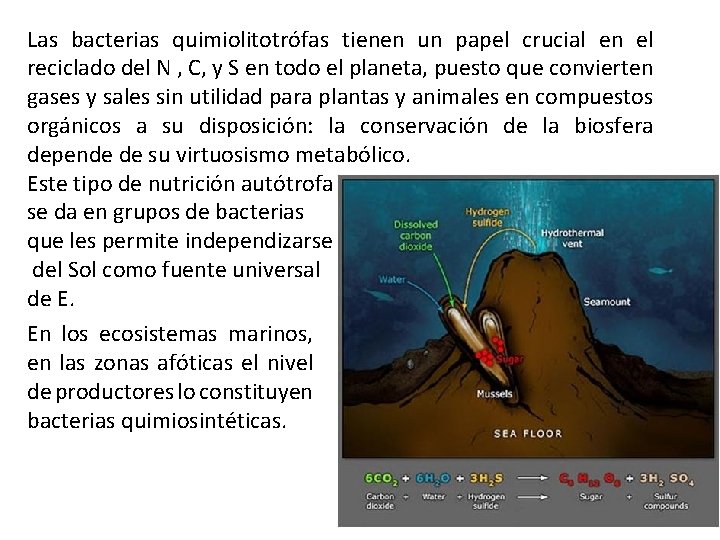
Las bacterias quimiolitotrófas tienen un papel crucial en el reciclado del N , C, y S en todo el planeta, puesto que convierten gases y sales sin utilidad para plantas y animales en compuestos orgánicos a su disposición: la conservación de la biosfera depende de su virtuosismo metabólico. Este tipo de nutrición autótrofa se da en grupos de bacterias que les permite independizarse del Sol como fuente universal de E. En los ecosistemas marinos, en las zonas afóticas el nivel de productores lo constituyen bacterias quimiosintéticas.
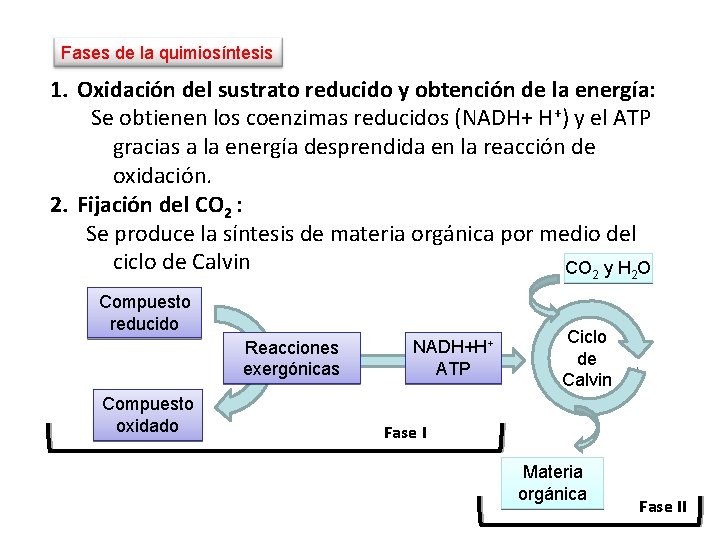
Fases de la quimiosíntesis 1. Oxidación del sustrato reducido y obtención de la energía: Se obtienen los coenzimas reducidos (NADH+ H+) y el ATP gracias a la energía desprendida en la reacción de oxidación. 2. Fijación del CO 2 : Se produce la síntesis de materia orgánica por medio del ciclo de Calvin CO 2 y H 2 O Compuesto reducido Reacciones exergónicas Compuesto oxidado NADH+H+ ATP Ciclo de Calvin Fase I Materia orgánica Fase II
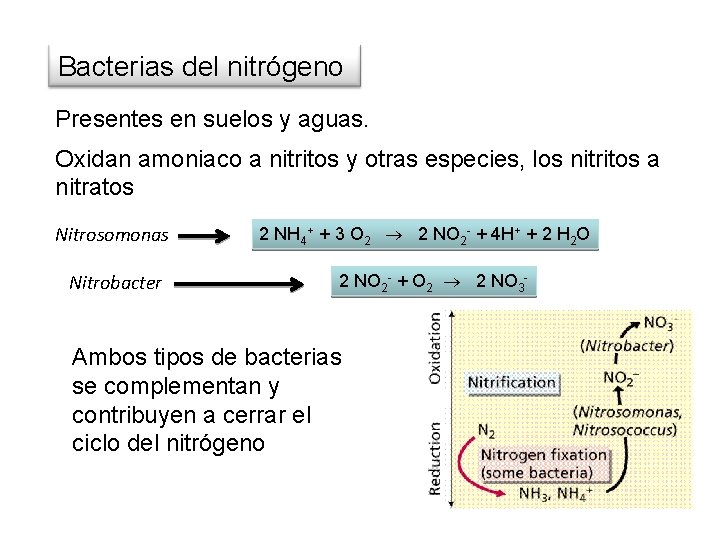
Bacterias del nitrógeno Presentes en suelos y aguas. Oxidan amoniaco a nitritos y otras especies, los nitritos a nitratos Nitrosomonas Nitrobacter 2 NH 4+ + 3 O 2 2 NO 2 - + 4 H+ + 2 H 2 O 2 NO 2 - + O 2 2 NO 3 - Ambos tipos de bacterias se complementan y contribuyen a cerrar el ciclo del nitrógeno
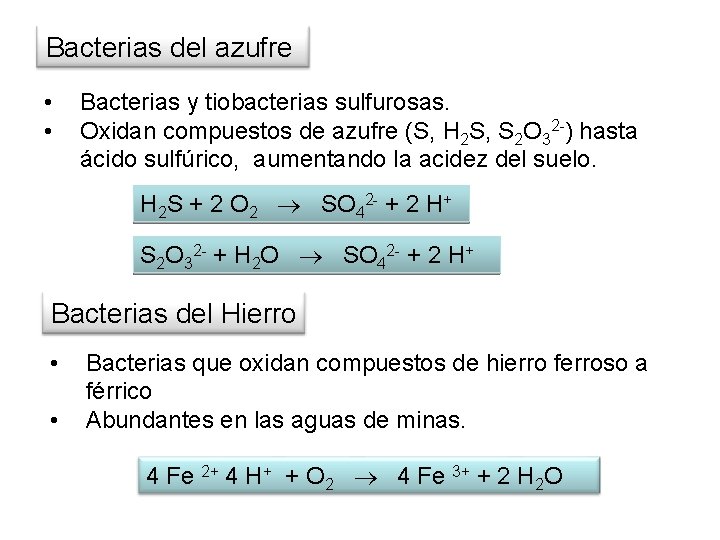
Bacterias del azufre • • Bacterias y tiobacterias sulfurosas. Oxidan compuestos de azufre (S, H 2 S, S 2 O 32 -) hasta ácido sulfúrico, aumentando la acidez del suelo. H 2 S + 2 O 2 SO 42 - + 2 H+ S 2 O 32 - + H 2 O SO 42 - + 2 H+ Bacterias del Hierro • • Bacterias que oxidan compuestos de hierro ferroso a férrico Abundantes en las aguas de minas. 4 Fe 2+ 4 H+ + O 2 4 Fe 3+ + 2 H 2 O
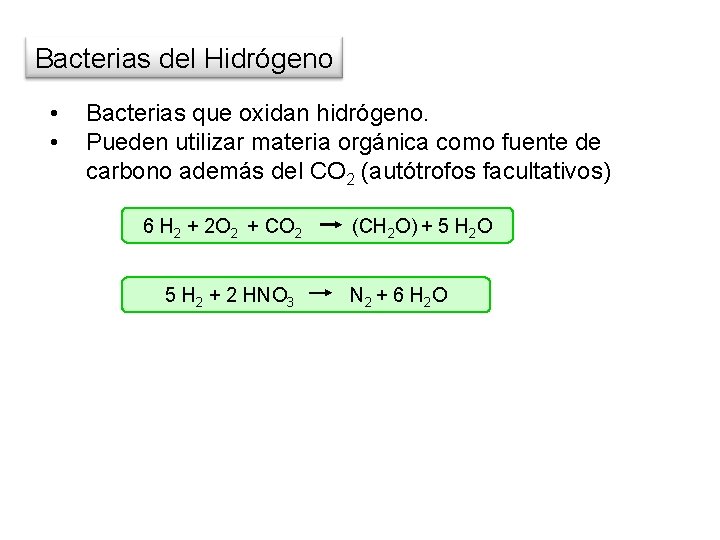
Bacterias del Hidrógeno • • Bacterias que oxidan hidrógeno. Pueden utilizar materia orgánica como fuente de carbono además del CO 2 (autótrofos facultativos) 6 H 2 + 2 O 2 + CO 2 5 H 2 + 2 HNO 3 (CH 2 O) + 5 H 2 O N 2 + 6 H 2 O
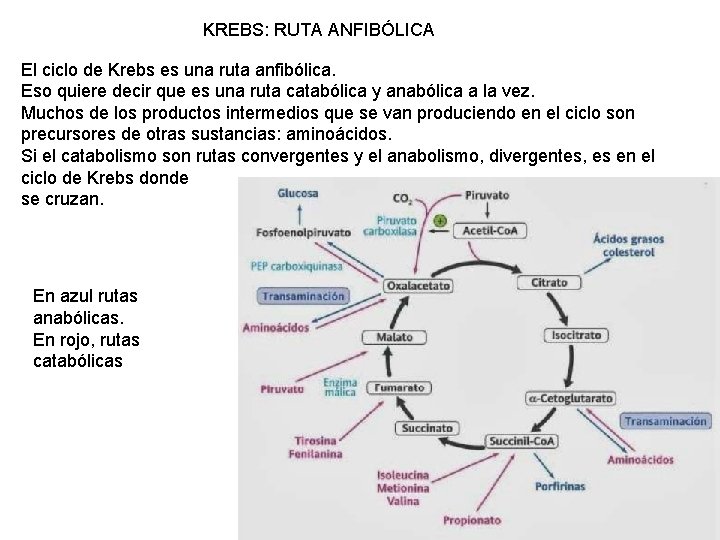
KREBS: RUTA ANFIBÓLICA El ciclo de Krebs es una ruta anfibólica. Eso quiere decir que es una ruta catabólica y anabólica a la vez. Muchos de los productos intermedios que se van produciendo en el ciclo son precursores de otras sustancias: aminoácidos. Si el catabolismo son rutas convergentes y el anabolismo, divergentes, es en el ciclo de Krebs donde se cruzan. En azul rutas anabólicas. En rojo, rutas catabólicas
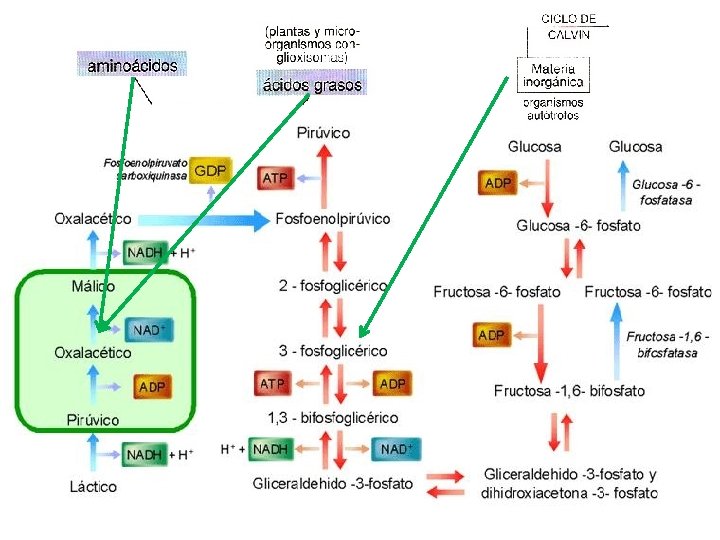
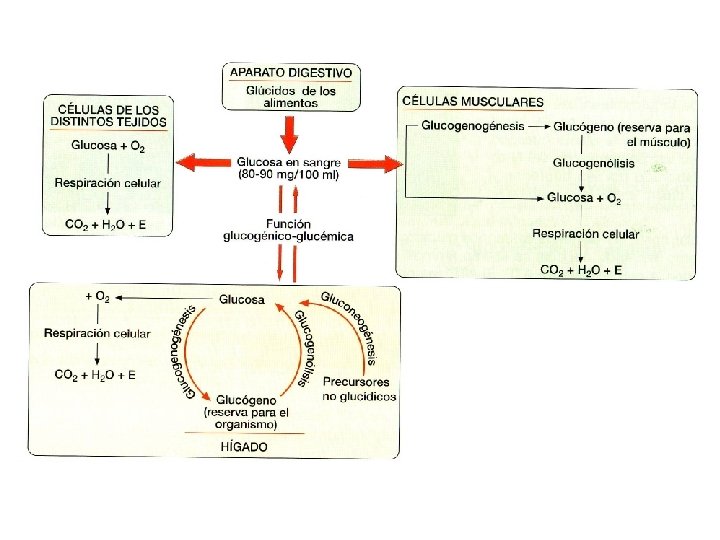
ANABOLISMO DE GLÚCIDOS • 1. Obtención de glucosa. Puede hacerse mediante dos procesos: – Gluconeogénesis. Formación de glucosa a partir de pequeñas moléculas precursoras, obtenidas a partir del alimento o por la degradación catabólica de las propias reservas. Se da en todas las células. – A partir del ciclo de Calvin. Se obtiene gliceraldehído 3 -fosfato, que puede transformarse en glucosa siguiendo los mismos pasos del final de la gluconeogénesis. Sólo se da en las células autótrofas.
Gluconeogénesis En lo organismos es imprescindible asegurar los niveles adecuados de glucosa. Ocurre en el hígado y en parte en el riñón Es fundamental la Gluconeogénesis porque sintetiza glucosa a partir de: ácido láctico, aminoácidos o algún metabolito del ciclo de Krebs. No es exactamente inversa a la glucólisis. Algunas enzimas son glucolíticas y gluconeogénicas pero la Gluconeogénesis posee enzimas específicas.
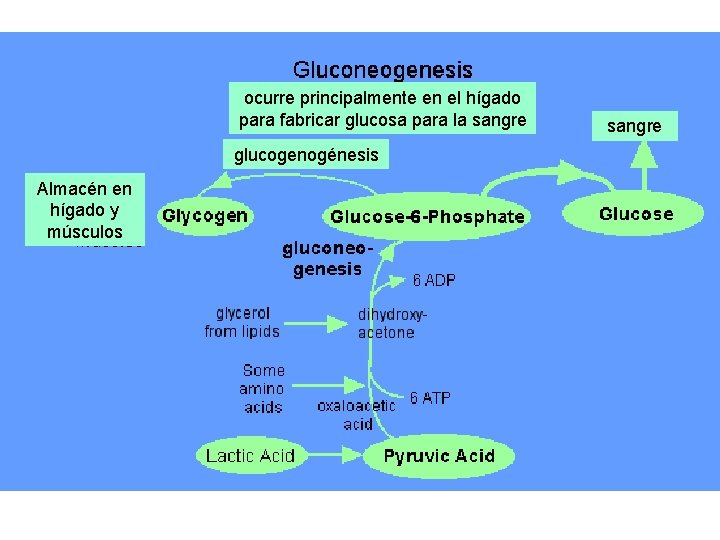
ocurre principalmente en el hígado para fabricar glucosa para la sangre glucogenogénesis Almacén en hígado y músculos sangre
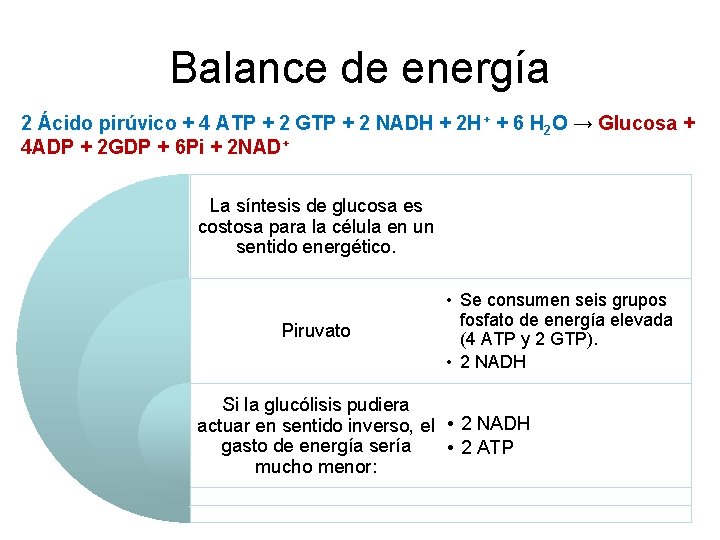
Balance de energía 2 Ácido pirúvico + 4 ATP + 2 GTP + 2 NADH + 2 H+ + 6 H 2 O → Glucosa + 4 ADP + 2 GDP + 6 Pi + 2 NAD+ La síntesis de glucosa es costosa para la célula en un sentido energético. Piruvato • Se consumen seis grupos fosfato de energía elevada (4 ATP y 2 GTP). • 2 NADH Si la glucólisis pudiera actuar en sentido inverso, el • 2 NADH gasto de energía sería • 2 ATP mucho menor:
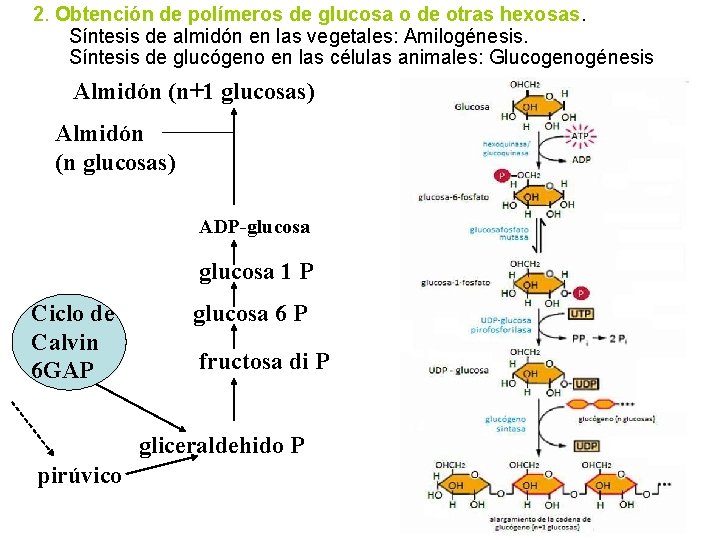
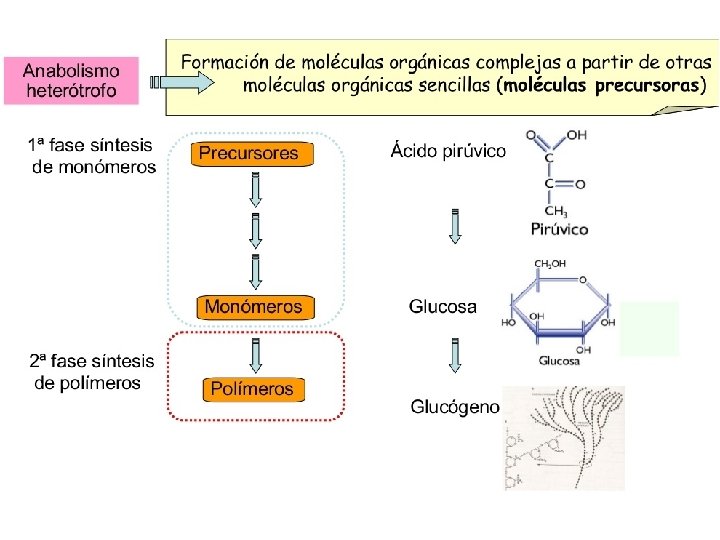
2. Obtención de polímeros de glucosa o de otras hexosas. Síntesis de almidón en las vegetales: Amilogénesis. Síntesis de glucógeno en las células animales: Glucogenogénesis Almidón (n+1 glucosas) Almidón (n glucosas) ADP-glucosa 1 P Ciclo de Calvin 6 GAP glucosa 6 P fructosa di P gliceraldehido P pirúvico
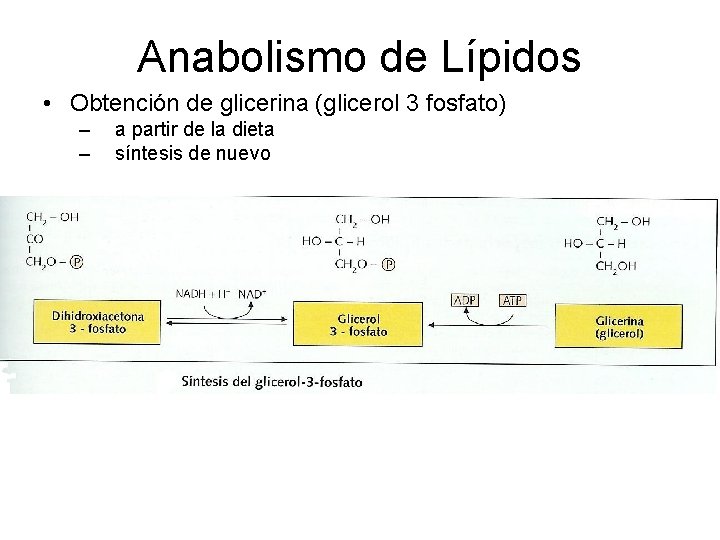
Anabolismo de Lípidos • Obtención de glicerina (glicerol 3 fosfato) – – a partir de la dieta síntesis de nuevo
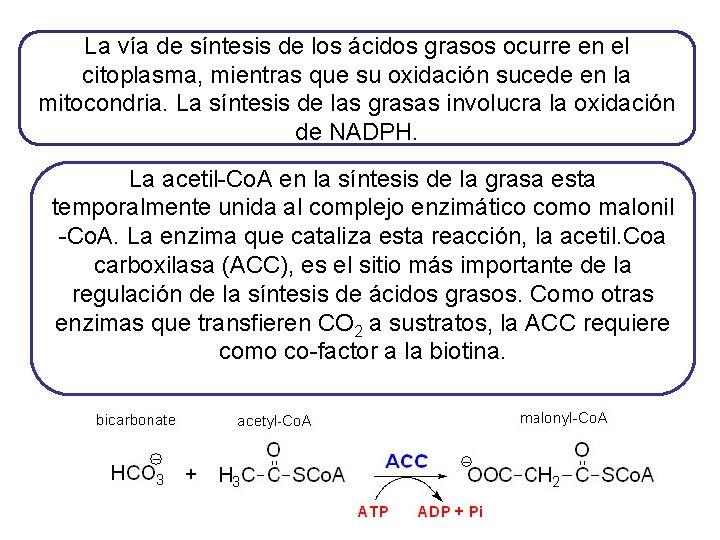
La vía de síntesis de los ácidos grasos ocurre en el citoplasma, mientras que su oxidación sucede en la mitocondria. La síntesis de las grasas involucra la oxidación de NADPH. La acetil-Co. A en la síntesis de la grasa esta temporalmente unida al complejo enzimático como malonil -Co. A. La enzima que cataliza esta reacción, la acetil. Coa carboxilasa (ACC), es el sitio más importante de la regulación de la síntesis de ácidos grasos. Como otras enzimas que transfieren CO 2 a sustratos, la ACC requiere como co-factor a la biotina.
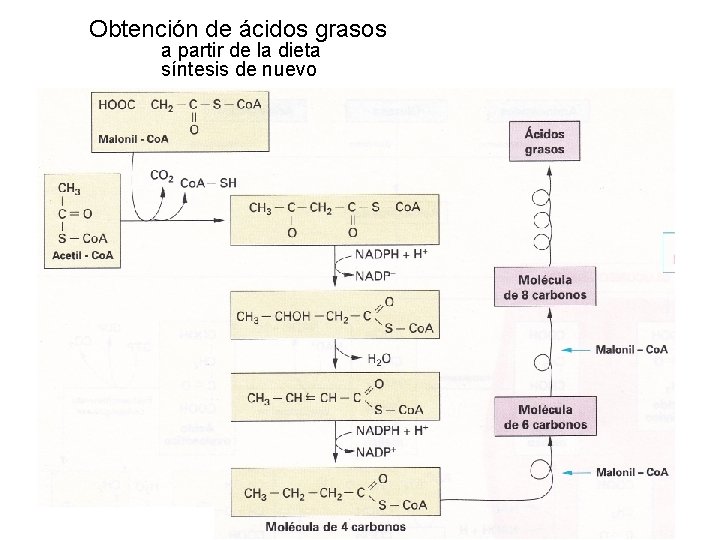
Obtención de ácidos grasos a partir de la dieta síntesis de nuevo
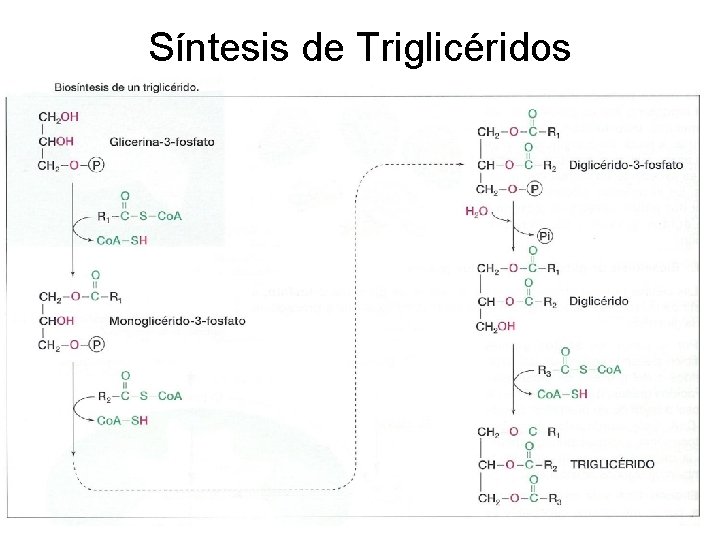
Síntesis de Triglicéridos
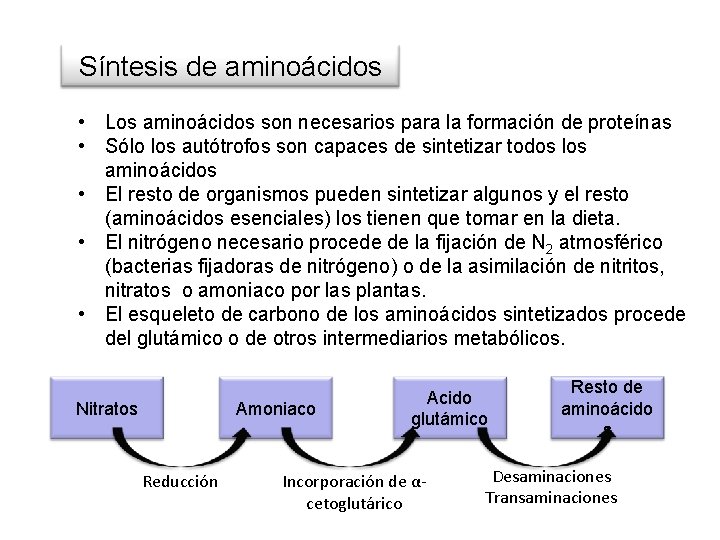
Síntesis de aminoácidos • Los aminoácidos son necesarios para la formación de proteínas • Sólo los autótrofos son capaces de sintetizar todos los aminoácidos • El resto de organismos pueden sintetizar algunos y el resto (aminoácidos esenciales) los tienen que tomar en la dieta. • El nitrógeno necesario procede de la fijación de N 2 atmosférico (bacterias fijadoras de nitrógeno) o de la asimilación de nitritos, nitratos o amoniaco por las plantas. • El esqueleto de carbono de los aminoácidos sintetizados procede del glutámico o de otros intermediarios metabólicos. Nitratos Amoniaco Reducción Acido glutámico Incorporación de αcetoglutárico Resto de aminoácido s Desaminaciones Transaminaciones
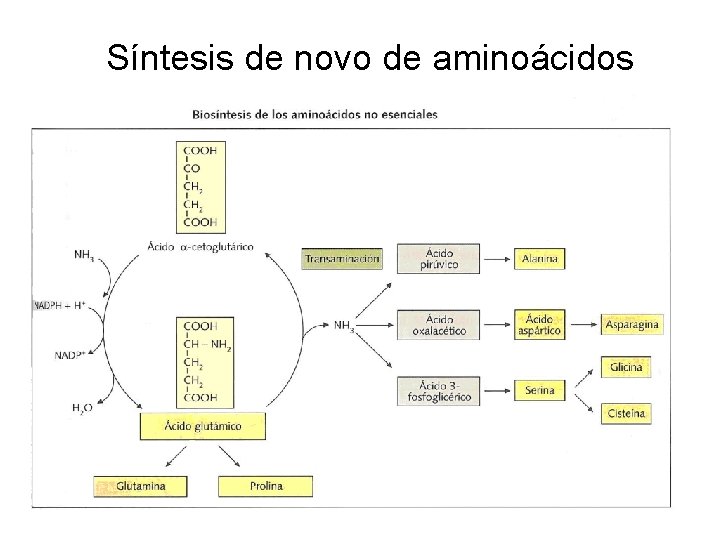
Síntesis de novo de aminoácidos
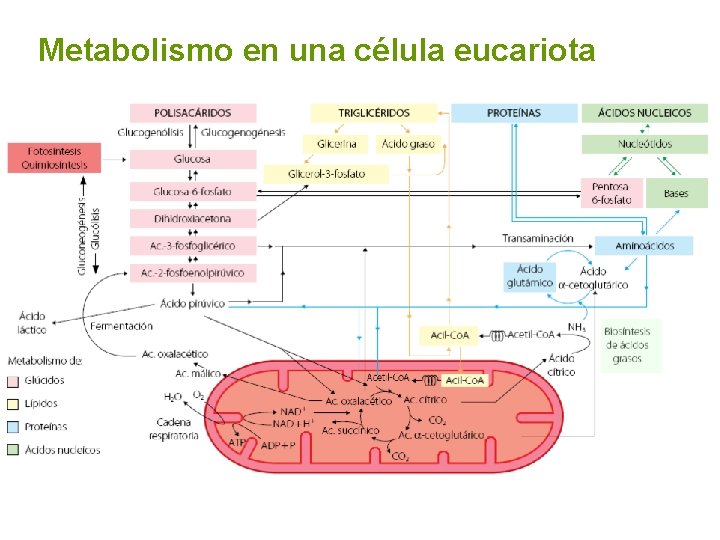
Metabolismo en una célula eucariota
- Slides: 81