
Egzamin pisemny z Sygnaw Bioelektrycznych odbdzie si we
Egzamin pisemny z Sygnałów Bioelektrycznych odbędzie się we wtorek 15 maja 2018 w godz. 9. 45 – 11. 00 w sali 1. 03. Na egzamin ustny będzie można się zapisać po egzaminie pisemnym.
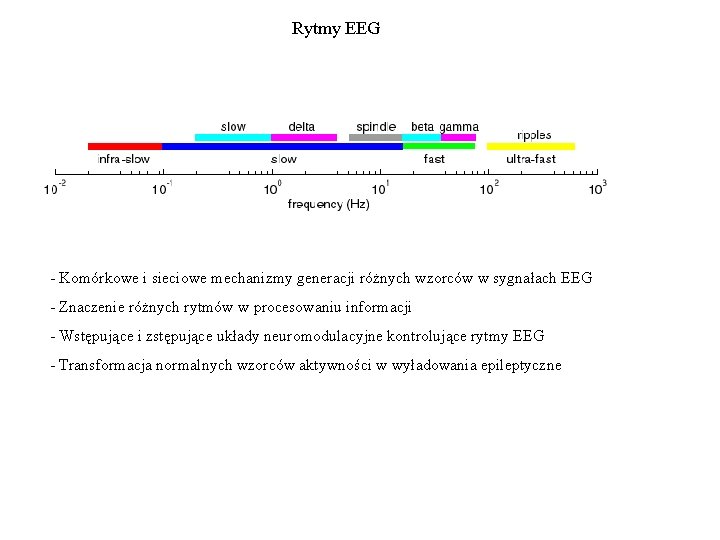
Rytmy EEG - Komórkowe i sieciowe mechanizmy generacji różnych wzorców w sygnałach EEG - Znaczenie różnych rytmów w procesowaniu informacji - Wstępujące i zstępujące układy neuromodulacyjne kontrolujące rytmy EEG - Transformacja normalnych wzorców aktywności w wyładowania epileptyczne
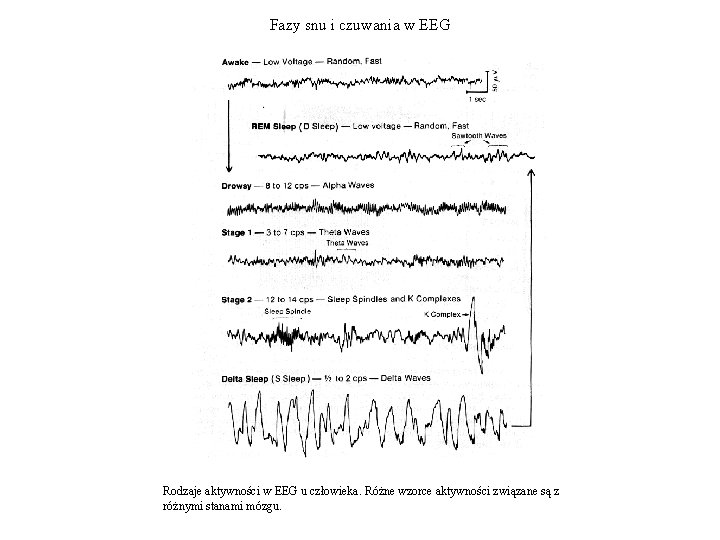
Fazy snu i czuwania w EEG Rodzaje aktywności w EEG u człowieka. Różne wzorce aktywności związane są z różnymi stanami mózgu.
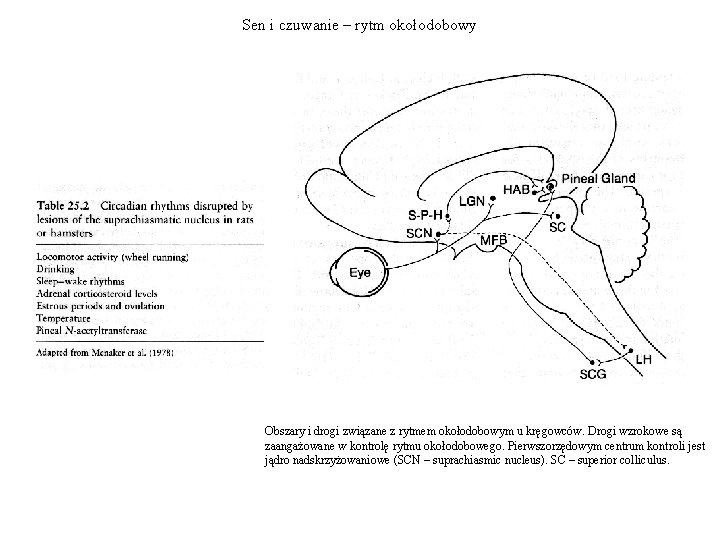
Sen i czuwanie – rytm okołodobowy Obszary i drogi związane z rytmem okołodobowym u kręgowców. Drogi wzrokowe są zaangażowane w kontrolę rytmu okołodobowego. Pierwszorzędowym centrum kontroli jest jądro nadskrzyżowaniowe (SCN – suprachiasmic nucleus). SC – superior colliculus.
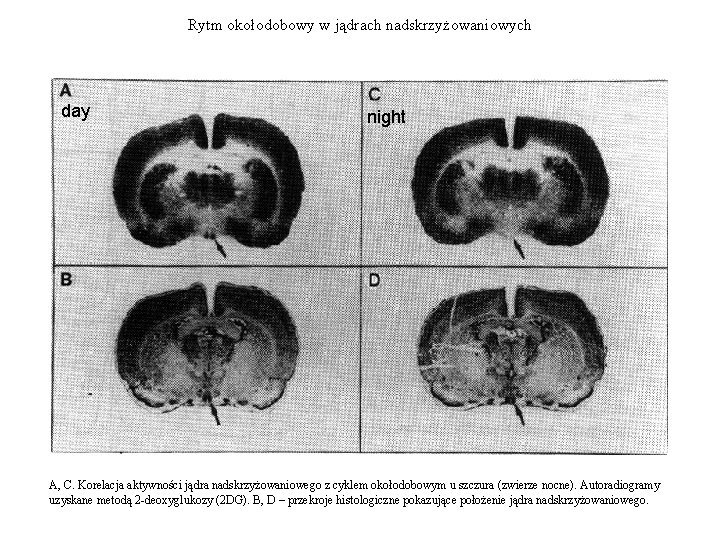
Rytm okołodobowy w jądrach nadskrzyżowaniowych day night A, C. Korelacja aktywności jądra nadskrzyżowaniowego z cyklem okołodobowym u szczura (zwierze nocne). Autoradiogramy uzyskane metodą 2 -deoxyglukozy (2 DG). B, D – przekroje histologiczne pokazujące położenie jądra nadskrzyżowaniowego.
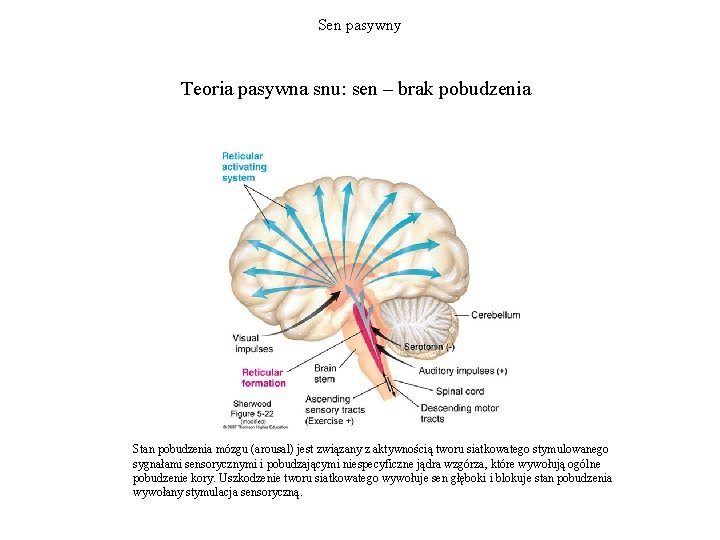
Sen pasywny Teoria pasywna snu: sen – brak pobudzenia Stan pobudzenia mózgu (arousal) jest związany z aktywnością tworu siatkowatego stymulowanego sygnałami sensorycznymi i pobudzającymi niespecyficzne jądra wzgórza, które wywołują ogólne pobudzenie kory. Uszkodzenie tworu siatkowatego wywołuje sen głęboki i blokuje stan pobudzenia wywołany stymulacja sensoryczną.
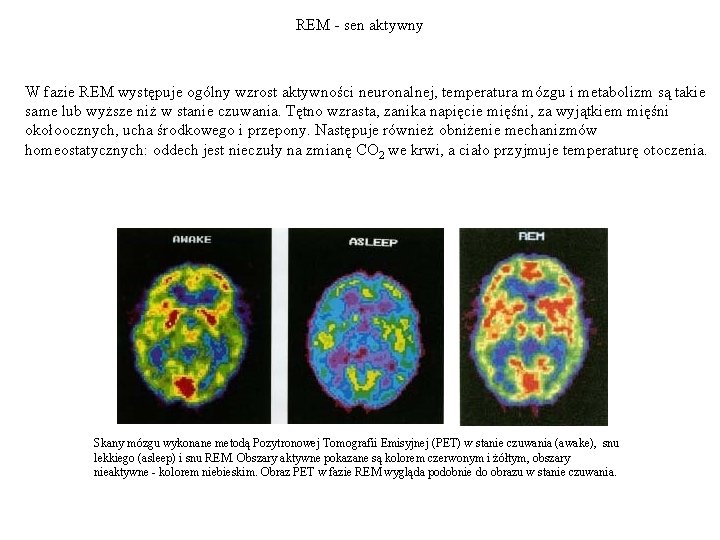
REM - sen aktywny W fazie REM występuje ogólny wzrost aktywności neuronalnej, temperatura mózgu i metabolizm są takie same lub wyższe niż w stanie czuwania. Tętno wzrasta, zanika napięcie mięśni, za wyjątkiem mięśni okołoocznych, ucha środkowego i przepony. Następuje również obniżenie mechanizmów homeostatycznych: oddech jest nieczuły na zmianę CO 2 we krwi, a ciało przyjmuje temperaturę otoczenia. Skany mózgu wykonane metodą Pozytronowej Tomografii Emisyjnej (PET) w stanie czuwania (awake), snu lekkiego (asleep) i snu REM. Obszary aktywne pokazane są kolorem czerwonym i żółtym, obszary nieaktywne - kolorem niebieskim. Obraz PET w fazie REM wygląda podobnie do obrazu w stanie czuwania.
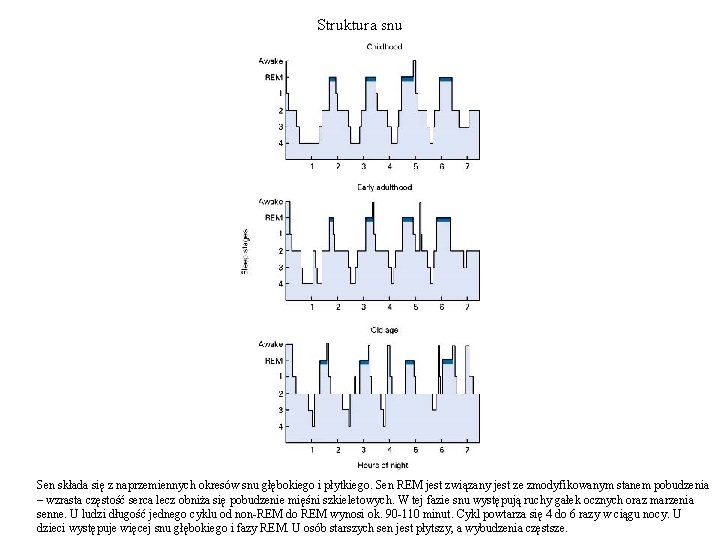
Struktura snu Sen składa się z naprzemiennych okresów snu głębokiego i płytkiego. Sen REM jest związany jest ze zmodyfikowanym stanem pobudzenia – wzrasta częstość serca lecz obniża się pobudzenie mięśni szkieletowych. W tej fazie snu występują ruchy gałek ocznych oraz marzenia senne. U ludzi długość jednego cyklu od non-REM do REM wynosi ok. 90 -110 minut. Cykl powtarza się 4 do 6 razy w ciągu nocy. U dzieci występuje więcej snu głębokiego i fazy REM. U osób starszych sen jest płytszy, a wybudzenia częstsze.
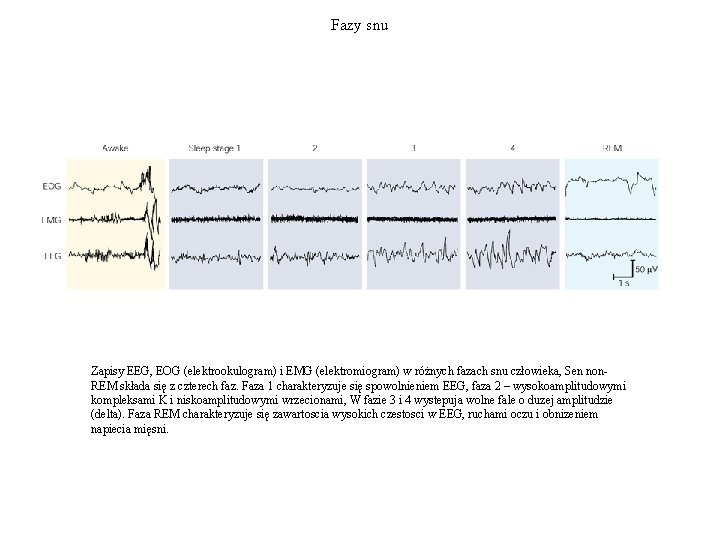
Fazy snu Zapisy EEG, EOG (elektrookulogram) i EMG (elektromiogram) w różnych fazach snu człowieka, Sen non. REM składa się z czterech faz. Faza 1 charakteryzuje się spowolnieniem EEG, faza 2 – wysokoamplitudowymi kompleksami K i niskoamplitudowymi wrzecionami, W fazie 3 i 4 wystepuja wolne fale o duzej amplitudzie (delta). Faza REM charakteryzuje się zawartoscia wysokich czestosci w EEG, ruchami oczu i obnizeniem napiecia mięsni.
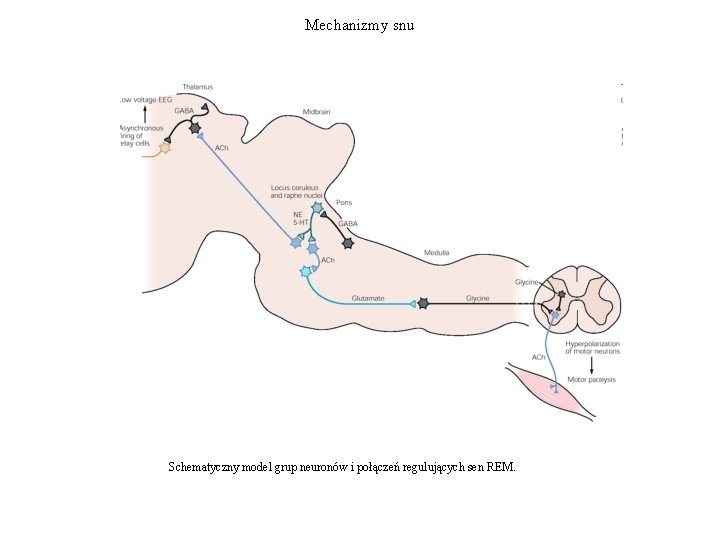
Mechanizmy snu Schematyczny model grup neuronów i połączeń regulujących sen REM.
Rola snu
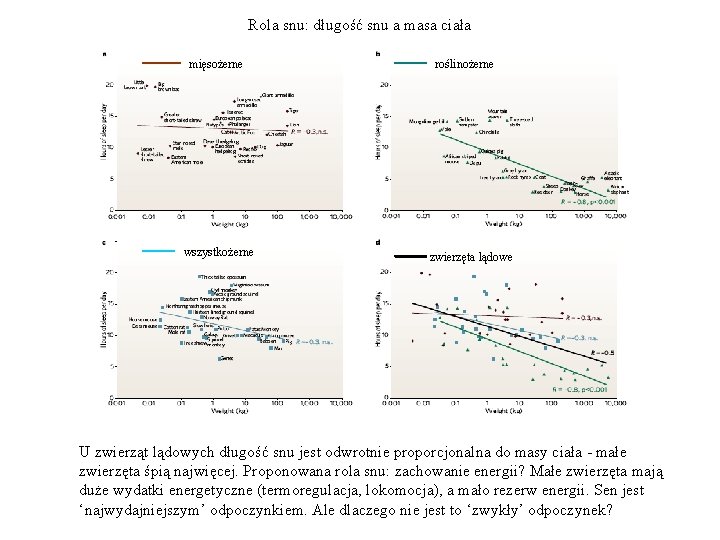
Rola snu: długość snu a masa ciała mięsożerne wszystkożerne roślinożerne zwierzęta lądowe U zwierząt lądowych długość snu jest odwrotnie proporcjonalna do masy ciała - małe zwierzęta śpią najwięcej. Proponowana rola snu: zachowanie energii? Małe zwierzęta mają duże wydatki energetyczne (termoregulacja, lokomocja), a mało rezerw energii. Sen jest ‘najwydajniejszym’ odpoczynkiem. Ale dlaczego nie jest to ‘zwykły’ odpoczynek?
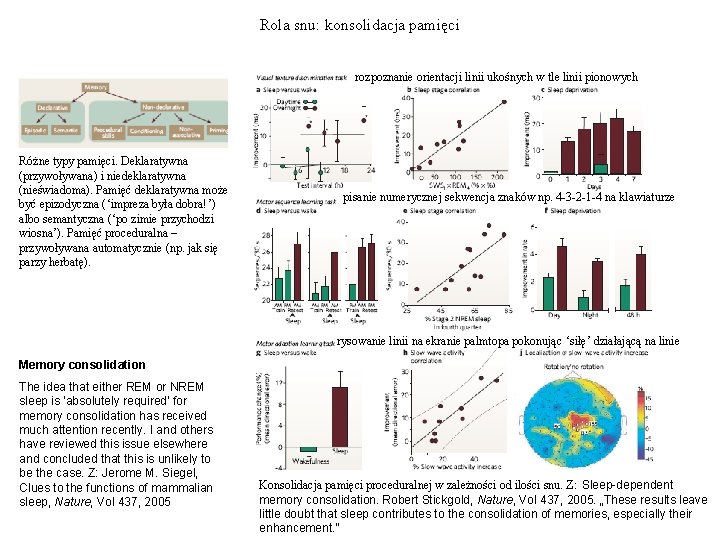
Rola snu: konsolidacja pamięci gryzoń Różne typy pamięci. Deklaratywna (przywoływana) i niedeklaratywna (nieświadoma). Pamięć deklaratywna może być epizodyczna (‘impreza była dobra!’) albo semantyczna (‘po zimie przychodzi wiosna’). Pamięć proceduralna – przywoływana automatycznie (np. jak się parzy herbatę). rozpoznanie orientacji linii ukośnych w tle linii pionowych słoń pisanie numerycznej sekwencja znaków np. 4 -3 -2 -1 -4 na klawiaturze rysowanie linii na ekranie palmtopa pokonując ‘siłę’ działającą na linie Memory consolidation The idea that either REM or NREM sleep is ‘absolutely required’ for memory consolidation has received much attention recently. I and others have reviewed this issue elsewhere and concluded that this is unlikely to be the case. Z: Jerome M. Siegel, Clues to the functions of mammalian sleep, Nature, Vol 437, 2005 Konsolidacja pamięci proceduralnej w zależności od ilości snu. Z: Sleep-dependent memory consolidation. Robert Stickgold, Nature, Vol 437, 2005. „These results leave little doubt that sleep contributes to the consolidation of memories, especially their enhancement. ”
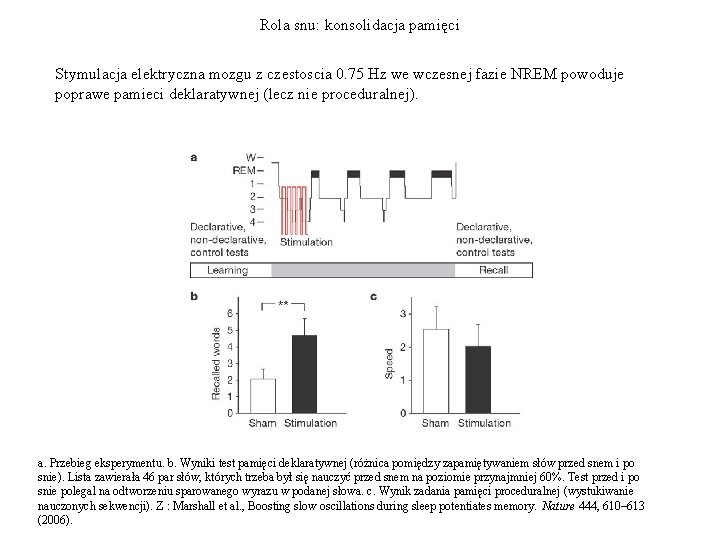
Rola snu: konsolidacja pamięci Stymulacja elektryczna mozgu z czestoscia 0. 75 Hz we wczesnej fazie NREM powoduje gryzoń poprawe pamieci deklaratywnej (lecz nie proceduralnej). a. Przebieg eksperymentu. b. Wyniki test pamięci deklaratywnej (różnica pomiędzy zapamiętywaniem słów przed snem i po snie). Lista zawierała 46 par słów, których trzeba był się nauczyć przed snem na poziomie przynajmniej 60%. Test przed i po snie polegal na odtworzeniu sparowanego wyrazu w podanej słowa. c. Wynik zadania pamięci proceduralnej (wystukiwanie nauczonych sekwencji). Z : Marshall et al. , Boosting slow oscillations during sleep potentiates memory. Nature 444, 610– 613 (2006).
Rola snu – ‘sprzątanie’ mózgu
Marzenia senne - Występują głównie w fazie REM snu. Sny pamięta 74% badanych wybudzonych w fazie REM vs. 10% wybudzonych w innych fazach. Nowsze badania: pamięć snu po fazie nie-REM sięga do 70 %. -Allan Hobson (1977): sny są epifenomenem (produkt uboczny biochemicznej pracy mózgu) i nie mają funkcji adaptacyjnej. -Calvin S. Hall (Western Reserve University) zebrał ponad 50, 000 opisów snu w latach 19401985 i opisal w The content analysis of dreams. Zawartość snów wiążę się z tym, co robimy w stanie czuwania (‘continuity hypothesis’). -Mark Blechner (2001): podczas snów generowane są nowe pomysły poprzez losowe zestawienia myśli. -La. Berge and De. Gracia (2000): kombinacja nieświadomych i świadomych procesów (‘mental recombination’) – poprawia procesowanie informacji. Carl Jung (1974): najważniejsze sny są produktem ‘nieświadomości zbiorowej’. Zawiera ona doświadczenia rasy ludzkiej w postaci "archetypów”. Główne archetypy Junga: anima/animus (żeńska/męska natura), cień (druga strona osobowości), persona (własny obraz zewnętrzny), dziecko, mędrzec, wielka matka, szatan, spryciarz (lis), bohater. Archetypy pojawiają się w snach, mitach oraz wizjach. Archetyp spryciarza Archetyp mędrca Archetyp bohatera
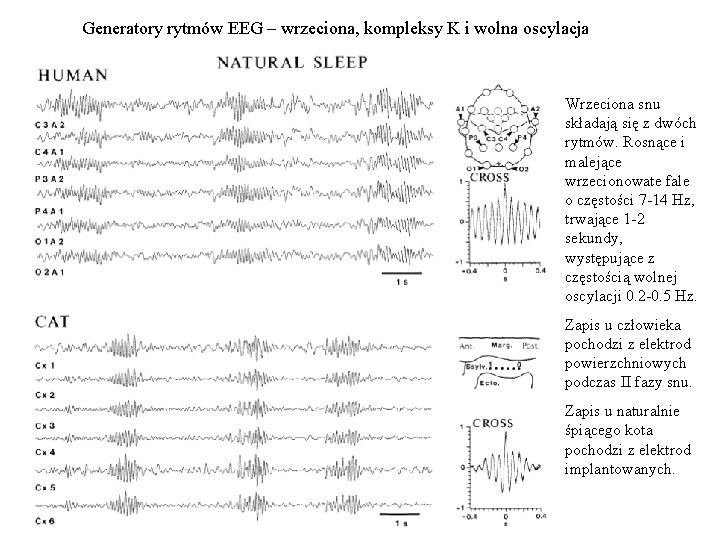
Generatory rytmów EEG – wrzeciona, kompleksy K i wolna oscylacja Wrzeciona snu składają się z dwóch rytmów. Rosnące i malejące wrzecionowate fale o częstości 7 -14 Hz, trwające 1 -2 sekundy, występujące z częstością wolnej oscylacji 0. 2 -0. 5 Hz. Zapis u człowieka pochodzi z elektrod powierzchniowych podczas II fazy snu. Zapis u naturalnie śpiącego kota pochodzi z elektrod implantowanych.
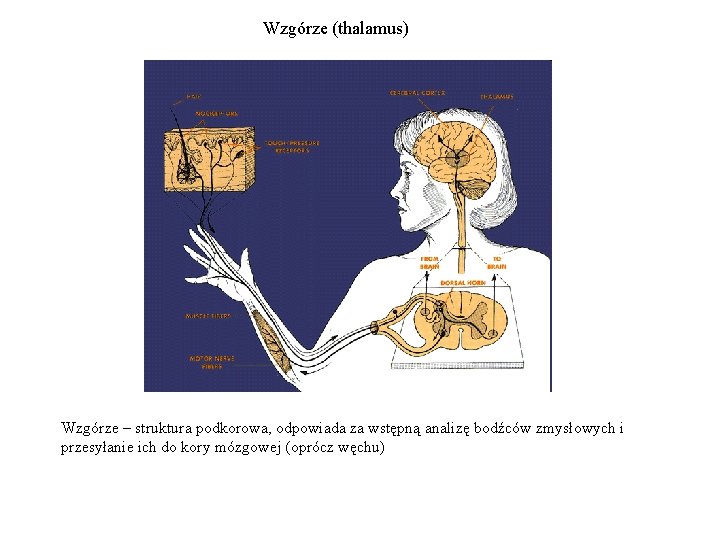
Wzgórze (thalamus) Wzgórze – struktura podkorowa, odpowiada za wstępną analizę bodźców zmysłowych i przesyłanie ich do kory mózgowej (oprócz węchu)
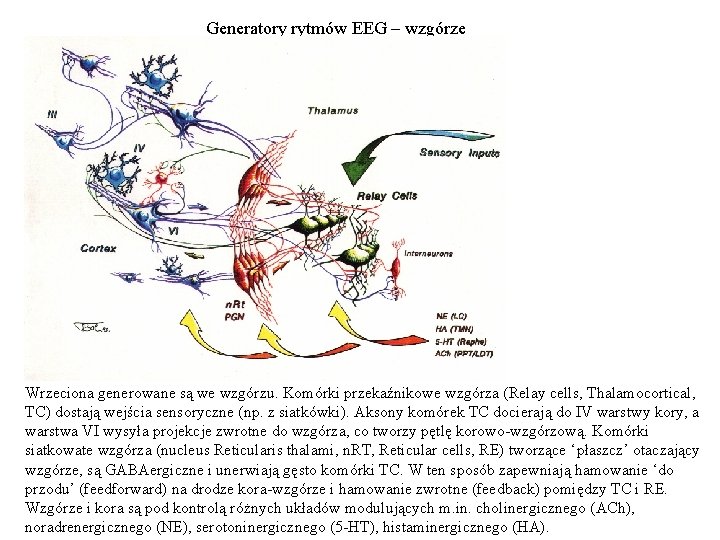
Generatory rytmów EEG – wzgórze Wrzeciona generowane są we wzgórzu. Komórki przekaźnikowe wzgórza (Relay cells, Thalamocortical, TC) dostają wejścia sensoryczne (np. z siatkówki). Aksony komórek TC docierają do IV warstwy kory, a warstwa VI wysyła projekcje zwrotne do wzgórza, co tworzy pętlę korowo-wzgórzową. Komórki siatkowate wzgórza (nucleus Reticularis thalami, n. RT, Reticular cells, RE) tworzące ‘płaszcz’ otaczający wzgórze, są GABAergiczne i unerwiają gęsto komórki TC. W ten sposób zapewniają hamowanie ‘do przodu’ (feedforward) na drodze kora-wzgórze i hamowanie zwrotne (feedback) pomiędzy TC i RE. Wzgórze i kora są pod kontrolą różnych układów modulujących m. in. cholinergicznego (ACh), noradrenergicznego (NE), serotoninergicznego (5 -HT), histaminergicznego (HA).
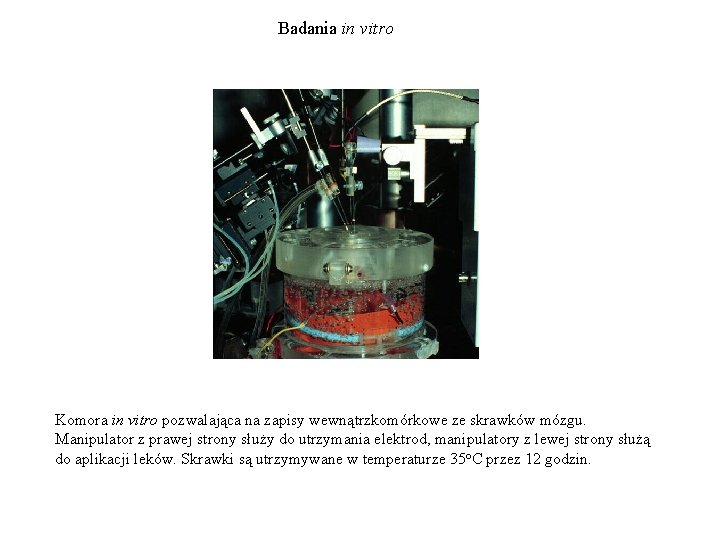
Badania in vitro Komora in vitro pozwalająca na zapisy wewnątrzkomórkowe ze skrawków mózgu. Manipulator z prawej strony służy do utrzymania elektrod, manipulatory z lewej strony służą do aplikacji leków. Skrawki są utrzymywane w temperaturze 35 o. C przez 12 godzin.
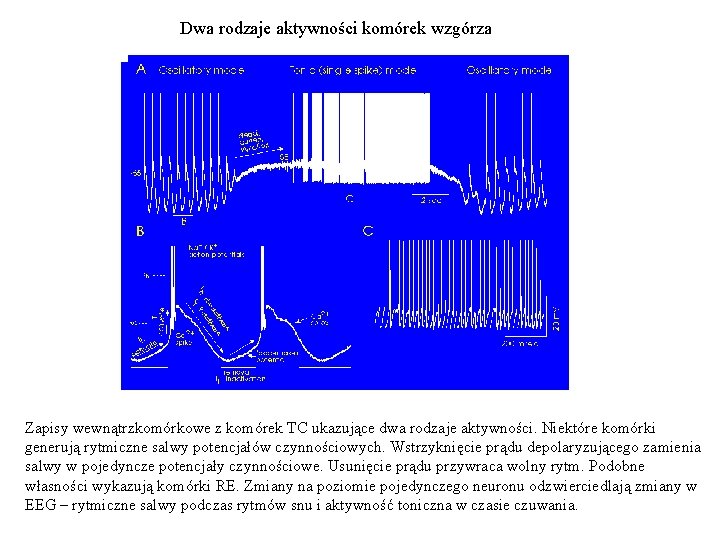
Dwa rodzaje aktywności komórek wzgórza Zapisy wewnątrzkomórkowe z komórek TC ukazujące dwa rodzaje aktywności. Niektóre komórki generują rytmiczne salwy potencjałów czynnościowych. Wstrzyknięcie prądu depolaryzującego zamienia salwy w pojedyncze potencjały czynnościowe. Usunięcie prądu przywraca wolny rytm. Podobne własności wykazują komórki RE. Zmiany na poziomie pojedynczego neuronu odzwierciedlają zmiany w EEG – rytmiczne salwy podczas rytmów snu i aktywność toniczna w czasie czuwania.
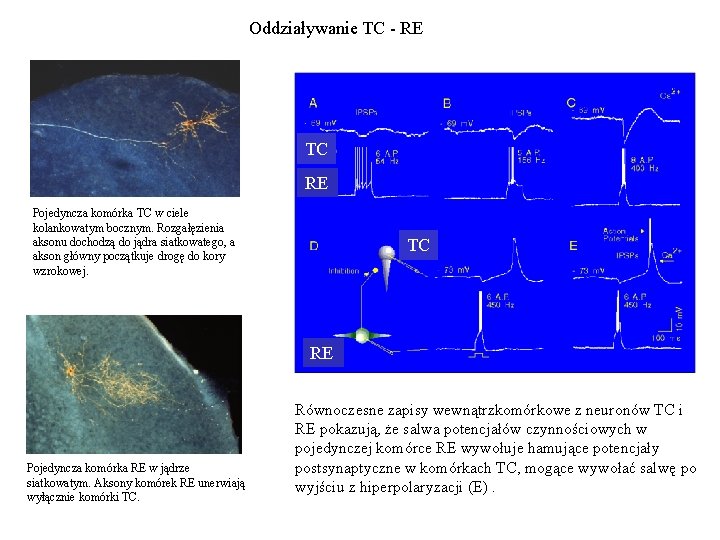
Oddziaływanie TC - RE TC RE Pojedyncza komórka TC w ciele kolankowatym bocznym. Rozgałęzienia aksonu dochodzą do jądra siatkowatego, a akson główny początkuje drogę do kory wzrokowej. TC RE Pojedyncza komórka RE w jądrze siatkowatym. Aksony komórek RE unerwiają wyłącznie komórki TC. Równoczesne zapisy wewnątrzkomórkowe z neuronów TC i RE pokazują, że salwa potencjałów czynnościowych w pojedynczej komórce RE wywołuje hamujące potencjały postsynaptyczne w komórkach TC, mogące wywołać salwę po wyjściu z hiperpolaryzacji (E).
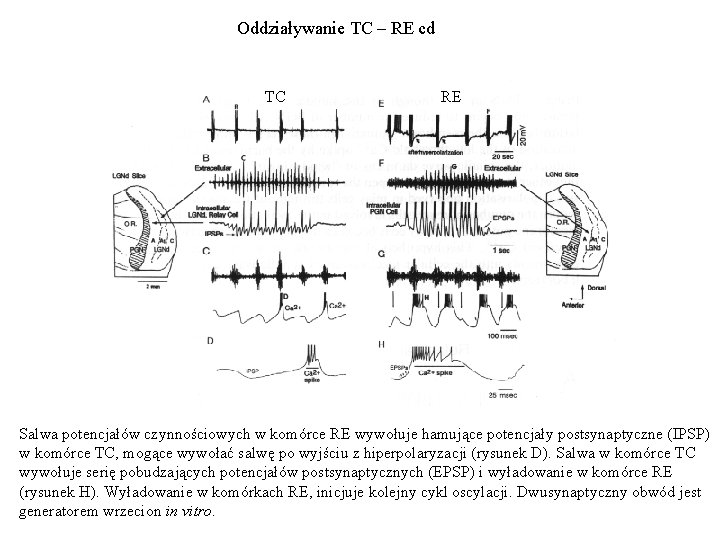
Oddziaływanie TC – RE cd TC RE Salwa potencjałów czynnościowych w komórce RE wywołuje hamujące potencjały postsynaptyczne (IPSP) w komórce TC, mogące wywołać salwę po wyjściu z hiperpolaryzacji (rysunek D). Salwa w komórce TC wywołuje serię pobudzających potencjałów postsynaptycznych (EPSP) i wyładowanie w komórce RE (rysunek H). Wyładowanie w komórkach RE, inicjuje kolejny cykl oscylacji. Dwusynaptyczny obwód jest generatorem wrzecion in vitro.
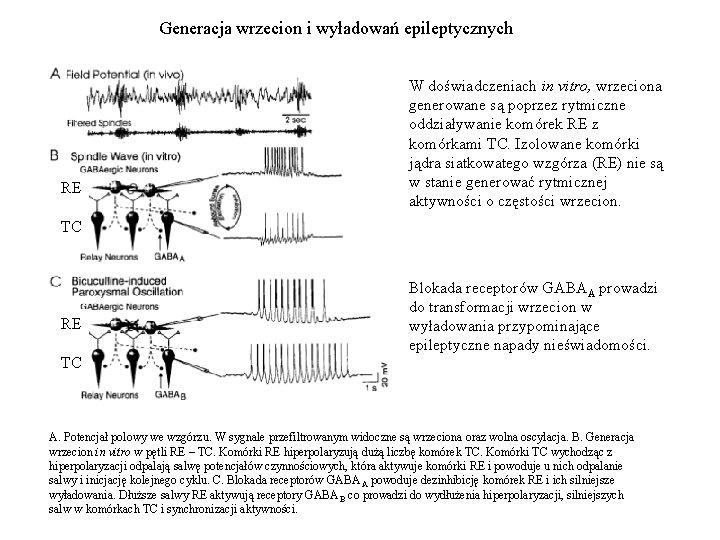
Generacja wrzecion i wyładowań epileptycznych RE W doświadczeniach in vitro, wrzeciona generowane są poprzez rytmiczne oddziaływanie komórek RE z komórkami TC. Izolowane komórki jądra siatkowatego wzgórza (RE) nie są w stanie generować rytmicznej aktywności o częstości wrzecion. TC RE Blokada receptorów GABAA prowadzi do transformacji wrzecion w wyładowania przypominające epileptyczne napady nieświadomości. TC A. Potencjał polowy we wzgórzu. W sygnale przefiltrowanym widoczne są wrzeciona oraz wolna oscylacja. B. Generacja wrzecion in vitro w pętli RE – TC. Komórki RE hiperpolaryzują dużą liczbę komórek TC. Komórki TC wychodząc z hiperpolaryzacji odpalają salwę potencjałów czynnościowych, która aktywuje komórki RE i powoduje u nich odpalanie salwy i inicjację kolejnego cyklu. C. Blokada receptorów GABA A powoduje dezinhibicję komórek RE i ich silniejsze wyładowania. Dłuższe salwy RE aktywują receptory GABA B co prowadzi do wydłużenia hiperpolaryzacji, silniejszych salw w komórkach TC i synchronizacji aktywności.
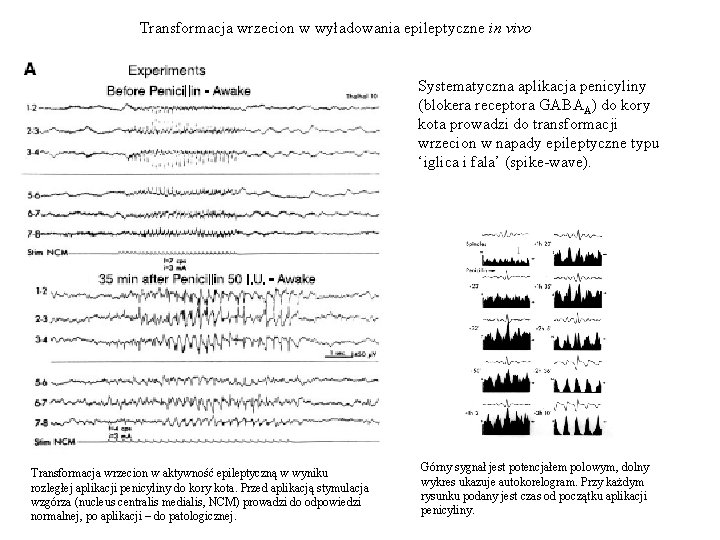
Transformacja wrzecion w wyładowania epileptyczne in vivo Systematyczna aplikacja penicyliny (blokera receptora GABAA) do kory kota prowadzi do transformacji wrzecion w napady epileptyczne typu ‘iglica i fala’ (spike-wave). Transformacja wrzecion w aktywność epileptyczną w wyniku rozległej aplikacji penicyliny do kory kota. Przed aplikacją stymulacja wzgórza (nucleus centralis medialis, NCM) prowadzi do odpowiedzi normalnej, po aplikacji – do patologicznej. Górny sygnał jest potencjałem polowym, dolny wykres ukazuje autokorelogram. Przy każdym rysunku podany jest czas od początku aplikacji penicyliny.
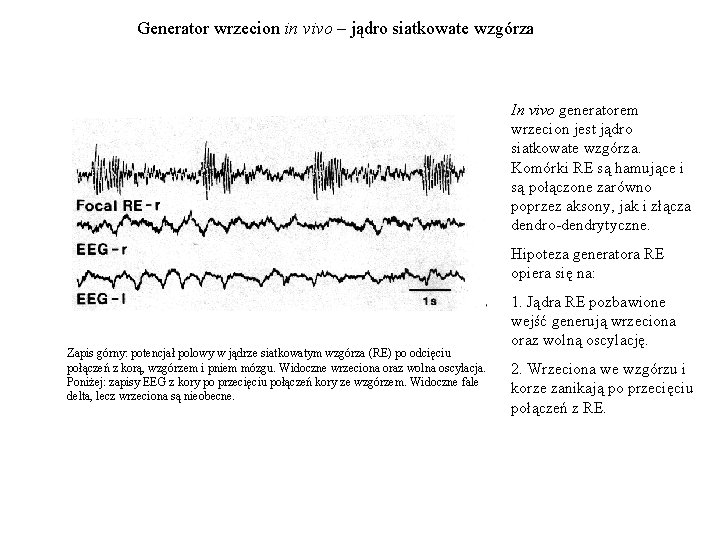
Generator wrzecion in vivo – jądro siatkowate wzgórza In vivo generatorem wrzecion jest jądro siatkowate wzgórza. Komórki RE są hamujące i są połączone zarówno poprzez aksony, jak i złącza dendro-dendrytyczne. Hipoteza generatora RE opiera się na: Zapis górny: potencjał polowy w jądrze siatkowatym wzgórza (RE) po odcięciu połączeń z korą, wzgórzem i pniem mózgu. Widoczne wrzeciona oraz wolna oscylacja. Poniżej: zapisy EEG z kory po przecięciu połączeń kory ze wzgórzem. Widoczne fale delta, lecz wrzeciona są nieobecne. 1. Jądra RE pozbawione wejść generują wrzeciona oraz wolną oscylację. 2. Wrzeciona we wzgórzu i korze zanikają po przecięciu połączeń z RE.
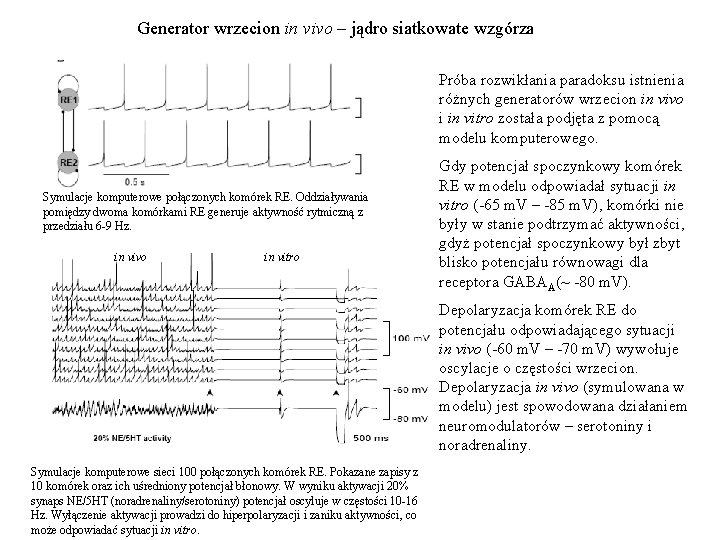
Generator wrzecion in vivo – jądro siatkowate wzgórza Próba rozwikłania paradoksu istnienia różnych generatorów wrzecion in vivo i in vitro została podjęta z pomocą modelu komputerowego. Symulacje komputerowe połączonych komórek RE. Oddziaływania pomiędzy dwoma komórkami RE generuje aktywność rytmiczną z przedziału 6 -9 Hz. in vivo in vitro Gdy potencjał spoczynkowy komórek RE w modelu odpowiadał sytuacji in vitro (-65 m. V – -85 m. V), komórki nie były w stanie podtrzymać aktywności, gdyż potencjał spoczynkowy był zbyt blisko potencjału równowagi dla receptora GABAA(~ -80 m. V). Depolaryzacja komórek RE do potencjału odpowiadającego sytuacji in vivo (-60 m. V – -70 m. V) wywołuje oscylacje o częstości wrzecion. Depolaryzacja in vivo (symulowana w modelu) jest spowodowana działaniem neuromodulatorów – serotoniny i noradrenaliny. Symulacje komputerowe sieci 100 połączonych komórek RE. Pokazane zapisy z 10 komórek oraz ich uśredniony potencjał błonowy. W wyniku aktywacji 20% synaps NE/5 HT (noradrenaliny/serotoniny) potencjał oscyluje w częstości 10 -16 Hz. Wyłączenie aktywacji prowadzi do hiperpolaryzacji i zaniku aktywności, co może odpowiadać sytuacji in vitro.
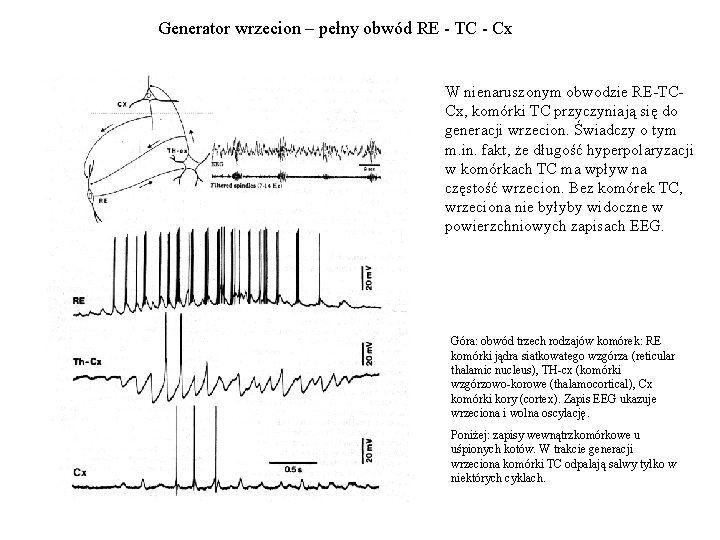
Generator wrzecion – pełny obwód RE - TC - Cx W nienaruszonym obwodzie RE-TCCx, komórki TC przyczyniają się do generacji wrzecion. Świadczy o tym m. in. fakt, że długość hyperpolaryzacji w komórkach TC ma wpływ na częstość wrzecion. Bez komórek TC, wrzeciona nie byłyby widoczne w powierzchniowych zapisach EEG. Góra: obwód trzech rodzajów komórek: RE komórki jądra siatkowatego wzgórza (reticular thalamic nucleus), TH-cx (komórki wzgórzowo-korowe (thalamocortical), Cx komórki kory (cortex). Zapis EEG ukazuje wrzeciona i wolna oscylację. Poniżej: zapisy wewnątrzkomórkowe u uśpionych kotów. W trakcie generacji wrzeciona komórki TC odpalają salwy tylko w niektórych cyklach.
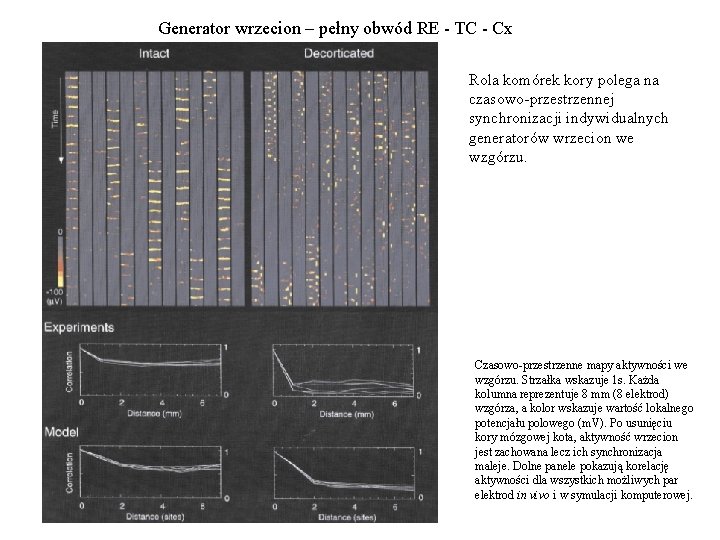
Generator wrzecion – pełny obwód RE - TC - Cx Rola komórek kory polega na czasowo-przestrzennej synchronizacji indywidualnych generatorów wrzecion we wzgórzu. Czasowo-przestrzenne mapy aktywności we wzgórzu. Strzałka wskazuje 1 s. Każda kolumna reprezentuje 8 mm (8 elektrod) wzgórza, a kolor wskazuje wartość lokalnego potencjału polowego (m. V). Po usunięciu kory mózgowej kota, aktywność wrzecion jest zachowana lecz ich synchronizacja maleje. Dolne panele pokazują korelację aktywności dla wszystkich możliwych par elektrod in vivo i w symulacji komputerowej.
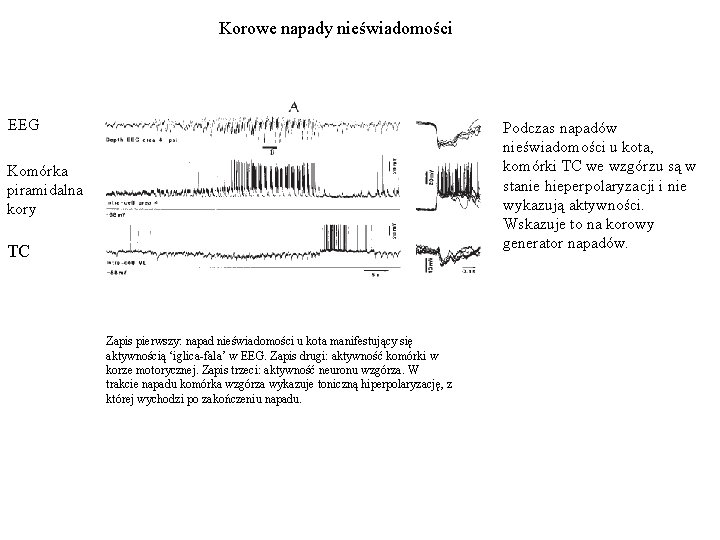
Korowe napady nieświadomości EEG Podczas napadów nieświadomości u kota, komórki TC we wzgórzu są w stanie hieperpolaryzacji i nie wykazują aktywności. Wskazuje to na korowy generator napadów. Komórka piramidalna kory TC Zapis pierwszy: napad nieświadomości u kota manifestujący się aktywnością ‘iglica-fala’ w EEG. Zapis drugi: aktywność komórki w korze motorycznej. Zapis trzeci: aktywność neuronu wzgórza. W trakcie napadu komórka wzgórza wykazuje toniczną hiperpolaryzację, z której wychodzi po zakończeniu napadu.
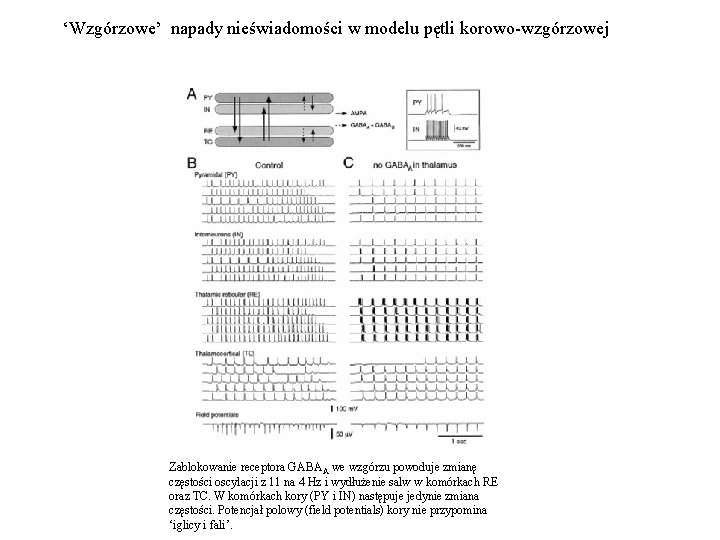
‘Wzgórzowe’ napady nieświadomości w modelu pętli korowo-wzgórzowej Zablokowanie receptora GABA A we wzgórzu powoduje zmianę częstości oscylacji z 11 na 4 Hz i wydłużenie salw w komórkach RE oraz TC. W komórkach kory (PY i IN) następuje jedynie zmiana częstości. Potencjał polowy (field potentials) kory nie przypomina ‘iglicy i fali’.
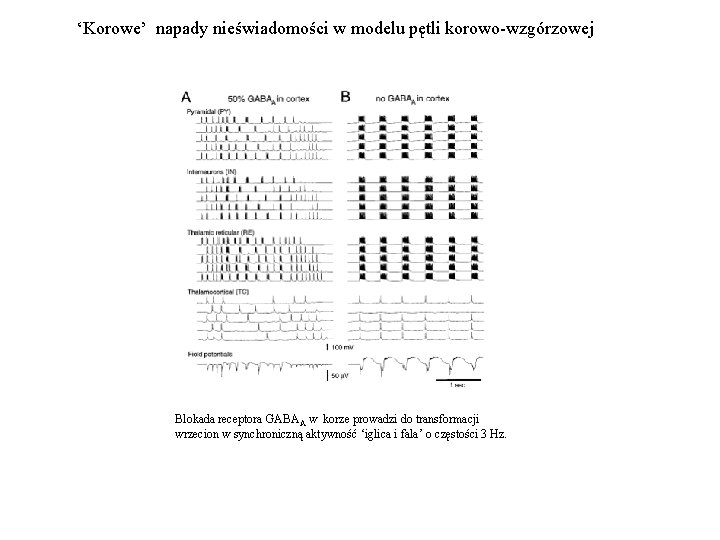
‘Korowe’ napady nieświadomości w modelu pętli korowo-wzgórzowej Blokada receptora GABA A w korze prowadzi do transformacji wrzecion w synchroniczną aktywność ‘iglica i fala’ o częstości 3 Hz.
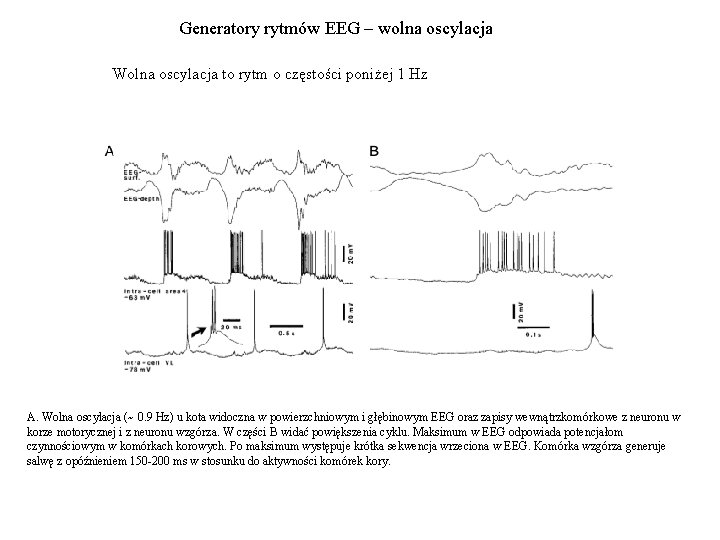
Generatory rytmów EEG – wolna oscylacja Wolna oscylacja to rytm o częstości poniżej 1 Hz A. Wolna oscylacja (~ 0. 9 Hz) u kota widoczna w powierzchniowym i głębinowym EEG oraz zapisy wewnątrzkomórkowe z neuronu w korze motorycznej i z neuronu wzgórza. W części B widać powiększenia cyklu. Maksimum w EEG odpowiada potencjałom czynnościowym w komórkach korowych. Po maksimum występuje krótka sekwencja wrzeciona w EEG. Komórka wzgórza generuje salwę z opóźnieniem 150 -200 ms w stosunku do aktywności komórek kory.
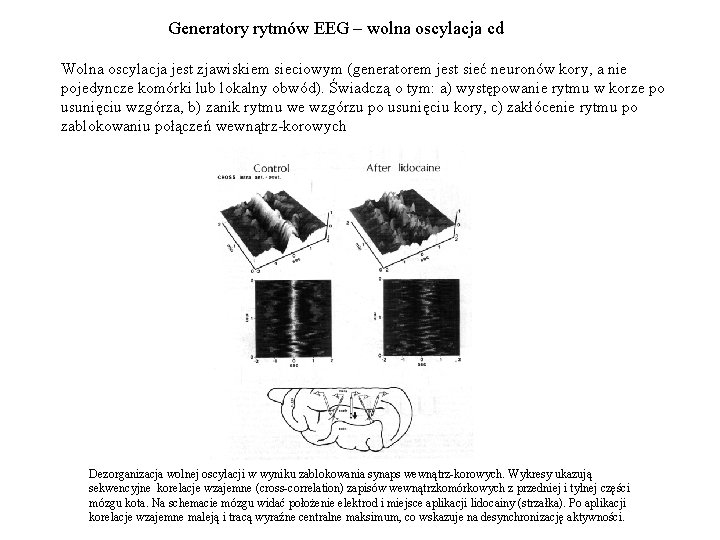
Generatory rytmów EEG – wolna oscylacja cd Wolna oscylacja jest zjawiskiem sieciowym (generatorem jest sieć neuronów kory, a nie pojedyncze komórki lub lokalny obwód). Świadczą o tym: a) występowanie rytmu w korze po usunięciu wzgórza, b) zanik rytmu we wzgórzu po usunięciu kory, c) zakłócenie rytmu po zablokowaniu połączeń wewnątrz-korowych Dezorganizacja wolnej oscylacji w wyniku zablokowania synaps wewnątrz-korowych. Wykresy ukazują sekwencyjne korelacje wzajemne (cross-correlation) zapisów wewnątrzkomórkowych z przedniej i tylnej części mózgu kota. Na schemacie mózgu widać położenie elektrod i miejsce aplikacji lidocainy (strzałka). Po aplikacji korelacje wzajemne maleją i tracą wyraźne centralne maksimum, co wskazuje na desynchronizację aktywności.
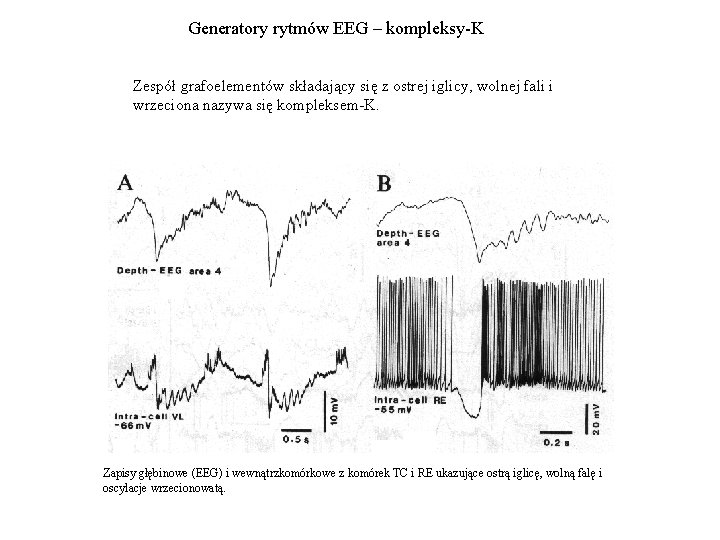
Generatory rytmów EEG – kompleksy-K Zespół grafoelementów składający się z ostrej iglicy, wolnej fali i wrzeciona nazywa się kompleksem-K. Zapisy głębinowe (EEG) i wewnątrzkomórkowe z komórek TC i RE ukazujące ostrą iglicę, wolną falę i oscylacje wrzecionowatą.
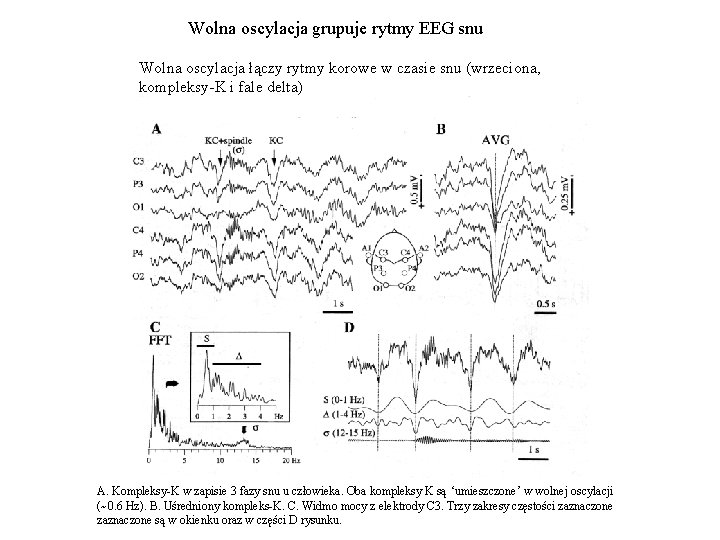
Wolna oscylacja grupuje rytmy EEG snu Wolna oscylacja łączy rytmy korowe w czasie snu (wrzeciona, kompleksy-K i fale delta) A. Kompleksy-K w zapisie 3 fazy snu u człowieka. Oba kompleksy K są ‘umieszczone’ w wolnej oscylacji (~0. 6 Hz). B. Uśredniony kompleks-K. C. Widmo mocy z elektrody C 3. Trzy zakresy częstości zaznaczone są w okienku oraz w części D rysunku.
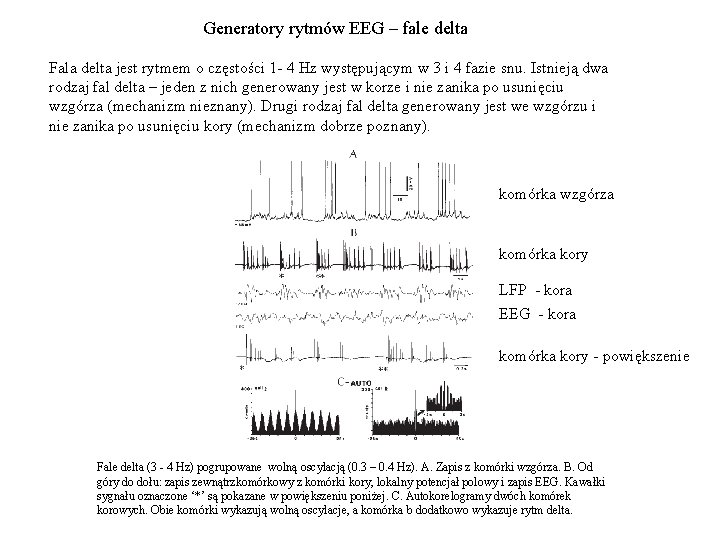
Generatory rytmów EEG – fale delta Fala delta jest rytmem o częstości 1 - 4 Hz występującym w 3 i 4 fazie snu. Istnieją dwa rodzaj fal delta – jeden z nich generowany jest w korze i nie zanika po usunięciu wzgórza (mechanizm nieznany). Drugi rodzaj fal delta generowany jest we wzgórzu i nie zanika po usunięciu kory (mechanizm dobrze poznany). komórka wzgórza komórka kory LFP - kora EEG - kora komórka kory - powiększenie Fale delta (3 - 4 Hz) pogrupowane wolną oscylacją (0. 3 – 0. 4 Hz). A. Zapis z komórki wzgórza. B. Od góry do dołu: zapis zewnątrzkomórkowy z komórki kory, lokalny potencjał polowy i zapis EEG. Kawałki sygnału oznaczone ‘*’ są pokazane w powiększeniu poniżej. C. Autokorelogramy dwóch komórek korowych. Obie komórki wykazują wolną oscylacje, a komórka b dodatkowo wykazuje rytm delta.
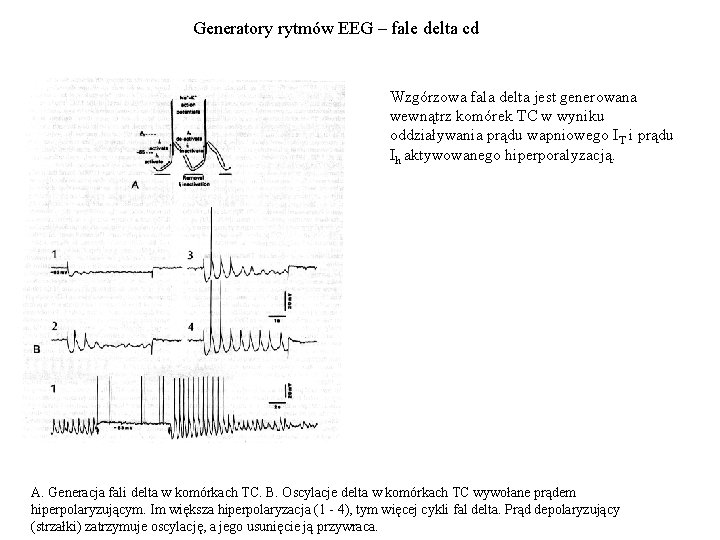
Generatory rytmów EEG – fale delta cd Wzgórzowa fala delta jest generowana wewnątrz komórek TC w wyniku oddziaływania prądu wapniowego IT i prądu Ih aktywowanego hiperporalyzacją. A. Generacja fali delta w komórkach TC. B. Oscylacje delta w komórkach TC wywołane prądem hiperpolaryzującym. Im większa hiperpolaryzacja (1 - 4), tym więcej cykli fal delta. Prąd depolaryzujący (strzałki) zatrzymuje oscylację, a jego usunięcie ją przywraca.
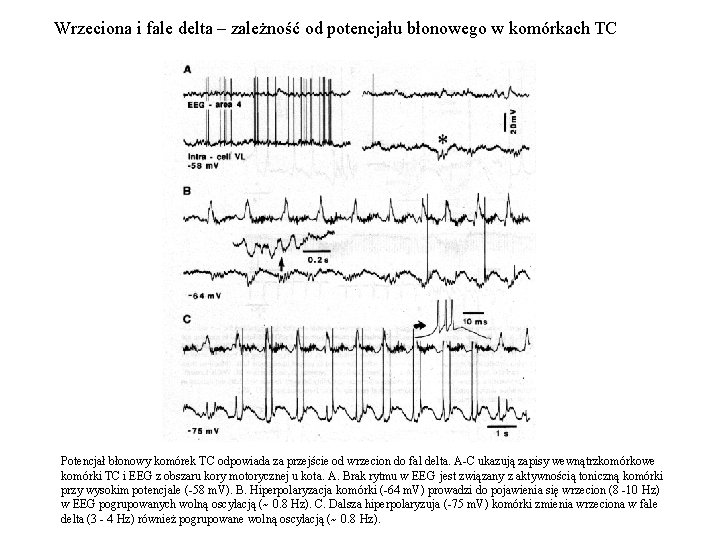
Wrzeciona i fale delta – zależność od potencjału błonowego w komórkach TC Potencjał błonowy komórek TC odpowiada za przejście od wrzecion do fal delta. A-C ukazują zapisy wewnątrzkomórkowe komórki TC i EEG z obszaru kory motorycznej u kota. A. Brak rytmu w EEG jest związany z aktywnością toniczną komórki przy wysokim potencjale (-58 m. V). B. Hiperpolaryzacja komórki (-64 m. V) prowadzi do pojawienia się wrzecion (8 -10 Hz) w EEG pogrupowanych wolną oscylacją (~ 0. 8 Hz). C. Dalsza hiperpolaryzuja (-75 m. V) komórki zmienia wrzeciona w fale delta (3 - 4 Hz) również pogrupowane wolną oscylacją (~ 0. 8 Hz).
- Slides: 39