
Difusin facilitada T GLUT Familia de transportadores de
- Slides: 30
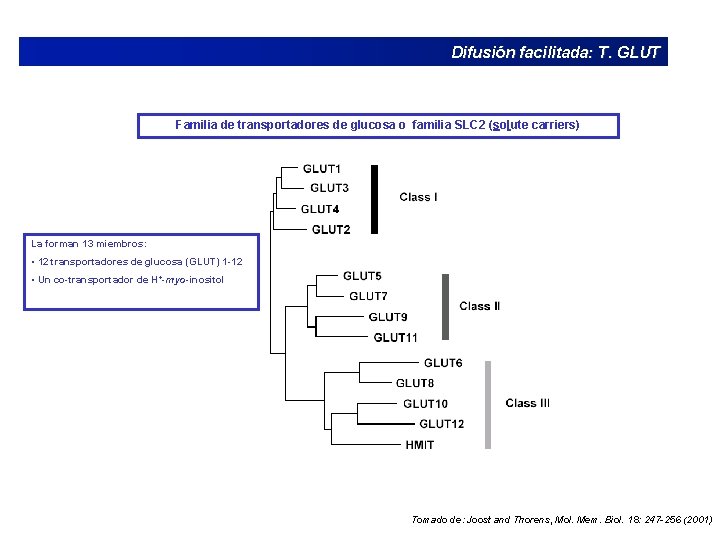
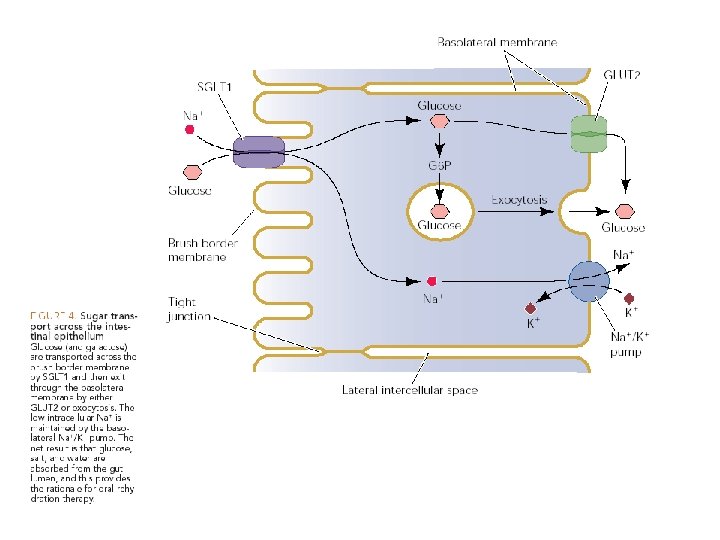
Difusión facilitada: T. GLUT Familia de transportadores de glucosa o familia SLC 2 (solute carriers) La forman 13 miembros: • 12 transportadores de glucosa (GLUT) 1 -12 • Un co-transportador de H+-myo-inositol Tomado de: Joost and Thorens, Mol. Mem. Biol. 18: 247 -256 (2001)
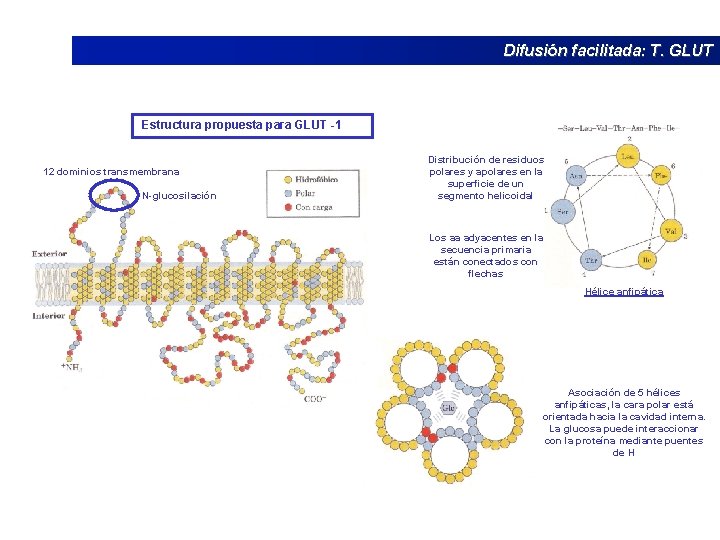
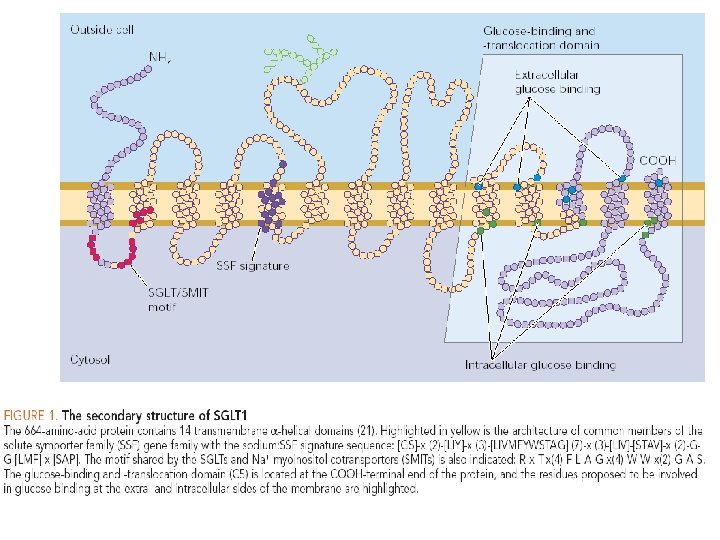
Difusión facilitada: T. GLUT Estructura propuesta para GLUT -1 12 dominios transmembrana N-glucosilación Distribución de residuos polares y apolares en la superficie de un segmento helicoidal Los aa adyacentes en la secuencia primaria están conectados con flechas Hélice anfipática Asociación de 5 hélices anfipáticas, la cara polar está orientada hacia la cavidad interna. La glucosa puede interaccionar con la proteína mediante puentes de H Tomado de: Lenhinger, “Fundamentos de Bioquímica””
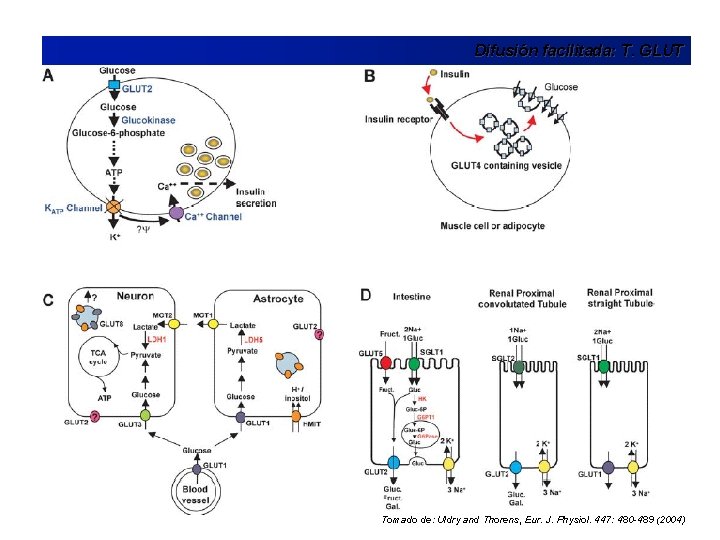
Difusión facilitada: T. GLUT Tomado de: Uldry and Thorens, Eur. J. Physiol. 447: 480 -489 (2004)
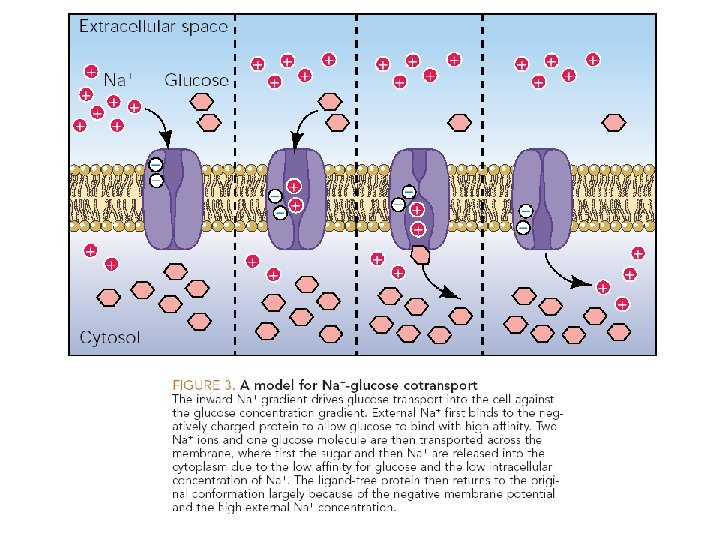
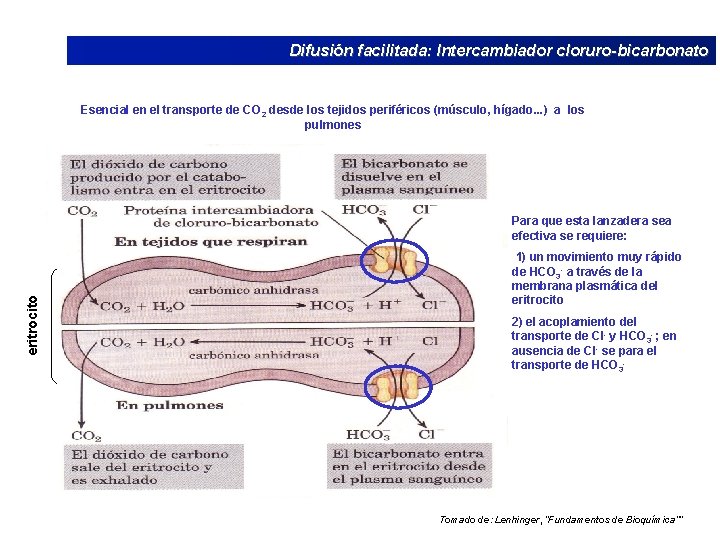
Difusión facilitada: Intercambiador cloruro-bicarbonato Esencial en el transporte de CO 2 desde los tejidos periféricos (músculo, hígado. . . ) a los pulmones eritrocito Para que esta lanzadera sea efectiva se requiere: 1) un movimiento muy rápido de HCO 3 - a través de la membrana plasmática del eritrocito 2) el acoplamiento del transporte de Cl- y HCO 3 - ; en ausencia de Cl- se para el transporte de HCO 3 - Tomado de: Lenhinger, “Fundamentos de Bioquímica””
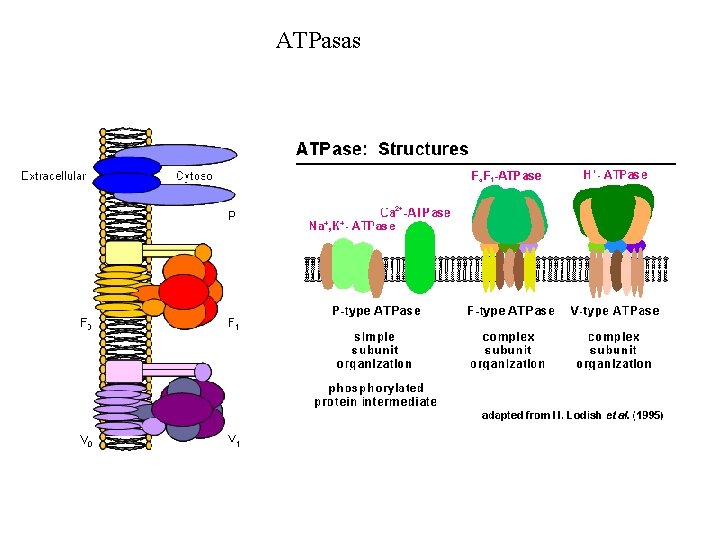
ATPasas
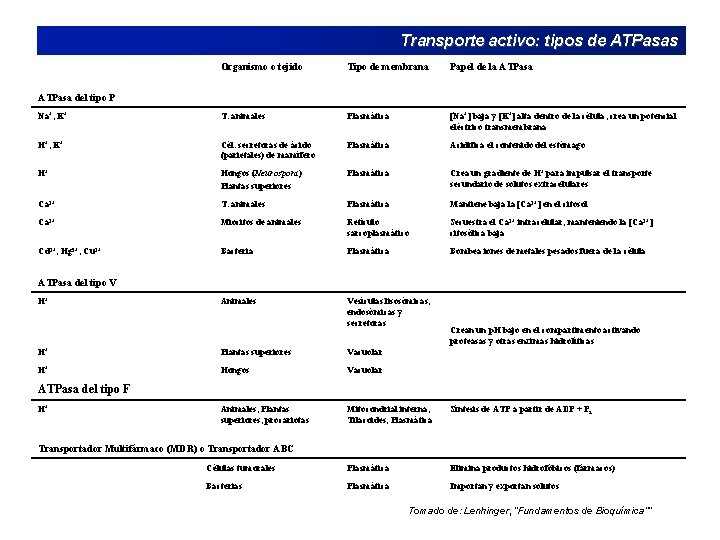
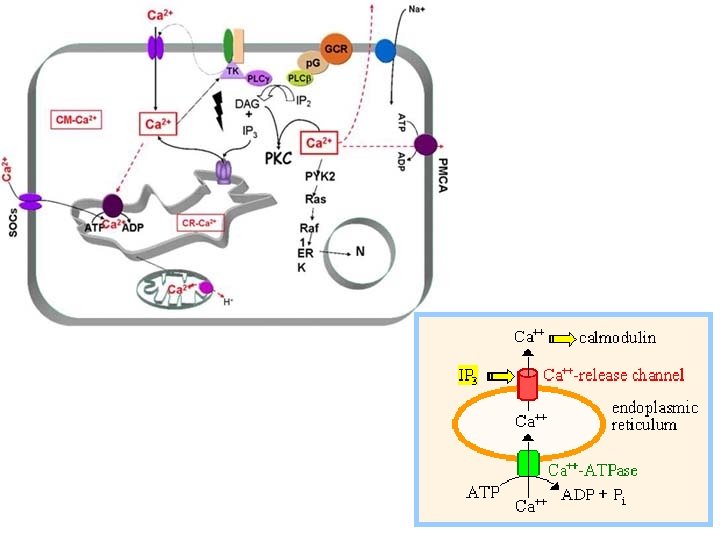
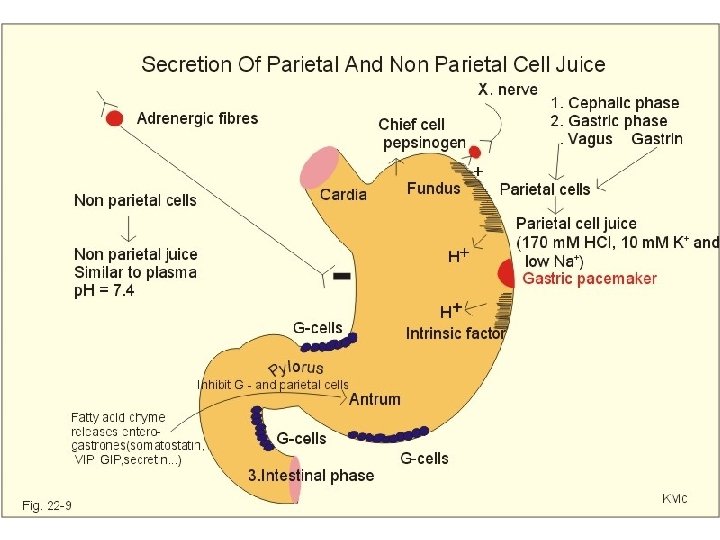
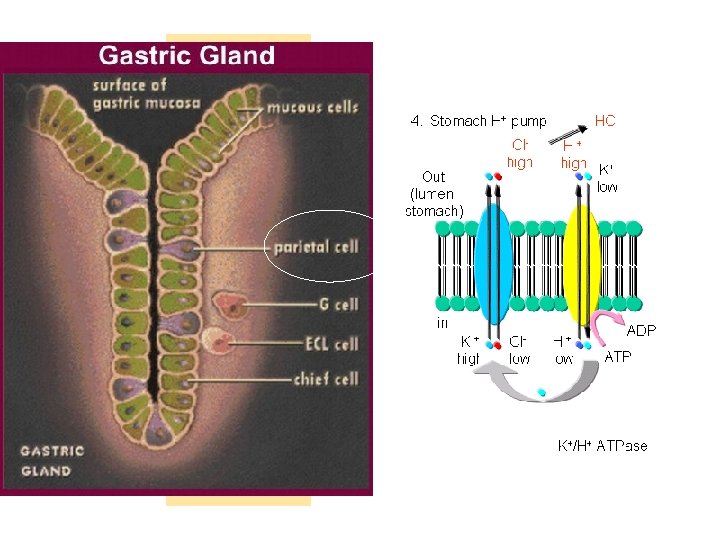
Transporte activo: tipos de ATPasas Organismo o tejido Tipo de membrana Papel de la ATPasa Na+, K+ T. animales Plasmática [Na+] baja y [K+] alta dentro de la célula; crea un potencial eléctrico transmembrana H+, K+ Cél. secretoras de ácido (parietales) de mamífero Plasmática Acidifica el contenido del estómago H+ Hongos (Neurospora) Plantas superiores Plasmática Crea un gradiente de H+ para impulsar el transporte secundario de solutos extracelulares Ca 2+ T. animales Plasmática Mantiene baja la [Ca 2+] en el citosol Ca 2+ Miocitos de animales Retículo sarcoplasmático Secuestra el Ca 2+ intracelular, manteniendo la [Ca 2+] citosólica baja Cd 2+, Hg 2+, Cu 2+ Bacteria Plasmática Bombea iones de metales pesados fuera de la célula Animales Vesículas lisosómicas, endosómicas y secretoras ATPasa del tipo P ATPasa del tipo V H+ Crean un p. H bajo en el compartimento activando proteasas y otras enzimas hidrolíticas H+ Plantas superiores Vacuolar H+ Hongos Vacuolar Animales, Plantas superiores, procariotas Mitocondrial interna, Tilacoides, Plasmática Síntesis de ATP a partir de ADP + Pi Células tumorales Plasmática Elimina productos hidrofóbicos (fármacos) Bacterias Plasmática Importan y exportan solutos ATPasa del tipo F H+ Transportador Multifármaco (MDR) o Transportador ABC Tomado de: Lenhinger, “Fundamentos de Bioquímica””
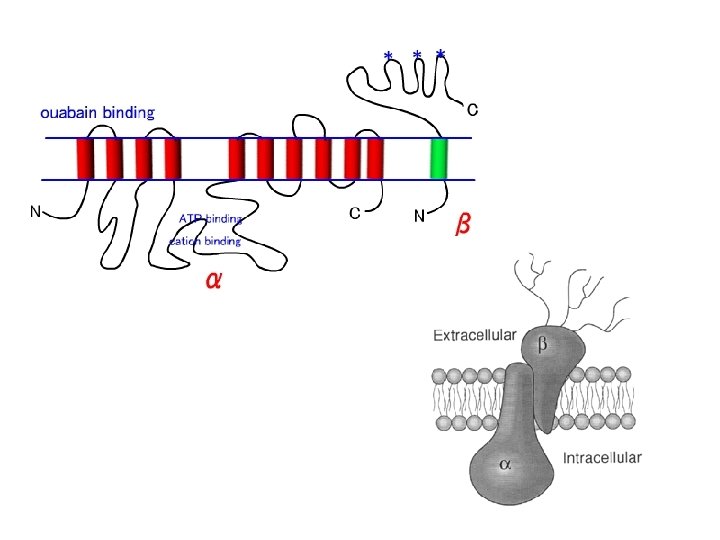
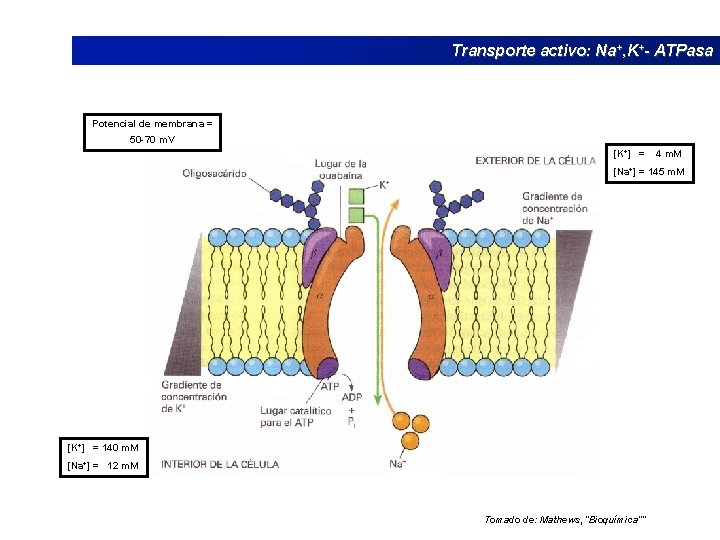
Transporte activo: Na+, K+- ATPasa Potencial de membrana = 50 -70 m. V [K+] = 4 m. M [Na+] = 145 m. M [K+] = 140 m. M [Na+] = 12 m. M Tomado de: Mathews, “Bioquímica””
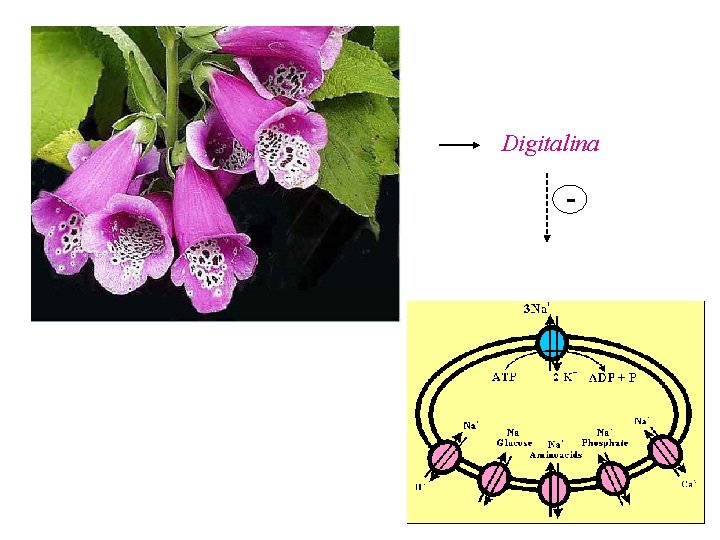
Digitalina -
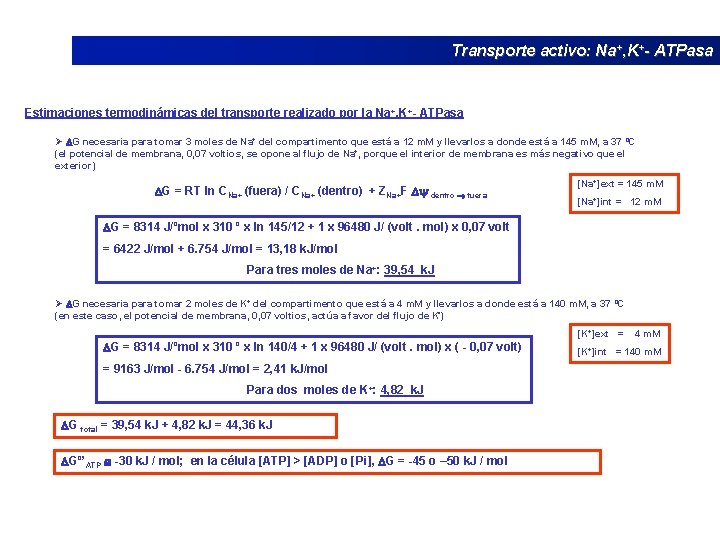
Transporte activo: Na+, K+- ATPasa Estimaciones termodinámicas del transporte realizado por la Na+, K+- ATPasa Ø DG necesaria para tomar 3 moles de Na+ del compartimento que está a 12 m. M y llevarlos a donde está a 145 m. M, a 37 ºC (el potencial de membrana, 0, 07 voltios, se opone al flujo de Na+, porque el interior de membrana es más negativo que el exterior) DG = RT ln CNa+ (fuera) / CNa+ (dentro) + ZNa+F Dy dentro fuera [Na+]ext = 145 m. M [Na+]int = 12 m. M DG = 8314 J/ºmol x 310 º x ln 145/12 + 1 x 96480 J/ (volt. mol) x 0, 07 volt = 6422 J/mol + 6. 754 J/mol = 13, 18 k. J/mol Para tres moles de Na+: 39, 54 k. J Ø DG necesaria para tomar 2 moles de K+ del compartimento que está a 4 m. M y llevarlos a donde está a 140 m. M, a 37 ºC (en este caso, el potencial de membrana, 0, 07 voltios, actúa a favor del flujo de K*) DG = 8314 J/ºmol x 310 º x ln 140/4 + 1 x 96480 J/ (volt. mol) x ( - 0, 07 volt) = 9163 J/mol - 6. 754 J/mol = 2, 41 k. J/mol Para dos moles de K+: 4, 82 k. J DG total = 39, 54 k. J + 4, 82 k. J = 44, 36 k. J DGº’ATP -30 k. J / mol; en la célula [ATP] > [ADP] o [Pi], DG = -45 o – 50 k. J / mol [K+]ext = 4 m. M [K+]int = 140 m. M
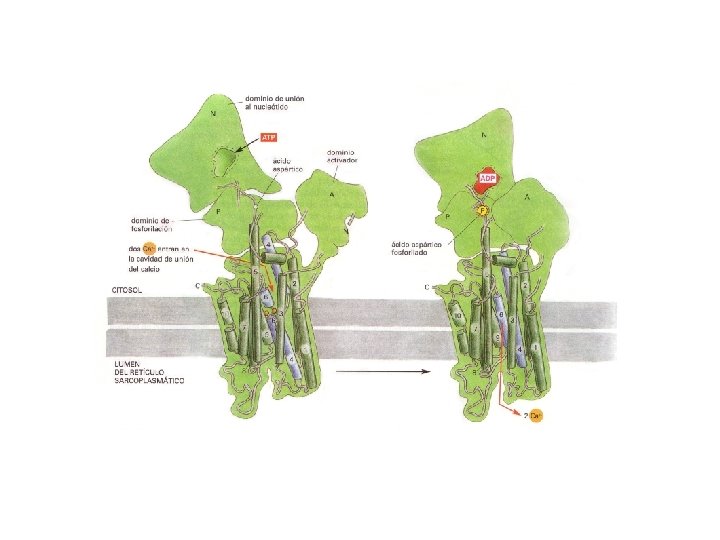
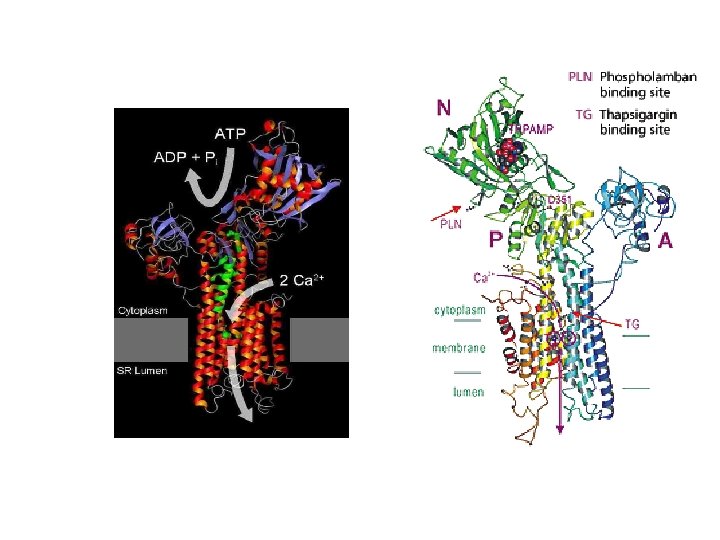
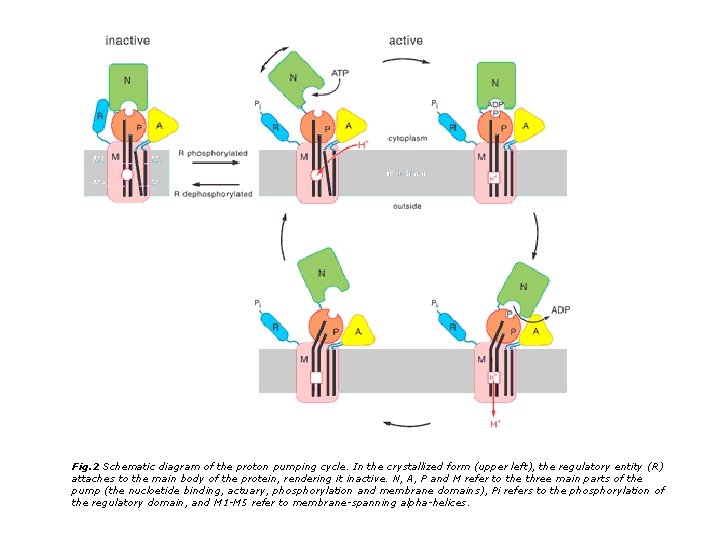
Fig. 2 Schematic diagram of the proton pumping cycle. In the crystallized form (upper left), the regulatory entity (R) attaches to the main body of the protein, rendering it inactive. N, A, P and M refer to the three main parts of the pump (the nucloetide binding, actuary, phosphorylation and membrane domains), Pi refers to the phosphorylation of the regulatory domain, and M 1 -M 5 refer to membrane-spanning alpha-helices.
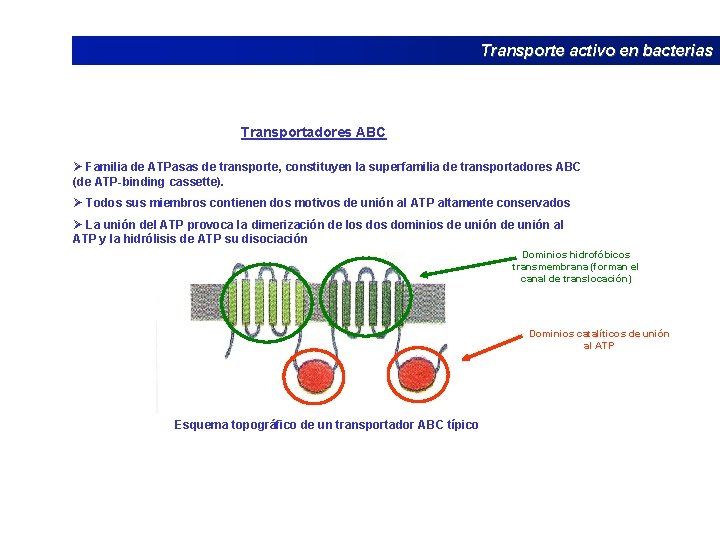
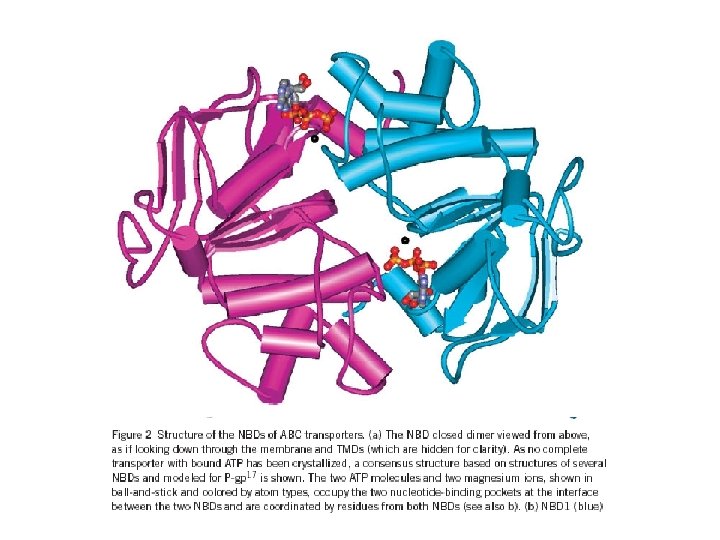
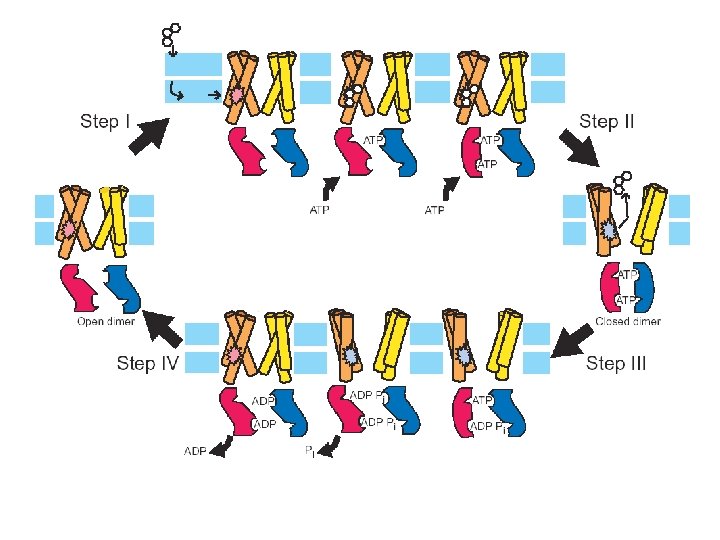
Transporte activo en bacterias Transportadores ABC Ø Familia de ATPasas de transporte, constituyen la superfamilia de transportadores ABC (de ATP-binding cassette). Ø Todos sus miembros contienen dos motivos de unión al ATP altamente conservados Ø La unión del ATP provoca la dimerización de los dominios de unión al ATP y la hidrólisis de ATP su disociación Dominios hidrofóbicos transmembrana (forman el canal de translocación) Dominios catalíticos de unión al ATP Esquema topográfico de un transportador ABC típico
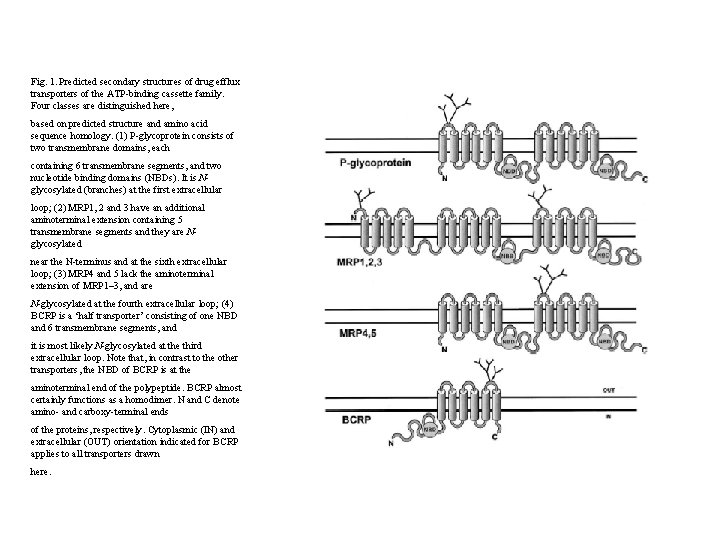
Fig. 1. Predicted secondary structures of drug efflux transporters of the ATP-binding cassette family. Four classes are distinguished here, based on predicted structure and amino acid sequence homology. (1) P-glycoprotein consists of two transmembrane domains, each containing 6 transmembrane segments, and two nucleotide binding domains (NBDs). It is Nglycosylated (branches) at the first extracellular loop; (2) MRP 1, 2 and 3 have an additional aminoterminal extension containing 5 transmembrane segments and they are Nglycosylated near the N-terminus and at the sixth extracellular loop; (3) MRP 4 and 5 lack the aminoterminal extension of MRP 1– 3, and are N-glycosylated at the fourth extracellular loop; (4) BCRP is a ‘half transporter’ consisting of one NBD and 6 transmembrane segments, and it is most likely N-glycosylated at the third extracellular loop. Note that, in contrast to the other transporters, the NBD of BCRP is at the aminoterminal end of the polypeptide. BCRP almost certainly functions as a homodimer. N and C denote amino- and carboxy-terminal ends of the proteins, respectively. Cytoplasmic (IN) and extracellular (OUT) orientation indicated for BCRP applies to all transporters drawn here.
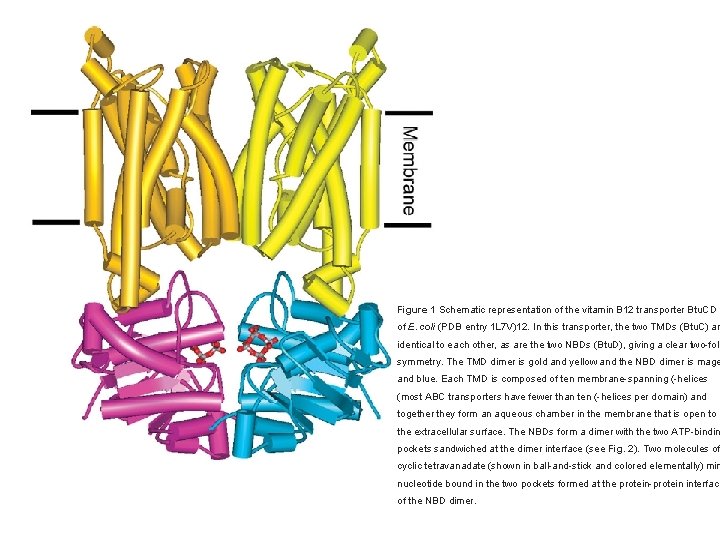
Figure 1 Schematic representation of the vitamin B 12 transporter Btu. CD of E. coli (PDB entry 1 L 7 V)12. In this transporter, the two TMDs (Btu. C) ar identical to each other, as are the two NBDs (Btu. D), giving a clear two-fold symmetry. The TMD dimer is gold and yellow and the NBD dimer is mage and blue. Each TMD is composed of ten membrane-spanning á-helices (most ABC transporters have fewer than ten á-helices per domain) and together they form an aqueous chamber in the membrane that is open to the extracellular surface. The NBDs form a dimer with the two ATP-bindin pockets sandwiched at the dimer interface (see Fig. 2). Two molecules of cyclic tetravanadate (shown in ball-and-stick and colored elementally) mim nucleotide bound in the two pockets formed at the protein-protein interface of the NBD dimer.