Cofatores inorgnicos Cofatores orgnicos ou metaloorgnicos coenzimas Quimotripsina
- Slides: 72
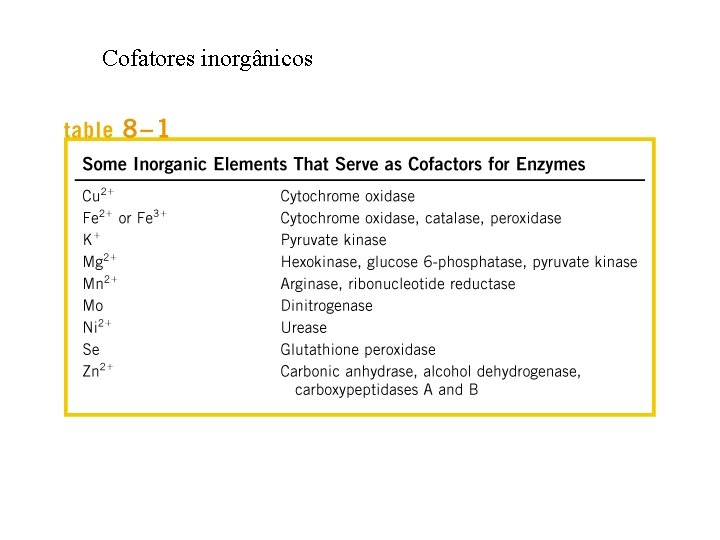
Cofatores inorgânicos
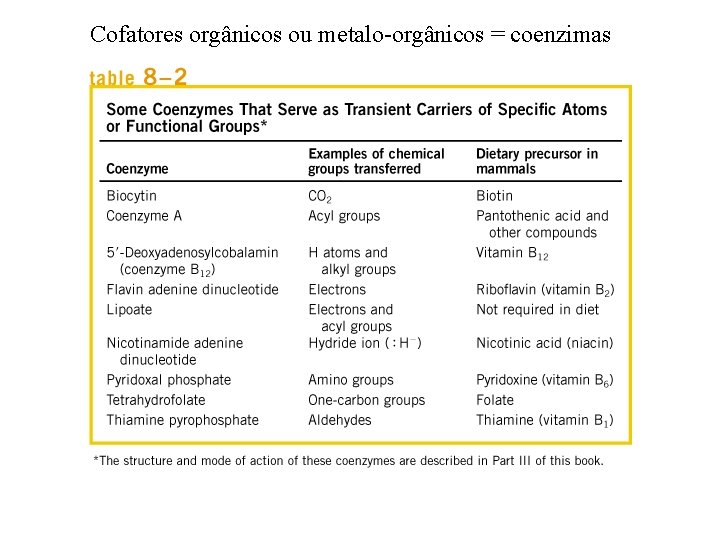
Cofatores orgânicos ou metalo-orgânicos = coenzimas
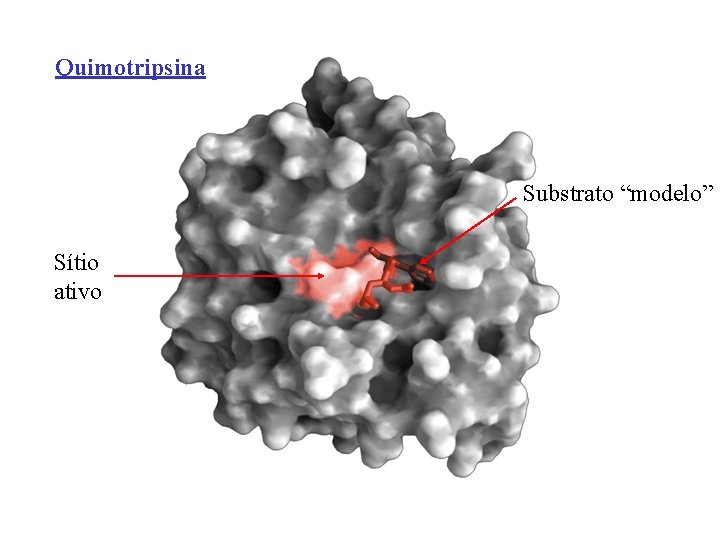
Quimotripsina Substrato “modelo” Sítio ativo
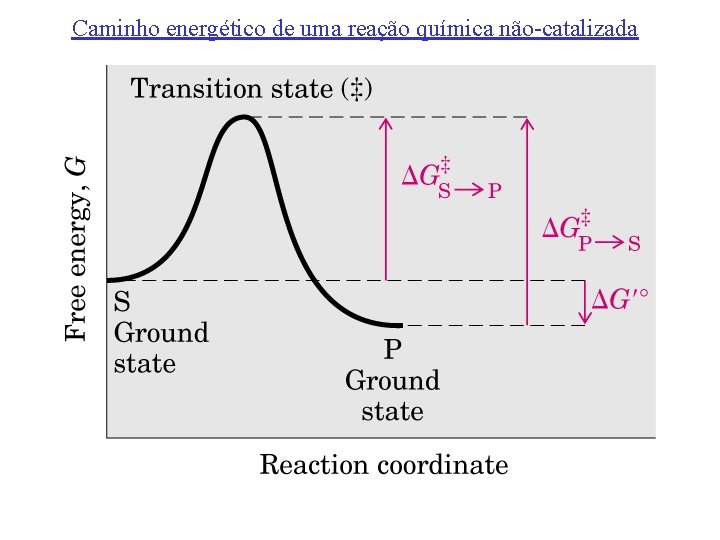
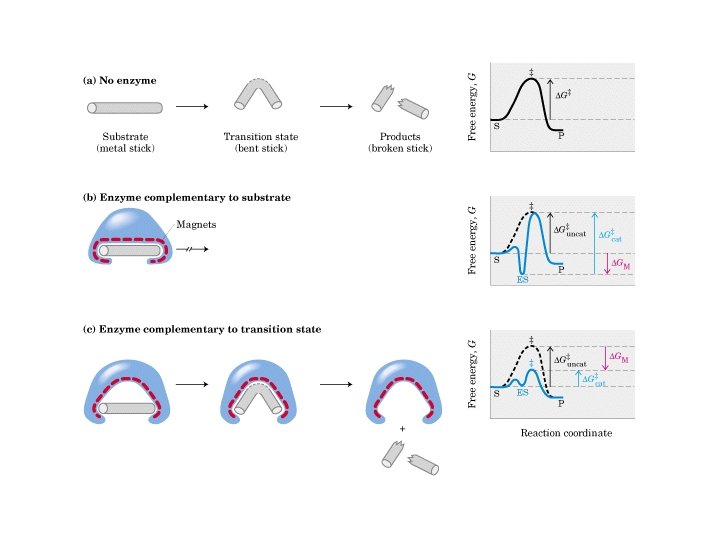
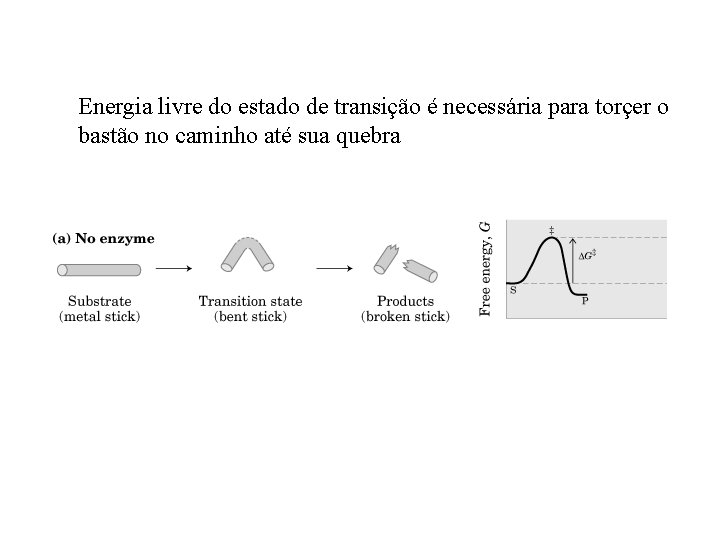
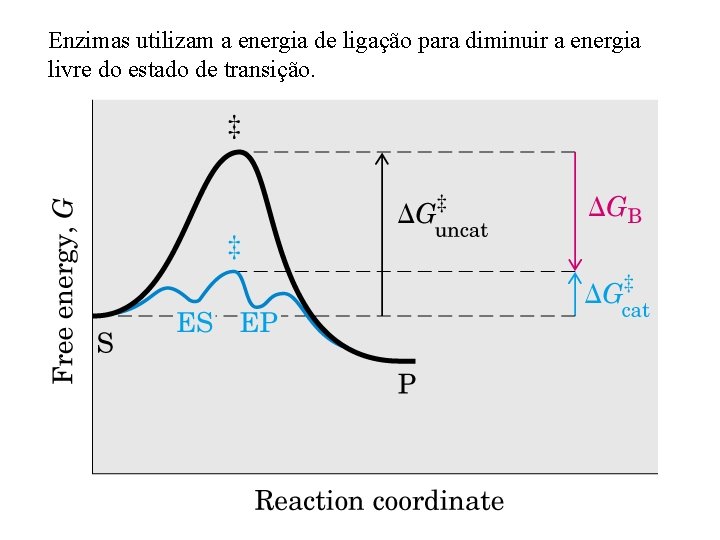
Caminho energético de uma reação química não-catalizada
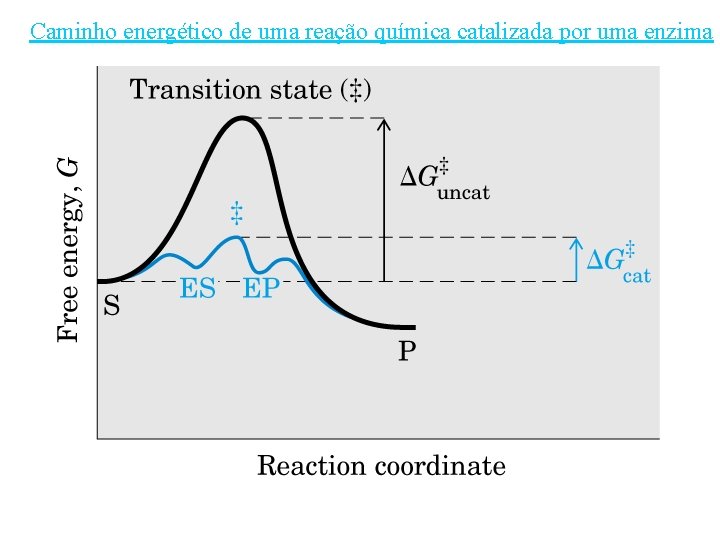
Caminho energético de uma reação química catalizada por uma enzima
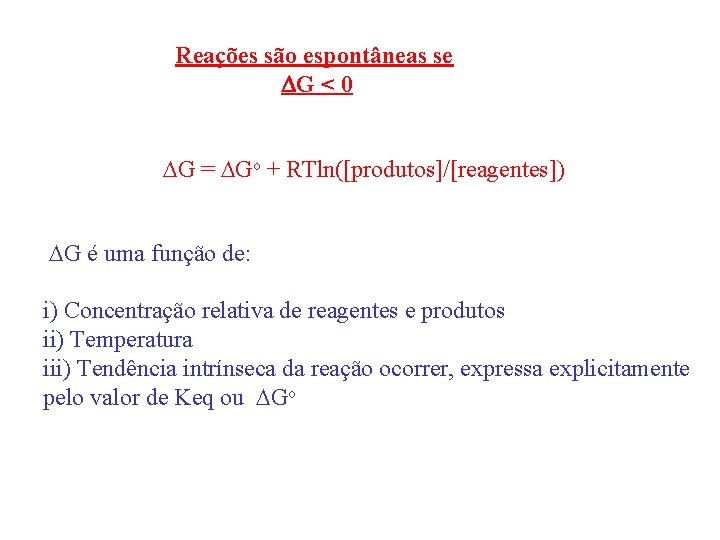
Reações são espontâneas se DG < 0 DG = DGo + RTln([produtos]/[reagentes]) DG é uma função de: i) Concentração relativa de reagentes e produtos ii) Temperatura iii) Tendência intrínseca da reação ocorrer, expressa explicitamente pelo valor de Keq ou DGo
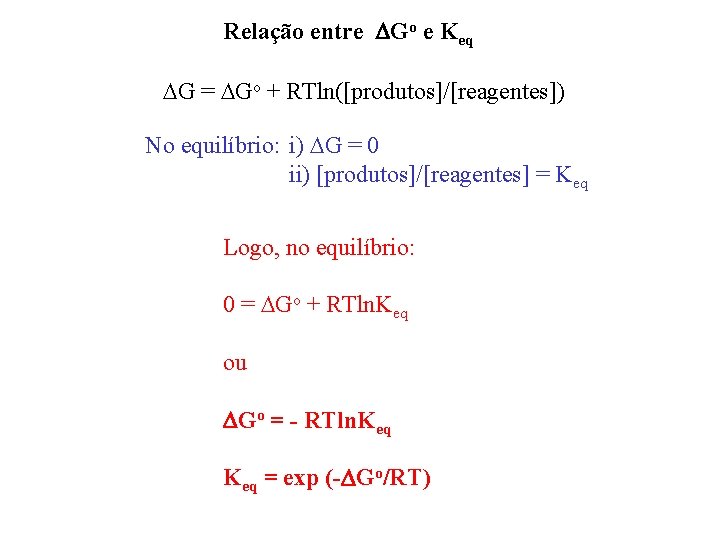
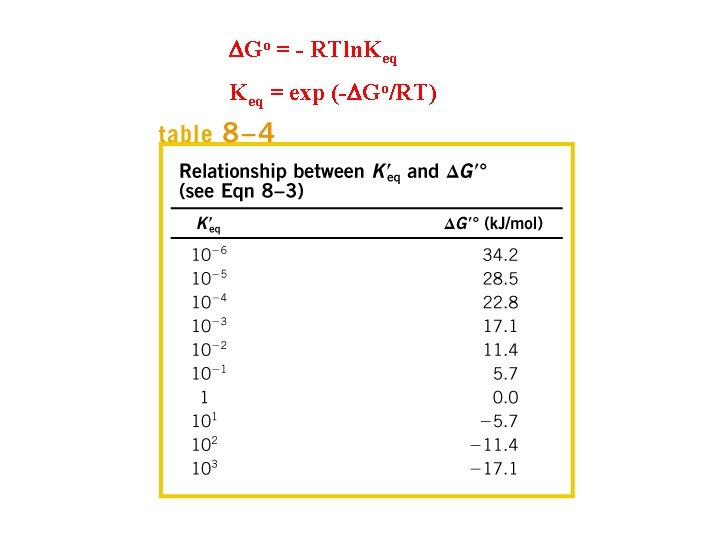
Relação entre DGo e Keq DG = DGo + RTln([produtos]/[reagentes]) No equilíbrio: i) DG = 0 ii) [produtos]/[reagentes] = Keq Logo, no equilíbrio: 0 = DGo + RTln. Keq ou DGo = - RTln. Keq = exp (-DGo/RT)
DGo = - RTln. Keq = exp (-DGo/RT)
Mecanísmos de catálise: vide Voet capitulo 11, parte 3 (seção 11 -3) 1) Catálise ácido-base 2) Catálise covalente 3) Catálise por íons metálicos 4) Catálise eletrostático 5) Efeitos de proximidade e orientação 6) Ligação preferencial do complexo de estado de transição
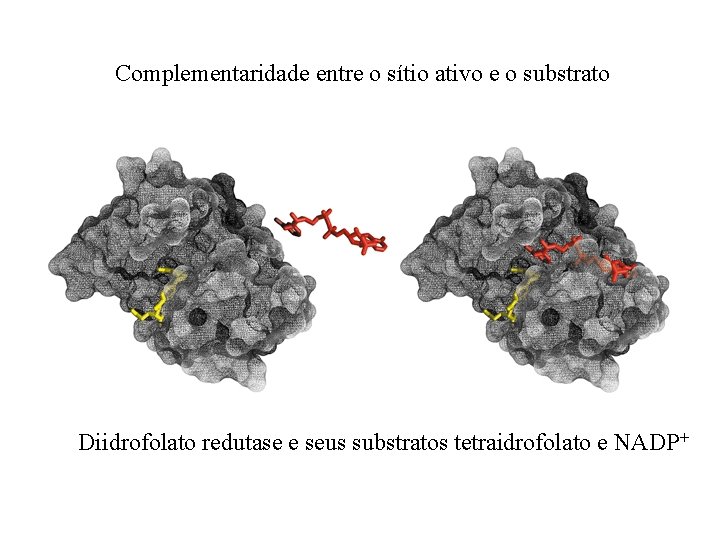
Complementaridade entre o sítio ativo e o substrato Diidrofolato redutase e seus substratos tetraidrofolato e NADP+
Energia livre do estado de transição é necessária para torçer o bastão no caminho até sua quebra
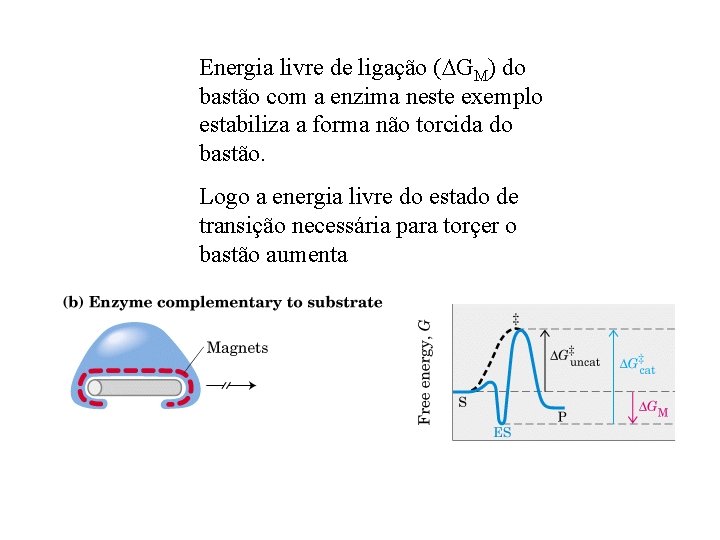
Energia livre de ligação (DGM) do bastão com a enzima neste exemplo estabiliza a forma não torcida do bastão. Logo a energia livre do estado de transição necessária para torçer o bastão aumenta
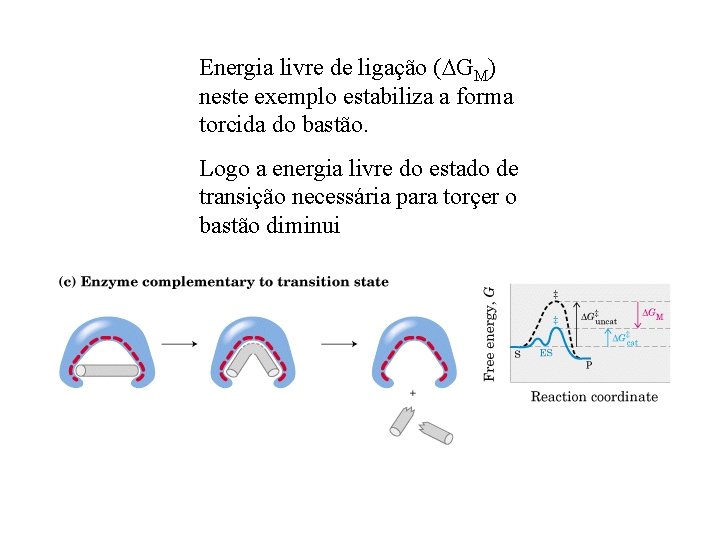
Energia livre de ligação (DGM) neste exemplo estabiliza a forma torcida do bastão. Logo a energia livre do estado de transição necessária para torçer o bastão diminui
Enzimas utilizam a energia de ligação para diminuir a energia livre do estado de transição.
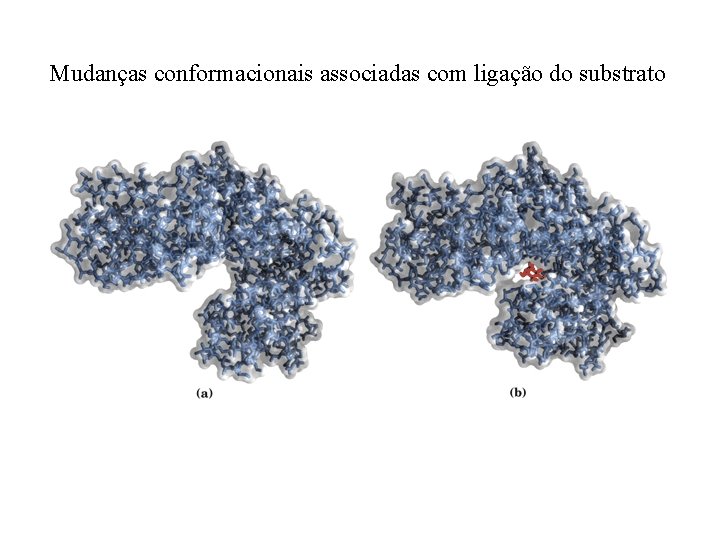
Mudanças conformacionais associadas com ligação do substrato
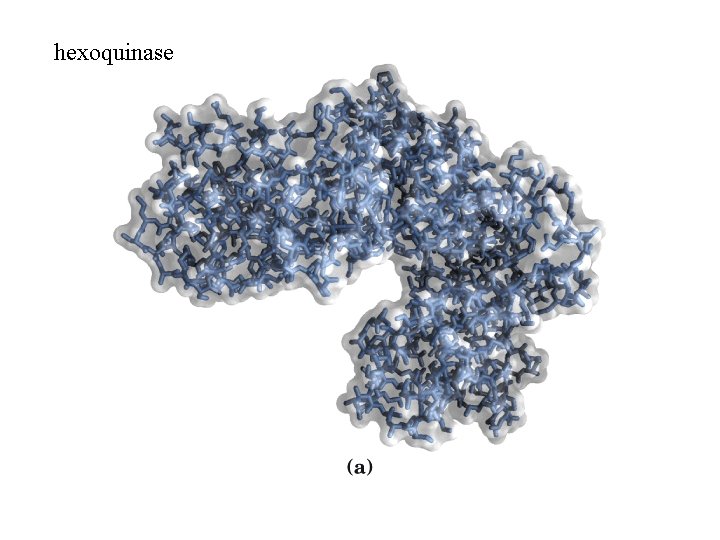
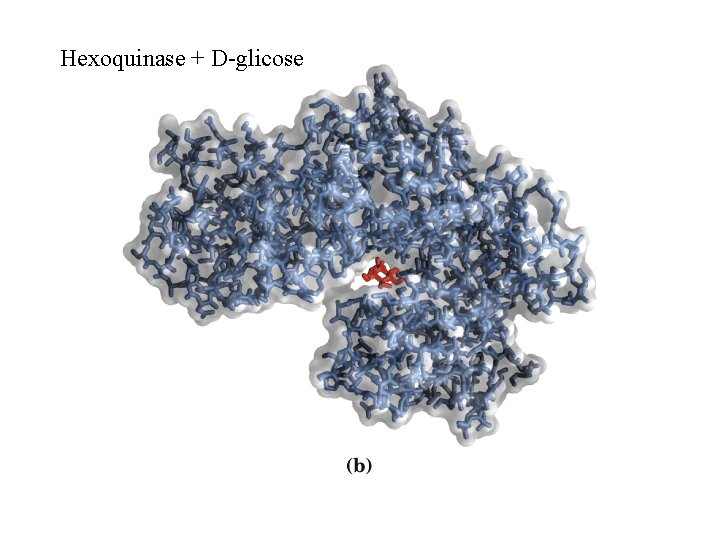
hexoquinase
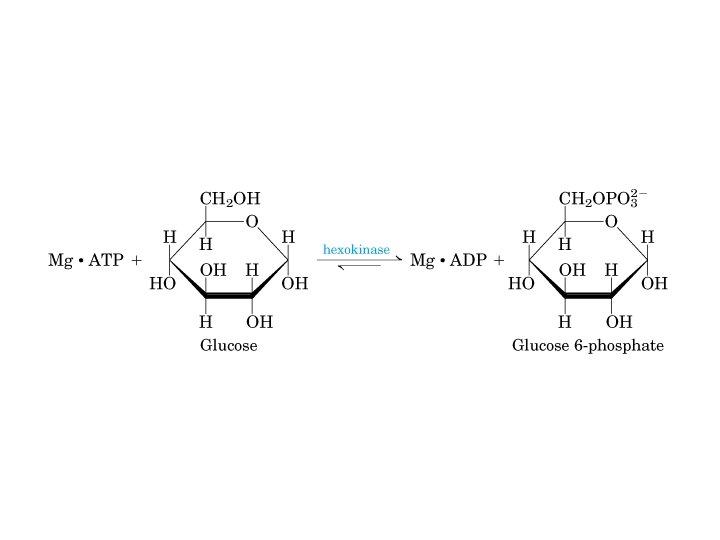
Hexoquinase + D-glicose
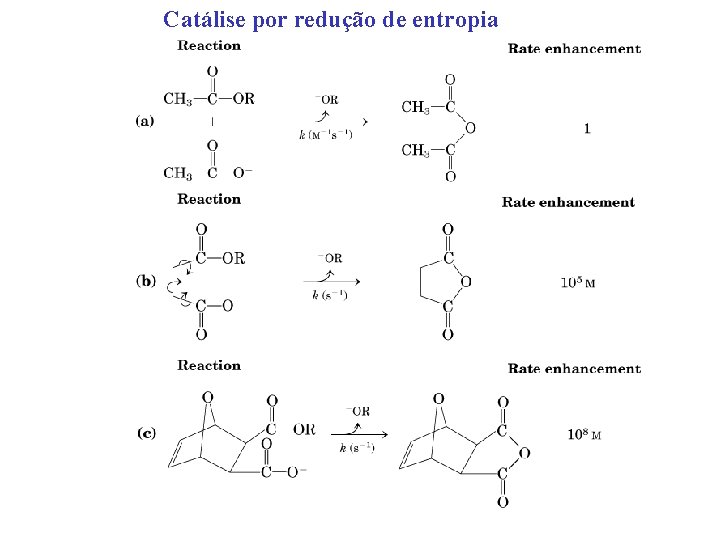
Catálise por redução de entropia
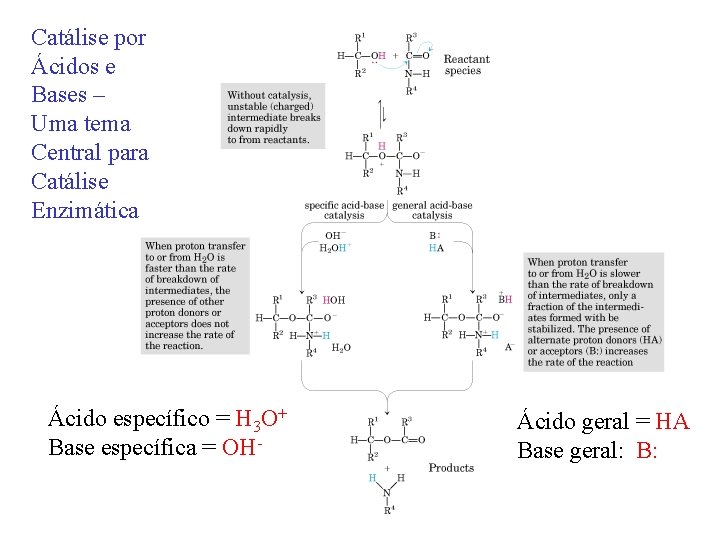
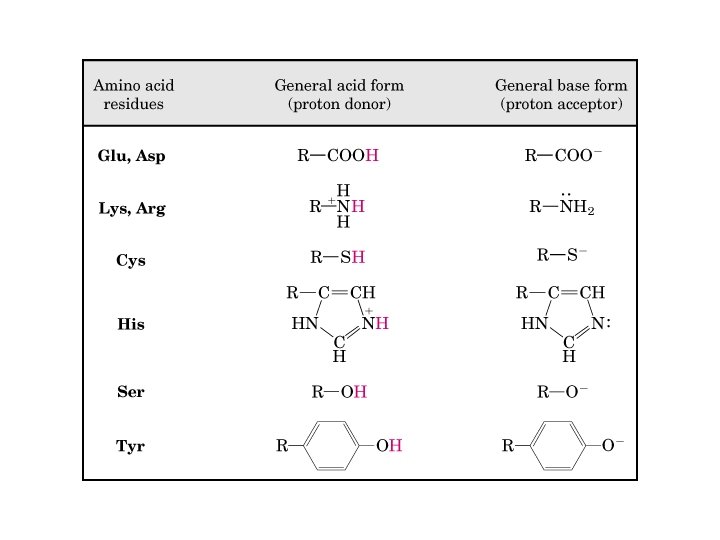
Catálise por Ácidos e Bases – Uma tema Central para Catálise Enzimática Ácido específico = H 3 O+ Base específica = OH- Ácido geral = HA Base geral: B:
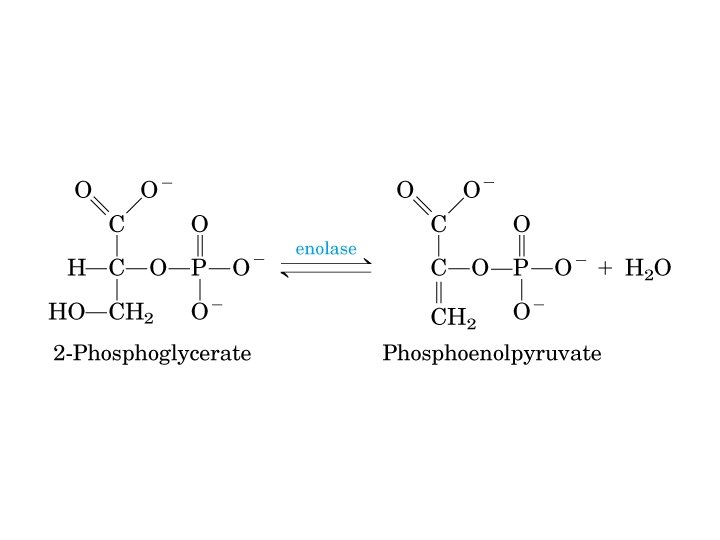
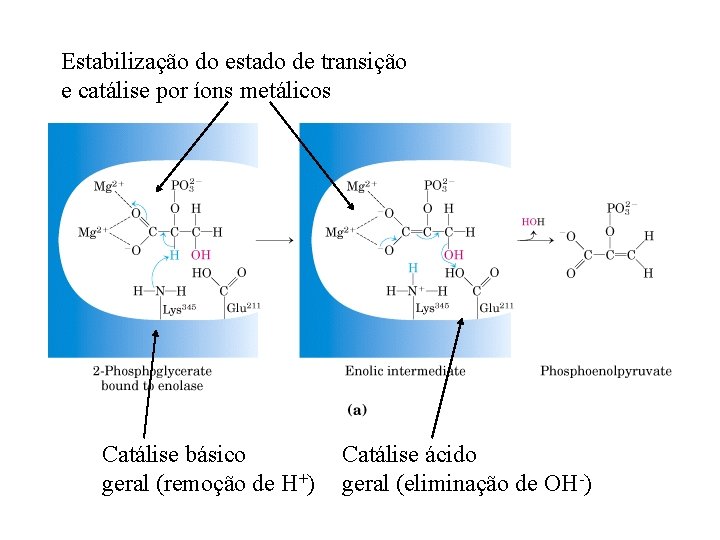
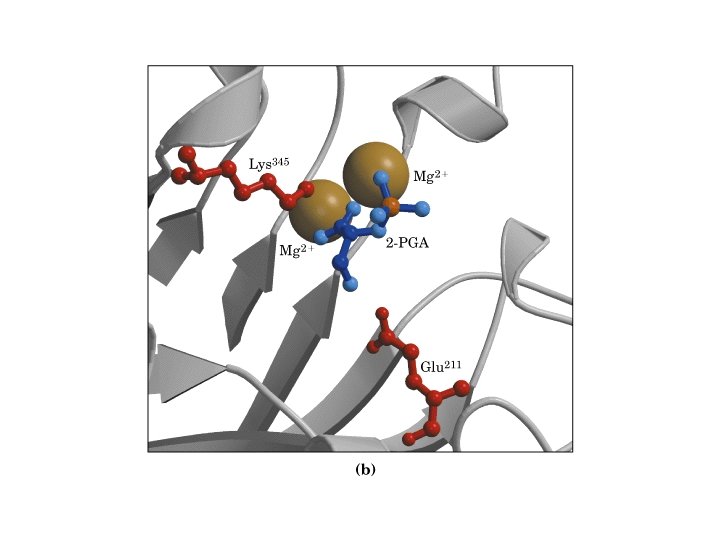
Estabilização do estado de transição e catálise por íons metálicos Catálise básico geral (remoção de H+) Catálise ácido geral (eliminação de OH-)
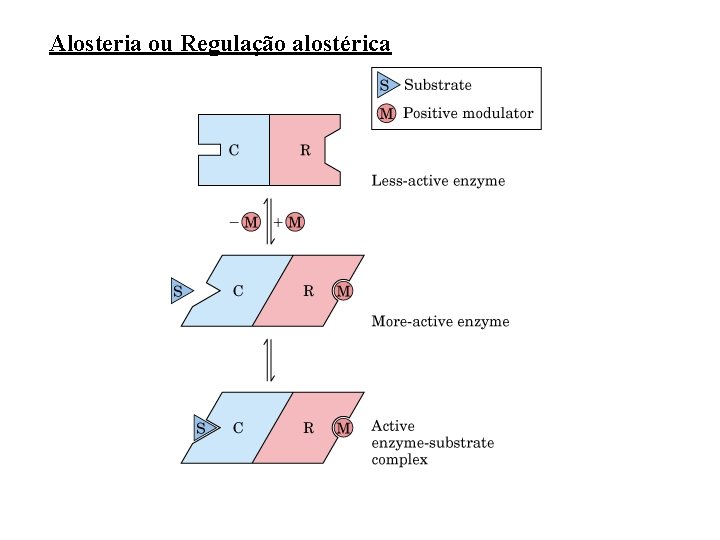
Alosteria ou Regulação alostérica
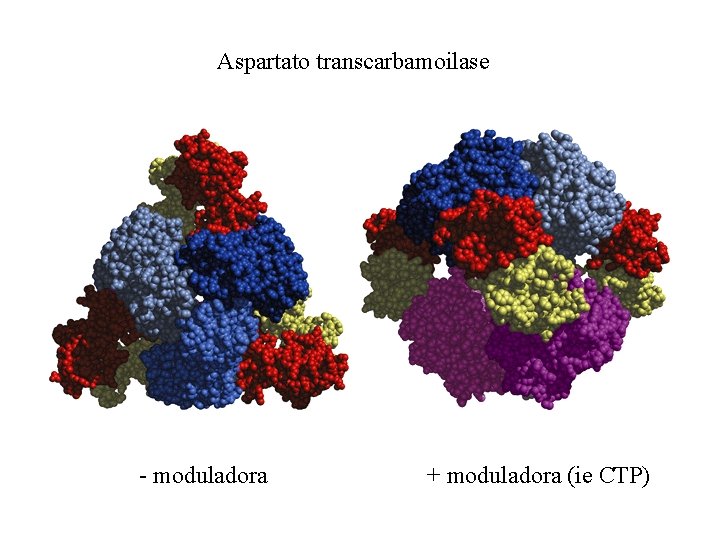
Aspartato transcarbamoilase - moduladora + moduladora (ie CTP)
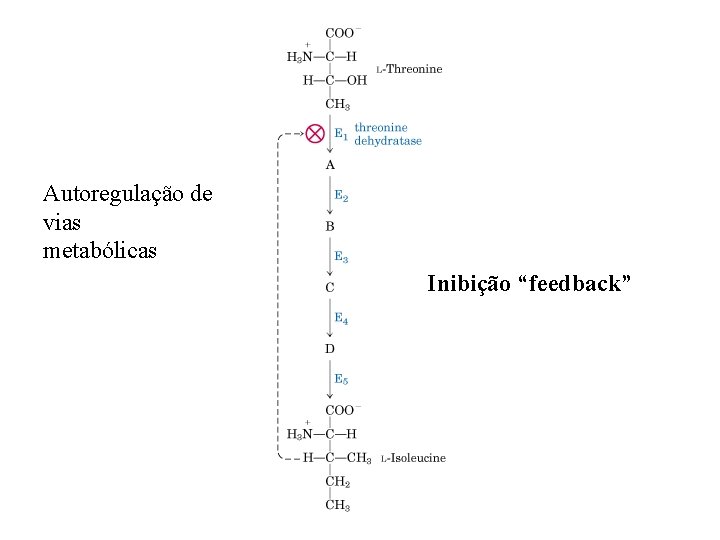
Autoregulação de vias metabólicas Inibição “feedback”
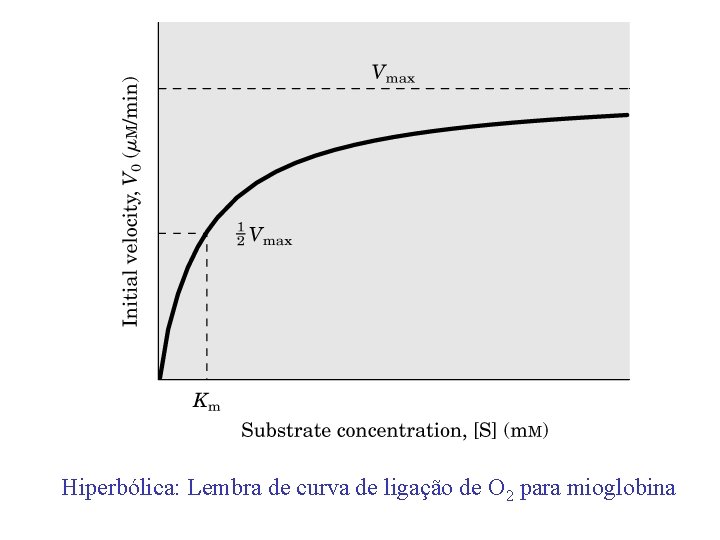
Hiperbólica: Lembra de curva de ligação de O 2 para mioglobina
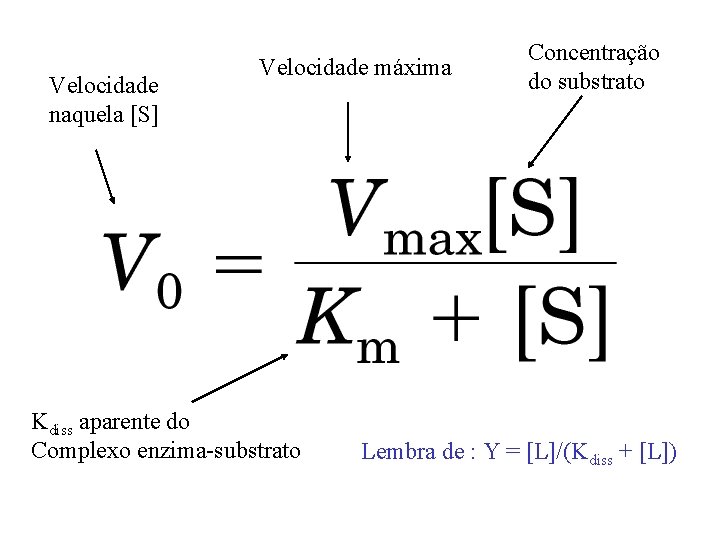
Velocidade naquela [S] Velocidade máxima Kdiss aparente do Complexo enzima-substrato Concentração do substrato Lembra de : Y = [L]/(Kdiss + [L])
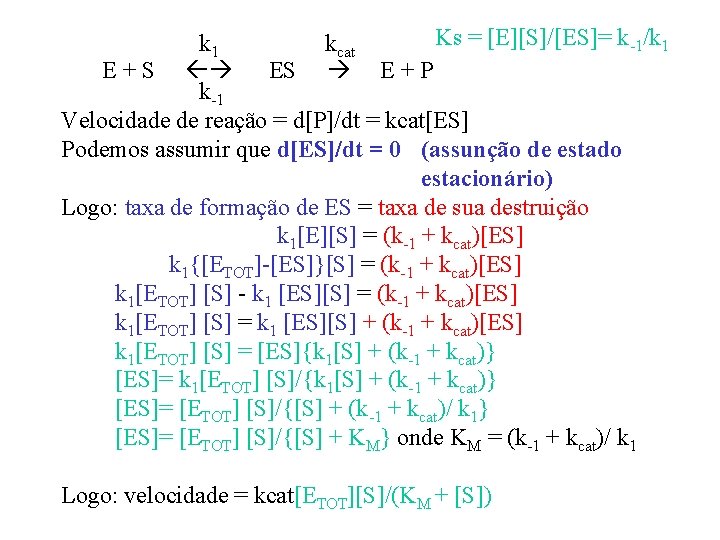
Ks = [E][S]/[ES]= k-1/k 1 kcat E + S E + P k-1 Velocidade de reação = d[P]/dt = kcat[ES] Podemos assumir que d[ES]/dt = 0 (assunção de estado estacionário) Logo: taxa de formação de ES = taxa de sua destruição k 1[E][S] = (k-1 + kcat)[ES] k 1{[ETOT]-[ES]}[S] = (k-1 + kcat)[ES] k 1[ETOT] [S] - k 1 [ES][S] = (k-1 + kcat)[ES] k 1[ETOT] [S] = k 1 [ES][S] + (k-1 + kcat)[ES] k 1[ETOT] [S] = [ES]{k 1[S] + (k-1 + kcat)} [ES]= k 1[ETOT] [S]/{k 1[S] + (k-1 + kcat)} [ES]= [ETOT] [S]/{[S] + (k-1 + kcat)/ k 1} [ES]= [ETOT] [S]/{[S] + KM} onde KM = (k-1 + kcat)/ k 1 Logo: velocidade = kcat[ETOT][S]/(KM + [S])
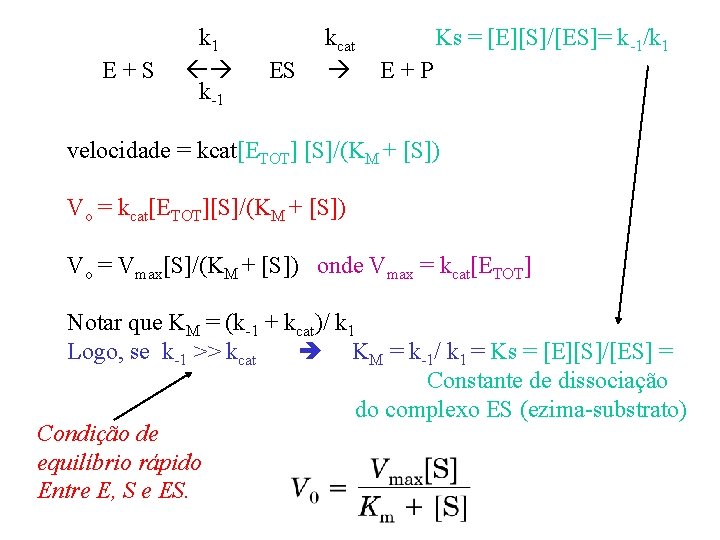
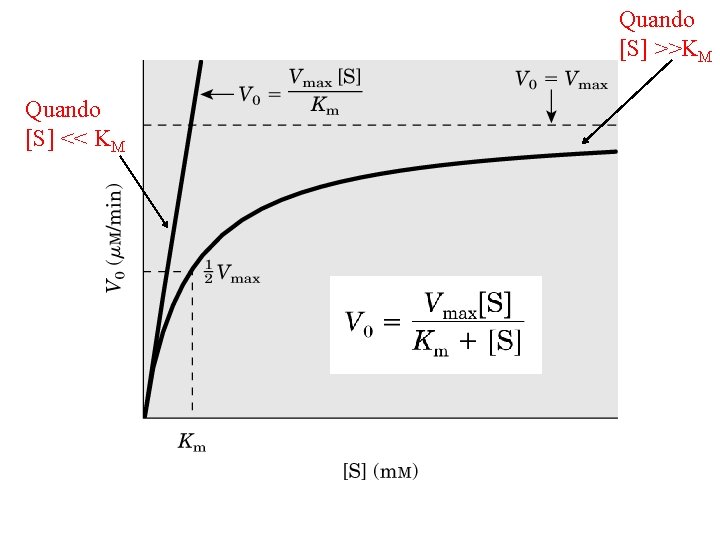
E+S k 1 k-1 ES kcat Ks = [E][S]/[ES]= k-1/k 1 E+P velocidade = kcat[ETOT] [S]/(KM + [S]) Vo = kcat[ETOT][S]/(KM + [S]) Vo = Vmax[S]/(KM + [S]) onde Vmax = kcat[ETOT] Notar que KM = (k-1 + kcat)/ k 1 Logo, se k-1 >> kcat KM = k-1/ k 1 = Ks = [E][S]/[ES] = Constante de dissociação do complexo ES (ezima-substrato) Condição de equilíbrio rápido Entre E, S e ES.
Quando [S] >>KM Quando [S] << KM
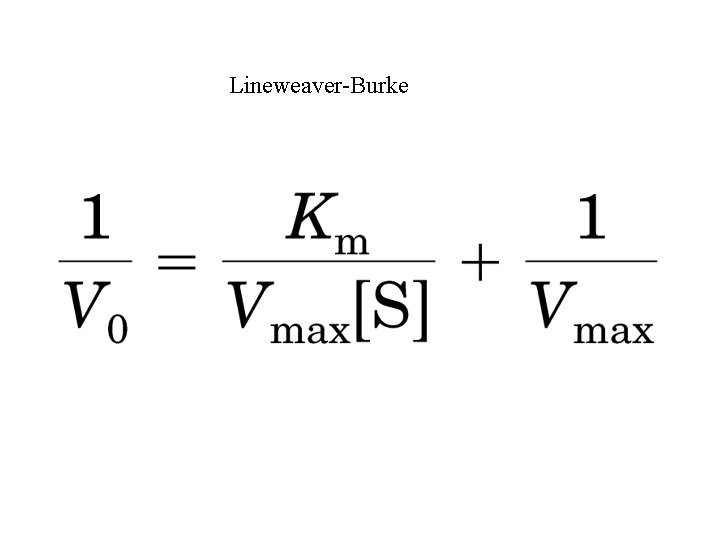
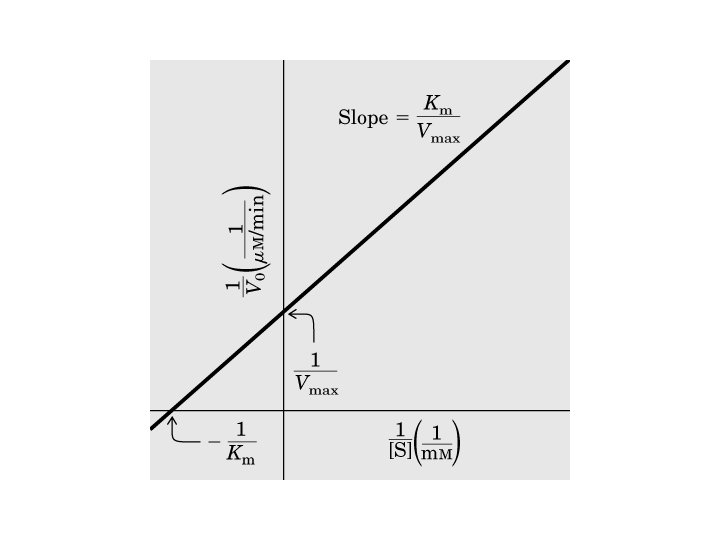
Lineweaver-Burke
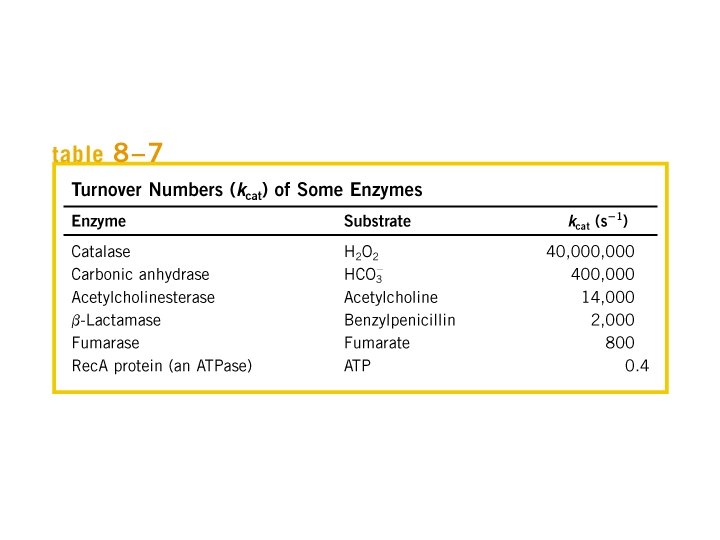
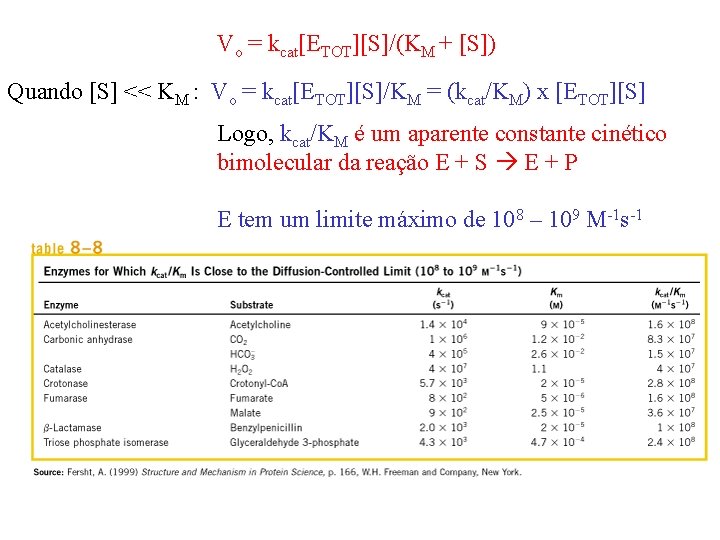
Vo = kcat[ETOT][S]/(KM + [S]) Quando [S] << KM : Vo = kcat[ETOT][S]/KM = (kcat/KM) x [ETOT][S] Logo, kcat/KM é um aparente constante cinético bimolecular da reação E + S E + P E tem um limite máximo de 108 – 109 M-1 s-1
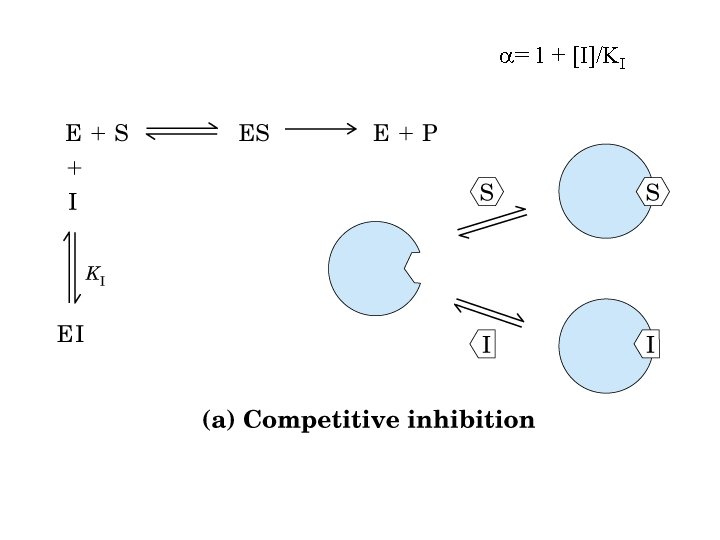
a= 1 + [I]/KI
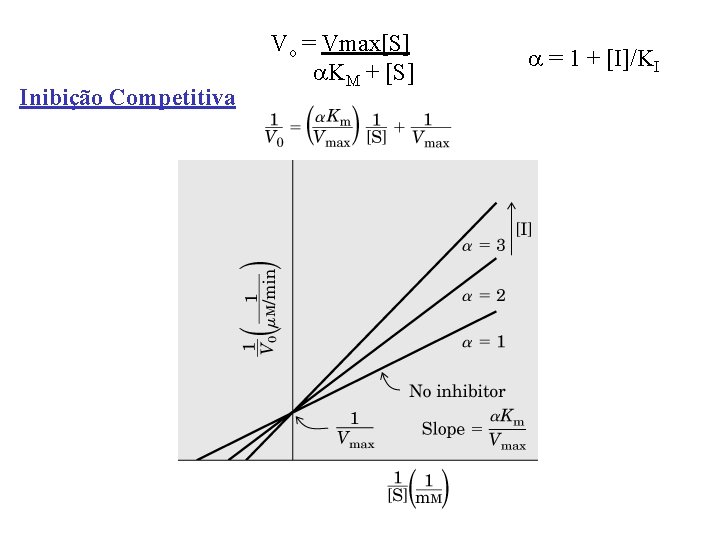
Inibição Competitiva Vo = Vmax[S] a. KM + [S] a = 1 + [I]/KI
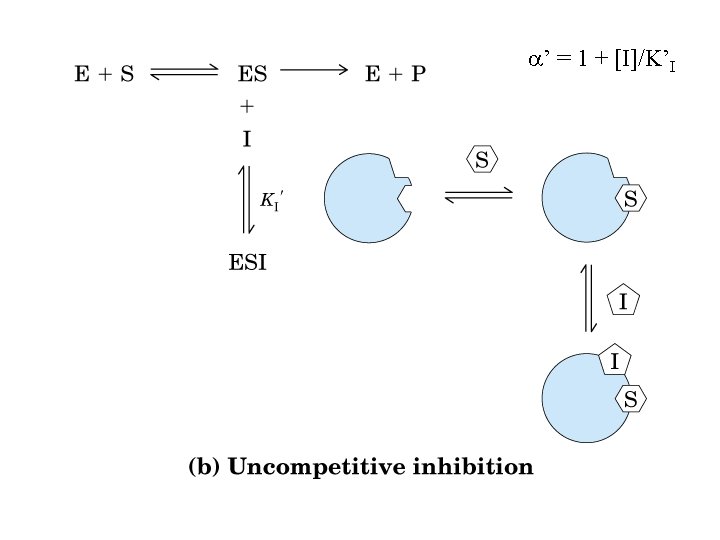
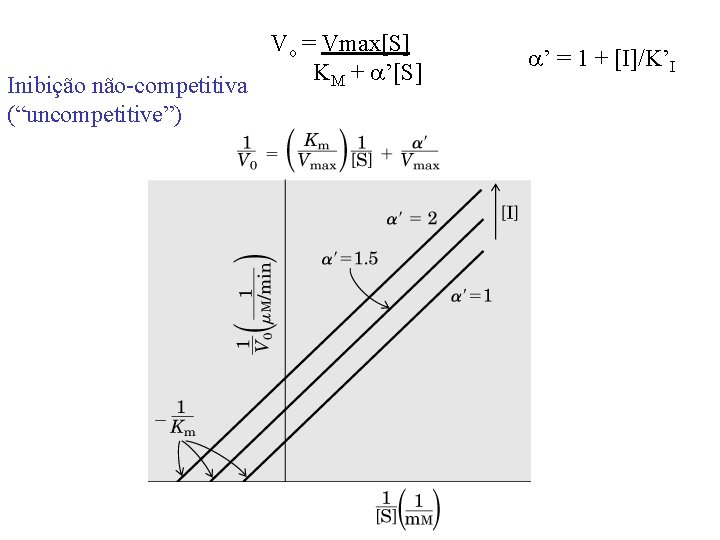
Inibição não-competitiva (“uncompetitive”) Vo = Vmax[S] KM + a’[S] a’ = 1 + [I]/K’I
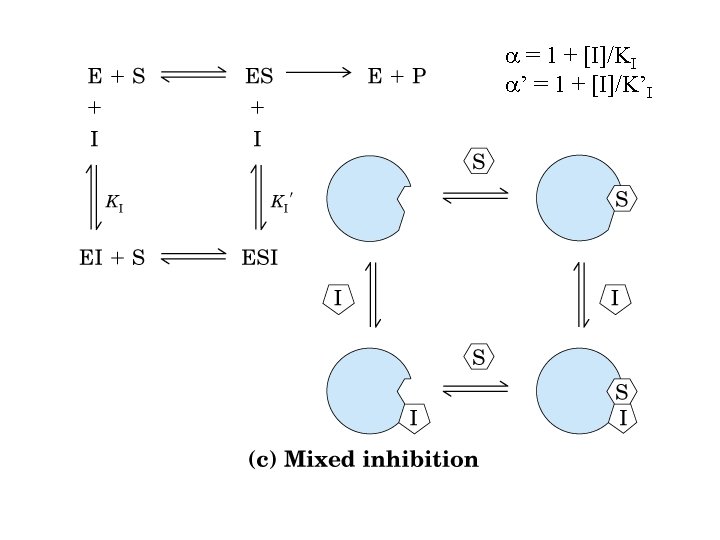
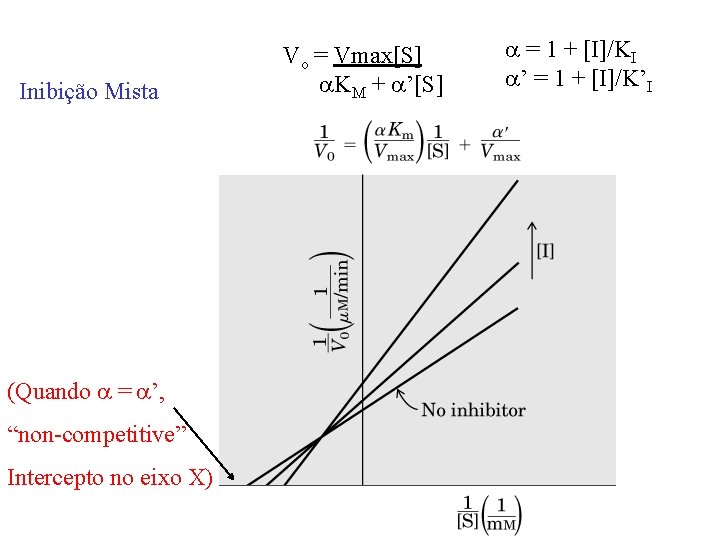
Inibição Mista (Quando a = a’, “non-competitive” Intercepto no eixo X) Vo = Vmax[S] a. KM + a’[S] a = 1 + [I]/KI a’ = 1 + [I]/K’I
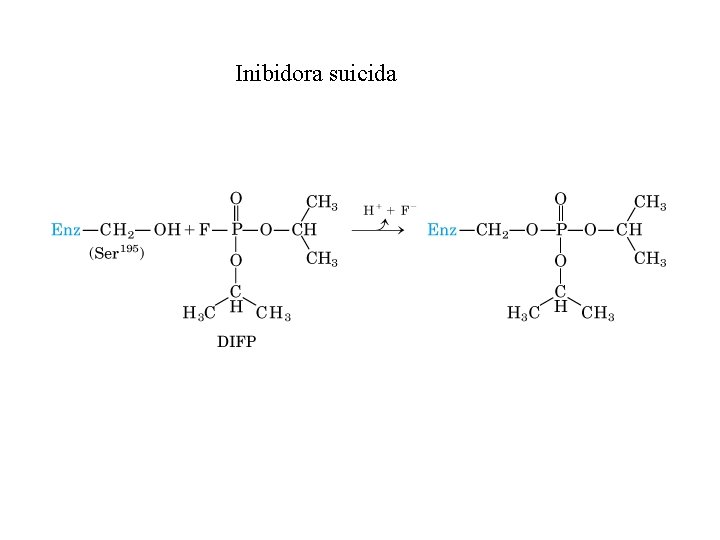
Inibidora suicida
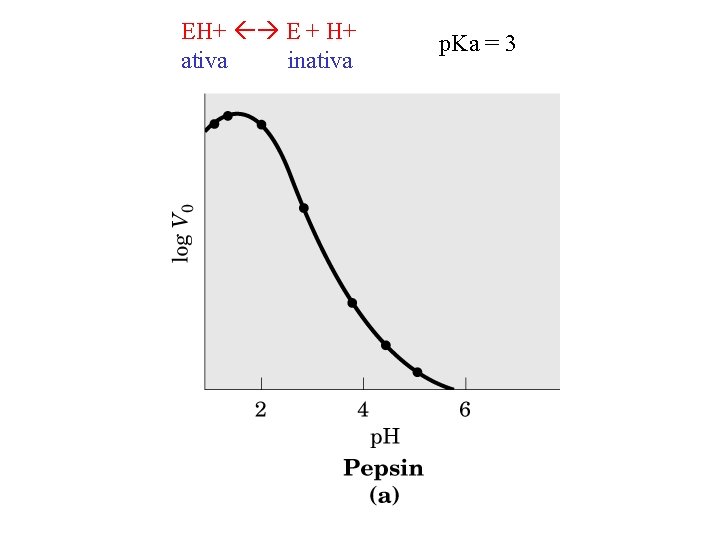
EH+ E + H+ ativa inativa p. Ka = 3
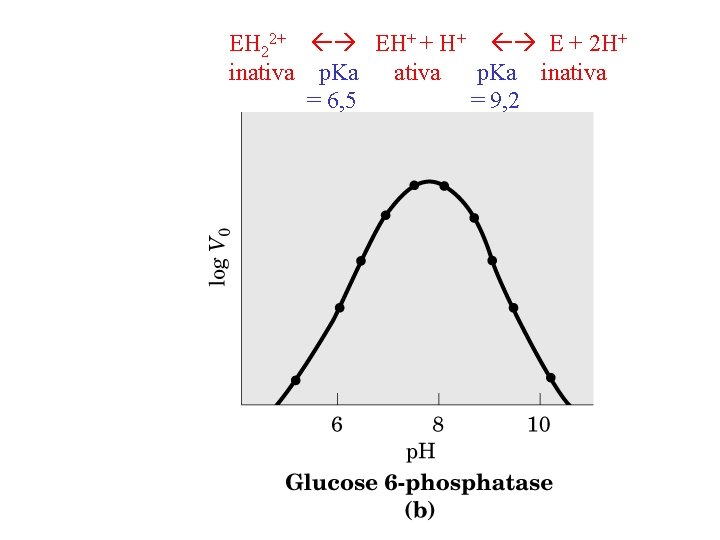
EH 22+ EH+ + H+ E + 2 H+ inativa p. Ka inativa = 6, 5 = 9, 2
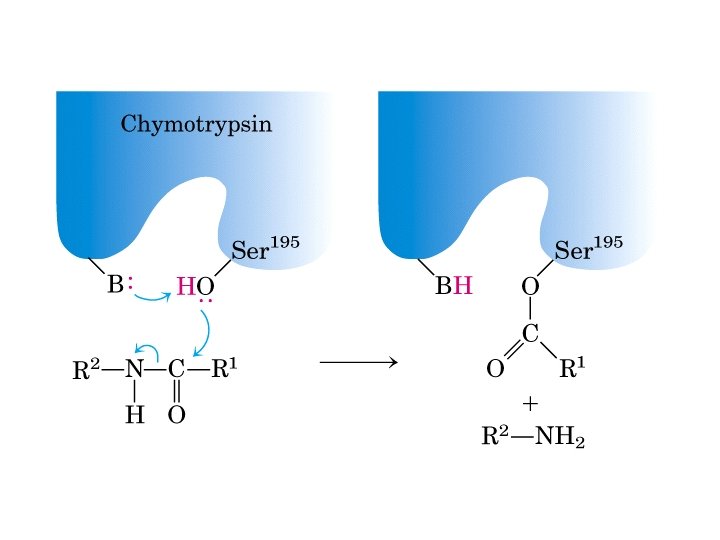
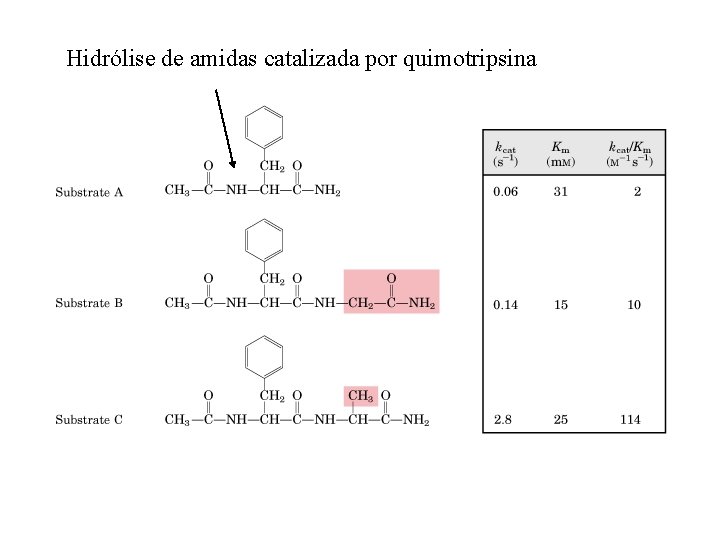
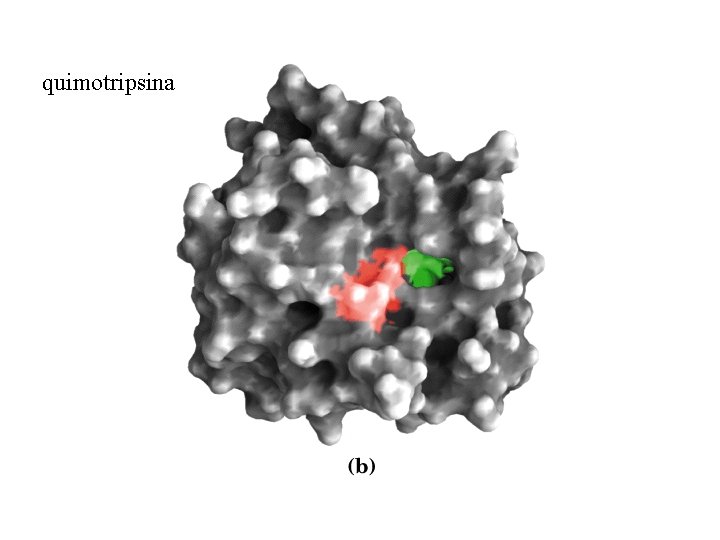
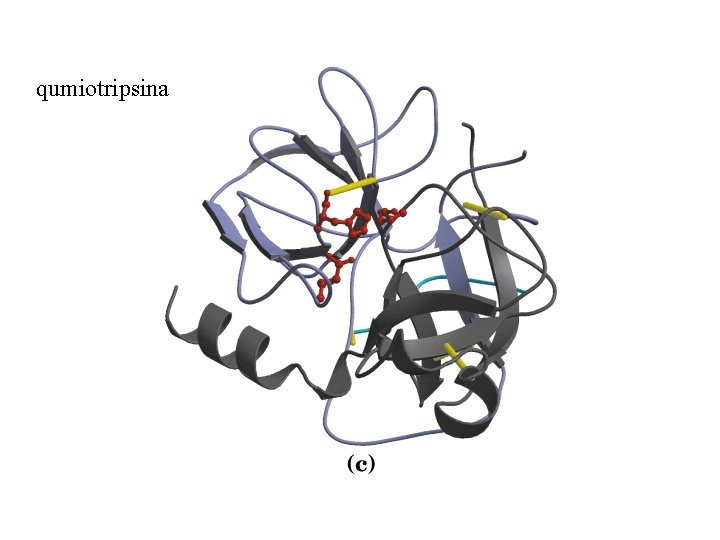
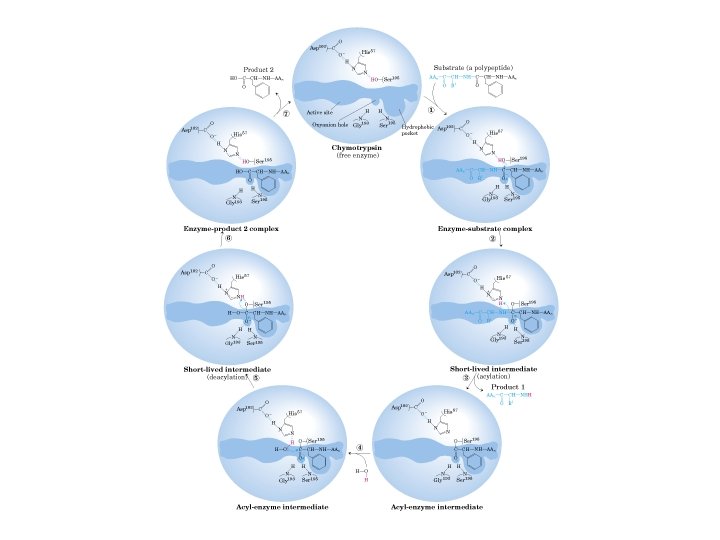
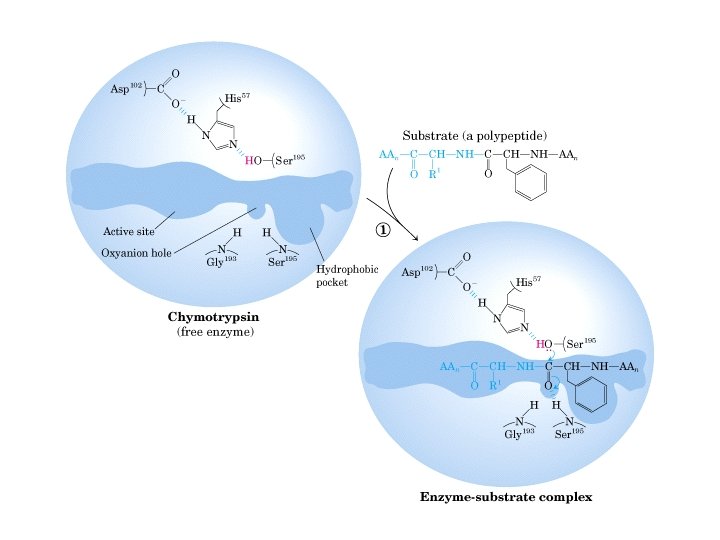
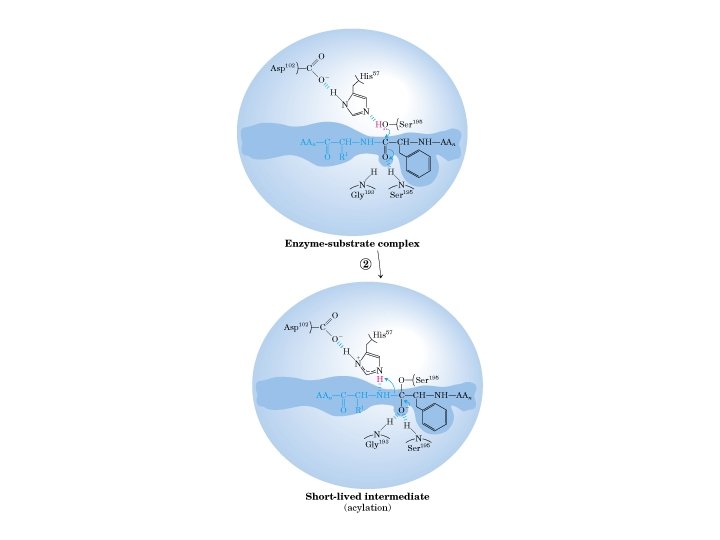
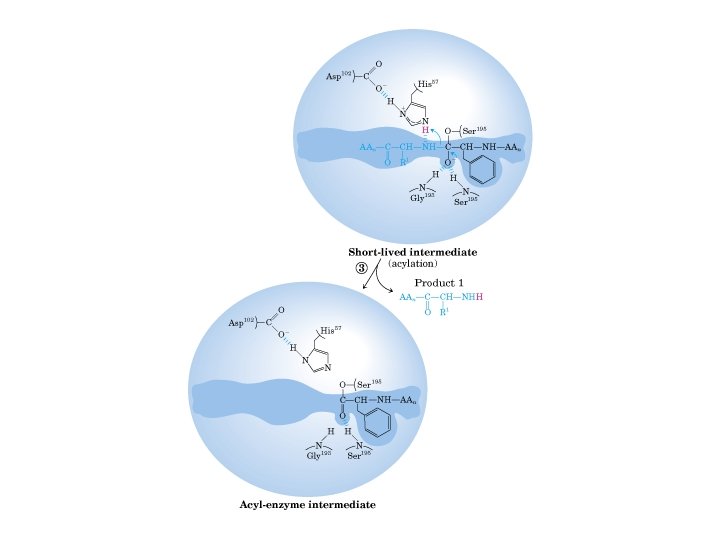
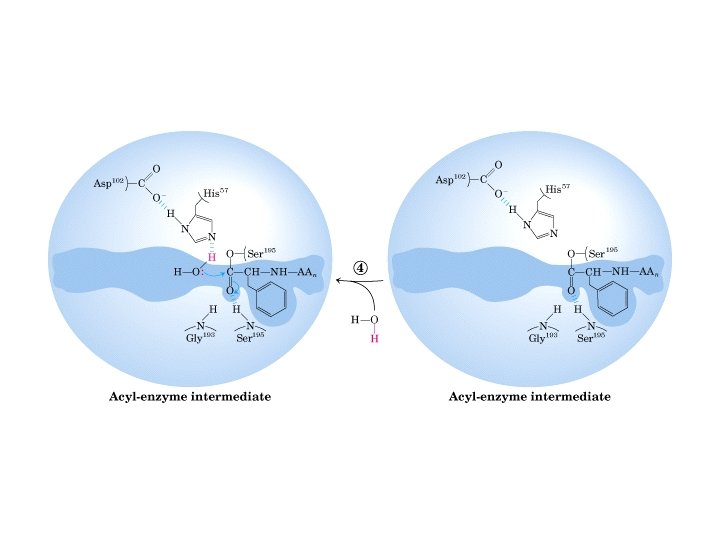
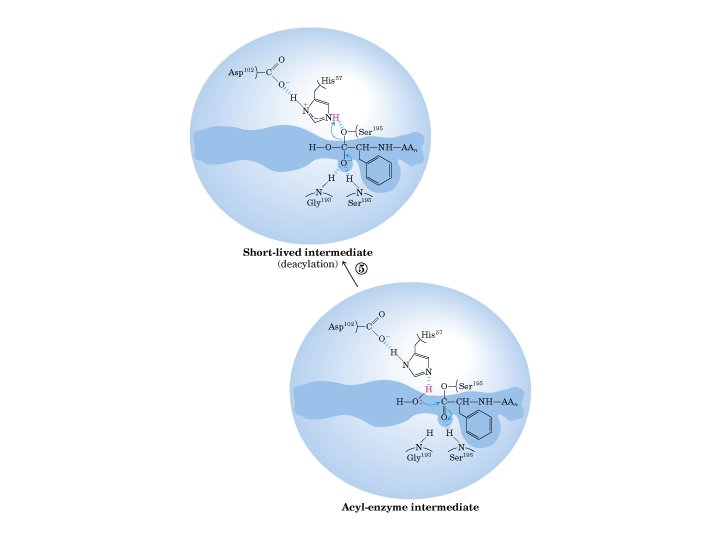
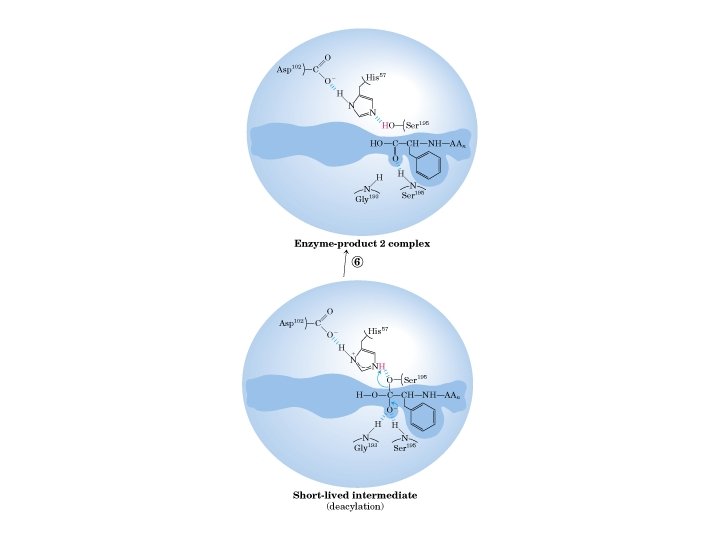
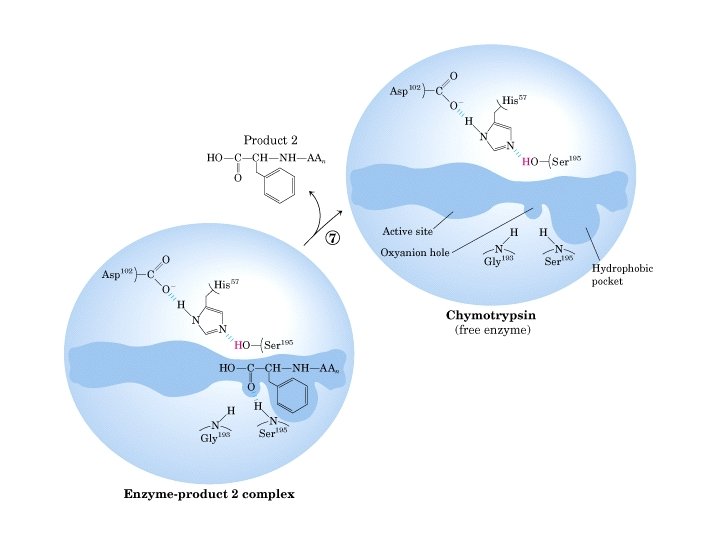
Hidrólise de amidas catalizada por quimotripsina
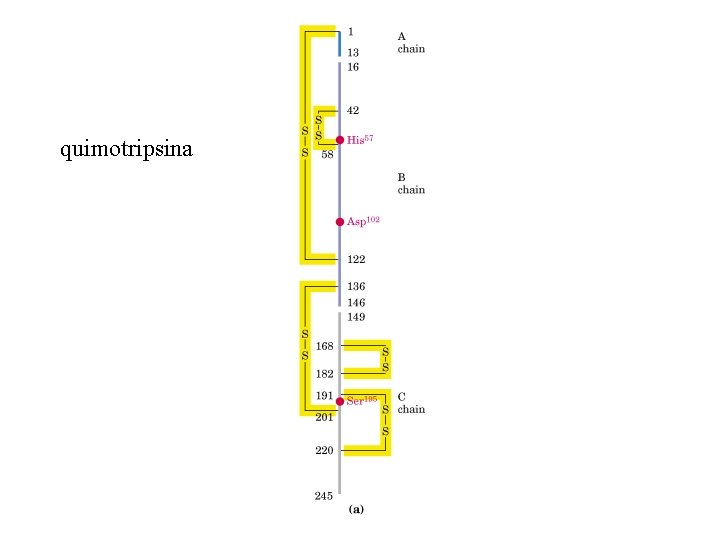
quimotripsina
quimotripsina
qumiotripsina
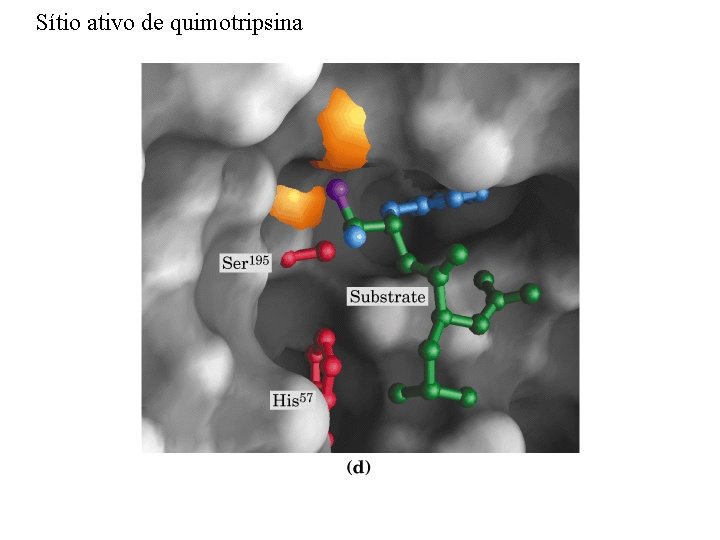
Sítio ativo de quimotripsina
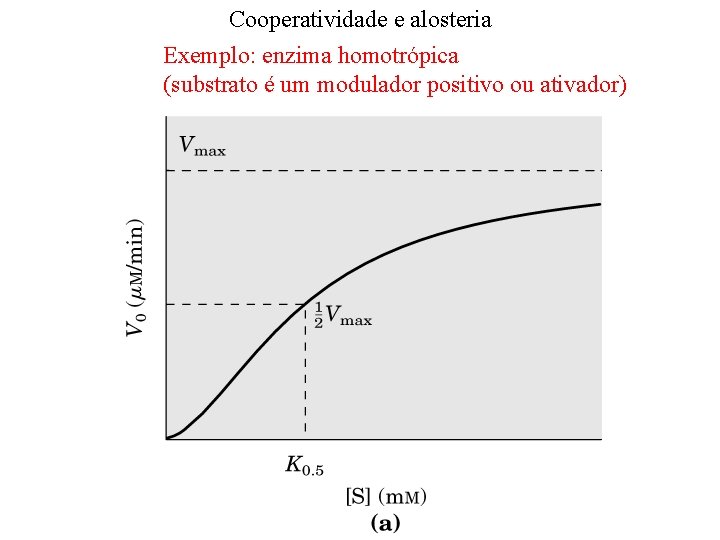
Cooperatividade e alosteria Exemplo: enzima homotrópica (substrato é um modulador positivo ou ativador)
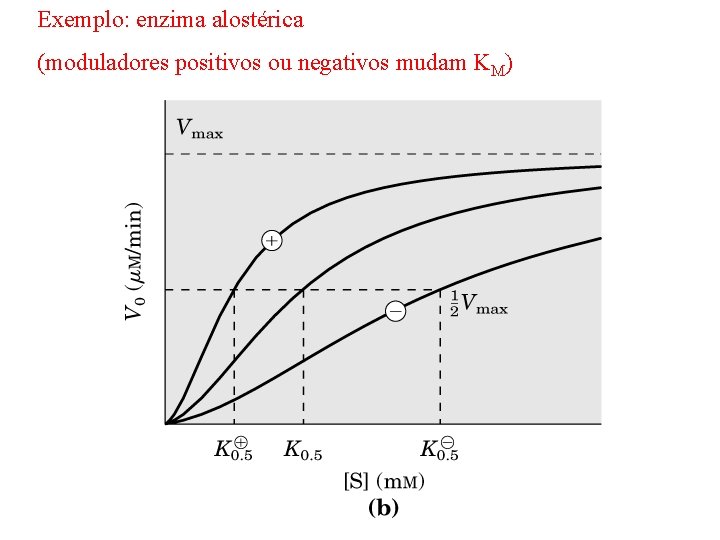
Exemplo: enzima alostérica (moduladores positivos ou negativos mudam KM)
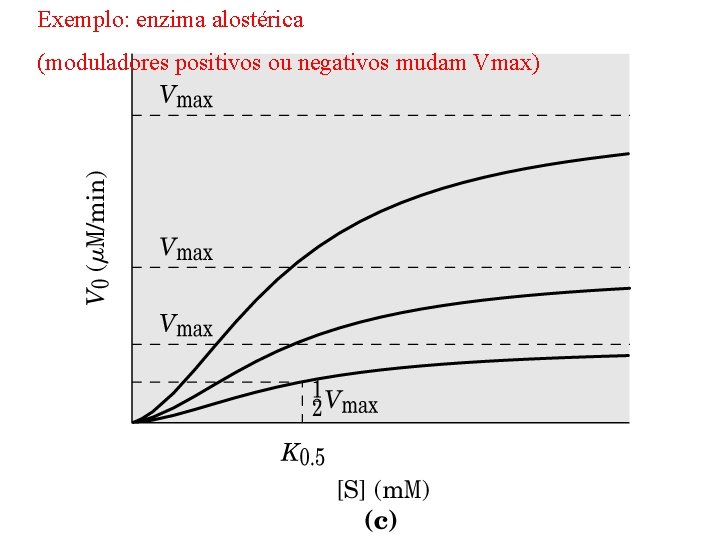
Exemplo: enzima alostérica (moduladores positivos ou negativos mudam Vmax)
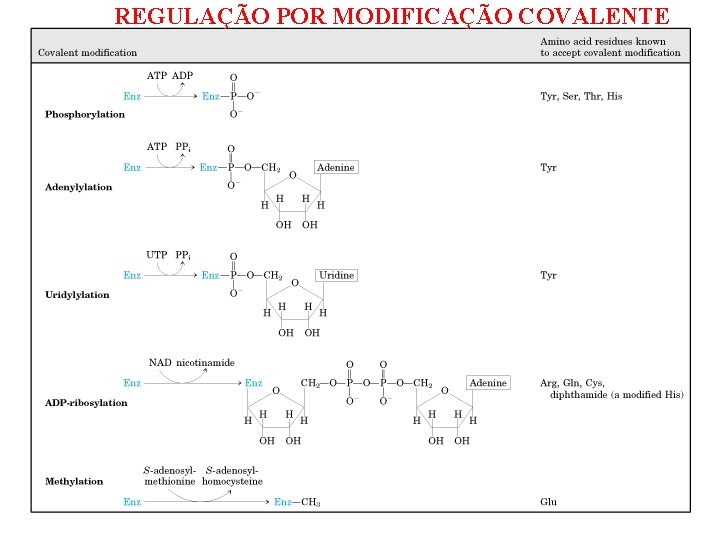
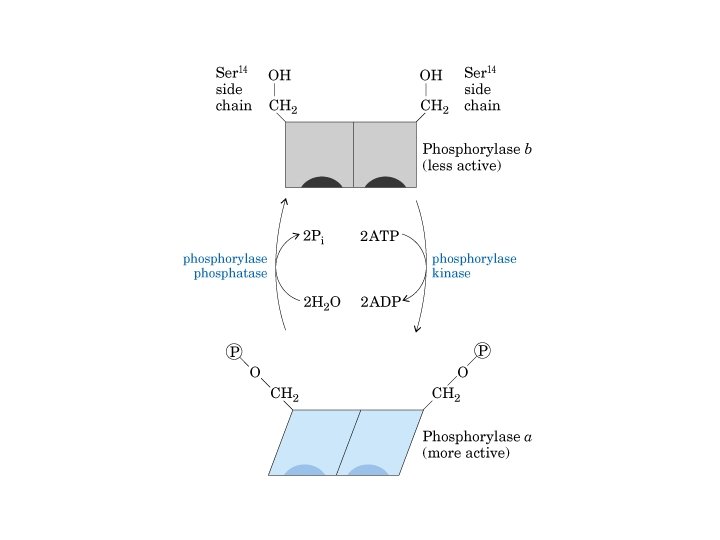
REGULAÇÃO POR MODIFICAÇÃO COVALENTE