
CHAINE RESPIRATOIRE ET PHOSPHORYLATION OXYDATIVE PLAN IIntroduction II
- Slides: 31
CHAINE RESPIRATOIRE ET PHOSPHORYLATION OXYDATIVE
PLAN I/Introduction II/ Vue générale de la chaine de transport mitochondriale 1/ Origine des H 2 et O 2 nécessaires à la chaine 2/ Localisation des coenzymes réduits 3/ Eléments de la chaine d’oxydoréduction mitochondriale
PLAN III/ Les quatre complexe transporteurs de GREEN IV/ Bilan énergétique de la CRM V/ Complexe V VI/ Couplage entre la chaine de transport des é et l’ATP synthase: théorie chimiosmotique VII/ Régulation de la CRM
INTRODUCTION - L’énergie emmagasinée dans les glucides, les lipides et les protéines doit être convertie en ATP (énergie rapidement utilisable) qui est produit dans les mitochondries à partir de la CRM et la phosphorylation oxydative
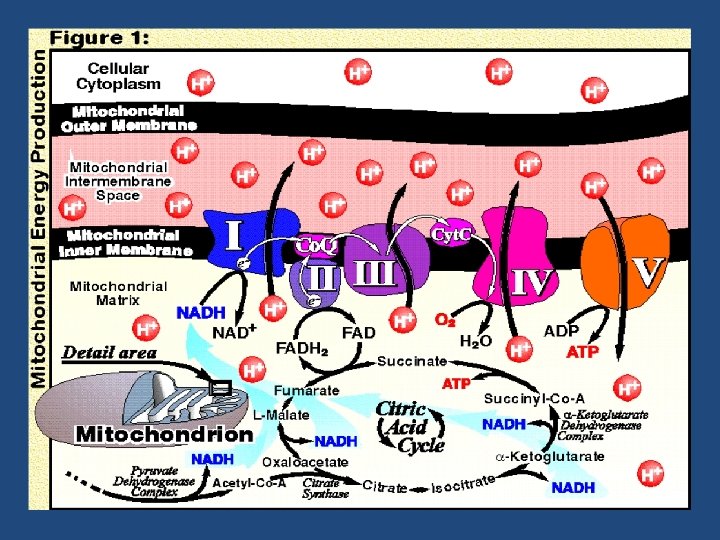
VUE GENERALE SUR LA CRM - Les é provenant de différentes réactions intracellulaires sont pris en charge - Parcourent une suite d’étapes redox en direction de l’O 2 pour le réduire finalement en H 2 O - Abandonnent leur énergie pour constituer un gradient de protons à travers la membrane interne de la mitochondrie - Ce gradient permet la production d’ATP à partir d’ADP et de Pi
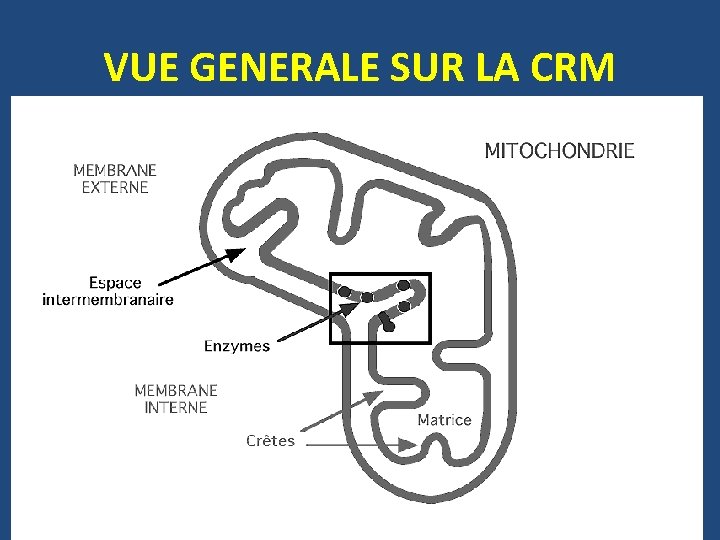
VUE GENERALE SUR LA CRM
VUE GENERALE SUR LA CRM - Localisée dans la membrane interne des mitochondries où se trouvent les transporteurs d’é - Produit de l’ATP et de l’eau grâce à un processus constitué de 2 sous ensembles distincts: Ø La respiration cellulaire Ø La phosphorylation de l’ADP en ATP
VUE GENERALE SUR LA CRM 1/ Origine des H 2 et. O 2 nécessaires à la chaine: - H 2: provient des NADH, H+ et FADH 2 (substrats de la CRM) - O 2 moléculaire: provient de la respiration, la circulation sanguine et la diffusion dans les tissus 2/ Localisation des coenzymes réduits: - FADH 2: mitochondries - NADH, H+: mitochondries et cytosol (nécessité de navettes pour traverser la membrane mitochondriale)
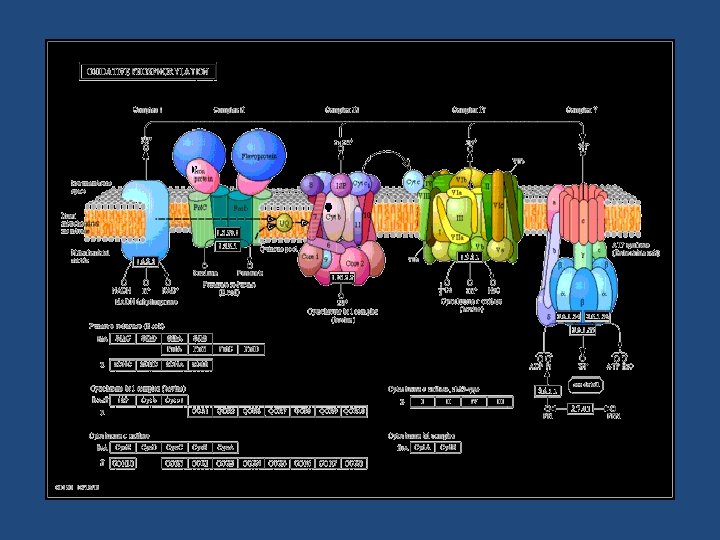
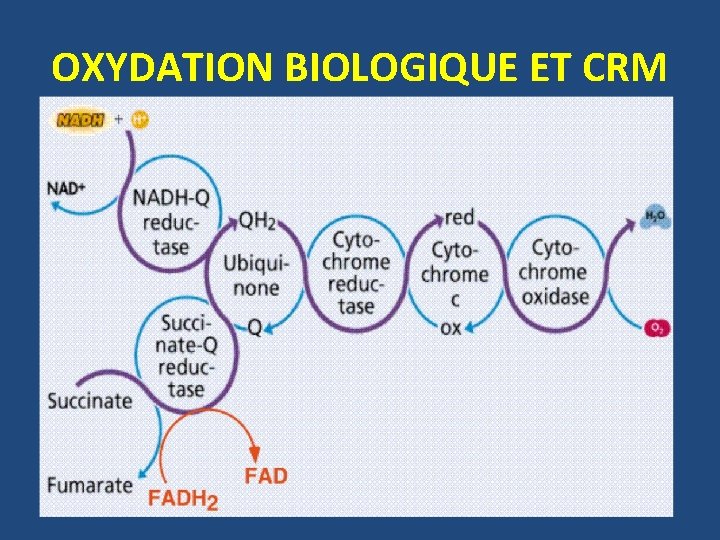
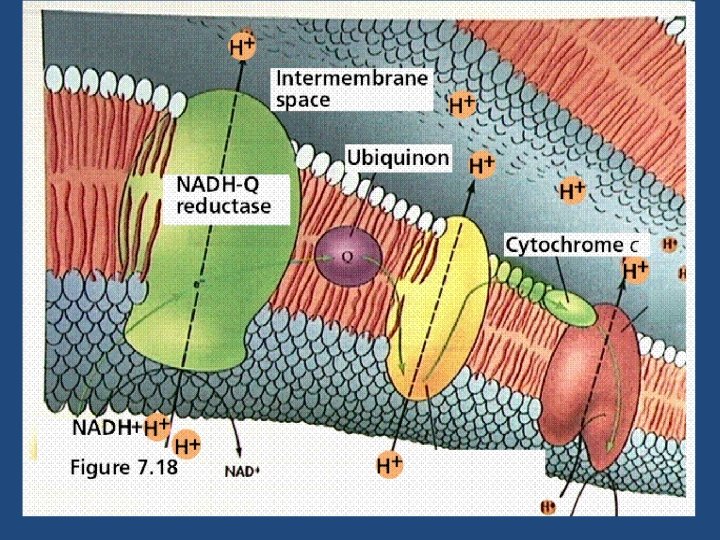
VUE GENERALE SUR LA CRM 3/ Eléments de la chaine respiratoire: - Le transport des é est progressif et utilise une série de systèmes redox au sein de complexes protéiques fixes et d’éléments mobiles § Quatre complexes de GREEN ( de I à IV): fixes, multi protéiques et transmembranaires § Deux transporteurs mobiles (ubiquinone et cytochrome C) qui assurent la continuité de la chaine en reliant les éléments fixes.
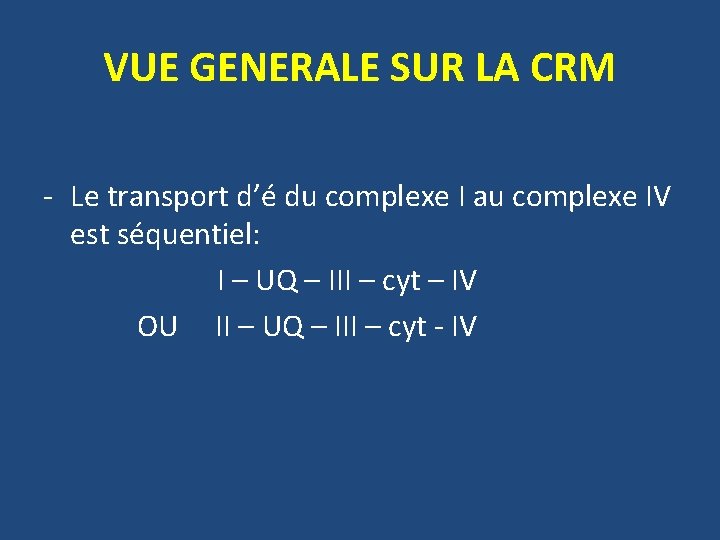
VUE GENERALE SUR LA CRM - Le transport d’é du complexe I au complexe IV est séquentiel: I – UQ – III – cyt – IV OU II – UQ – III – cyt - IV
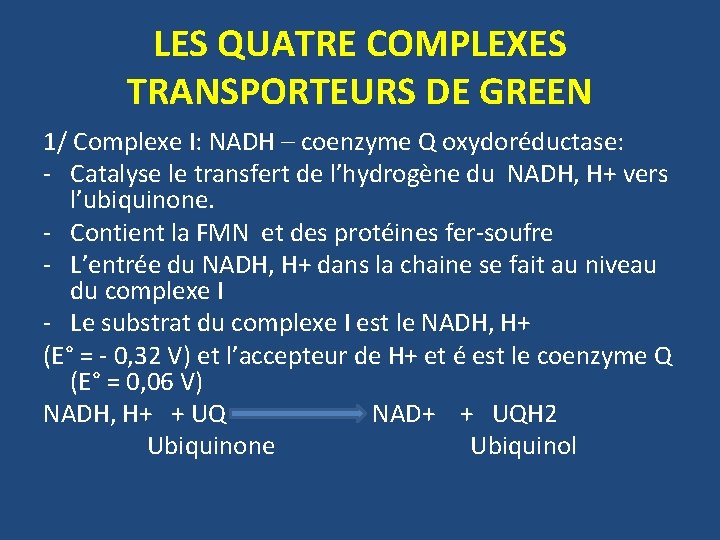
LES QUATRE COMPLEXES TRANSPORTEURS DE GREEN 1/ Complexe I: NADH – coenzyme Q oxydoréductase: - Catalyse le transfert de l’hydrogène du NADH, H+ vers l’ubiquinone. - Contient la FMN et des protéines fer-soufre - L’entrée du NADH, H+ dans la chaine se fait au niveau du complexe I - Le substrat du complexe I est le NADH, H+ (E° = - 0, 32 V) et l’accepteur de H+ et é est le coenzyme Q (E° = 0, 06 V) NADH, H+ + UQ NAD+ + UQH 2 Ubiquinone Ubiquinol
LES QUATRE COMPLEXES TRANSPORTEURS DE GREEN - L’ubiquinol formé est très mobile dans la membrane et migre vers le complexe III - Cette réaction d’oxydoréduction est exergonique et libère suffisamment d’énergie pour déplacer des protons de la matrice vers l’espace intermembranaire: le complexe I est donc un site de pompage de H+
LES QUATRE COMPLEXES TRANSPORTEURS DE GREEN 2/ Complexe II: succinate – coenzyme Q oxydoréductase - Contient des protéines fer-soufre et du cytochrome b - L’entrée du FADH 2 se fait au niveau du complexe II - Substrats du complexe II: FADH 2 et succinate, l’accepteur de H+ et é est le coenzyme Q - Le complexe II: § Oxyde le succinate en fumarate et réoxyde le FADH 2 (la réaction a un E° = 0, 03 V) § Réduit le Co Q en QH 2 (E° = 0, 06 V) - L’ubiquinol formé migre vers le complexe III
LES QUATRE COMPLEXES TRANSPORTEURS DE GREEN - La réaction ne libère pas suffisamment d’énergie pour qu’il y ait un pompage de H+ - En conséquence moins d’ATP est formé par l’oxydation du FADH 2 que par le NADH, H+ - Deux autres enzymes à FAD constituent des variantes du complexe II: v La glycérol 3 P déshydrogénase v L’acyl Co. A déshydrogénase (β oxydation)
LES QUATRE COMPLEXES TRANSPORTEURS DE GREEN 3/ Complexe III: coenzyme Q – cytochrome C oxydoréductase - Un cytochrome est une protéine héminique (Fer), assure le transport des e- entre les complexes III et IV - Le rôle du complexe III est le transfert des e- de QH 2 au cytochrome C et en même temps pomper les H+ à travers la membrane mitochondriale interne.
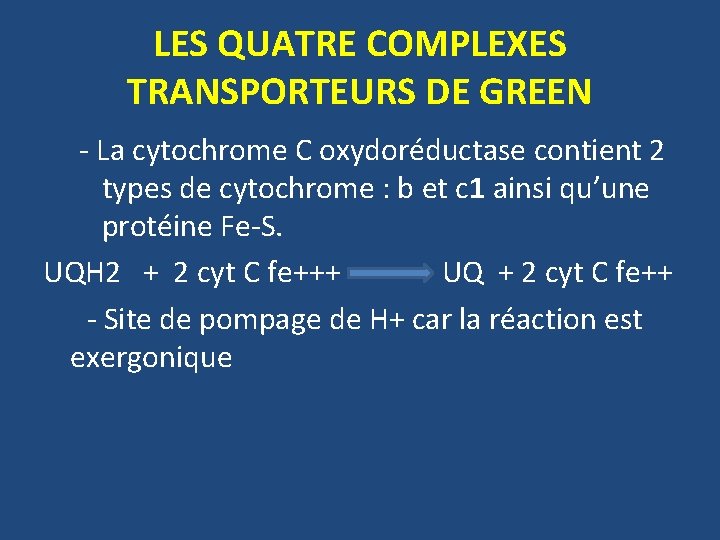
LES QUATRE COMPLEXES TRANSPORTEURS DE GREEN - La cytochrome C oxydoréductase contient 2 types de cytochrome : b et c 1 ainsi qu’une protéine Fe-S. UQH 2 + 2 cyt C fe+++ UQ + 2 cyt C fe++ - Site de pompage de H+ car la réaction est exergonique
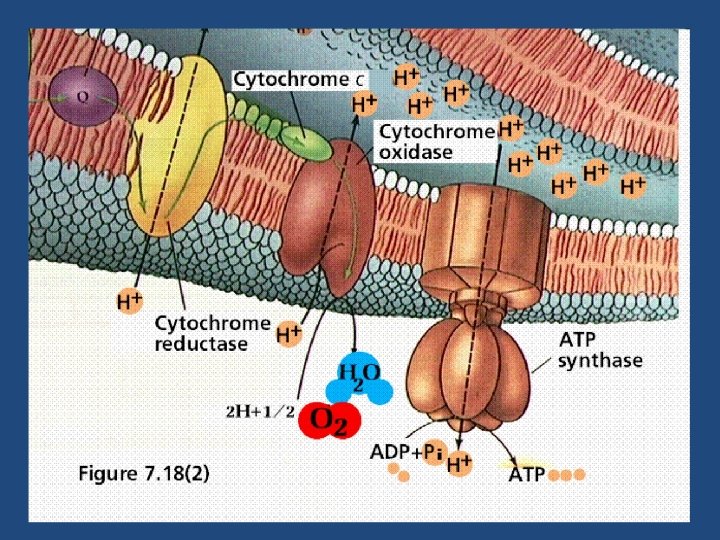
LES QUATRE COMPLEXES TRANSPORTEURS DE GREEN 4/ Complexe IV: cytochrome C oxydase - Dernière enzyme de la CRM - Contient deux noyaux hèmes a et a 3 , chacun d’entre eux étant associé à un atome de cuivre - Les é qui sont le substrat de l’enzyme sont apportés par le cytochrome C de l’espace intermembranaire et transférés par l’enzyme vers l’oxygène de la respiration qui diffuse des vaisseaux vers la matrice - Réaction exergonique: c’est donc un site de pompage de H+
OXYDATION BIOLOGIQUE ET CRM
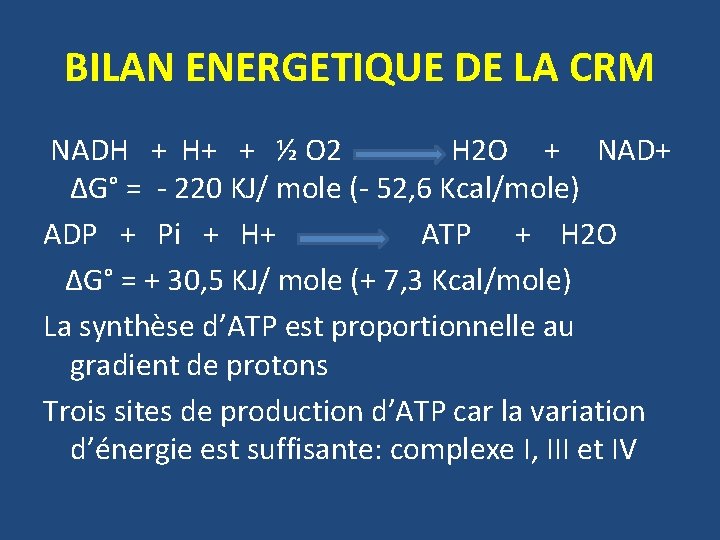
BILAN ENERGETIQUE DE LA CRM NADH + H+ + ½ O 2 H 2 O + NAD+ ΔG° = - 220 KJ/ mole (- 52, 6 Kcal/mole) ADP + Pi + H+ ATP + H 2 O ΔG° = + 30, 5 KJ/ mole (+ 7, 3 Kcal/mole) La synthèse d’ATP est proportionnelle au gradient de protons Trois sites de production d’ATP car la variation d’énergie est suffisante: complexe I, III et IV
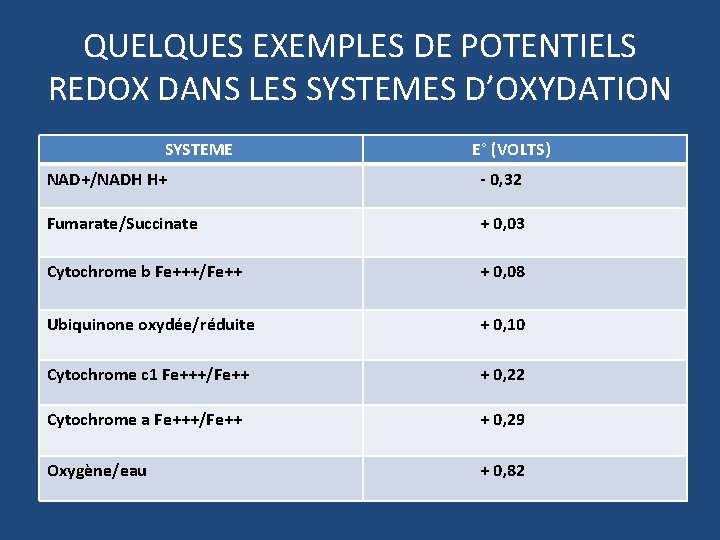
QUELQUES EXEMPLES DE POTENTIELS REDOX DANS LES SYSTEMES D’OXYDATION SYSTEME E° (VOLTS) NAD+/NADH H+ - 0, 32 Fumarate/Succinate + 0, 03 Cytochrome b Fe+++/Fe++ + 0, 08 Ubiquinone oxydée/réduite + 0, 10 Cytochrome c 1 Fe+++/Fe++ + 0, 22 Cytochrome a Fe+++/Fe++ + 0, 29 Oxygène/eau + 0, 82
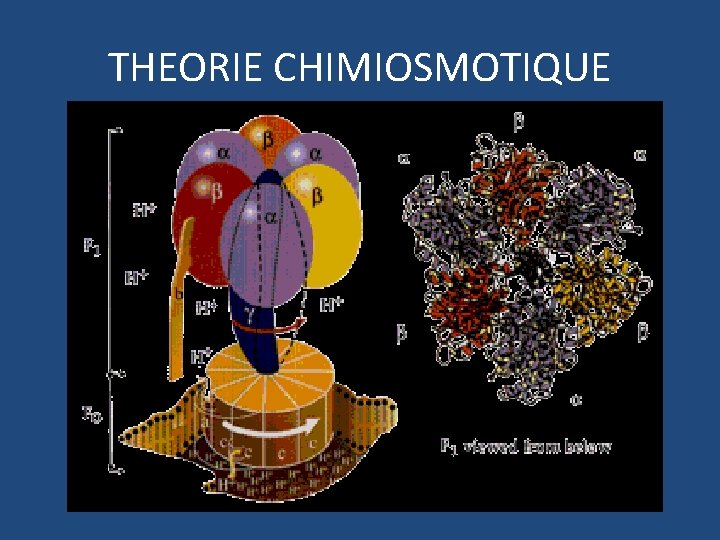
COMPLEXE V: ATP SYNTHASE - Constitué de 2 éléments: § S/U F 1 (corpuscule de GREEN): située du côté de la matrice et constituée de plusieurs S/U polypeptidiques différentes qui produisent l’ATP dans la mitochondrie § S/U F 0 transmembranaire: canal constitué de 4 chaines polypeptidiques différentes, à travers lequel les protons regagnent la matrice (canal protonique)
COMPLEXE V: ATP SYNTHASE - L’ATP synthase pompe les protons de l’espace intermembranaire vers la matrice - Parallèlement, elle récupère l’énergie que les autres enzymes de la CRM utilisent pour accumuler les protons dans l’espace intermembranaire. - Cette énergie est couplée à la phosphorylation de l’ADP par un Pi en présence de Mg++ - L’ATP translocase et la porine sont des protéines qui permettent au coenzyme ATP/ADP de traverser la membrane mitochondriale
THEORIE CHIMIOSMOTIQUE • La synthèse d’ATP dans la chaine respiratoire mitochondriale : - Ne se fait pas directement lors des étapes d’oxydation - Est liée au transport des H+ de la matrice vers l’espace intermembranaire • L’arrivée des H+ dans l’espace intermembranaire entraine : - Une baisse du p. H de l’espace intermembranaire / matrice - Une accumulation de charges + sur la face externe de la membrane et de charges - dans la matrice (différence de potentiel membranaire)
THEORIE CHIMIOSMOTIQUE • Le pompage des H+ dans l’espace intermembranaire entraine un retour dans la matrice - A travers le canal protonique F 0 du complexe V (car la membrane interne est imperméable aux H+) - Le flux de H+ fait alors tourner F 1 du complexe V: synthèse d’ATP
THEORIE CHIMIOSMOTIQUE
REGULATION DE LA CRM q. Le contrôle de la CRM dépend de la disponibilité de l’ADP - A l’état basal ATP>>> ADP - Si l’ADP augmente, la vitesse de la CRM augmente très rapidement et de façon très intense q Contrôle respiratoire: - Une inhibition du transfert d’é à l’O 2 bloque la synthèse d’ATP - Réciproquement, une inhibition de l’ATP synthase bloque le transfert des électrons
REGULATION DE LA CRM q Découplage: Normalement la chaine respiratoire et la phosphorylation oxydative sont associées. Mais le gradient de protons formé peut être dégradé sans que les protons traversent l’ATP synthase: il n’y aura pas d’ATP produit mais seulement de la chaleur