
Biosynteza kwasw nukleinowych i ich przemiany cz II
Biosynteza kwasów nukleinowych i ich przemiany (cz. II) Ø biosynteza nukleotydów purynowych, Ø biosynteza nukleotydów pirymidynowych, Ø biosynteza deoksynukleotydów, Ø biosynteza kwasów nukleinowych (DNA i RNA), Ø rozkład kwasów nukleinowych Uwaga – dostępna jest wersja scalona (cz. I + cz. II)

Biosynteza nukleotydów purynowych v Biosynteza kwasu adenilowego (nukleotydu adeninowego): Ø kwas inozynowy przy udziale GTP (nukleotyd – guanozynowy) i asparaginianu przechodzi w kwas adenilobursztynowy HOOC-CH 2 -CH-COOH O | | N O | | | H 2 H H OH OH | | CH N | | | H 2 PO 3 _O-CH | | | kwas inozynowy H C | OH + GTP HC + GTP N | | OH H | | | N kw. asparaginowy PO 43 - | | H N C | | H 2 CH cd | O C | H 2 PO 3 _O-CH N | | HC N | | C | | HN NH | C H kwas adenilobursztynowy
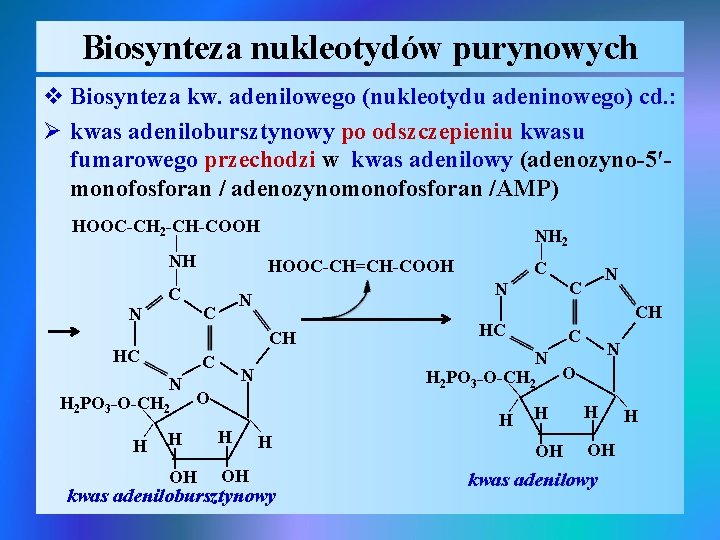
Biosynteza nukleotydów purynowych v Biosynteza kw. adenilowego (nukleotydu adeninowego) cd. : Ø kwas adenilobursztynowy po odszczepieniu kwasu fumarowego przechodzi w kwas adenilowy (adenozyno-5′monofosforan / adenozynomonofosforan /AMP) HOOC-CH 2 -CH-COOH | | kwas adenilobursztynowy | | | | H 2 PO 3_O-CH 2 O | H H H | OH | | | H | CH N N | OH C | | HC OH kwas adenilowy | | H 2 PO 3_O-CH 2 O | H H H OH | CH N | | N | C | HC N C | | N C C | | HOOC-CH=CH-COOH | C | NH NH 2 H
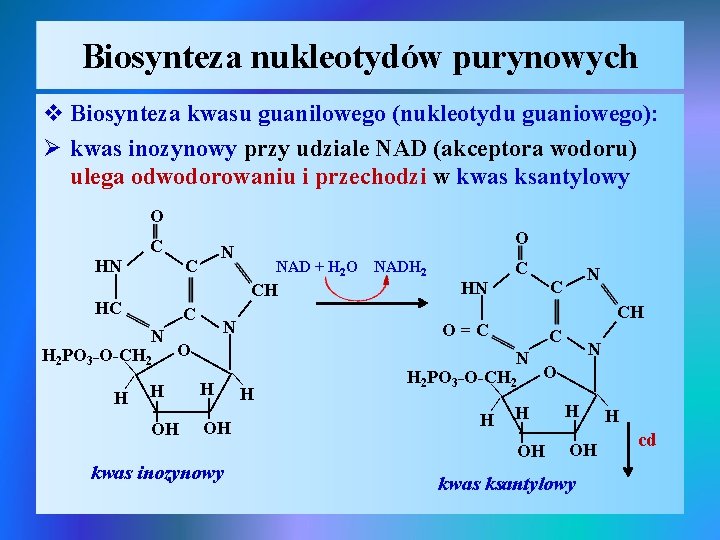
Biosynteza nukleotydów purynowych v Biosynteza kwasu guanilowego (nukleotydu guaniowego): Ø kwas inozynowy przy udziale NAD (akceptora wodoru) ulega odwodorowaniu i przechodzi w kwas ksantylowy O | | | | H 2 PO 3_O-CH 2 O | H H H | OH | | | N N H | OH kwas ksantylowy | C | | | kwas inozynowy O=C CH | OH | C | OH | HN N | H 2 PO 3_O-CH 2 O | H H H C | N | | CH N | C | HC NAD + H 2 O NADH 2 | | C | | HN O N | C H cd
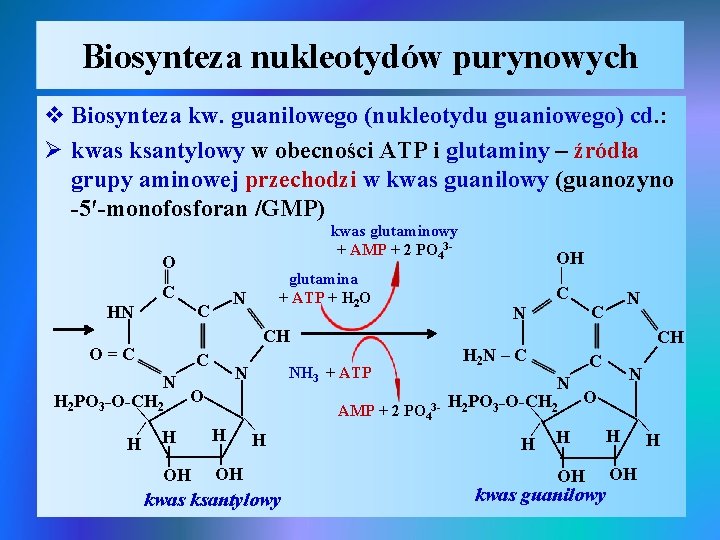
Biosynteza nukleotydów purynowych v Biosynteza kw. guanilowego (nukleotydu guaniowego) cd. : Ø kwas ksantylowy w obecności ATP i glutaminy – źródła grupy aminowej przechodzi w kwas guanilowy (guanozyno -5′-monofosforan /GMP) kwas glutaminowy + AMP + 2 PO 43 - | | | | | kwas ksantylowy | | OH H 2 PO 3_O-CH 2 O | H H H | OH kwas guanilowy | CH N N | | H C | AMP + 2 PO 43 - N OH | NH 3 + ATP H 2 N – C C | H 2 PO 3_O-CH 2 O | H H H N | | CH N | C | O=C | | | C | | HN N | C glutamina + ATP + H 2 O OH | O H |
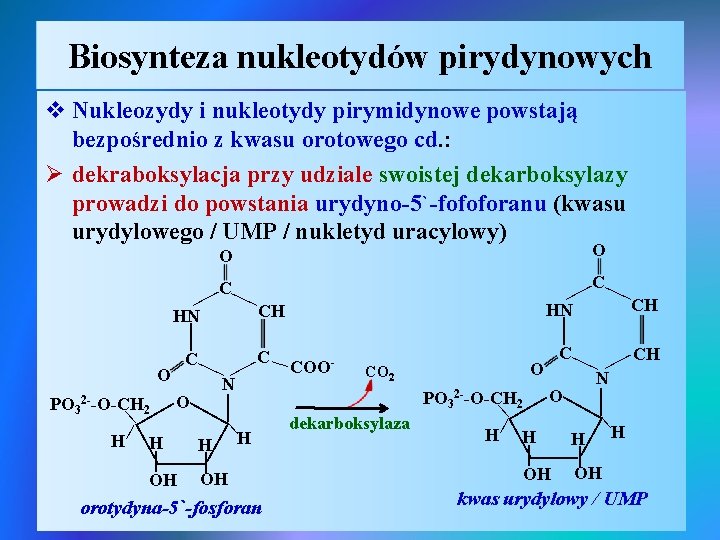
Biosynteza nukleotydów pirydynowych v Nukleozydy i nukleotydy pirymidynowe powstają bezpośrednio z kwasu orotowego cd. : Ø dekraboksylacja przy udziale swoistej dekarboksylazy prowadzi do powstania urydyno-5`-fofoforanu (kwasu urydylowego / UMP / nukletyd uracylowy) O C C OH | | orotydyna-5`-fosforan dekarboksylaza 2 --O-CH | N | O H | 2 | | | CO 2 | | | | OH | | | CH O PO 3 H C | | COO - | N CH | PO 32 --O-CH 2 O | H H H | O C C HN | | | CH | | HN | | O H H OH OH | | H kwas urydylowy / UMP
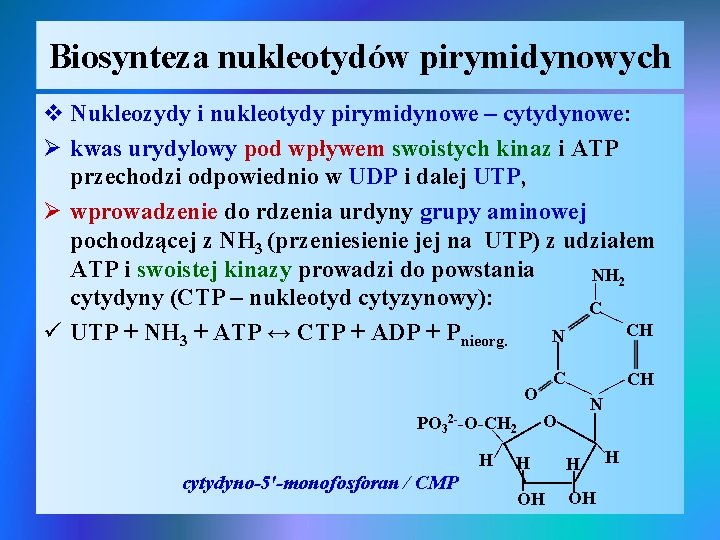
Biosynteza nukleotydów pirymidynowych | v Nukleozydy i nukleotydy pirymidynowe – cytydynowe: Ø kwas urydylowy pod wpływem swoistych kinaz i ATP przechodzi odpowiednio w UDP i dalej UTP, Ø wprowadzenie do rdzenia urdyny grupy aminowej pochodzącej z NH 3 (przeniesienie jej na UTP) z udziałem ATP i swoistej kinazy prowadzi do powstania NH 2 | cytydyny (CTP – nukleotyd cytyzynowy): C CH ü UTP + NH 3 + ATP ↔ CTP + ADP + Pnieorg. N | C | | | | | H cytydyno-5′-monofosforan / CMP N O 2 | PO 3 2 --O-CH CH | O H H OH OH | | H
Biosynteza deoksynukleotydów v Biosynteza deoksyrybonukleotydów (dezoksy-): Ø zamiana rybozy w deoksyrybozę (dezoksyrybozę) przebiega w rybonukleotydach bez naruszenia wiązania między rybozą a zasadą purynową / pirymidynową (odtlenienie na C 2 rybozy przebiega w rybotydach / nukleozydach, nukletydach przy udziale swoistych enzymów), Ø biosynteza nukleotydu tyminowego / TMP (tymidyno-5`-monofosforan): ü „aktywny metyl” / THFA przy udziale enzymu metylotransferazy zostaje przeniesiony na uracyl, produktem jest 5 -metylouracyl / tymina. ü proces może być zablokowany przez antagonistyczny analog koenzymu – aminopterynę.
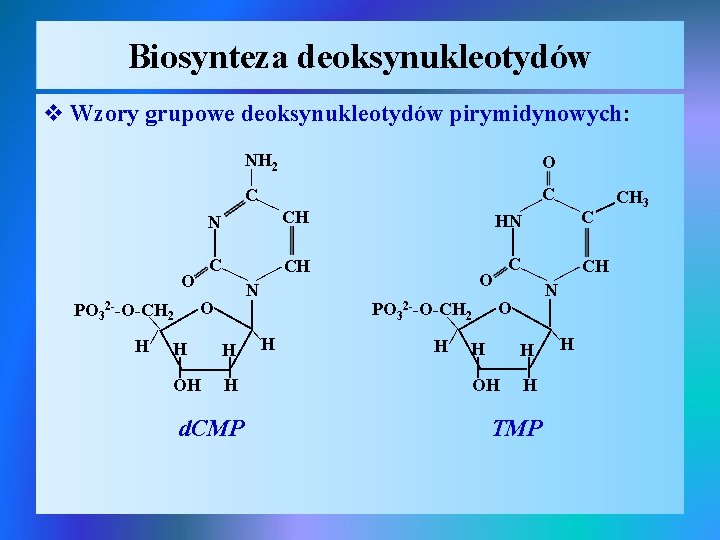
Biosynteza deoksynukleotydów v Wzory grupowe deoksynukleotydów pirymidynowych: NH 2 O C C HN C CH C | N | | | | d. CMP H | OH | PO 32 --O-CH 2 O | H H H | | | CH | OH | | N TMP C | | O | PO 32 --O-CH 2 O | H H H | | | O | CH | N H CH 3 | | |
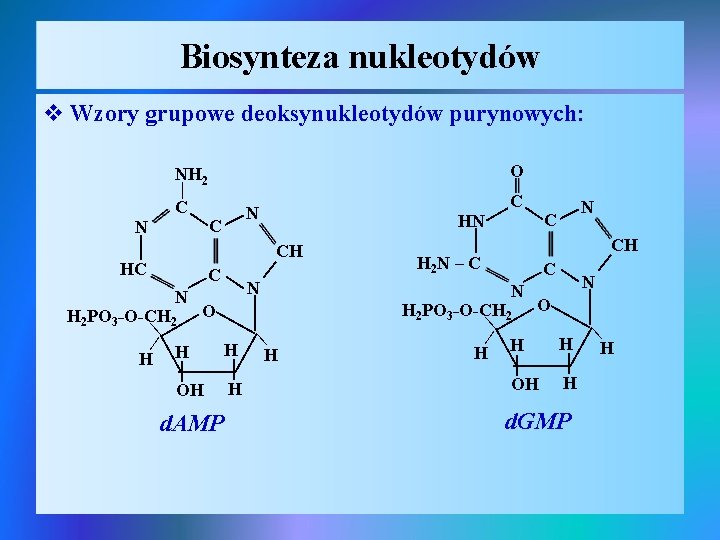
Biosynteza nukleotydów v Wzory grupowe deoksynukleotydów purynowych: O | | | OH | H d. GMP | | | d. AMP H H 2 PO 3_O-CH 2 O | H H H | OH | CH N N | | C | | H 2 PO 3_O-CH 2 O | H H 2 N – C | N | N | C | | HC CH C | | C HN | N C N | C | NH 2 H |
Biosynteza kwasów nukleinowych v Biosynteza DNA: Ø prekursorami dla kwasu DNA są reaktywne nukleotydy – deoksyrybozydo-5`-trifosforany, Ø poszczególne nukleotydy w formie trójfosforanów atakują wiązaniem pirofosforanowym grupę – OH na C 3, która znajduje się na końcu łańcucha polinukleotydowego, Ø odszczepienie się pirofosforanu powoduje wydłużenie łańcucha o jeden element strutkturalny, Ø kolejne przyłączenia nukleotydów wydłuża pojedynczą nić DNA do ok. 10 000 nukleotydów, Ø reakcja musi być zapoczątkowana przez obecny w układzie reagującym DNA (matryca) i w obecności swoistych enzymów grasicy i szpiku, reakcja przebiega z ATP do momentu wyczerpania się nukleotydów.
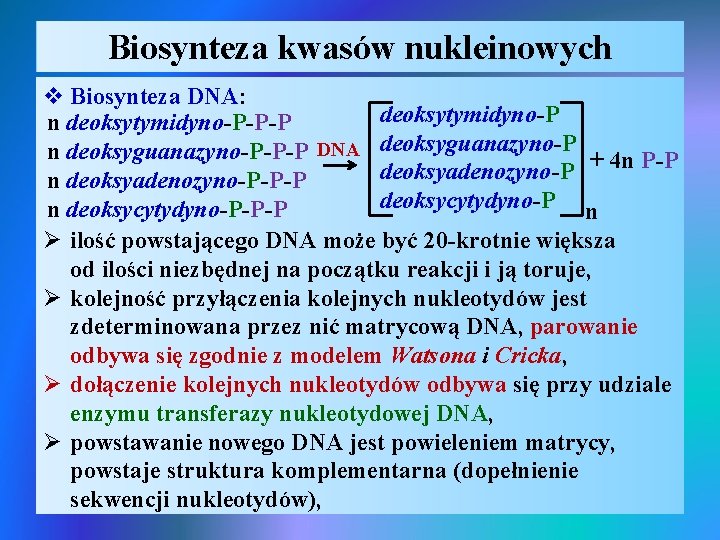
Biosynteza kwasów nukleinowych v Biosynteza DNA: deoksytymidyno-P n deoksytymidyno-P-P-P n deoksyguanazyno-P-P-P DNA deoksyguanazyno-P + 4 n P-P deoksyadenozyno-P n deoksyadenozyno-P-P-P deoksycytydyno-P n n deoksycytydyno-P-P-P Ø ilość powstającego DNA może być 20 -krotnie większa od ilości niezbędnej na początku reakcji i ją toruje, Ø kolejność przyłączenia kolejnych nukleotydów jest zdeterminowana przez nić matrycową DNA, parowanie odbywa się zgodnie z modelem Watsona i Cricka, Ø dołączenie kolejnych nukleotydów odbywa się przy udziale enzymu transferazy nukleotydowej DNA, Ø powstawanie nowego DNA jest powieleniem matrycy, powstaje struktura komplementarna (dopełnienie sekwencji nukleotydów),
Biosynteza kwasów nukleinowych v Wiązanie wodorowe w α-helisie (α-heliksie) DNA: Ø płaskie pierścienie zasad powiązane są za pomocą wiązań wodorowych, które powstają między grupą – NH 2 6 -amionpuryny lub grupą – OH 6 -hydroksypuryny a grupą – OH 6 -hydroksypirymidny lub NH 2 6 -aminopirmidyny, Ø warunki przestrzenne i dobór najtrwalszych wiązań wodorowych między parami zasad purynowych i pirymidynowych warunkuje trwałość sprali (jej nierozkręcalność), Ø kolejność nukleotydów w jednym łańcuchu definiuje ich kolejność w drugim łańcuchu, Ø prawidłowość odgrywa istotną w podziałach chromosomów i procesie dziedziczenia,
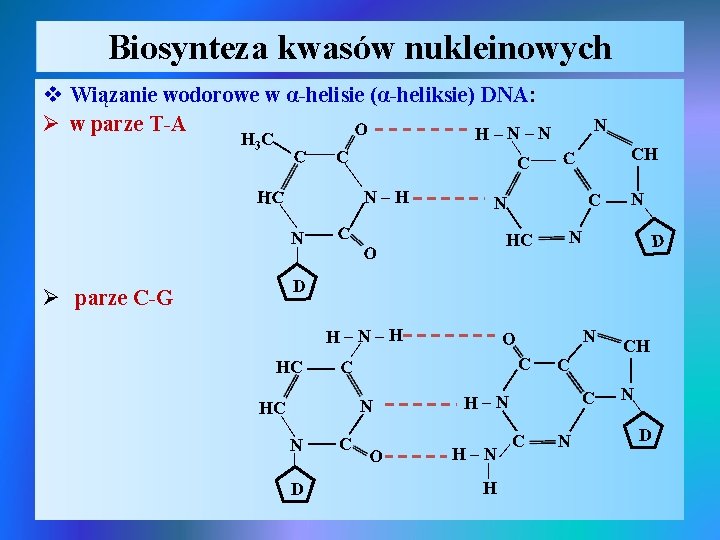
Biosynteza kwasów nukleinowych v Wiązanie wodorowe w α-helisie (α-heliksie) DNA: Ø w parze T-A O H–N–N C | C | N | O N C | | | CH C HC N O | N | C | N | HC | N–H | C | | | H 3 C N | D D H–N–H | D C | N | | C | N O H–N | C | H–N | H CH | C N N | HC C | HC | | Ø parze C-G | D
Biosynteza kwasów nukleinowych v Biosynteza RNA: Ø kwasy rybonukleinowe występują w formie pojedynczych nici, które na określonych odcinkach mogą być zwinięte spiralnie, przyjmuje postać pałeczki o dużej gęstości, Ø w roztworach soli o znacznym stężeniu ulegają rozwinięciu i tworzą chaotyczny zwój, Ø substratem biosyntezy (polikondensacji) nici RNA są difosforany nukleotydowe, przy udziale enzymu transferazy nukleotydowej reszty nukleotydowe są przenoszone na matrycę i jest uwalniany nieorganiczny fosforan, Ø biosynteza odbywa się w jądrze komórkowym i przemieszcza się do cytoplazmy,
Rozkład kwasów nukleinowych v Równoległymi procesami do biosyntezy jest ich rozkład przy udziale swoistych enzymów: Ø deoksyrybonukleaza (dezoksyrybonukleaza) należąca do hydrolaz zrywa niektóre wiązania estrowe między C`3 deoksyrybozy (dezoksyrybozy) z kwasem fosforowym w łańcuchu nukleotydowym, powstaje mieszanina oligonukleotydów, Ø rybonukleaza należąca do transferaz przenosi grupę fosforanową z pozycji C`5 nukleotydu purynowego lub pirymidynowego na pozycję C`2 sąsiadującego nukleotydu pirymidynowego, ü powstaje cykliczny 2`, 3`-dwunukleotyd, który ulega hydrolitycznemu rozpadowi na 3`-nukleotyd, w efekcie powstają oligonukleotydy zakończone nukleotydem pirymidynowym z fosforanem w poz. 3` rybozy,
Rozkład kwasów nukleinowych Ø dalszy rozkład oligonukleotydów przebiega pod wpływem nieswoistych hydrolaz: ü difosfoesterazy odrywają od oligonukleotydów mononukleotydy, ü fosfomonoesterazy rozbijają mononukleotydy na nukleozydy i kwas fosforowy, Ø ogólny schemat rozpadu: ü nukleozyd + fosforan ↔ zasada + rybozo-1 -fosforan ü lub nukleozyd + pirofosforan ↔ zasada + + 5 -fosforybulozopirofosforan, Ø reakcje są odwracalne i mogą powstawać nowe nukleozydy przez wymianę zasad purynowych lub pirymidynowych, dalsze przemiany katabolityczne zachodzą na poziomie nukleozydów (np. reakcje dezaminacji wobec dezaminazy).
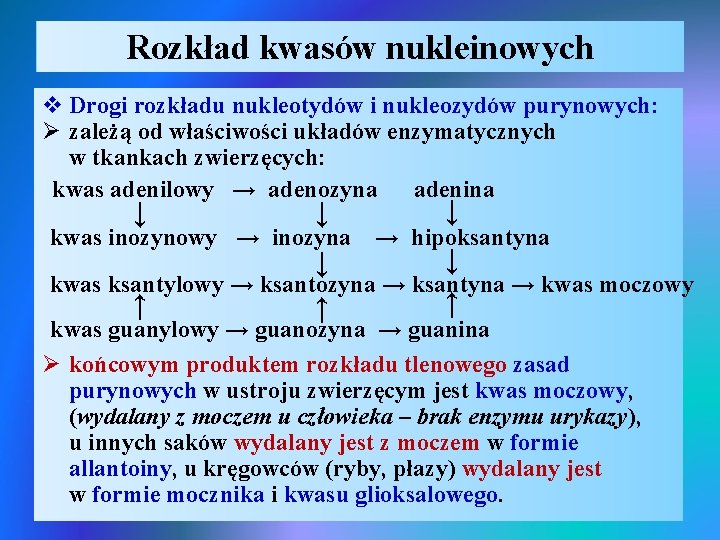
Rozkład kwasów nukleinowych kwas inozynowy → inozyna → → → v Drogi rozkładu nukleotydów i nukleozydów purynowych: Ø zależą od właściwości układów enzymatycznych w tkankach zwierzęcych: kwas adenilowy → adenozyna adenina → hipoksantyna → → → kwas ksantylowy → ksantozyna → ksantyna → kwas moczowy kwas guanylowy → guanozyna → guanina Ø końcowym produktem rozkładu tlenowego zasad purynowych w ustroju zwierzęcym jest kwas moczowy, (wydalany z moczem u człowieka – brak enzymu urykazy), u innych saków wydalany jest z moczem w formie allantoiny, u kręgowców (ryby, płazy) wydalany jest w formie mocznika i kwasu glioksalowego.
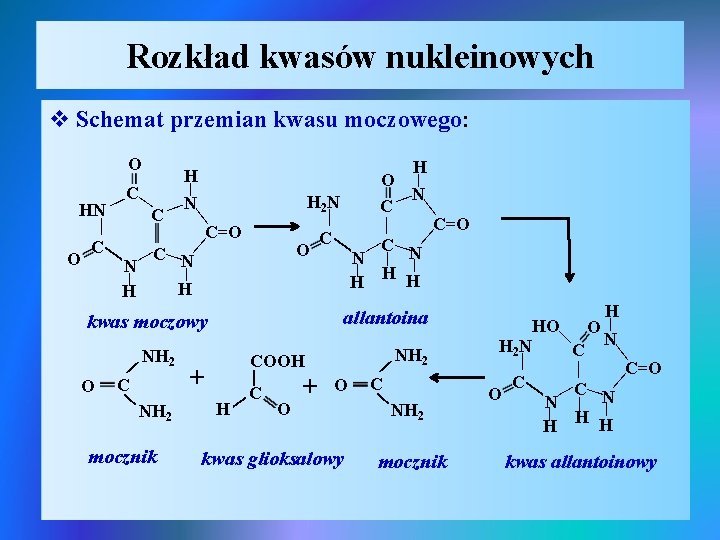
Rozkład kwasów nukleinowych v Schemat przemian kwasu moczowego: | | C N N | | H H C=O | | | O C | | C=O C N | | H H H | | C | | H 2 N | allantoina kwas moczowy H | HO O| N H 2 N C kwas glioksalowy C | | mocznik H | NH 2 mocznik O C | | C=O C N | | H H H | | C NH 2 | O + COOH | + O C O | | NH 2 | O | C | HN H O | N C H | O kwas allantoinowy
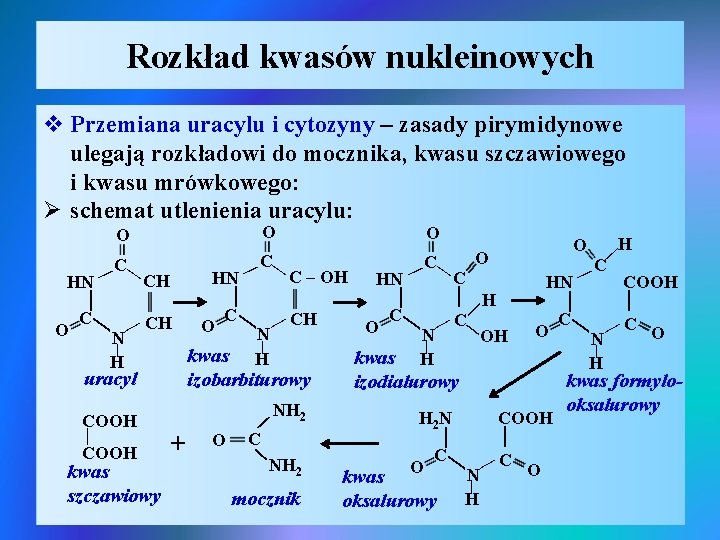
Rozkład kwasów nukleinowych v Przemiana uracylu i cytozyny – zasady pirymidynowe ulegają rozkładowi do mocznika, kwasu szczawiowego i kwasu mrówkowego: Ø schemat utlenienia uracylu: NH 2 C NH 2 mocznik | N | H | OH O kwas izodialurowy H 2 N COOH | | O C kwas oksalurowy N | H C | kwas szczawiowy O C | COOH + | | C | | | H O C COOH N | H C | COOH | uracyl kwas izobarbiturowy O HN C | N | H | | O C | CH HN | C | O | N | H CH | C | O | C – OH H O | | HN CH | C | C | O | HN O O kwas formylooksalurowy
- Slides: 20