
Biomolekulk mechanikja EGYEDI FEHRJEMOLEKULK VIZUALIZLSA S MECHANIKAI MANIPULLSA
Biomolekulák mechanikája EGYEDI FEHÉRJEMOLEKULÁK VIZUALIZÁLÁSA ÉS MECHANIKAI MANIPULÁLÁSA
Egyedi molekula vizualizáció különböző fluoreszcencia mikroszkópiás technikákkal. a. Konfokális mikroszkópia. b. A konfokális mikroszkóp egy-molekula vizualizációjának lehetséges módjai. i. Felszínen adszorbeált fluorofórok gerjesztése. A gerjesztési (fokális) térfogatot végigpásztázhatjuk a minta felszínén, ezáltal kétdimeziós képet alkotva, vagy rögzített (stacionárius) lézernyaláb esetén nagy időfelbontásssal követhetjük a kiszemelt molekula viselkedését. ii. Fluorofórok diffúziója egy stacionárius fokális térfogaton keresztül. Az fluoreszcencia intenzitás időbeli követésével a fluoreszcensen jelölt molekula számos tulajdonságára, így a diffúziós állandójára is következtethetünk. A gerjesztési térfogatba történő be- és kilépés okozta fluktuáció korrelációs analízise a fluoreszcencia korreláció spektroszkópia (Fluorescence Correlation Spectroscopy, FCS) alapja. c. Prizma alapú teljes belső visszaverődés fluoreszcencia mikroszkópia (TIRFM). d. Objektív alapú TIRFM. e. Epifluoreszcencia mikroszkópia. f. Közeli mező pásztázó optikai mikroszkópia (NSOM).
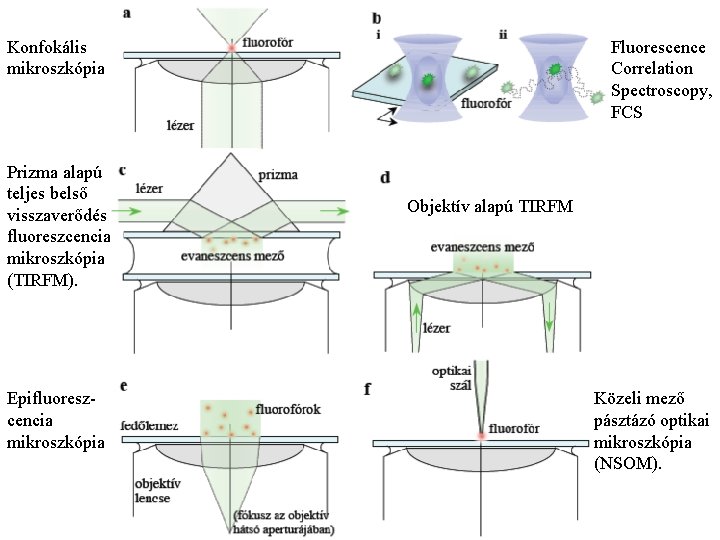
Konfokális mikroszkópia Prizma alapú teljes belső visszaverődés fluoreszcencia mikroszkópia (TIRFM). Epifluoreszcencia mikroszkópia Fluorescence Correlation Spectroscopy, FCS Objektív alapú TIRFM Közeli mező pásztázó optikai mikroszkópia (NSOM).
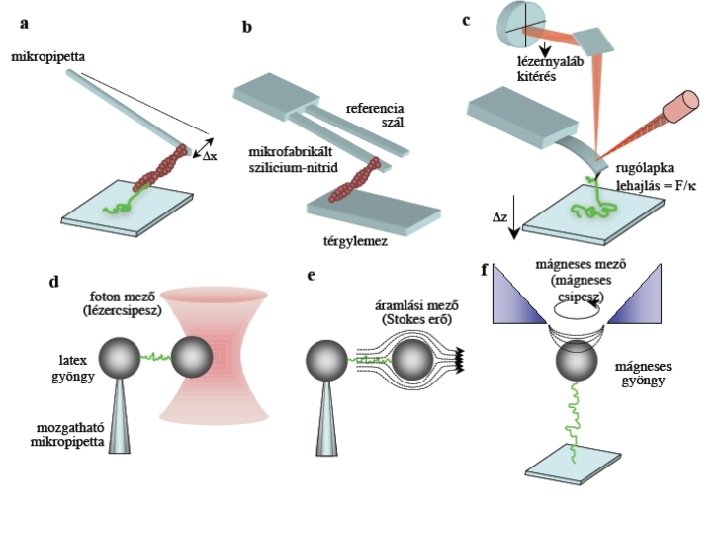
Egyedi molekula manipulációs technikák. a-c. Mechanikai transzducerek, d-f. Külső mező manipulátorok. a. Egyedi molekula, illetve filamentum mechanikai manipulálása mikropipettával Ebben a példában a rugalmas titinmolekulát fogtuk meg egy aktin filamentumon keresztül. b. Egyedi fehérjefilamentum manipulálása mikrofabrikált szilicium-nitrid szállal (cantilever). c. Egyedi molekula manipuláció AFM-mel. Ebben az erő-üzemmódú AFM-ben (molekuláris erő próba, molecular force probe, MFP) a rugólapkát, vagy a mintát mozgatjuk vertikális irányban. d. Egyetlen molekula megnyújtása lézercsipesszel. A vizsgált molekula két mikrogyöngy között feszül ki. Az egyik mikrogyöngyöt a lézerscsipesszel, a másikat egy mozgatható mikropipettával fogtuk meg. e. A folyadékáramlási mezőben az egyik mikrogyöngy egyfajta ejtőernyőként szolgál, amelyre ható viszkózus erő nyújtja a molekulát. f. Egyedi molekula manipulácó mágneses csipesszel. A molekula egyik vége szuperparamágneses mikrogyöngyhöz kapcsolódik, amely a külső mágneses tér irányába igyekszik fordulni és mozdulni. A mágneses csipeszben lehetőség adódik a mikrogyöngy forgatására és ezáltal a megfogott molekula megcsavarására is.
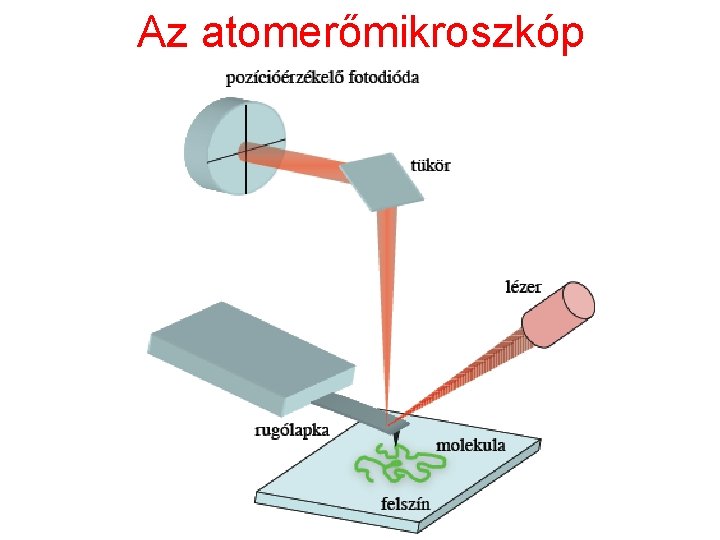
Az atomerőmikroszkóp
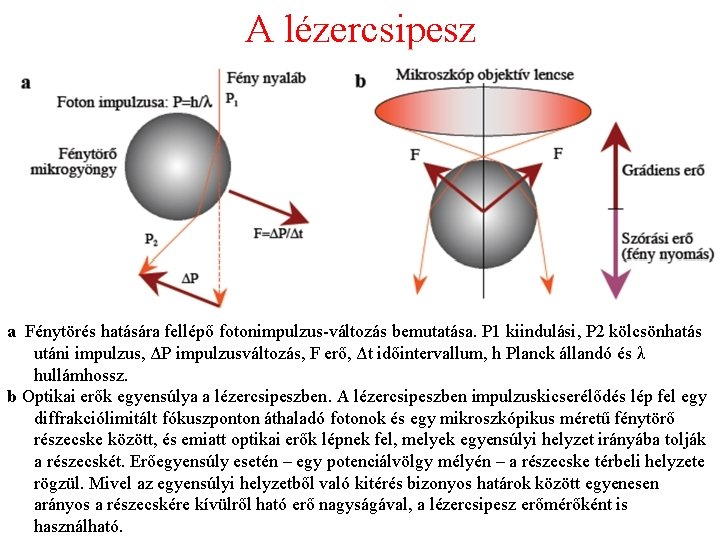
A lézercsipesz a Fénytörés hatására fellépő fotonimpulzus-változás bemutatása. P 1 kiindulási, P 2 kölcsönhatás utáni impulzus, ΔP impulzusváltozás, F erő, Δt időintervallum, h Planck állandó és λ hullámhossz. b Optikai erők egyensúlya a lézercsipeszben. A lézercsipeszben impulzuskicserélődés lép fel egy diffrakciólimitált fókuszponton áthaladó fotonok és egy mikroszkópikus méretű fénytörő részecske között, és emiatt optikai erők lépnek fel, melyek egyensúlyi helyzet irányába tolják a részecskét. Erőegyensúly esetén – egy potenciálvölgy mélyén – a részecske térbeli helyzete rögzül. Mivel az egyensúlyi helyzetből való kitérés bizonyos határok között egyenesen arányos a részecskére kívülről ható erő nagyságával, a lézercsipesz erőmérőként is használható.
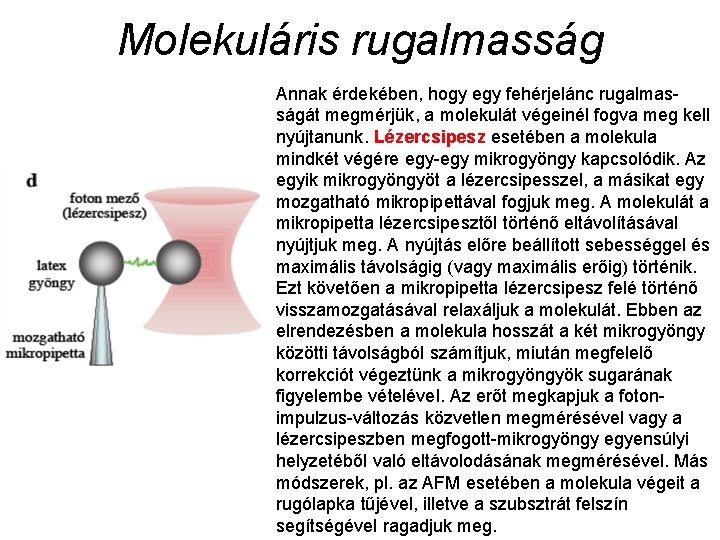
Molekuláris rugalmasság Annak érdekében, hogy egy fehérjelánc rugalmasságát megmérjük, a molekulát végeinél fogva meg kell nyújtanunk. Lézercsipesz esetében a molekula mindkét végére egy-egy mikrogyöngy kapcsolódik. Az egyik mikrogyöngyöt a lézercsipesszel, a másikat egy mozgatható mikropipettával fogjuk meg. A molekulát a mikropipetta lézercsipesztől történő eltávolításával nyújtjuk meg. A nyújtás előre beállított sebességgel és maximális távolságig (vagy maximális erőig) történik. Ezt követően a mikropipetta lézercsipesz felé történő visszamozgatásával relaxáljuk a molekulát. Ebben az elrendezésben a molekula hosszát a két mikrogyöngy közötti távolságból számítjuk, miután megfelelő korrekciót végeztünk a mikrogyöngyök sugarának figyelembe vételével. Az erőt megkapjuk a fotonimpulzus-változás közvetlen megmérésével vagy a lézercsipeszben megfogott-mikrogyöngy egyensúlyi helyzetéből való eltávolodásának megmérésével. Más módszerek, pl. az AFM esetében a molekula végeit a rugólapka tűjével, illetve a szubsztrát felszín segítségével ragadjuk meg.
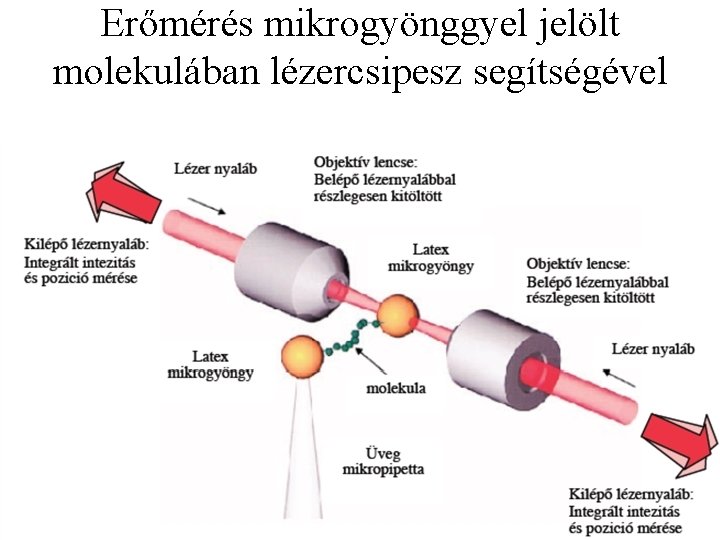
Erőmérés mikrogyönggyel jelölt molekulában lézercsipesz segítségével
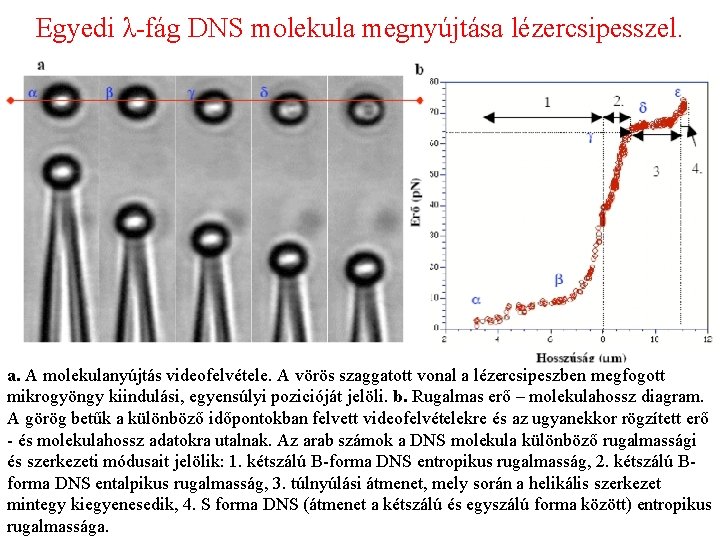
Egyedi λ-fág DNS molekula megnyújtása lézercsipesszel. a. A molekulanyújtás videofelvétele. A vörös szaggatott vonal a lézercsipeszben megfogott mikrogyöngy kiindulási, egyensúlyi pozicióját jelöli. b. Rugalmas erő – molekulahossz diagram. A görög betűk a különböző időpontokban felvett videofelvételekre és az ugyanekkor rögzített erő - és molekulahossz adatokra utalnak. Az arab számok a DNS molekula különböző rugalmassági és szerkezeti módusait jelölik: 1. kétszálú B-forma DNS entropikus rugalmasság, 2. kétszálú Bforma DNS entalpikus rugalmasság, 3. túlnyúlási átmenet, mely során a helikális szerkezet mintegy kiegyenesedik, 4. S forma DNS (átmenet a kétszálú és egyszálú forma között) entropikus rugalmassága.
Polimerláncok rugalmassága, modellek Hosszú fehérjeláncok esetében a rugalmas erő – molekulahossz függvény többnyire nem-lineáris összefüggést mutat, utalva arra, hogy a rugalmassági mechanizmus elsősorban entropikus. Egy entropikus polimer összehúzódik, mert benne termikusan gerjesztett hajlító mozgások lépnek fel, melyek növelik a lánc konformációs entrópiáját. A konformációs entrópia csökkenthető a lánc megnyújtásával, azaz a lánc végeinek egymástól való távolításával. Ehhez külső mechanikai erőre van szükség. Ahogy a lánc vég-vég távolsága közelíti a kontúrhosszt, az erő aszimptotikusan nő. Két fő modellt alkalmazunk a polimerlánc rugalmasságának leírására: -a féregszerű láncmodellt (wormlike chain, WLC) és - a súrlódásmentes pántokkal összekapcsolt szegmensekből álló láncmodellt (freely jointed chain, FJC).
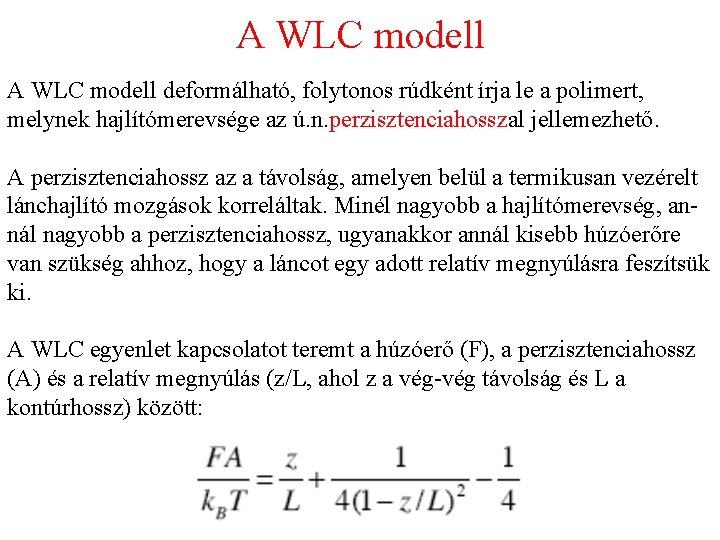
A WLC modell deformálható, folytonos rúdként írja le a polimert, melynek hajlítómerevsége az ú. n. perzisztenciahosszal jellemezhető. A perzisztenciahossz az a távolság, amelyen belül a termikusan vezérelt lánchajlító mozgások korreláltak. Minél nagyobb a hajlítómerevség, annál nagyobb a perzisztenciahossz, ugyanakkor annál kisebb húzóerőre van szükség ahhoz, hogy a láncot egy adott relatív megnyúlásra feszítsük ki. A WLC egyenlet kapcsolatot teremt a húzóerő (F), a perzisztenciahossz (A) és a relatív megnyúlás (z/L, ahol z a vég-vég távolság és L a kontúrhossz) között:
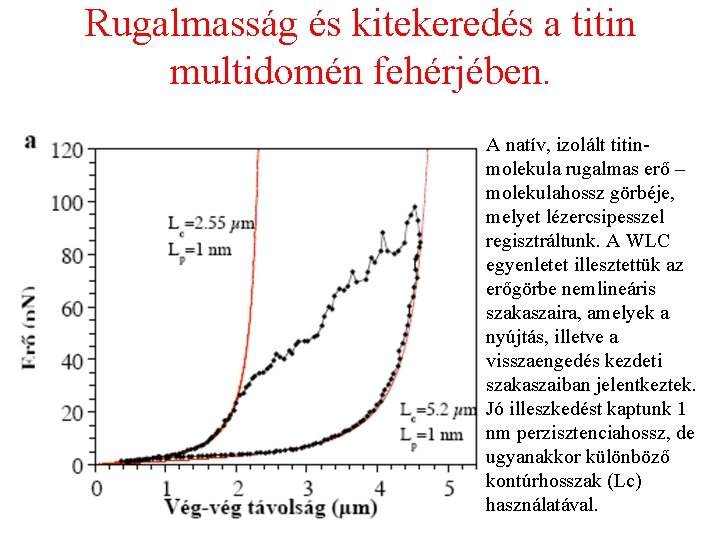
Rugalmasság és kitekeredés a titin multidomén fehérjében. A natív, izolált titinmolekula rugalmas erő – molekulahossz görbéje, melyet lézercsipesszel regisztráltunk. A WLC egyenletet illesztettük az erőgörbe nemlineáris szakaszaira, amelyek a nyújtás, illetve a visszaengedés kezdeti szakaszaiban jelentkeztek. Jó illeszkedést kaptunk 1 nm perzisztenciahossz, de ugyanakkor különböző kontúrhosszak (Lc) használatával.
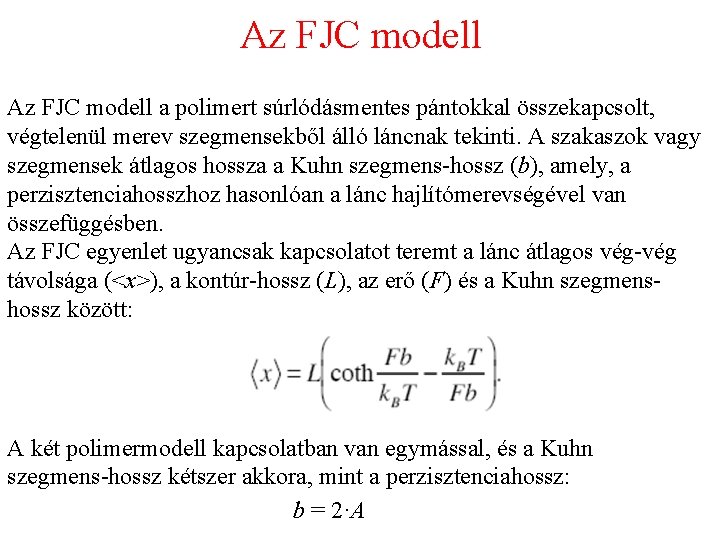
Az FJC modell a polimert súrlódásmentes pántokkal összekapcsolt, végtelenül merev szegmensekből álló láncnak tekinti. A szakaszok vagy szegmensek átlagos hossza a Kuhn szegmens-hossz (b), amely, a perzisztenciahosszhoz hasonlóan a lánc hajlítómerevségével van összefüggésben. Az FJC egyenlet ugyancsak kapcsolatot teremt a lánc átlagos vég-vég távolsága (<x>), a kontúr-hossz (L), az erő (F) és a Kuhn szegmenshossz között: A két polimermodell kapcsolatban van egymással, és a Kuhn szegmens-hossz kétszer akkora, mint a perzisztenciahossz: b = 2·A
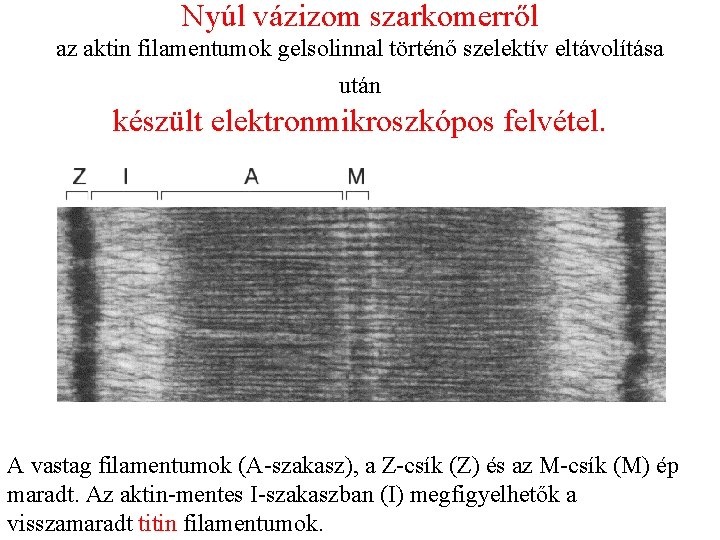
Nyúl vázizom szarkomerről az aktin filamentumok gelsolinnal történő szelektív eltávolítása után készült elektronmikroszkópos felvétel. A vastag filamentumok (A-szakasz), a Z-csík (Z) és az M-csík (M) ép maradt. Az aktin-mentes I-szakaszban (I) megfigyelhetők a visszamaradt titin filamentumok.
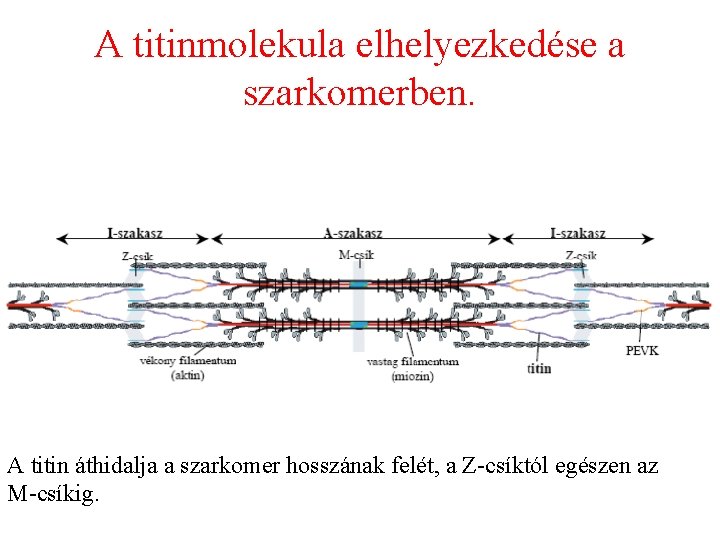
A titinmolekula elhelyezkedése a szarkomerben. A titin áthidalja a szarkomer hosszának felét, a Z-csíktól egészen az M-csíkig.
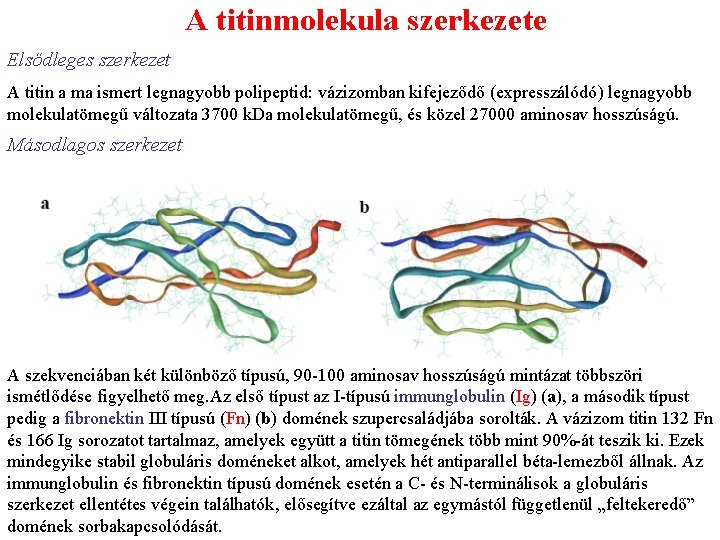
A titinmolekula szerkezete Elsődleges szerkezet A titin a ma ismert legnagyobb polipeptid: vázizomban kifejeződő (expresszálódó) legnagyobb molekulatömegű változata 3700 k. Da molekulatömegű, és közel 27000 aminosav hosszúságú. Másodlagos szerkezet A szekvenciában két különböző típusú, 90 -100 aminosav hosszúságú mintázat többszöri ismétlődése figyelhető meg. Az első típust az I-típusú immunglobulin (Ig) (a), a második típust pedig a fibronektin III típusú (Fn) (b) domének szupercsaládjába sorolták. A vázizom titin 132 Fn és 166 Ig sorozatot tartalmaz, amelyek együtt a titin tömegének több mint 90%-át teszik ki. Ezek mindegyike stabil globuláris doméneket alkot, amelyek hét antiparallel béta-lemezből állnak. Az immunglobulin és fibronektin típusú domének esetén a C- és N-terminálisok a globuláris szerkezet ellentétes végein találhatók, elősegítve ezáltal az egymástól függetlenül „feltekeredő” domének sorbakapcsolódását.
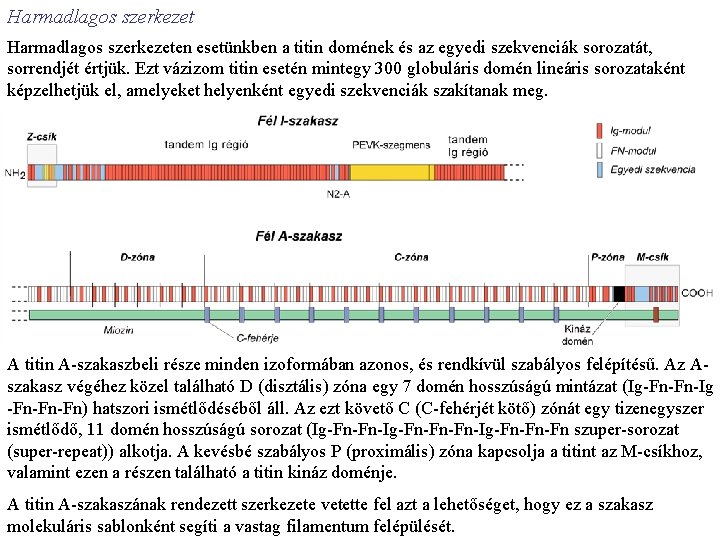
Harmadlagos szerkezeten esetünkben a titin domének és az egyedi szekvenciák sorozatát, sorrendjét értjük. Ezt vázizom titin esetén mintegy 300 globuláris domén lineáris sorozataként képzelhetjük el, amelyeket helyenként egyedi szekvenciák szakítanak meg. A titin A-szakaszbeli része minden izoformában azonos, és rendkívül szabályos felépítésű. Az Aszakasz végéhez közel található D (disztális) zóna egy 7 domén hosszúságú mintázat (Ig-Fn-Fn-Ig -Fn-Fn-Fn) hatszori ismétlődéséből áll. Az ezt követő C (C-fehérjét kötő) zónát egy tizenegyszer ismétlődő, 11 domén hosszúságú sorozat (Ig-Fn-Fn-Fn-Ig-Fn-Fn-Fn szuper-sorozat (super-repeat)) alkotja. A kevésbé szabályos P (proximális) zóna kapcsolja a titint az M-csíkhoz, valamint ezen a részen található a titin kináz doménje. A titin A-szakaszának rendezett szerkezete vetette fel azt a lehetőséget, hogy ez a szakasz molekuláris sablonként segíti a vastag filamentum felépülését.
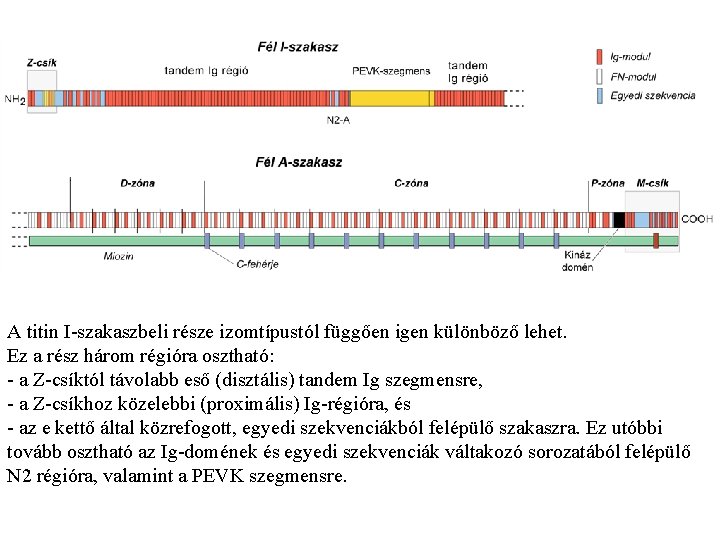
A titin I-szakaszbeli része izomtípustól függően igen különböző lehet. Ez a rész három régióra osztható: - a Z-csíktól távolabb eső (disztális) tandem Ig szegmensre, - a Z-csíkhoz közelebbi (proximális) Ig-régióra, és - az e kettő által közrefogott, egyedi szekvenciákból felépülő szakaszra. Ez utóbbi tovább osztható az Ig-domének és egyedi szekvenciák váltakozó sorozatából felépülő N 2 régióra, valamint a PEVK szegmensre.
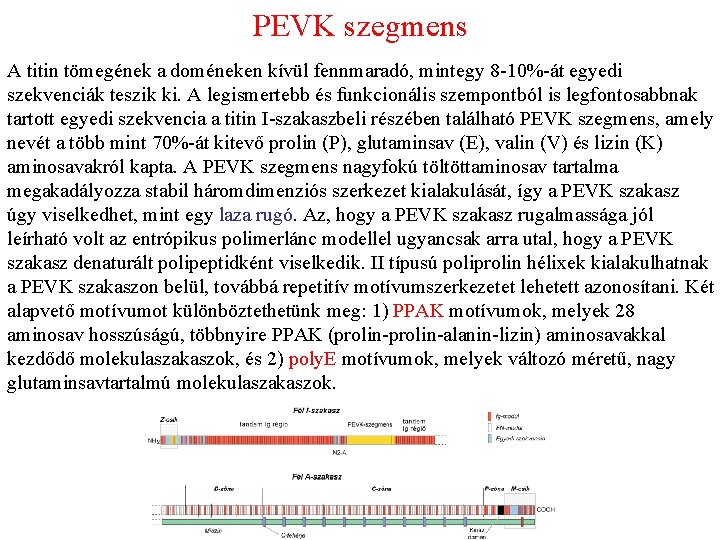
PEVK szegmens A titin tömegének a doméneken kívül fennmaradó, mintegy 8 -10%-át egyedi szekvenciák teszik ki. A legismertebb és funkcionális szempontból is legfontosabbnak tartott egyedi szekvencia a titin I-szakaszbeli részében található PEVK szegmens, amely nevét a több mint 70%-át kitevő prolin (P), glutaminsav (E), valin (V) és lizin (K) aminosavakról kapta. A PEVK szegmens nagyfokú töltöttaminosav tartalma megakadályozza stabil háromdimenziós szerkezet kialakulását, így a PEVK szakasz úgy viselkedhet, mint egy laza rugó. Az, hogy a PEVK szakasz rugalmassága jól leírható volt az entrópikus polimerlánc modellel ugyancsak arra utal, hogy a PEVK szakasz denaturált polipeptidként viselkedik. II típusú poliprolin hélixek kialakulhatnak a PEVK szakaszon belül, továbbá repetitív motívumszerkezetet lehetett azonosítani. Két alapvető motívumot különböztethetünk meg: 1) PPAK motívumok, melyek 28 aminosav hosszúságú, többnyire PPAK (prolin-alanin-lizin) aminosavakkal kezdődő molekulaszakaszok, és 2) poly. E motívumok, melyek változó méretű, nagy glutaminsavtartalmú molekulaszakaszok.
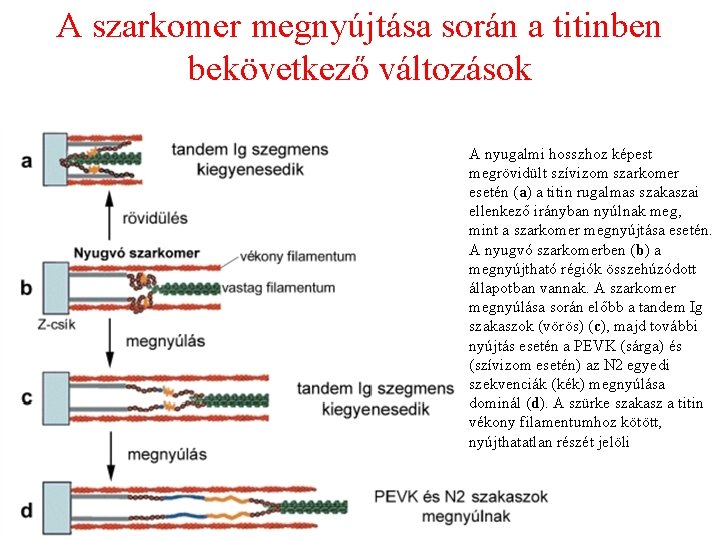
A szarkomer megnyújtása során a titinben bekövetkező változások A nyugalmi hosszhoz képest megrövidült szívizom szarkomer esetén (a) a titin rugalmas szakaszai ellenkező irányban nyúlnak meg, mint a szarkomer megnyújtása esetén. A nyugvó szarkomerben (b) a megnyújtható régiók összehúzódott állapotban vannak. A szarkomer megnyúlása során előbb a tandem Ig szakaszok (vörös) (c), majd további nyújtás esetén a PEVK (sárga) és (szívizom esetén) az N 2 egyedi szekvenciák (kék) megnyúlása dominál (d). A szürke szakasz a titin vékony filamentumhoz kötött, nyújthatatlan részét jelöli
A titin óriás izomfehérje megnyújtása A titin óriás izomfehérje volt a legelső fehérje, amelyet egyedi molekula manipulációs technikákkal nyújtottak meg. Azóta számos más fehérje rugalmasságát is vizsgálták: tenaszcin, spektrin, elasztin, kollagén, filamin, myosin, dezmin, fibrin, amiloid. A WLC modell minden esetben pontosabban írta le a rugalmas viselkedést, mint az FJC modell. Kollagén kötegek esetében azonban egyik modell sem adott kielégítő leírást, vélhetően a kötegben fellépő komplex kölcsönhatások miatt. Mechanikailag manipulált fehérjemolekulák erőgörbéiben gyakran figyelhető meg eltérés a modell által megjósolt rugalmas viselkedéstől. Az eltérést intramolekuláris szerkezeti átrendeződés, például kitekeredés okozza. Multidomén fehérjék esetében (pl. titin) egyedi domén-kitekeredési események is láthatóvá válhatnak. Az egymást követő egyedi doménkitekeredési események fűrészfog alakú erőgörbét eredményeznek. Az erő-fűrészfogak felbonthatósága attól függ, hogy mekkora az erőtranszducer rugóállandója, illetve mekkora az időfelbontás. Az átmenetek között a molekula rugalmasan viselkedik. A tranziens rugalmas viselkedés a WLC modell lokális illesztésével azonosítható.
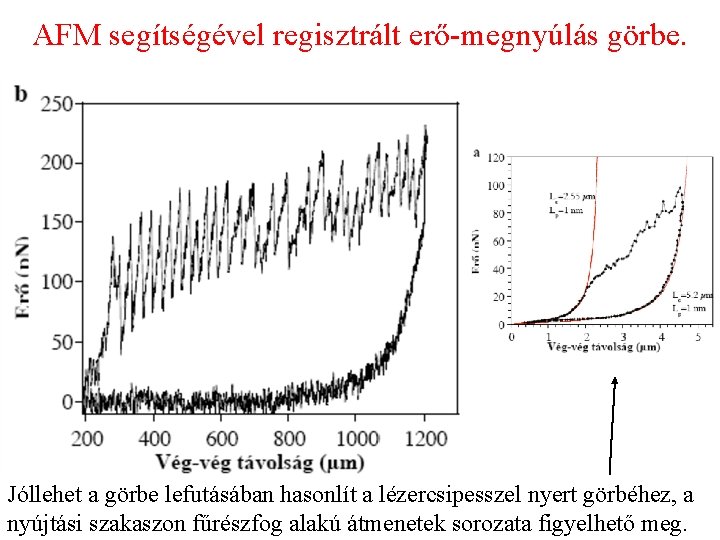
AFM segítségével regisztrált erő-megnyúlás görbe. Jóllehet a görbe lefutásában hasonlít a lézercsipesszel nyert görbéhez, a nyújtási szakaszon fűrészfog alakú átmenetek sorozata figyelhető meg.
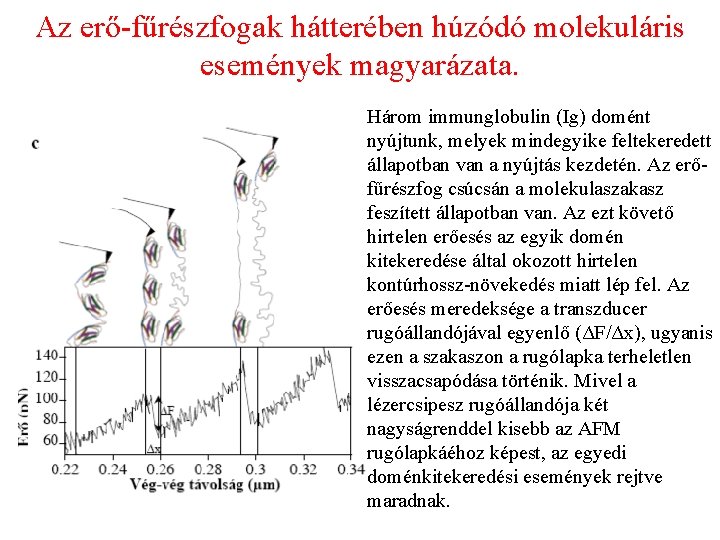
Az erő-fűrészfogak hátterében húzódó molekuláris események magyarázata. Három immunglobulin (Ig) domént nyújtunk, melyek mindegyike feltekeredett állapotban van a nyújtás kezdetén. Az erőfűrészfog csúcsán a molekulaszakasz feszített állapotban van. Az ezt követő hirtelen erőesés az egyik domén kitekeredése által okozott hirtelen kontúrhossz-növekedés miatt lép fel. Az erőesés meredeksége a transzducer rugóállandójával egyenlő (ΔF/Δx), ugyanis ezen a szakaszon a rugólapka terheletlen visszacsapódása történik. Mivel a lézercsipesz rugóállandója két nagyságrenddel kisebb az AFM rugólapkáéhoz képest, az egyedi doménkitekeredési események rejtve maradnak.
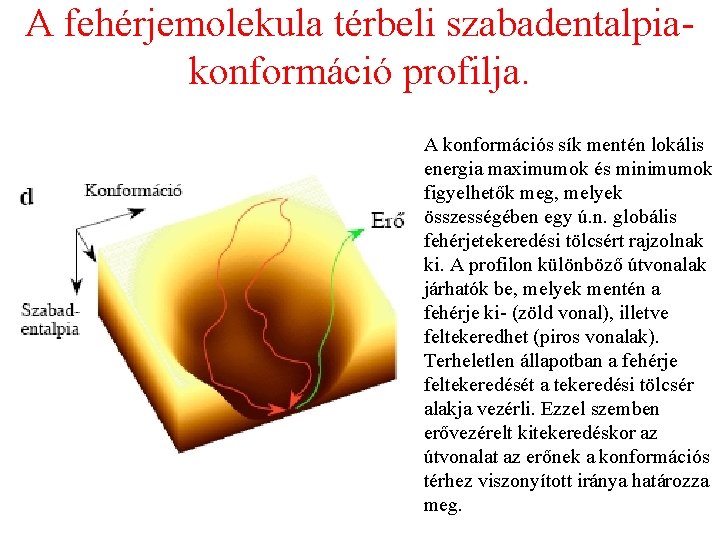
A fehérjemolekula térbeli szabadentalpiakonformáció profilja. A konformációs sík mentén lokális energia maximumok és minimumok figyelhetők meg, melyek összességében egy ú. n. globális fehérjetekeredési tölcsért rajzolnak ki. A profilon különböző útvonalak járhatók be, melyek mentén a fehérje ki- (zöld vonal), illetve feltekeredhet (piros vonalak). Terheletlen állapotban a fehérje feltekeredését a tekeredési tölcsér alakja vezérli. Ezzel szemben erővezérelt kitekeredéskor az útvonalat az erőnek a konformációs térhez viszonyított iránya határozza meg.
- Slides: 25