
Biologia molekularna rolin 20082009 Program Podstawowe koncepcje i
Biologia molekularna roślin 2008/2009
Program • • • Podstawowe koncepcje i metodologia biologii molekularnej roślin. Rośliny modelowe. Genetyka klasyczna (forward genetics) i odwrotna genetyka (reverse genetics) w analizie funkcji genów u roślin – analiza na przykładach. Genomika roślin: kompletne sekwencja, struktura i ewolucja genomów roślinnych. Współczesne metody po-genomiczne: transkryptomika (mikromacierze DNA), proteomika (analiza białek za pomocą spektrometrii mas), inne – omiki. Transkrypcja genów jądrowych u roślin i jej regulacja: zjawisko RNAi (interferencja RNA), chromatyna i dziedziczenie epigenetyczne. Organizacja i regulacja ekspresji genów organellarnych. Stres, fitohormony i transdukcja sygnałów u roślin. Genetyczna regulacja rozwoju embrionalnego i procesu kwitnienia. Współczesna biotechnologia roślin a etyka.
Wykład 1 • Podstawowe koncepcje i metodologia biologii molekularnej roślin
Cykl życia
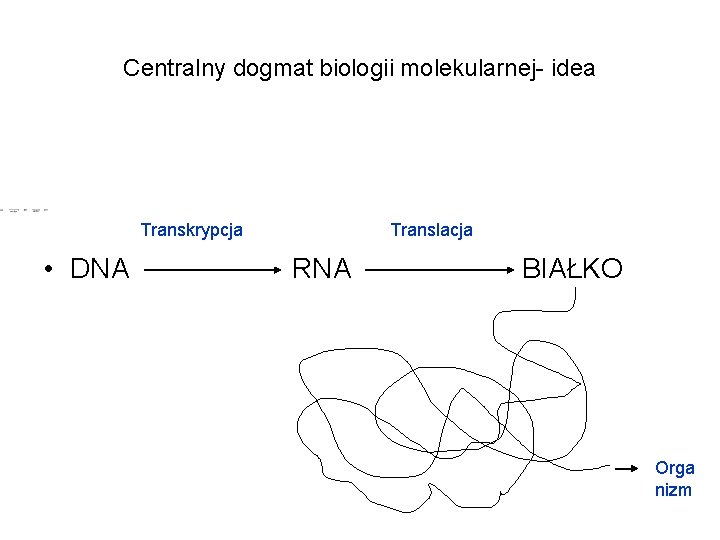
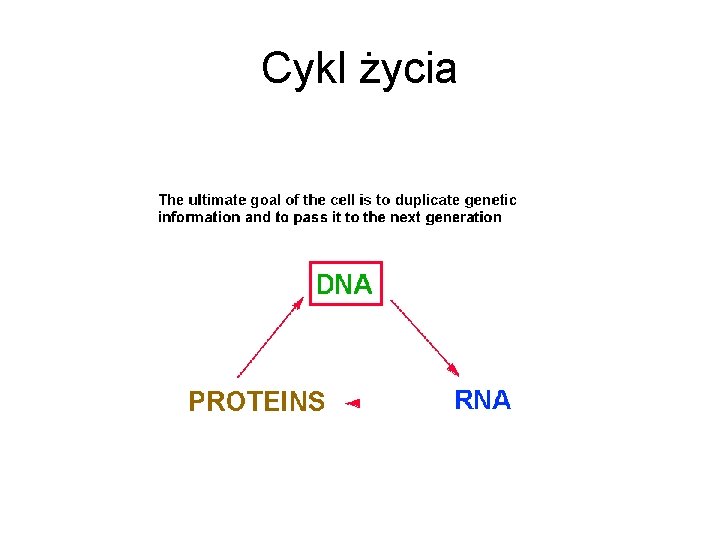
Centralny dogmat biologii molekularnej- idea Transkrypcja • DNA Translacja RNA BIAŁKO Orga nizm
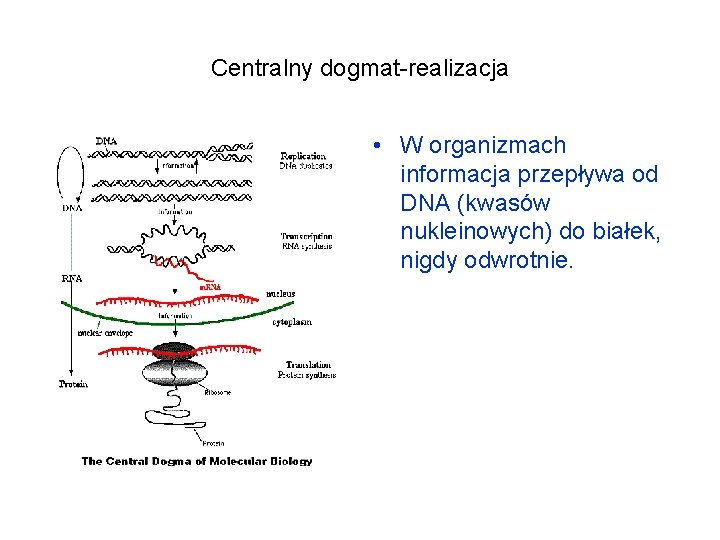
Centralny dogmat-realizacja • W organizmach informacja przepływa od DNA (kwasów nukleinowych) do białek, nigdy odwrotnie.
Centralny Dogmat (CD) w komórce • CD stwierdza, że informacja zawarta w genach (DNA) przyjmuje ostatecznie fizyczną postać fenotypu (białka). • Organelle roślinne są zarówno pochodzenia eukarotycznego (jądro), jak i prokariotycznego (chloroplasty, mitochondria). • Chloroplasty i mitochondria, podobnie jak DNA, zawierają DNA. • Zasada CD jest realizowana we wszystkich organellach. • Odwrotna transkrypcja nie występuje w chloroplastach i w mitochondriach. • W mitochondriach roślinnych występuje edytowanie m. RNA.
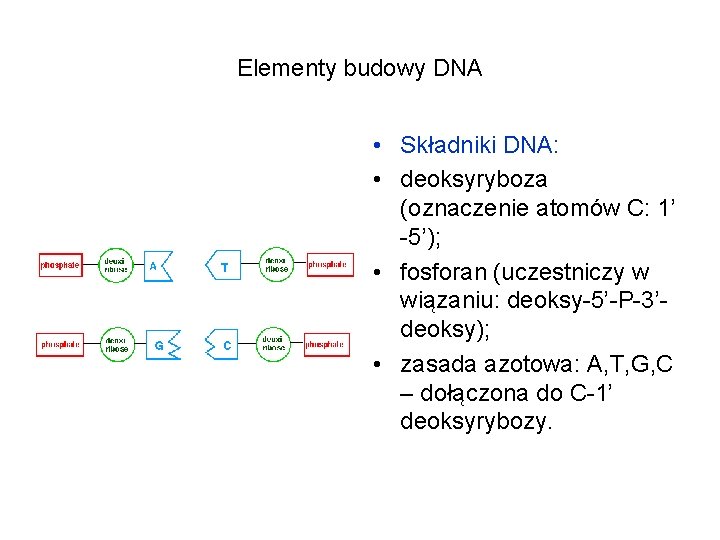
Elementy budowy DNA • Składniki DNA: • deoksyryboza (oznaczenie atomów C: 1’ -5’); • fosforan (uczestniczy w wiązaniu: deoksy-5’-P-3’deoksy); • zasada azotowa: A, T, G, C – dołączona do C-1’ deoksyrybozy.
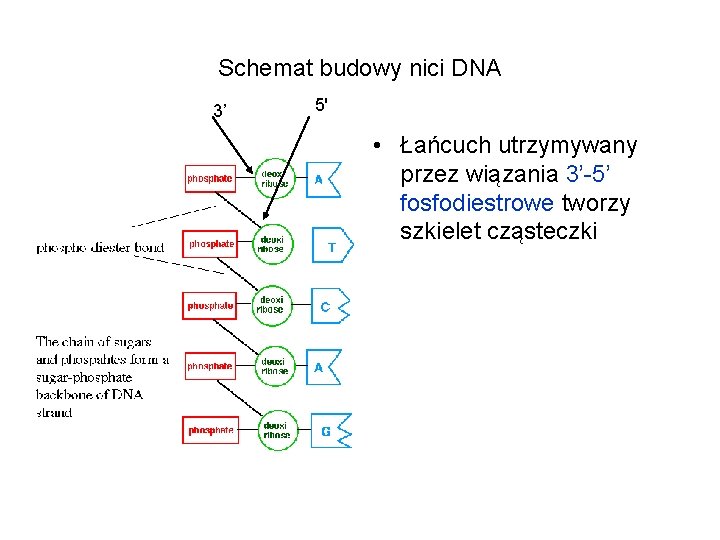
Schemat budowy nici DNA 3’ 5' • Łańcuch utrzymywany przez wiązania 3’-5’ fosfodiestrowe tworzy szkielet cząsteczki
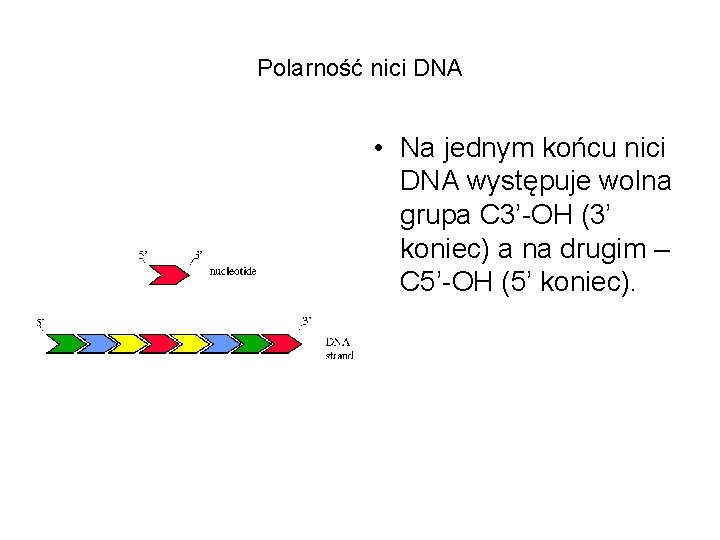
Polarność nici DNA • Na jednym końcu nici DNA występuje wolna grupa C 3’-OH (3’ koniec) a na drugim – C 5’-OH (5’ koniec).
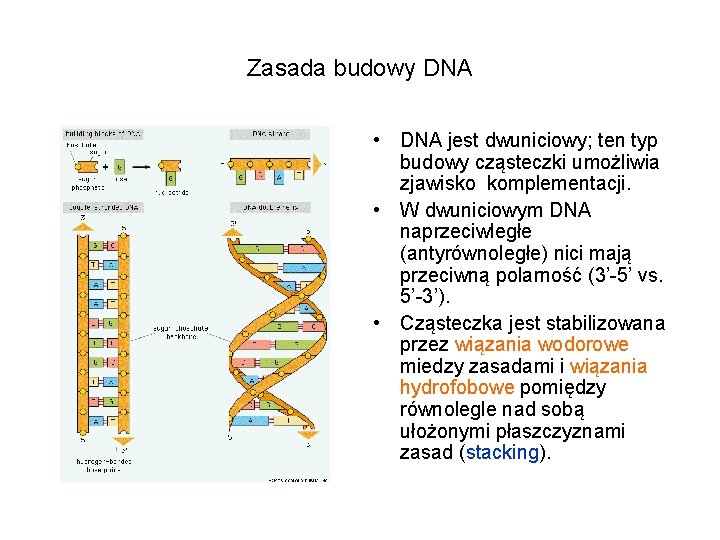
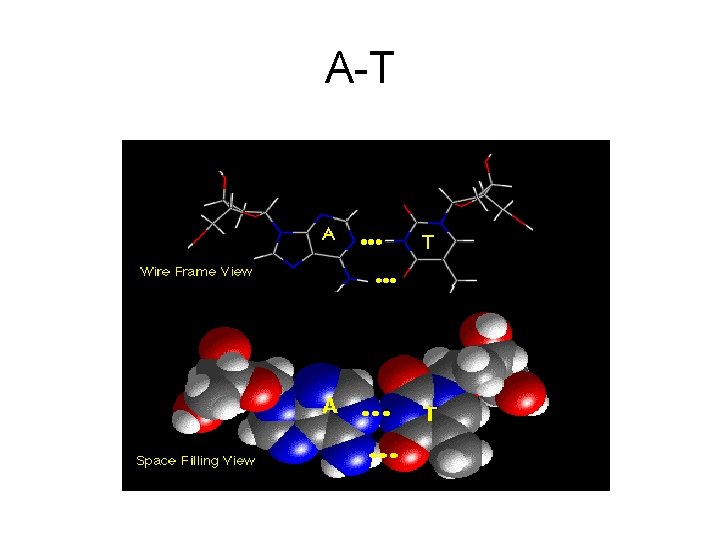
Zasada budowy DNA • DNA jest dwuniciowy; ten typ budowy cząsteczki umożliwia zjawisko komplementacji. • W dwuniciowym DNA naprzeciwległe (antyrównoległe) nici mają przeciwną polarność (3’-5’ vs. 5’-3’). • Cząsteczka jest stabilizowana przez wiązania wodorowe miedzy zasadami i wiązania hydrofobowe pomiędzy równolegle nad sobą ułożonymi płaszczyznami zasad (stacking).
A-T
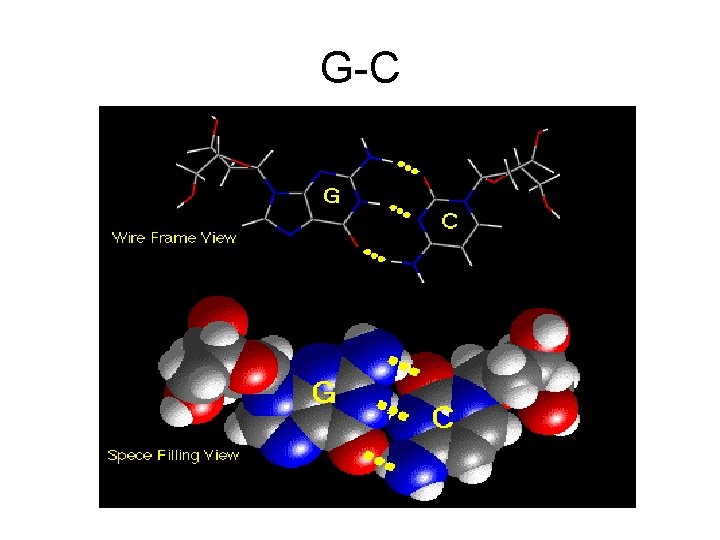
G-C
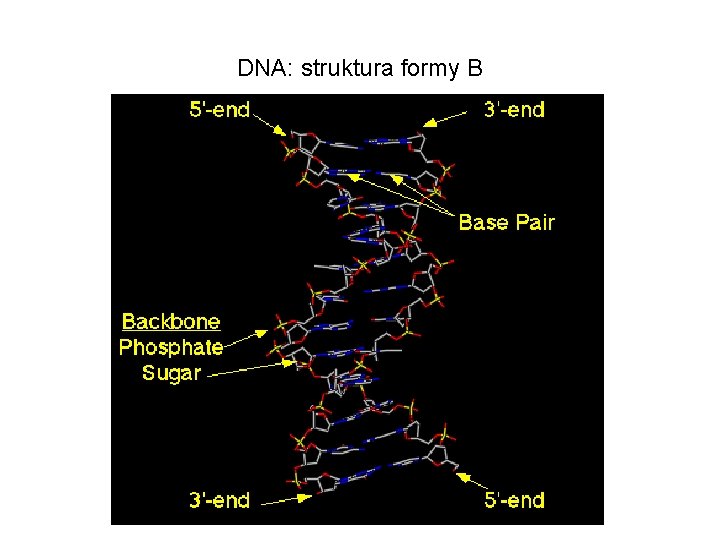
DNA: struktura formy B
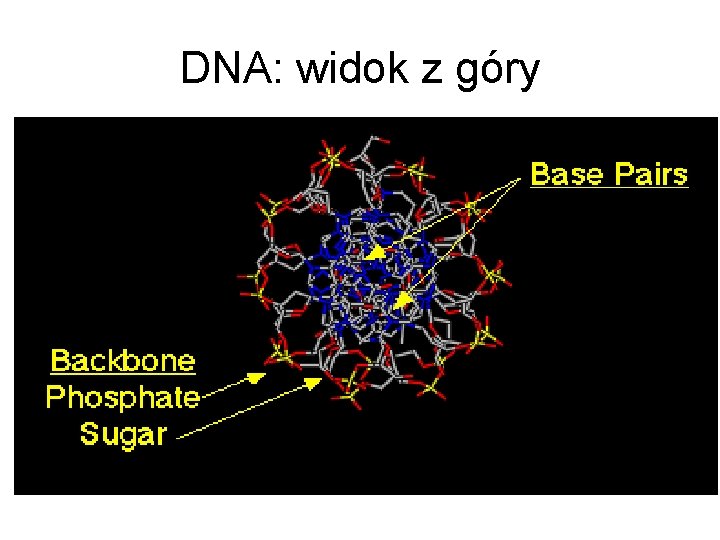
DNA: widok z góry
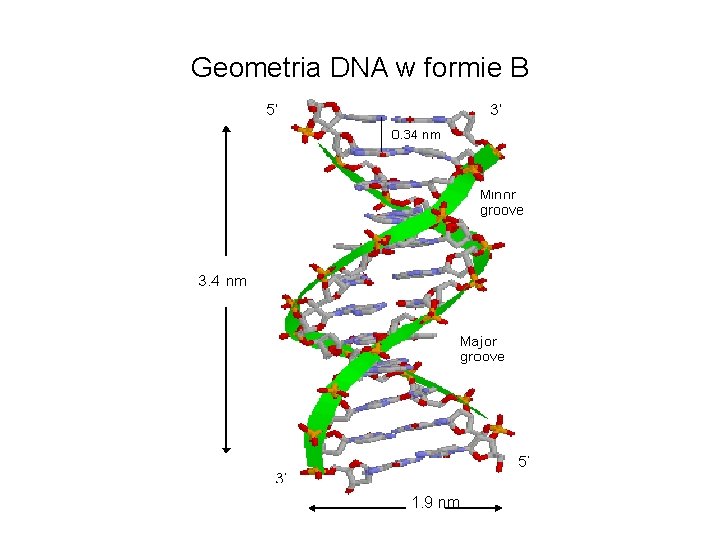
Geometria DNA w formie B 1. 9 nm
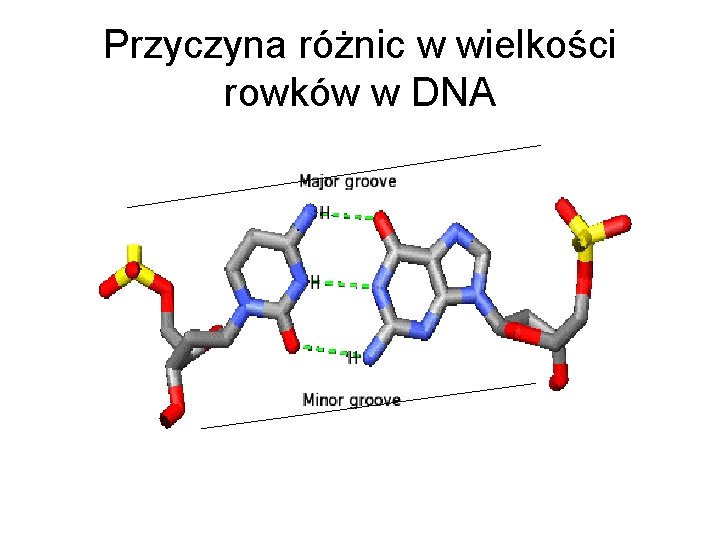
Przyczyna różnic w wielkości rowków w DNA
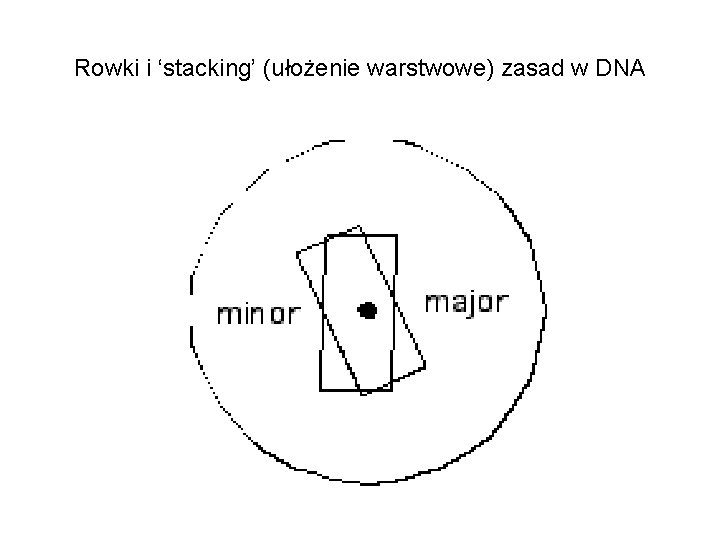
Rowki i ‘stacking’ (ułożenie warstwowe) zasad w DNA
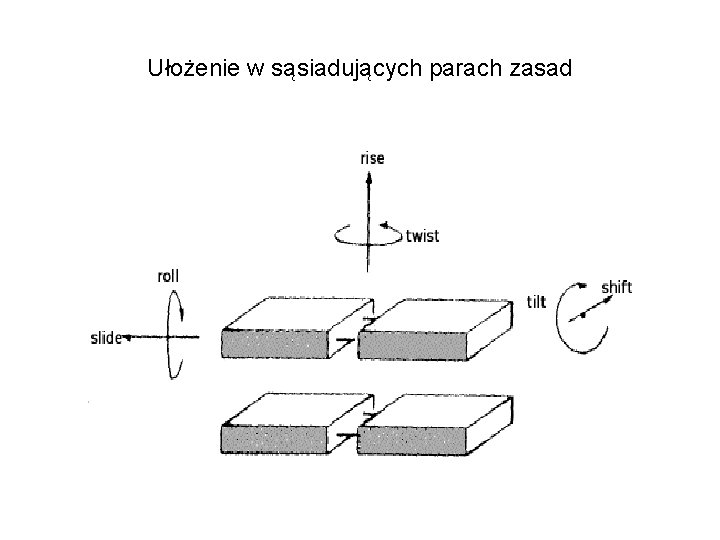
Ułożenie w sąsiadujących parach zasad
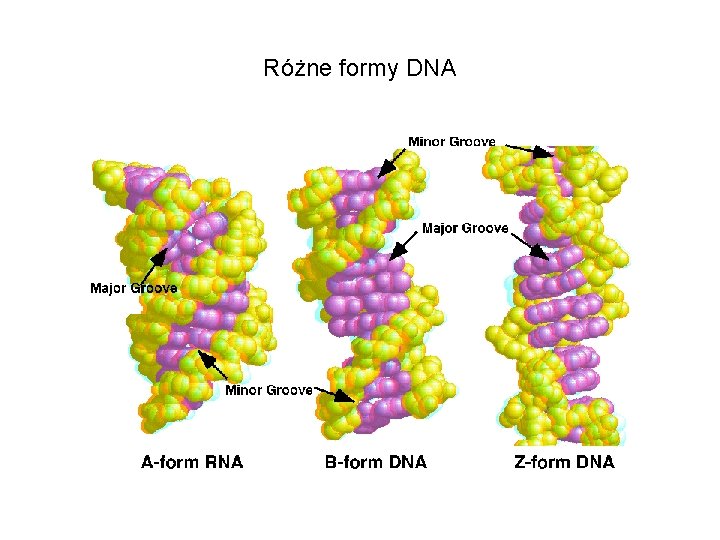
Różne formy DNA
Formy DNA - parametry • DNA opisany przez W-C – w formie B. Obecnie wiadomo, że DNA może występować także w innych formach. • Główna różnica między formami: kierunek skręcenia helisy • A, B, C – helisa prawoskrętna • Z – helisa lewoskrętna (występuje in vitro w wysokim stężeniu soli) • W komórce – głównie forma B. • Forma Z może istnieć w warunkach niskiego stężenia soli (w komórce), gdy w DNA występują naprzemienne ciągi puryn i pirymidyn, np. poli-GC lub poli- AT, lub 5 -metylocytozyna. • A 11. 0 zasad/skręt śr. 23 A • B 10. 0 zasad/skręt, śr. 19 A • C 9, 3 zasad/skręt, śr 19 A • Z 12. 0 zasad/skręt, śr. 18 A
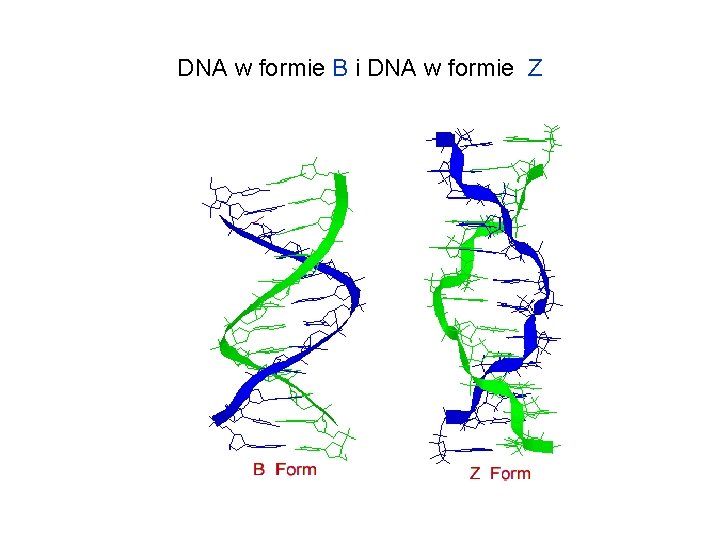
DNA w formie B i DNA w formie Z
Replikacja DNA • Reakcja: d. ATP, d. CTP, d. GTP, d. TTP -> Polimer DNA + PPi (PPi + H 20 -> hydroliza pirofosforanu napędza reakcję) Wymagane: Enzym – polimeraza DNA, matryca DNA, Mg++, primer
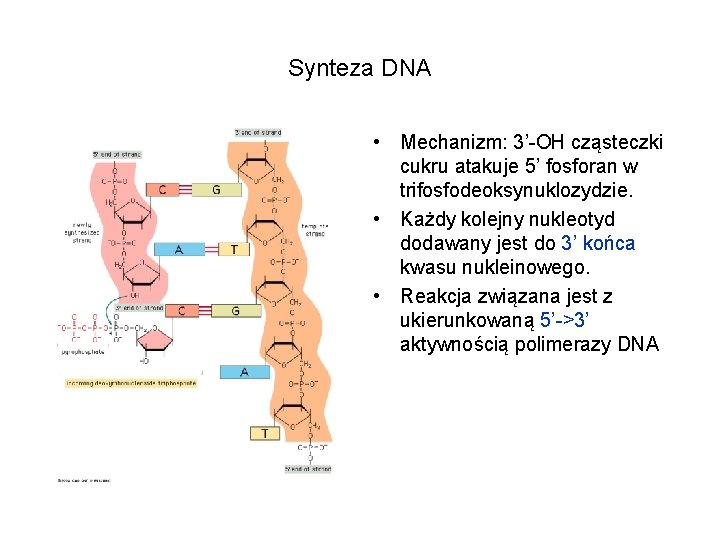
Synteza DNA • Mechanizm: 3’-OH cząsteczki cukru atakuje 5’ fosforan w trifosfodeoksynuklozydzie. • Każdy kolejny nukleotyd dodawany jest do 3’ końca kwasu nukleinowego. • Reakcja związana jest z ukierunkowaną 5’->3’ aktywnością polimerazy DNA
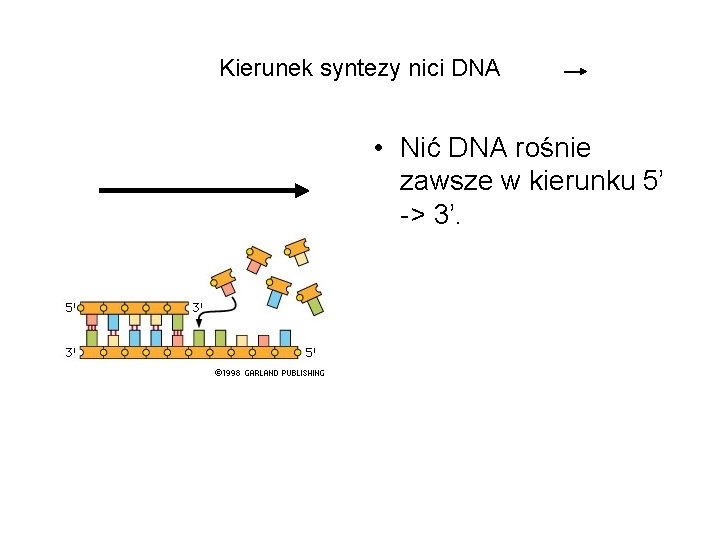
Kierunek syntezy nici DNA • Nić DNA rośnie zawsze w kierunku 5’ -> 3’.
Enzymologia replikacji DNA - I • Większość danych o syntezie DNA z badania bakterii. • U bakterii dwie ważne polimerazy DNA: I i III. • DNA polimerazy wymagają „primera” w postaci fragmentu nici polinukleotydowej, nie potrafią tworzyć nici od „zera”. • W celu rozpoczęcia nici od „zera” polimeraza RNA (primaza) sytntetyzuje primer RNA (RNA polimeraza sama nie wymaga primera). W wypadku wydłużania nici DNA, istniejąca nić służy jako primer. • DNA polimerazy I i III mają aktywność 3’->5’ egzonukleazy (tj. w kierunku przeciwnym do kierunku polimeryzacji) zdolną do niszczenia nowo zsyntetyzowanej nici (tzw. ‘proofreading’) w celu naprawy błędnie włączonych nukleotydów. • Problemy w trakcie replikacji: gdzie zacząć (origin), rozwinięcie helisy i stabilizacja rozwinięcia (rep protein, helikaza II), wytworzenie primera, synteza DNA, uwolnienie nowych łańcuchów, topologia.
Enzymologia replikacji DNA - II • Nić prowadząca – początek syntezy DNA, synteza bez problemów 5’->3’. U eukariontów: DNA polimeraza δ (delta) • Nić opóźniona – primaza wiąże się do sekwencji na nici opóźnionej, odsłoniętym przez białko rep, i syntetyzuje fragment RNA – primer dla nowej cząsteczki polimerazy DNA (u eukariontów Polimeraza ε (epsilon). Primaza przesuwa się wzdłuż nici opóźnionej i powtórnie zaczyna syntezę RNA. W rezultacie, nić składa się z serii krótkich fragmentów DNA, każdy z primerem RNA na 5’ końcu. Są to tzw. ‘fragmenty Okazaki’.
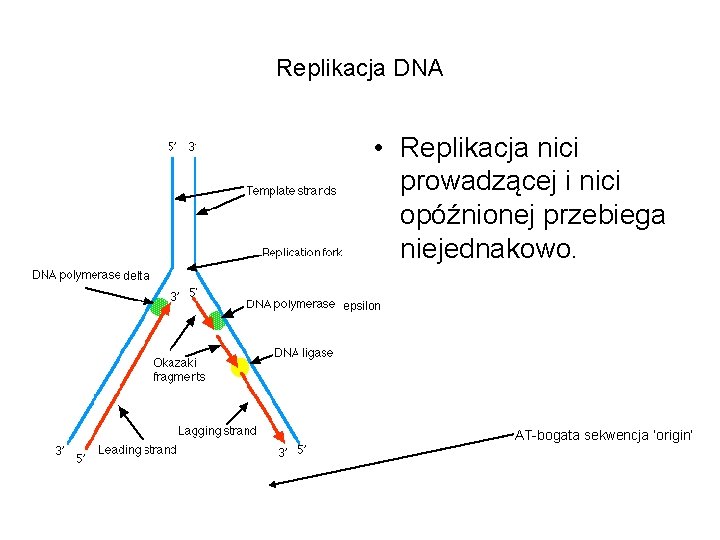
Replikacja DNA • Replikacja nici prowadzącej i nici opóźnionej przebiega niejednakowo. delta epsilon AT-bogata sekwencja ‘origin’
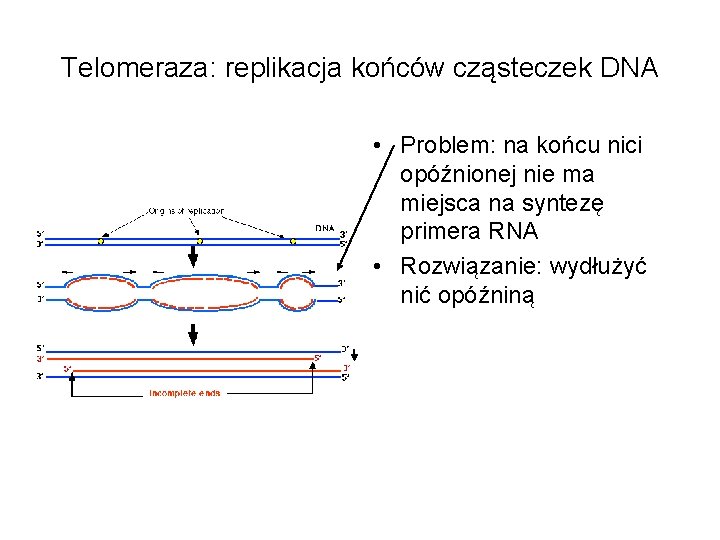
Telomeraza: replikacja końców cząsteczek DNA • Problem: na końcu nici opóźnionej nie ma miejsca na syntezę primera RNA • Rozwiązanie: wydłużyć nić opóźniną
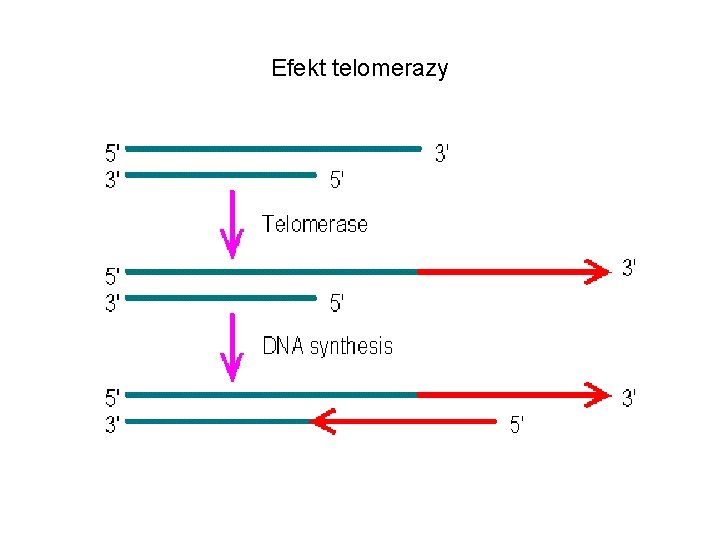
Efekt telomerazy
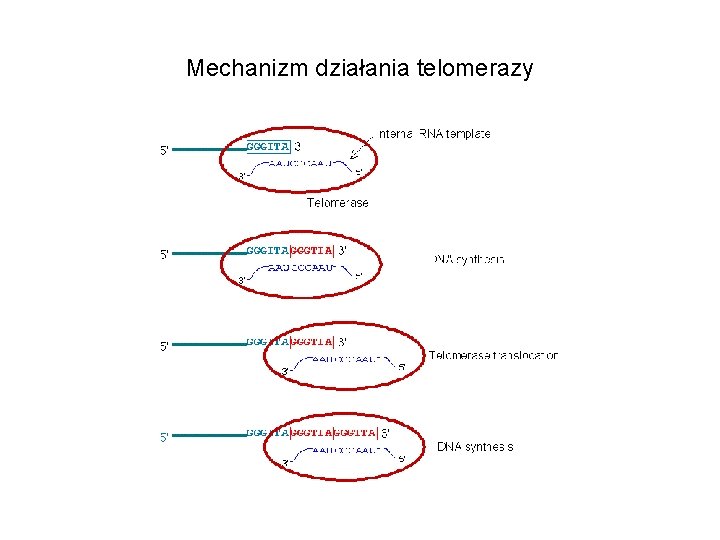
Mechanizm działania telomerazy
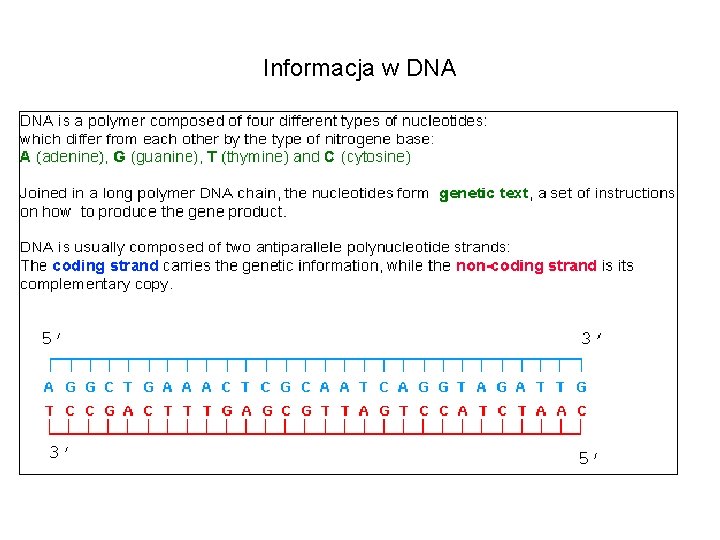
Informacja w DNA
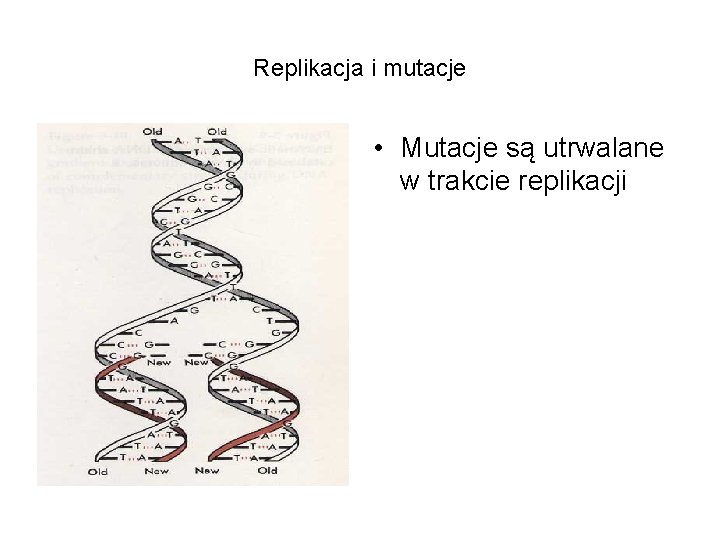
Replikacja i mutacje • Mutacje są utrwalane w trakcie replikacji
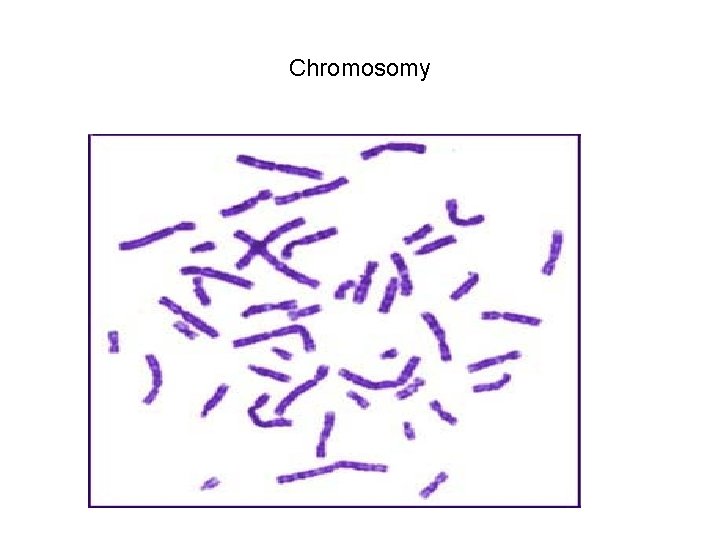
Chromosomy
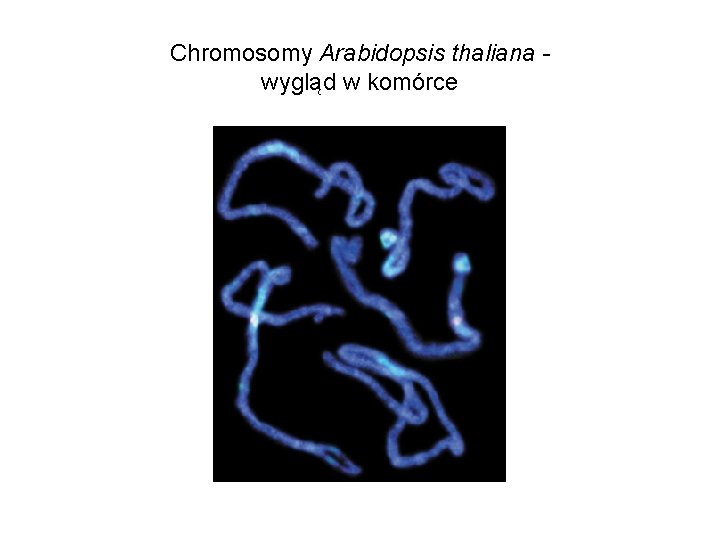
Chromosomy Arabidopsis thaliana wygląd w komórce
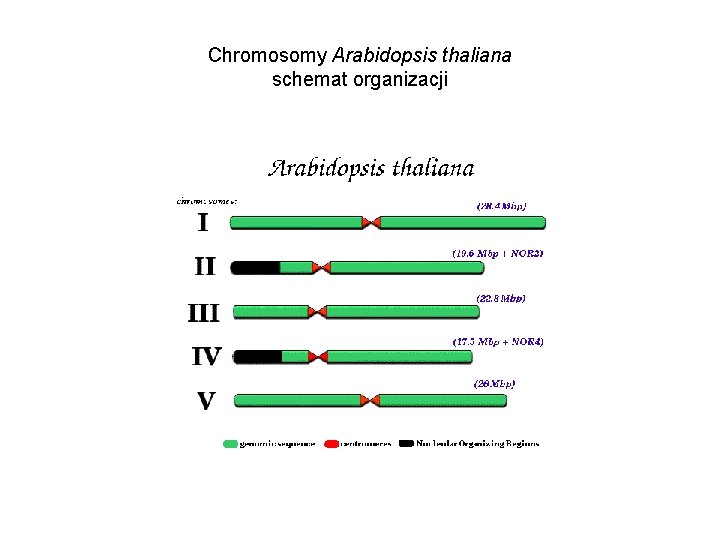
Chromosomy Arabidopsis thaliana schemat organizacji
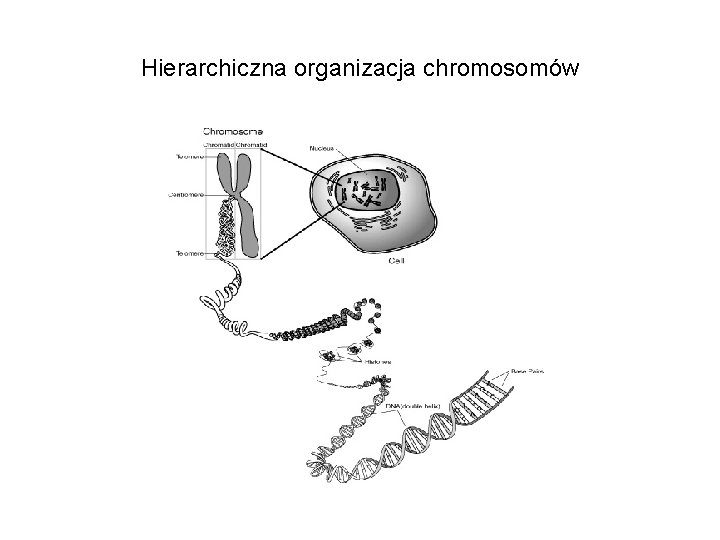
Hierarchiczna organizacja chromosomów
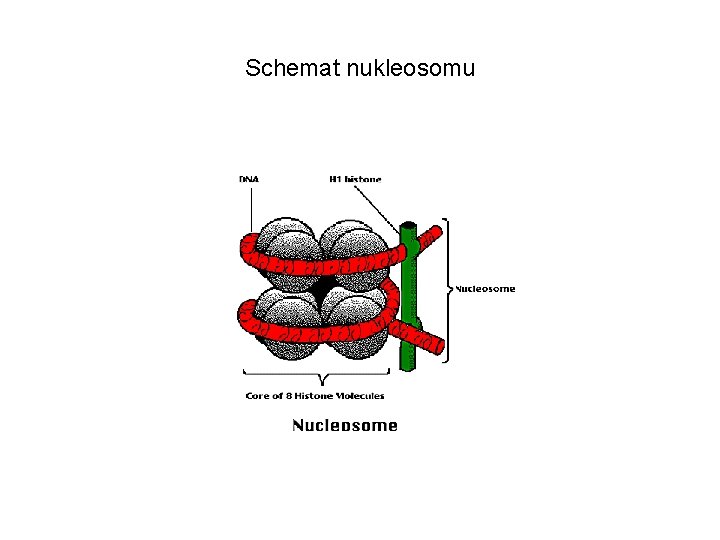
Schemat nukleosomu
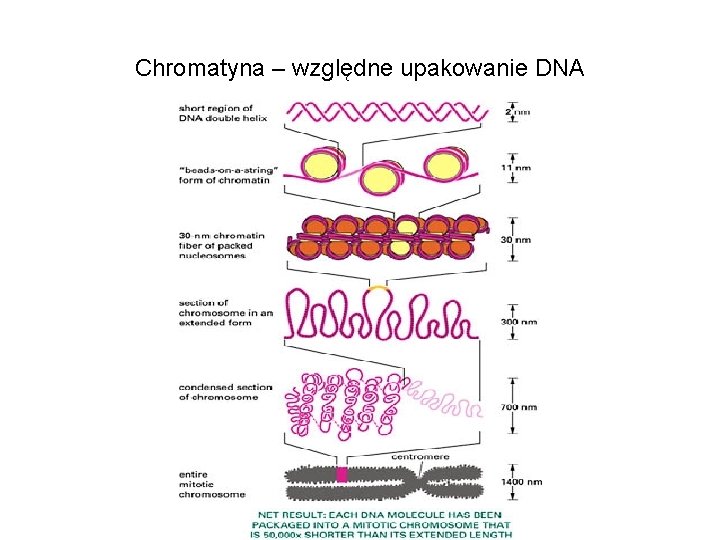
Chromatyna – względne upakowanie DNA
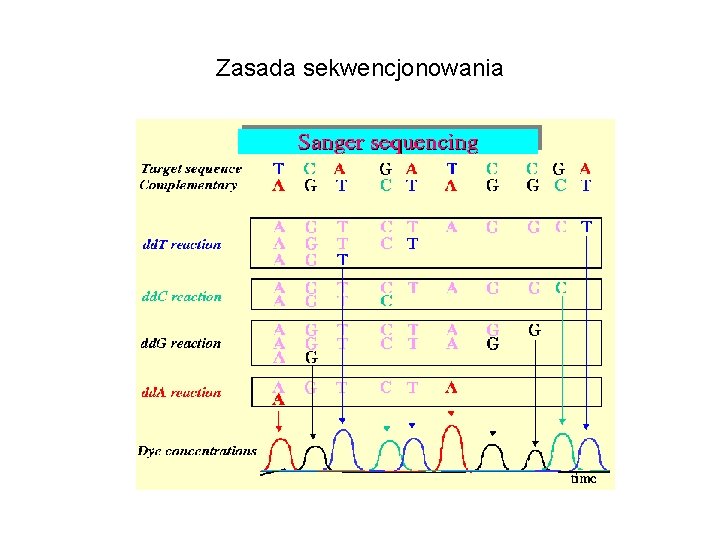
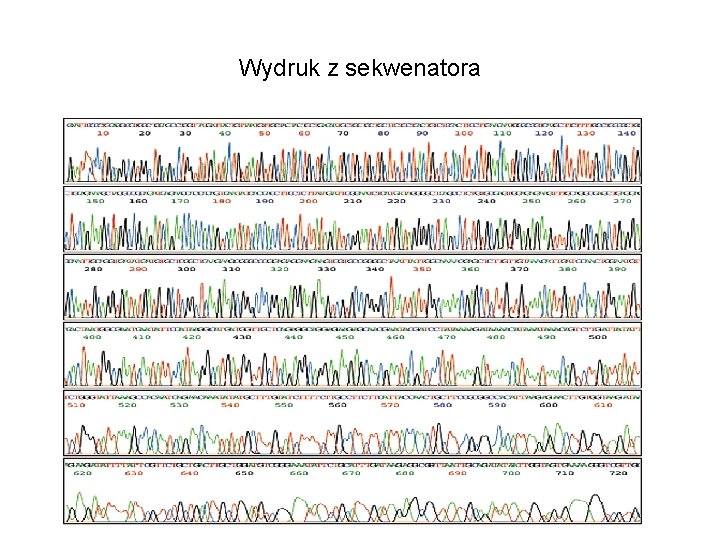
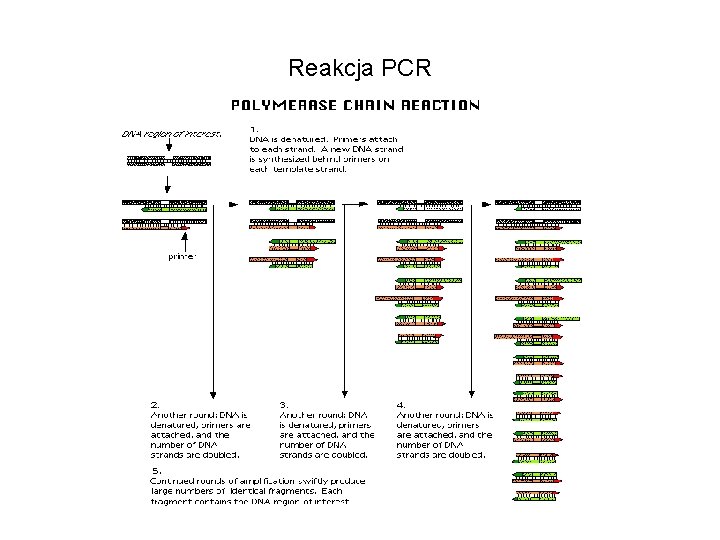
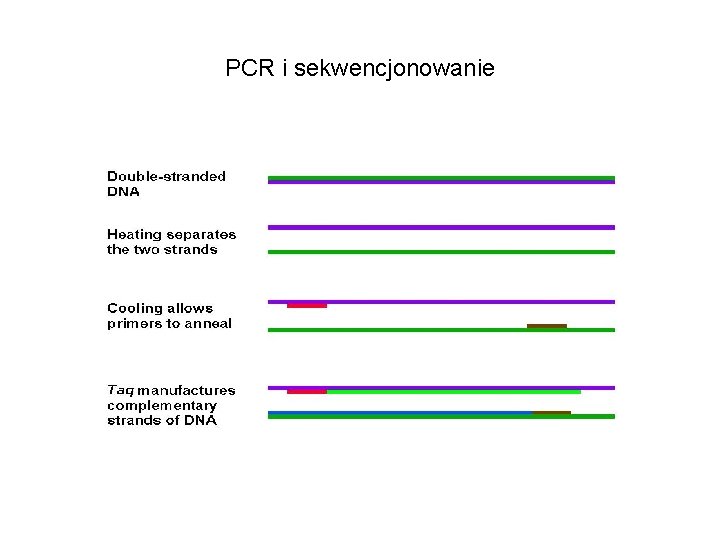
Zasada sekwencjonowania
Wydruk z sekwenatora
Reakcja PCR
PCR i sekwencjonowanie
Geny w chromosomach
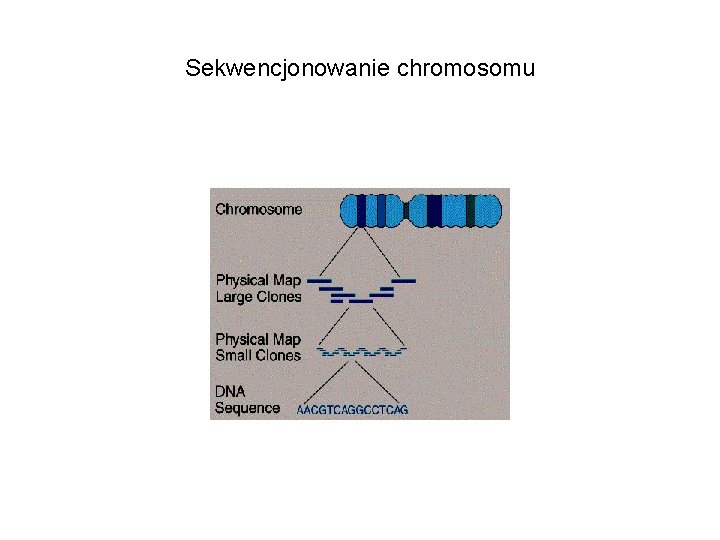
Sekwencjonowanie chromosomu
Mapa genowa fragmentu chromosomu Arabidopsis
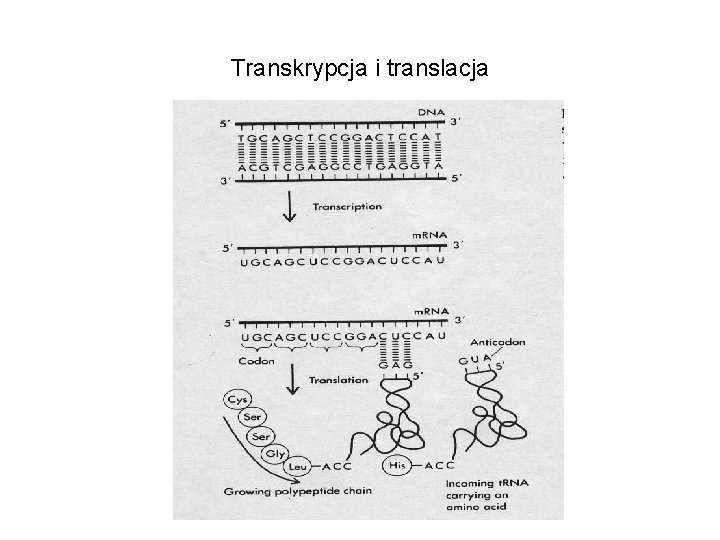
Transkrypcja i translacja
Rodzaje RNA - I • t. RNA – [Przenośnikowy, transportujący], mały (65 -110 nukleotydów), przenosi aktywowane aminokwasy do rybosomu, długożyjący (stabilny). • r. RNA – [Rybosomowy], tworzy (wraz z białkami) rybosomy. Jeden z r. RNA jest katalizatorem tworzenia wiązania peptydowego (rybozymem). Różne rodzaje i wielkość (4700 – 120 zasad). r. RNA eukariontów i prokariontów zasadniczo się różnią. Długożyjący (stabilny) • m. RNA –[Matrycowy, Informacyjny], nośnik przepisanej z DNA informacji o sekwencji aminokwasów w białku. Ma cechy umożliwiające przyłączanie się do rybosomów i udział w syntezie białka. Wielkość zależna od wielkości kodowanego polipeptytdu. Zróżnicowana trwałość, raczej mało stabilny.
Rodzaje RNA - II • Niekodujace RNA (nc. RNA) – nie zaangażowane bezpośrednio w syntezę białka. Biorą udział w wielu innych procesach komórkowych, jak: regulacja transkrypcji, replikacji DNA, obróbki i modyfikacji innych cząsteczek RNA (transkryptów). • Długość od 21 do > 10 000 nukleotydów, w zależności od rodzaju i funkcji • Przykłady: XIST RNA – inaktywuje jeden z dwóch chromosomów X u samic; sn. RNA – obróbka dużych prekursorów RNA w jądrze; sno. RNA – udział w tworzeniu rybosomów i telomerów; mi. RNA – udział w regulacji ekspresji m. RNA; si. RNA – małe RNA, wiążą się do komplementarnych sekwencji RNA znacząc je w ten sposób dla systemu niszczącego (endonukleazy RNA).
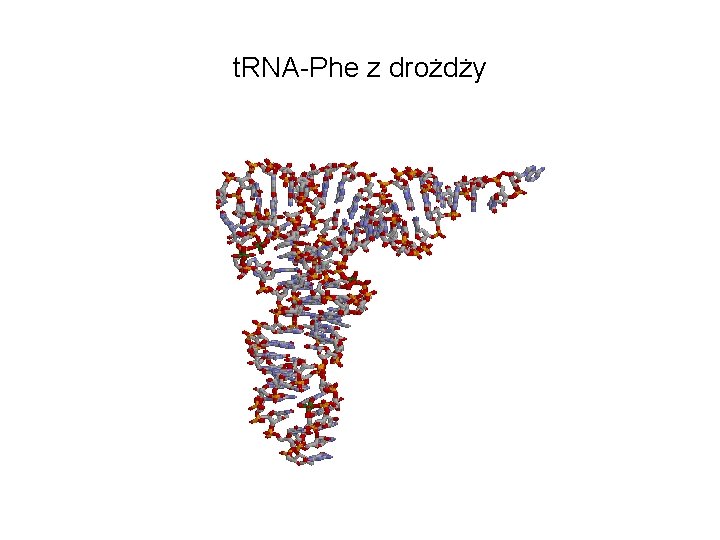
t. RNA-Phe z drożdży
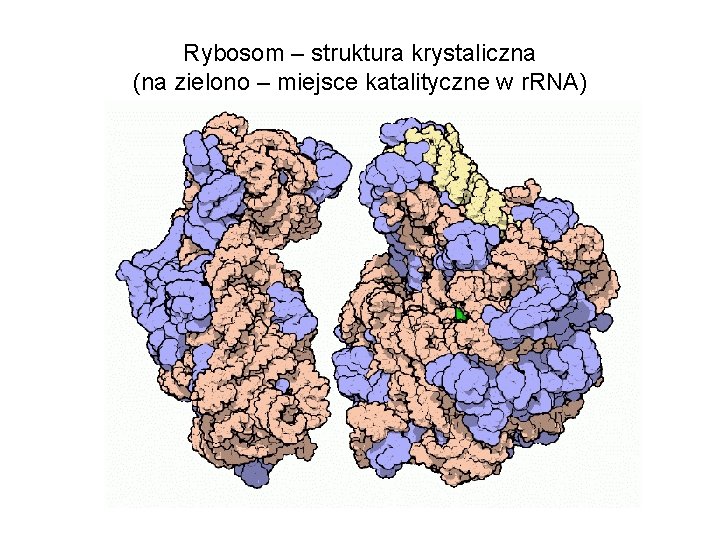
Rybosom – struktura krystaliczna (na zielono – miejsce katalityczne w r. RNA)
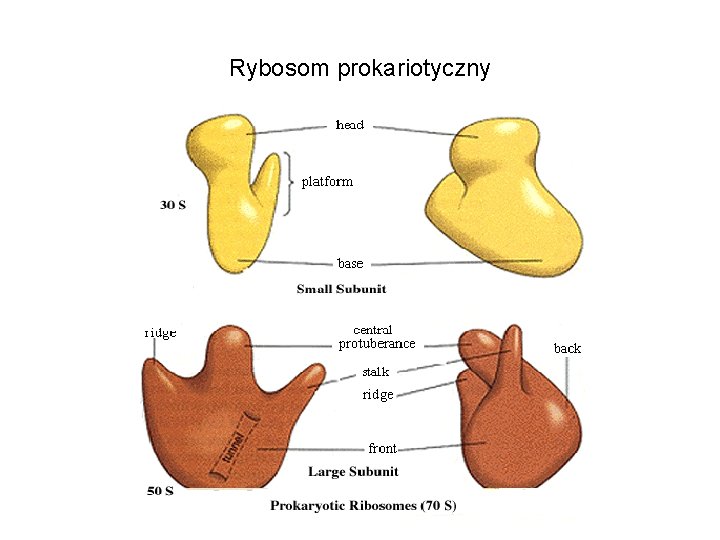
Rybosom prokariotyczny
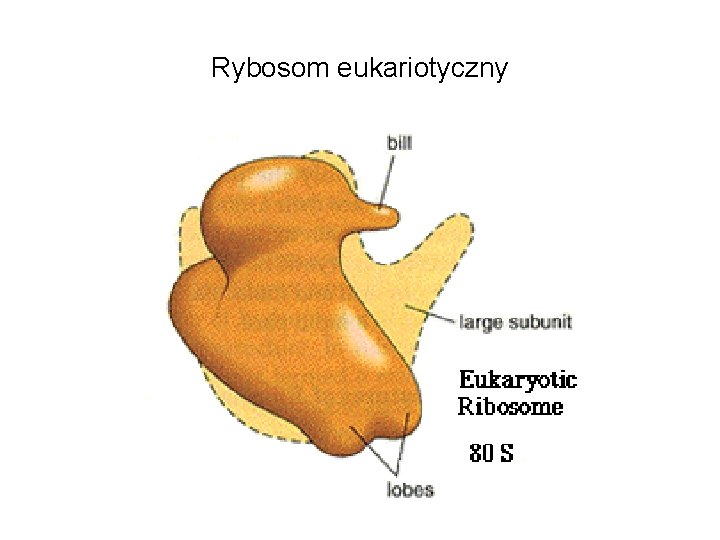
Rybosom eukariotyczny
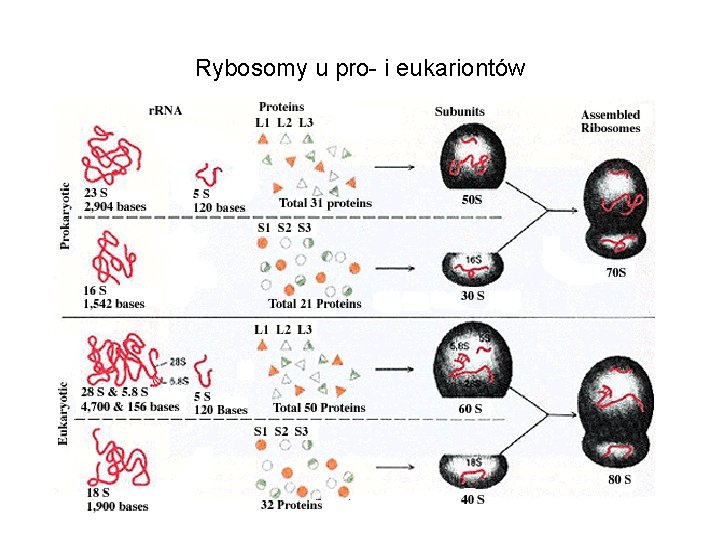
Rybosomy u pro- i eukariontów
Cechy m. RNA • Różnią się u pro- i eukariontów. • Zawierają rejony nie kodujące białka (5’- i 3’ UTR – untranslated regions). • Zawierają sygnał startu translacji, zwykle kodon AUG. Nazewnictwo sekwencji: ‘upstream-’, ‘downstream-’ względem AUG, ponieważ synteza białka biegnie w kierunku 5’->3’. • Prokariotyczny m. RNA ma ‘upstream’ bogatą w puryny sekwencje konsensusową Shine-Delgano (SD), umożliwiającą przyłączenie do rybosomu (parowanie z 16 S r. RNA). • Eukariotyczny m. RNA ma specjalne sekwencje na każdym z końców. 5’ UTR zawiera 5’CAP złożony z m 7 Gppp->5’O – za nim niekiedy jeden, dwa nukleotydy z grupą metylową na rybozie. Dalej 5’UTR (30 -kilkaset nukleotydów), często ze strukturą II-rzędową. 3’UTR (50 -300 nukleotydów), struktura II-rzędowa, za nim ogon poli. A (20 -200 nukleotydów).
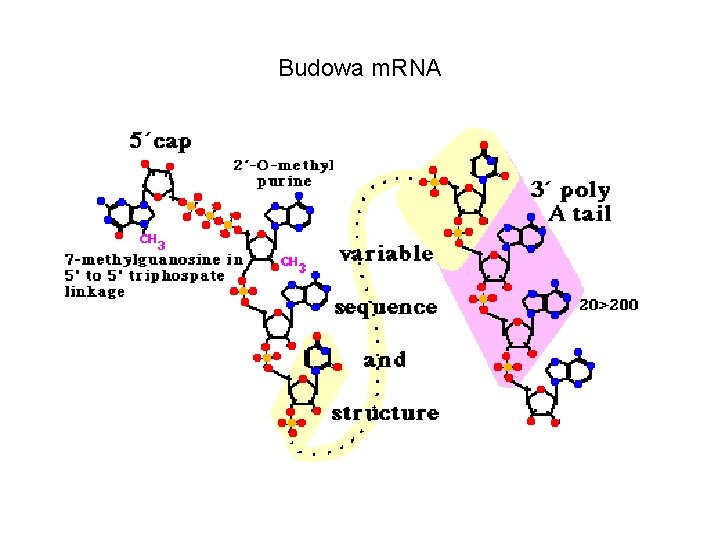
Budowa m. RNA
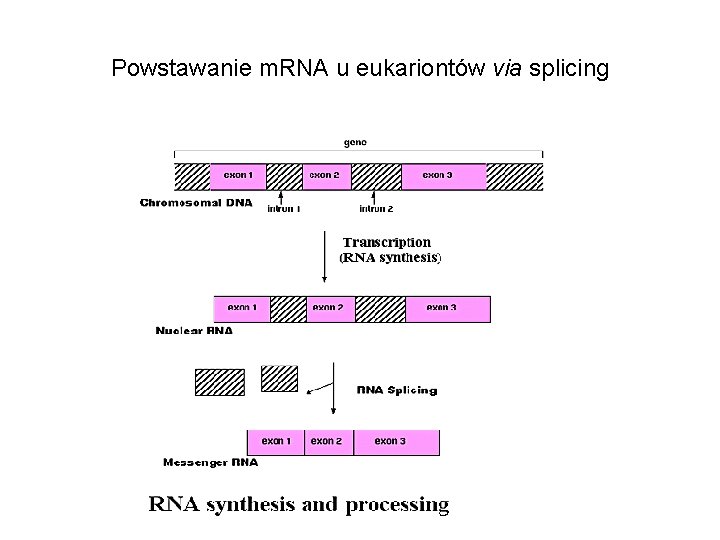
Powstawanie m. RNA u eukariontów via splicing
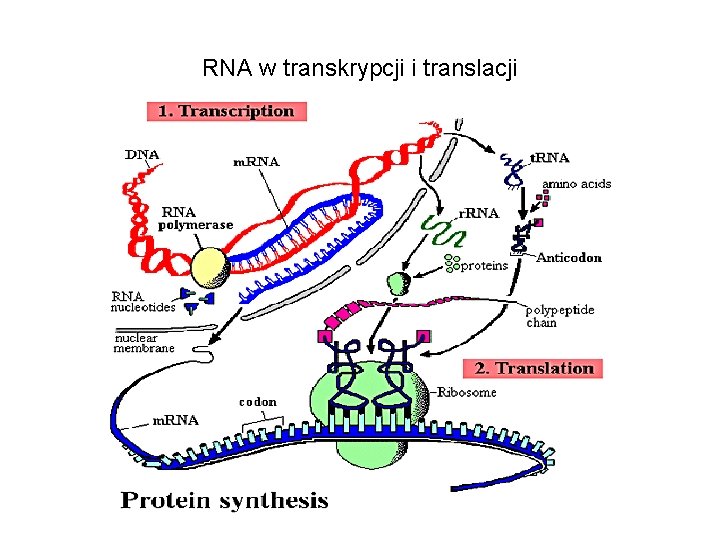
RNA w transkrypcji i translacji
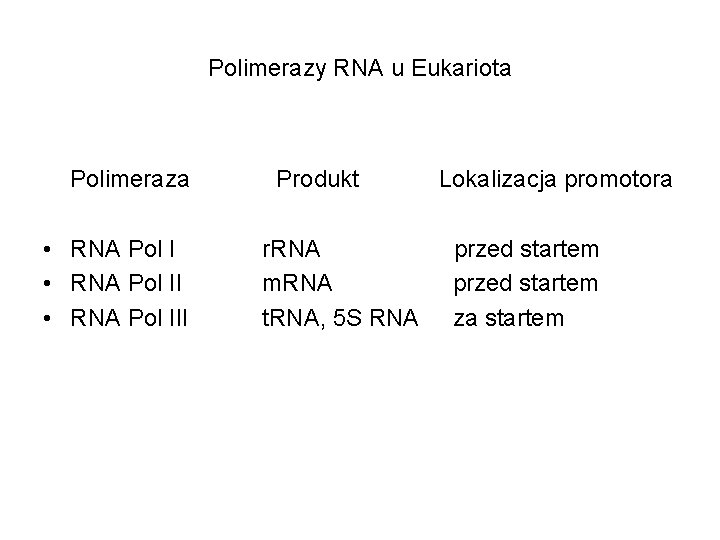
Polimerazy RNA u Eukariota Polimeraza • RNA Pol III Produkt r. RNA m. RNA t. RNA, 5 S RNA Lokalizacja promotora przed startem za startem
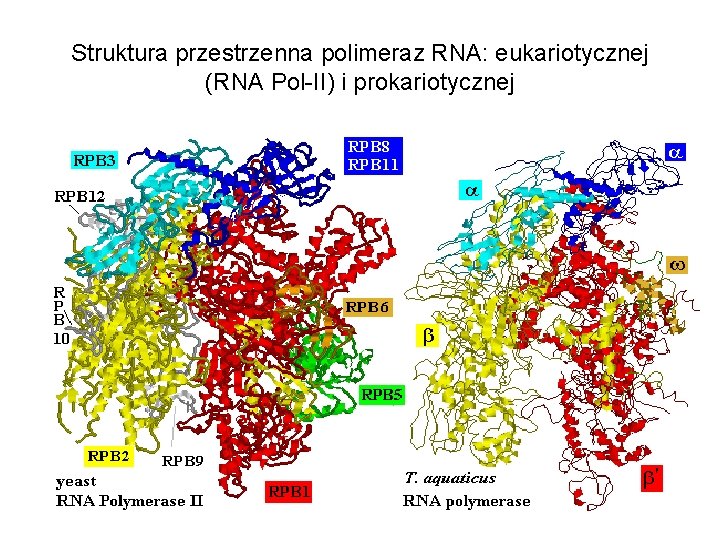
Struktura przestrzenna polimeraz RNA: eukariotycznej (RNA Pol-II) i prokariotycznej
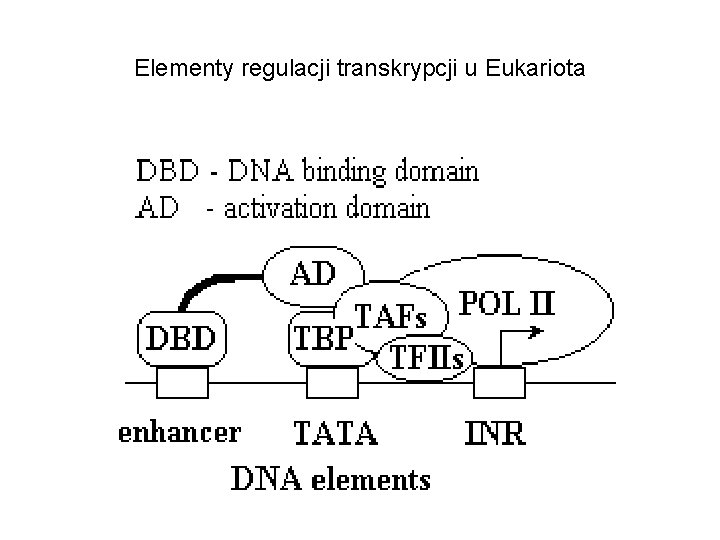
Inicjacja transkrypcji u Eukaryota • Dwie klasy sekwencji cis-regulatorowych: promotory i enhancery. • Promotory – zbudowane modułowo z tzw. elementów promotorowych, tj. krótkich konserwowanych sekwencji DNA występujących w różnych kombinacjach, w odległości około 200 pz od miejsca startu transkrypcji. . • Elementy promotorowe są rozpoznawane przez dodatnie regulatory działające w trans, zwane CZYNNIKAMI TRANSKRYPCYJNYMI (TF). Każdy TF musi mieć dwie domeny: DNA-Binding Domain (DBD) wiążącą się do specyficznej sekwencji i Activating Domain (AD), rozpoznająca specyficznie białko. • Enhancery – zbudowane modułowo, podobnie jak promotory • Rozpoznawane przez dodatnie regulatory typu TF, działające w trans • Mogą być zlokalizowane tysiące pz przed lub za miejscem startu transkrypcji, a także wewnątrz genu.
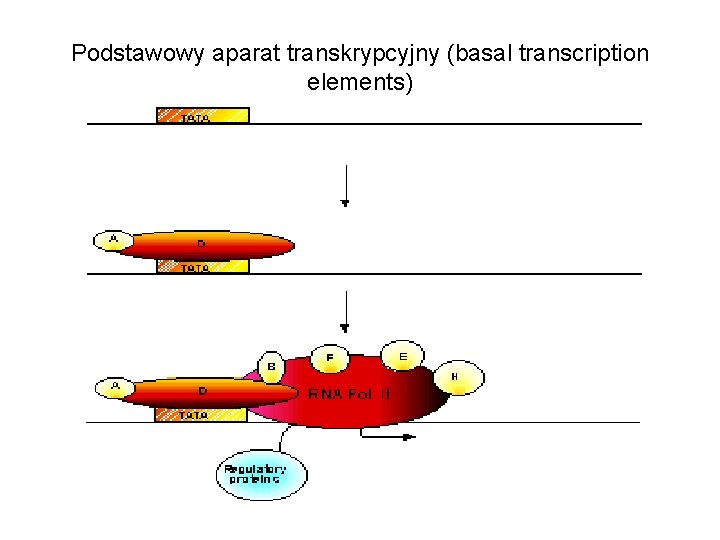
Inicjacja Pol II • Wszystkie kompleksy pre-inicjacyjne zawierają TBP (TATA-Binding protein) • TBP oddziałuje z Pol II i umożliwia jej przyłączenie się do DNA • Konserwowane sekwencje w promotorach pol II: TATA Box (ATATAAA); CAAT Box (GGCCAATCT); GC Box (GGGCGG); Oktamer (ATTTGCAT) • Żadna z konserwowanych sekwencji nie jest niezbędna
Podstawowy aparat transkrypcyjny (basal transcription elements)
Elementy regulacji transkrypcji u Eukariota
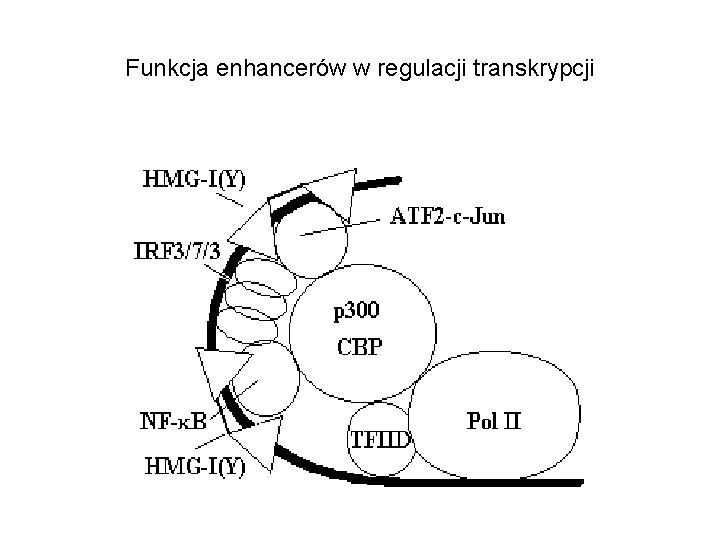
Funkcja enhancerów w regulacji transkrypcji
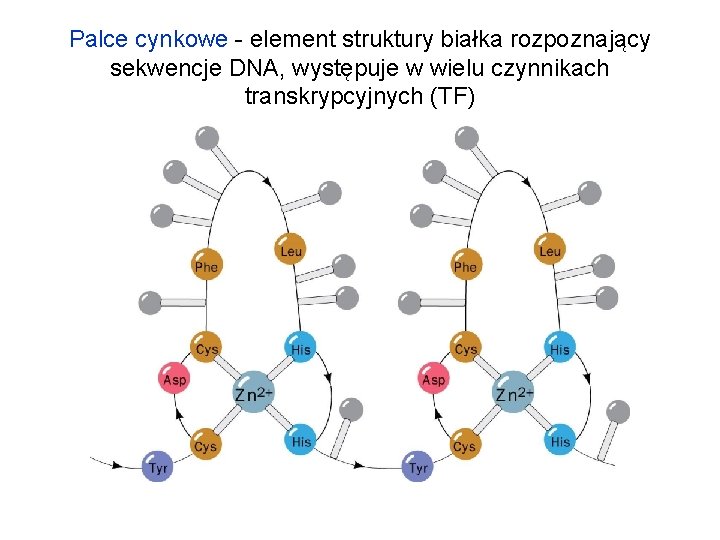
Palce cynkowe - element struktury białka rozpoznający sekwencje DNA, występuje w wielu czynnikach transkrypcyjnych (TF)
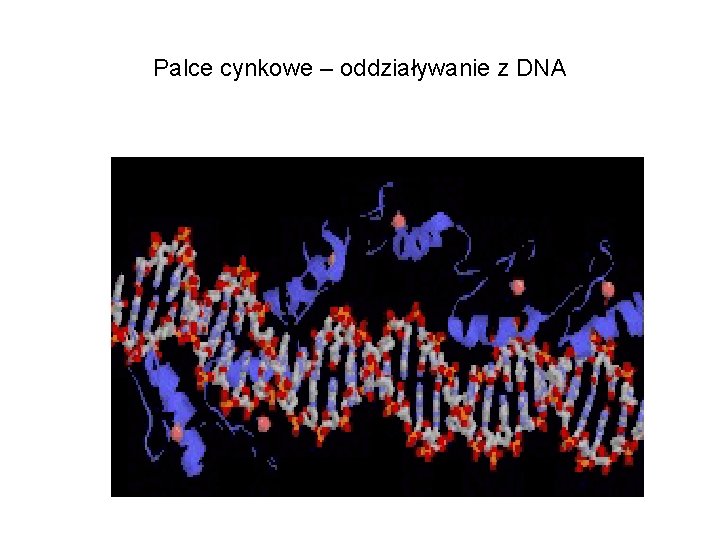
Palce cynkowe – oddziaływanie z DNA
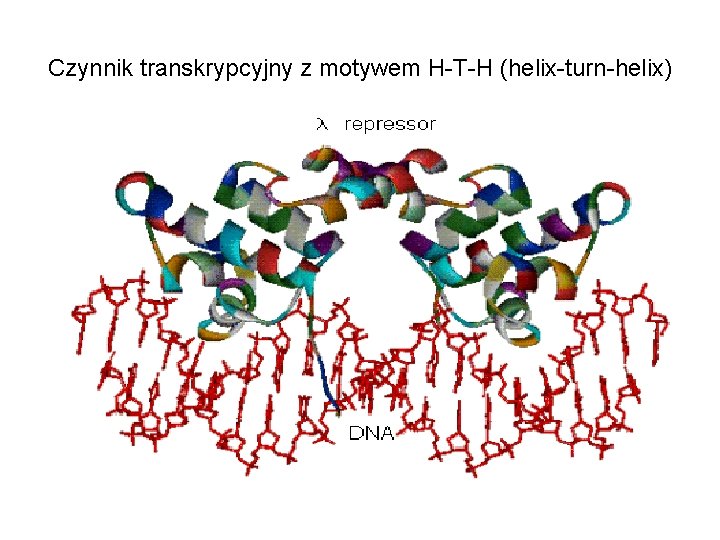
Czynnik transkrypcyjny z motywem H-T-H (helix-turn-helix)
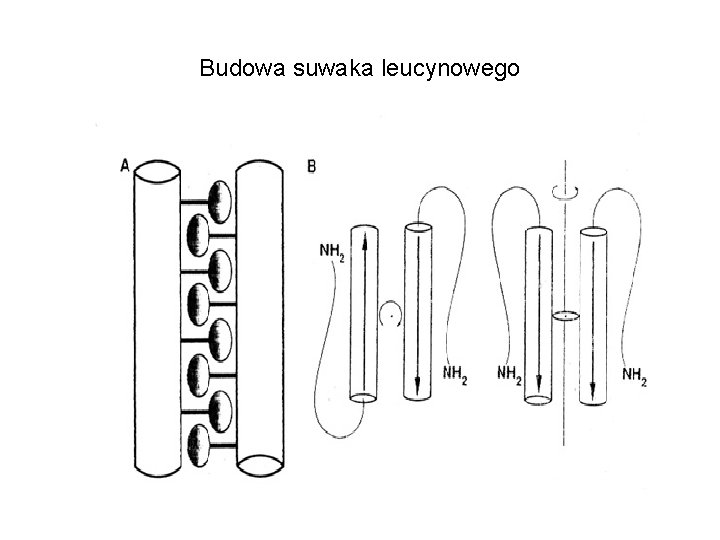
Budowa suwaka leucynowego
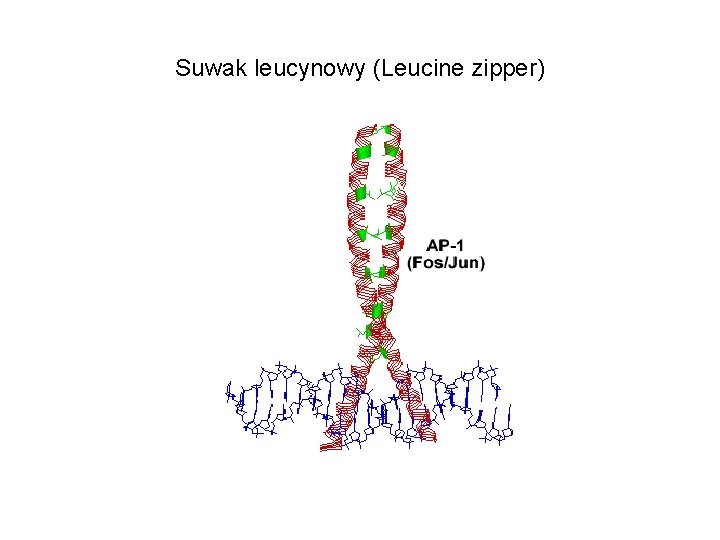
Suwak leucynowy (Leucine zipper)
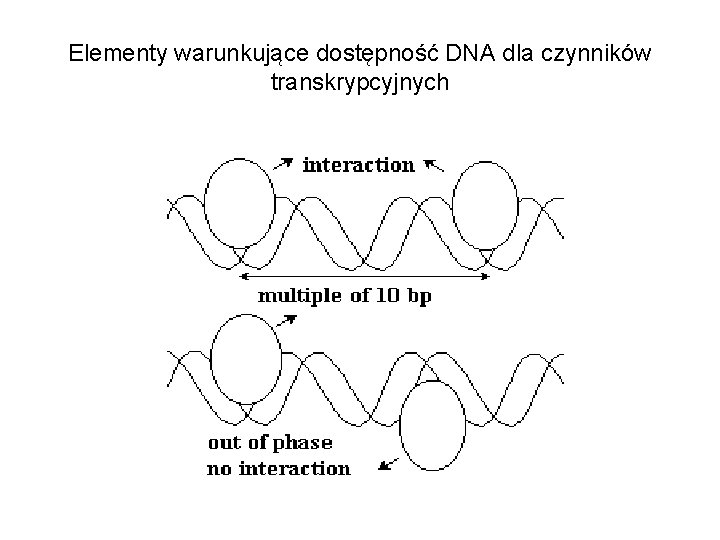
Elementy warunkujące dostępność DNA dla czynników transkrypcyjnych
- Slides: 71