
Biochemische Reaktionen Gliederung 1 Einfhrung 1 Das Massenwirkungsgesetz
Biochemische Reaktionen
Gliederung 1. Einführung 1. Das Massenwirkungsgesetz 1. Enzyme 3. 1 Enzymkinetik 3. 2 Modelle 3. 2. 1 Gleichgewichtsapproximation 3. 2. 2 Quasi – Stationaritätsapproximation 3. 3 Enzyminhibition 3. 3. 1 kompetitive Inhibition 3. 3. 2 allosterische Inhibition 3. 3. 3 Kooperativität 3. 4 Das Monod – Wyman – Modell 4. Glykolyse und Glykolytische Oszillation
1. Einführung audesapere. ch/homoeopathie/neuewegekrebs. html - 37 k -
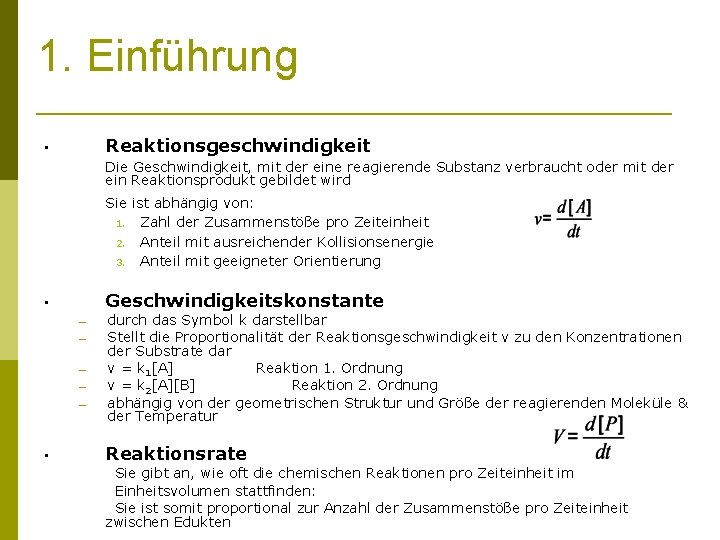
1. Einführung Reaktionsgeschwindigkeit • Die Geschwindigkeit, mit der eine reagierende Substanz verbraucht oder mit der ein Reaktionsprodukt gebildet wird Sie ist abhängig von: 1. Zahl der Zusammenstöße pro Zeiteinheit 2. Anteil mit ausreichender Kollisionsenergie 3. Anteil mit geeigneter Orientierung Geschwindigkeitskonstante • – – – • durch das Symbol k darstellbar Stellt die Proportionalität der Reaktionsgeschwindigkeit v zu den Konzentrationen der Substrate dar v = k 1[A] Reaktion 1. Ordnung v = k 2[A][B] Reaktion 2. Ordnung abhängig von der geometrischen Struktur und Größe der reagierenden Moleküle & der Temperatur Reaktionsrate Sie gibt an, wie oft die chemischen Reaktionen pro Zeiteinheit im Einheitsvolumen stattfinden: Sie ist somit proportional zur Anzahl der Zusammenstöße pro Zeiteinheit zwischen Edukten
1. Einführung • Reaktion 1. Ordnung A B die Reaktionsgeschwindigkeit ist proportional zur Konzentration von A • Reaktion 2. Ordnung A+B C+D die Reaktionsgeschwindigkeit hängt von der Konzentration zweier Reaktionsteilnehmer abhängt
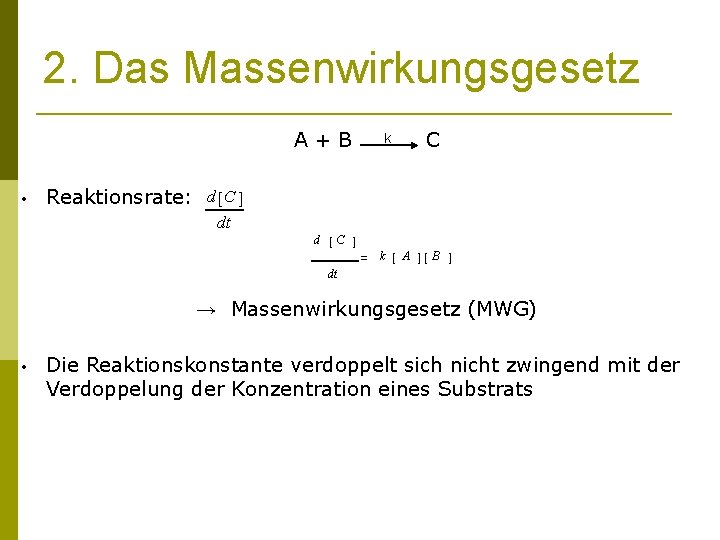
2. Das Massenwirkungsgesetz k A + B C • Reaktionsrate: d [ C ] dt d [C ] = k [ A ][ B ] dt → Massenwirkungsgesetz (MWG) • Die Reaktionskonstante verdoppelt sich nicht zwingend mit der Verdoppelung der Konzentration eines Substrats
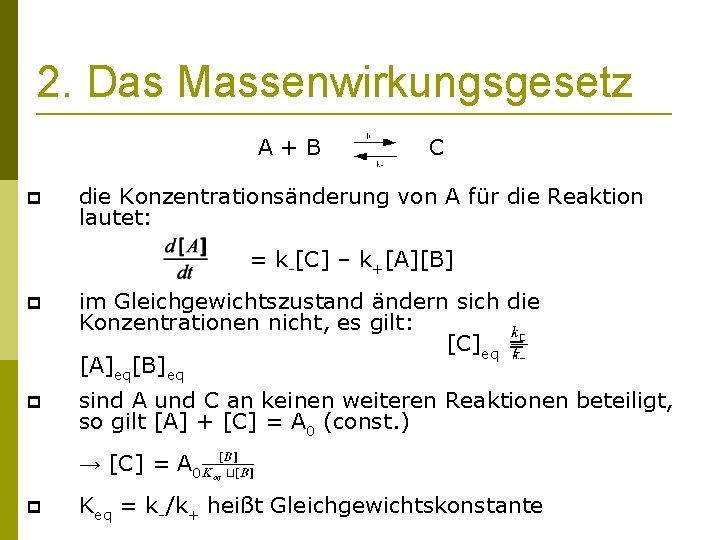
2. Das Massenwirkungsgesetz A+B C die Konzentrationsänderung von A für die Reaktion lautet: = k-[C] – k+[A][B] im Gleichgewichtszustand ändern sich die Konzentrationen nicht, es gilt: [C]eq = [A]eq[B]eq sind A und C an keinen weiteren Reaktionen beteiligt, so gilt [A] + [C] = A 0 (const. ) → [C] = A 0 Keq = k-/k+ heißt Gleichgewichtskonstante
2. Das Massenwirkungsgesetz Keq hat keine feste Einheit, sie richtet sich nach der jeweiligen Reaktionsgleichung Keq <<1 → hohe Affinität zwischen A und B [B] = Keq: die Hälfte von A liegt in gebundener Form vor
2. Das Massenwirkungsgesetz Das MWG gilt für reversible Reaktionen, die den Gleichgewichtszustand erreicht haben. Es gibt den Zusammenhang zwischen den Aktivitäten der Edukte und der Produkte einer Reaktion im chemischen Gleichgewicht an.
3. Enzyme „http: //www. webmed. ch/Archiv_akuelle_Meldungen/Archiv_Bilder/catalase 2%20(Enzym). gif“
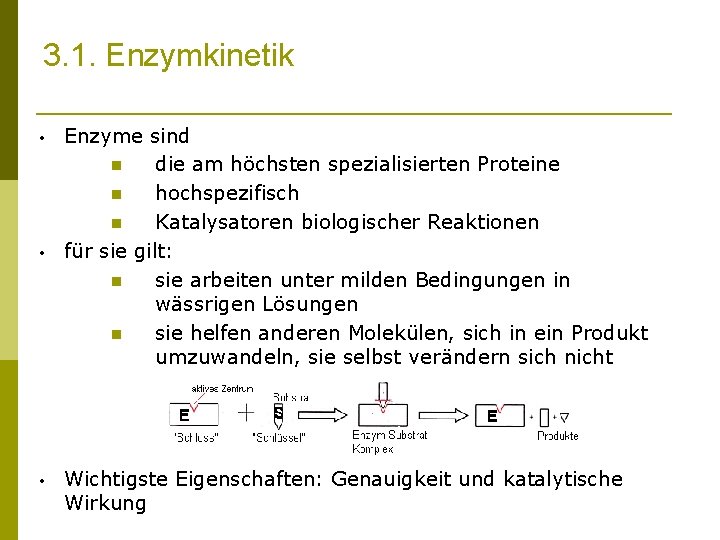
3. 1. Enzymkinetik • • • Enzyme sind die am höchsten spezialisierten Proteine hochspezifisch Katalysatoren biologischer Reaktionen für sie gilt: sie arbeiten unter milden Bedingungen in wässrigen Lösungen sie helfen anderen Molekülen, sich in ein Produkt umzuwandeln, sie selbst verändern sich nicht Wichtigste Eigenschaften: Genauigkeit und katalytische Wirkung
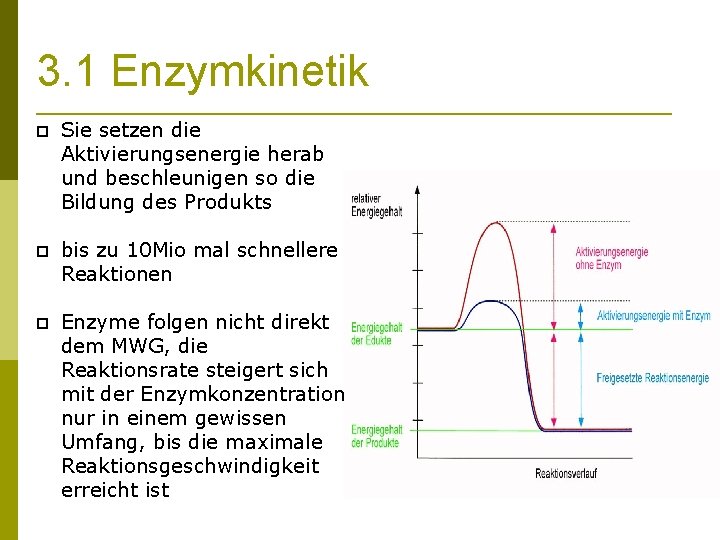
3. 1 Enzymkinetik Sie setzen die Aktivierungsenergie herab und beschleunigen so die Bildung des Produkts bis zu 10 Mio mal schnellere Reaktionen Enzyme folgen nicht direkt dem MWG, die Reaktionsrate steigert sich mit der Enzymkonzentration nur in einem gewissen Umfang, bis die maximale Reaktionsgeschwindigkeit erreicht ist
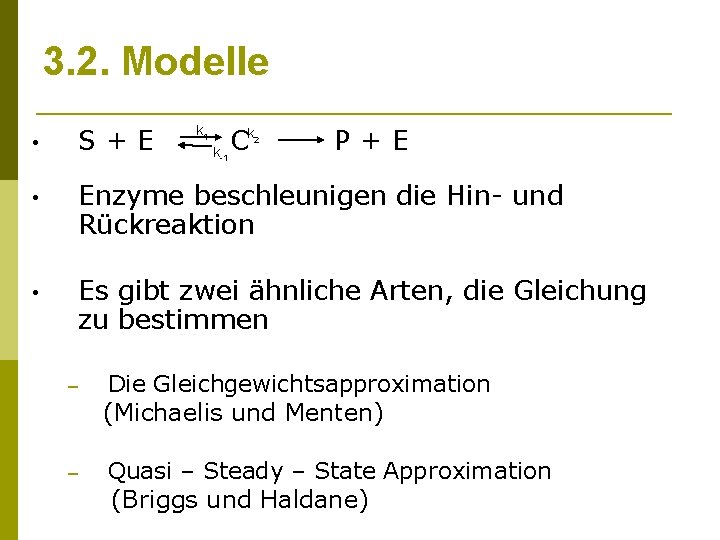
3. 2. Modelle k 1 • S+E • Enzyme beschleunigen die Hin- und Rückreaktion • Es gibt zwei ähnliche Arten, die Gleichung zu bestimmen k-1 Ck 2 P+E – Die Gleichgewichtsapproximation (Michaelis und Menten) – Quasi – Steady – State Approximation (Briggs und Haldane)
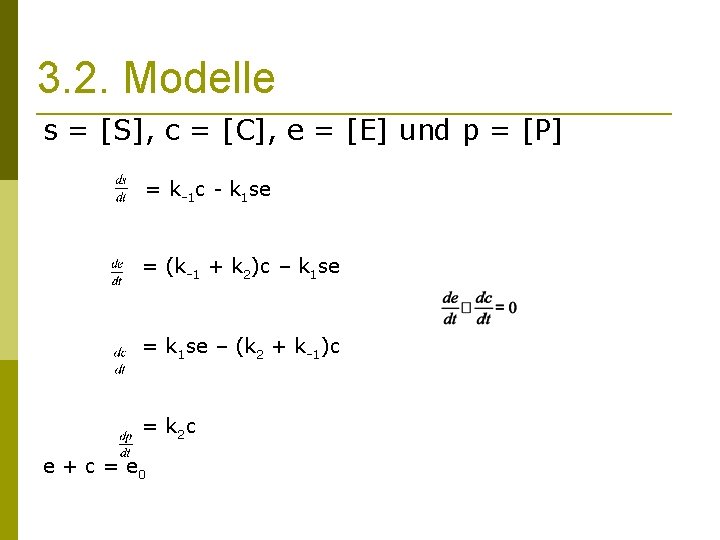
3. 2. Modelle s = [S], c = [C], e = [E] und p = [P] = k-1 c - k 1 se = (k-1 + k 2)c – k 1 se = k 1 se – (k 2 + k-1)c = k 2 c e + c = e 0
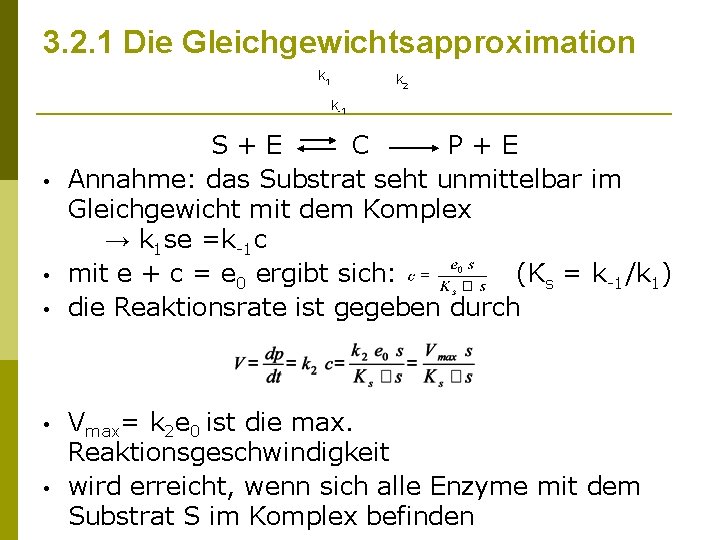
3. 2. 1 Die Gleichgewichtsapproximation k 1 k 2 k-1 • • • S+E C P+E Annahme: das Substrat seht unmittelbar im Gleichgewicht mit dem Komplex → k 1 se =k-1 c mit e + c = e 0 ergibt sich: (Ks = k-1/k 1) die Reaktionsrate ist gegeben durch Vmax= k 2 e 0 ist die max. Reaktionsgeschwindigkeit wird erreicht, wenn sich alle Enzyme mit dem Substrat S im Komplex befinden
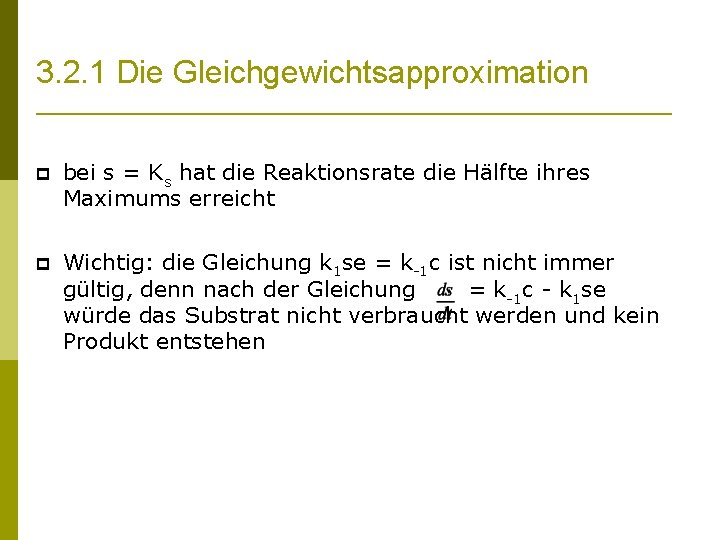
3. 2. 1 Die Gleichgewichtsapproximation bei s = Ks hat die Reaktionsrate die Hälfte ihres Maximums erreicht Wichtig: die Gleichung k 1 se = k-1 c ist nicht immer gültig, denn nach der Gleichung = k-1 c - k 1 se würde das Substrat nicht verbraucht werden und kein Produkt entstehen
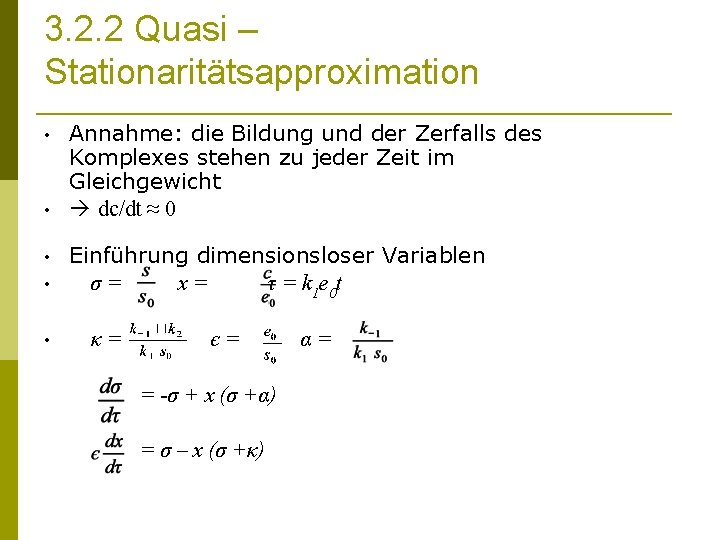
3. 2. 2 Quasi – Stationaritätsapproximation • • • Annahme: die Bildung und der Zerfalls des Komplexes stehen zu jeder Zeit im Gleichgewicht dc/dt ≈ 0 Einführung dimensionsloser Variablen σ= x= τ = k 1 e 0 t κ= є= = -σ + x (σ +α) = σ – x (σ +κ) α=
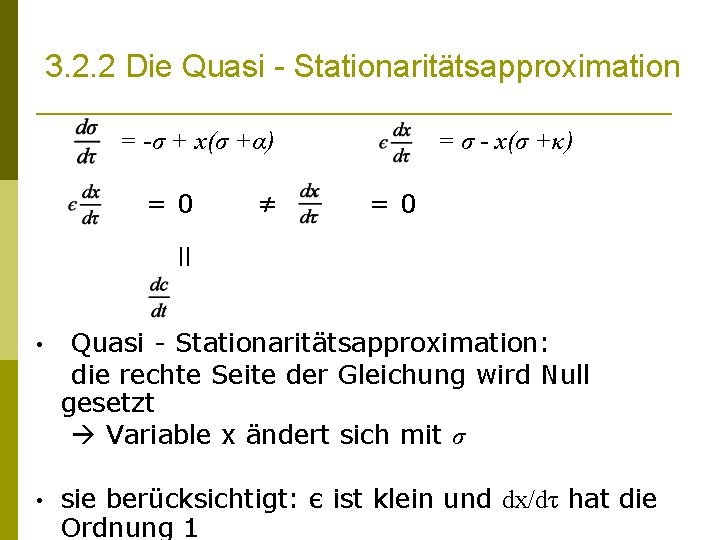
3. 2. 2 Die Quasi - Stationaritätsapproximation = -σ + x(σ +α) =0 ≠ = σ - x(σ +κ) =0 II • Quasi - Stationaritätsapproximation: die rechte Seite der Gleichung wird Null gesetzt Variable x ändert sich mit σ • sie berücksichtigt: є ist klein und dx/dτ hat die Ordnung 1
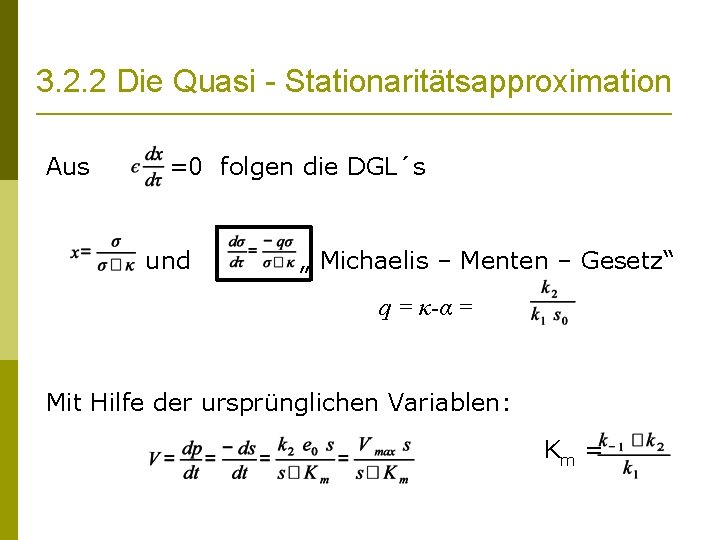
3. 2. 2 Die Quasi - Stationaritätsapproximation Aus =0 folgen die DGL´s und „ Michaelis – Menten – Gesetz“ q = κ-α = Mit Hilfe der ursprünglichen Variablen: Km =
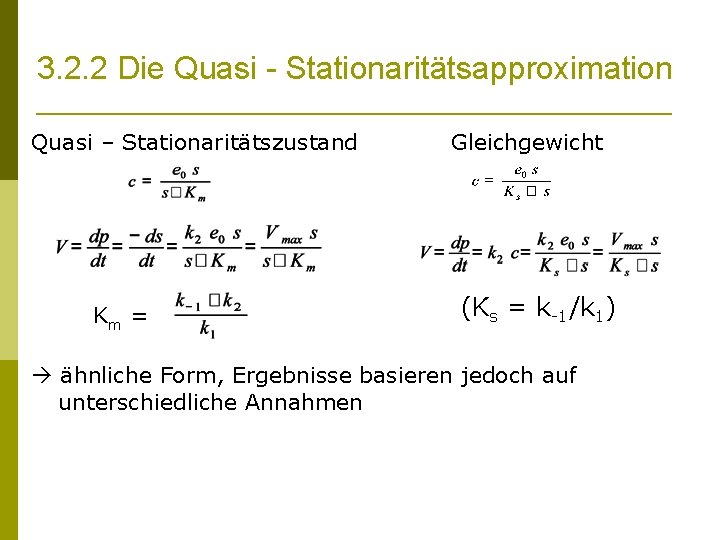
3. 2. 2 Die Quasi - Stationaritätsapproximation Quasi – Stationaritätszustand Km = Gleichgewicht (Ks = k-1/k 1) ähnliche Form, Ergebnisse basieren jedoch auf unterschiedliche Annahmen
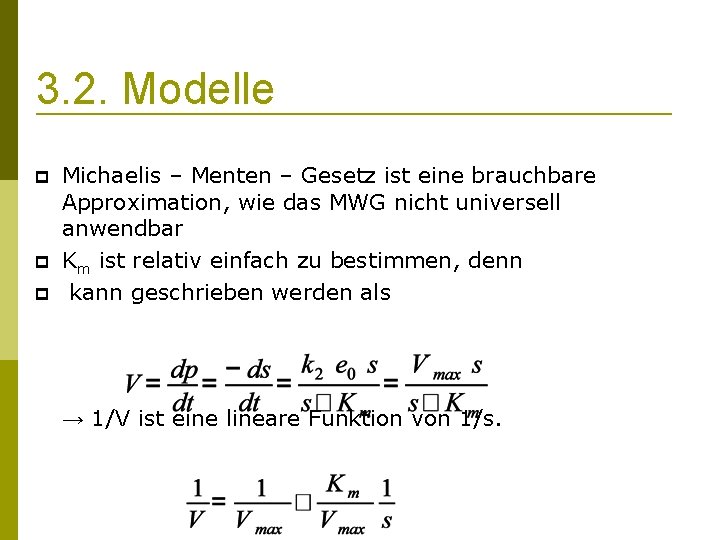
3. 2. Modelle Michaelis – Menten – Gesetz ist eine brauchbare Approximation, wie das MWG nicht universell anwendbar Km ist relativ einfach zu bestimmen, denn kann geschrieben werden als → 1/V ist eine lineare Funktion von 1/s.
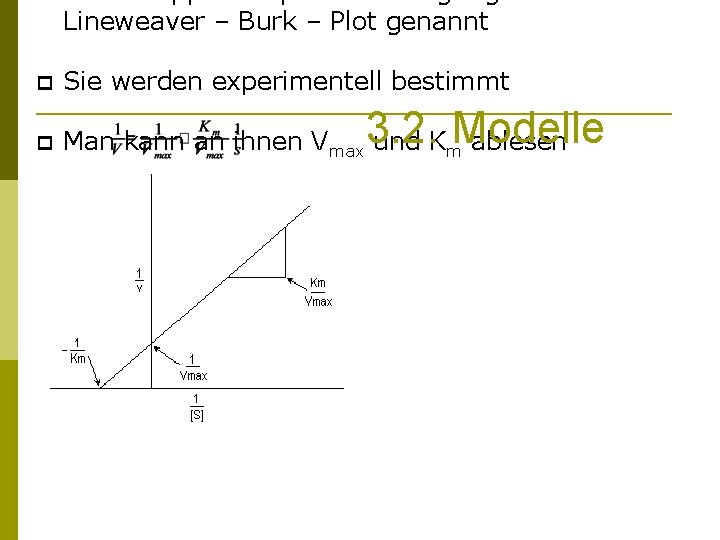
Diese doppeltreziproke Auftragung wird Lineweaver – Burk – Plot genannt Sie werden experimentell bestimmt Man kann an ihnen Vmax und Km ablesen 3. 2. Modelle
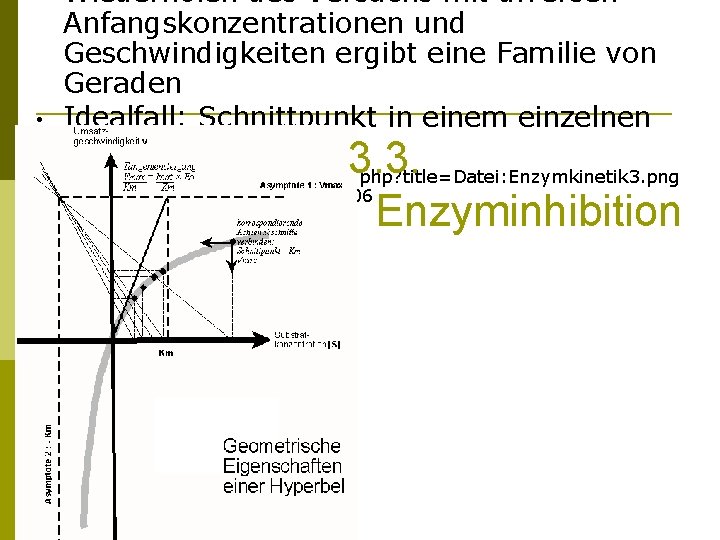
• • • Wiederholen des Versuchs mit diversen Anfangskonzentrationen und Geschwindigkeiten ergibt eine Familie von Geraden Idealfall: Schnittpunkt in einem einzelnen Punkt 3. 3. Enzyminhibition http: //de. wikipedia. org/w/index. php? title=Datei: Enzymkinetik 3. png &filetimestamp=20090302154106
3. 3. Enzyminhibition • Hemmt die katalytische Wirkung • Allgemeine Eigenschaft von Enzymreaktion • wichtig zur Kontrolle der Enzymaktivität • irreversible Hemmstoffe oder katalytische Gifte: sie senken die Enzymaktivität auf 0 • Das Enzymmolekül ist für gewöhnlich ein sehr langes Protein, meist weitaus länger als das Substratmolekül, dessen Reaktion katalysiert wird
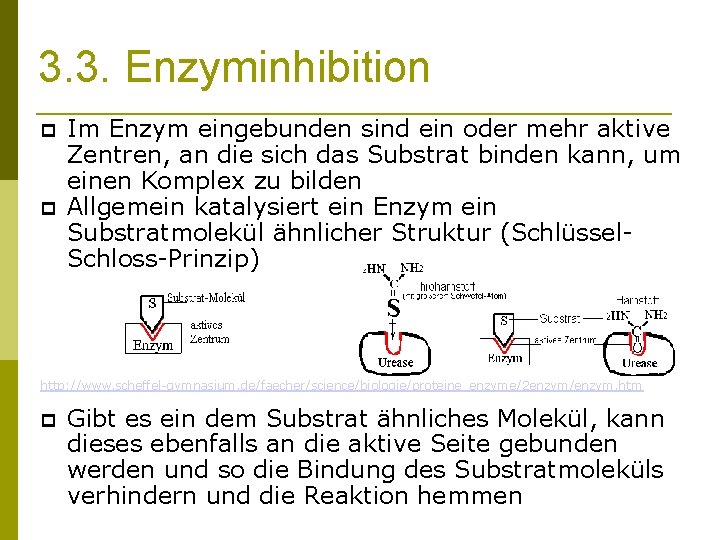
3. 3. Enzyminhibition Im Enzym eingebunden sind ein oder mehr aktive Zentren, an die sich das Substrat binden kann, um einen Komplex zu bilden Allgemein katalysiert ein Enzym ein Substratmolekül ähnlicher Struktur (Schlüssel. Schloss-Prinzip) http: //www. scheffel-gymnasium. de/faecher/science/biologie/proteine_enzyme/2 enzym/enzym. htm Gibt es ein dem Substrat ähnliches Molekül, kann dieses ebenfalls an die aktive Seite gebunden werden und so die Bindung des Substratmoleküls verhindern und die Reaktion hemmen
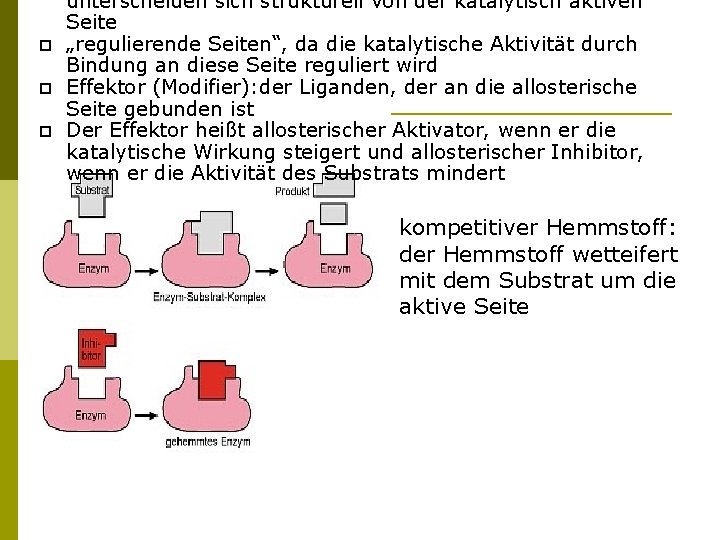
unterscheiden sich strukturell von der katalytisch aktiven Seite „regulierende Seiten“, da die katalytische Aktivität durch Bindung an diese Seite reguliert wird Effektor (Modifier): der Liganden, der an die allosterische Seite gebunden ist Der Effektor heißt allosterischer Aktivator, wenn er die • katalytische Wirkung steigert und allosterischer Inhibitor, wenn er die Aktivität des Substrats mindert • kompetitiver Hemmstoff: der Hemmstoff wetteifert mit dem Substrat um die aktive Seite
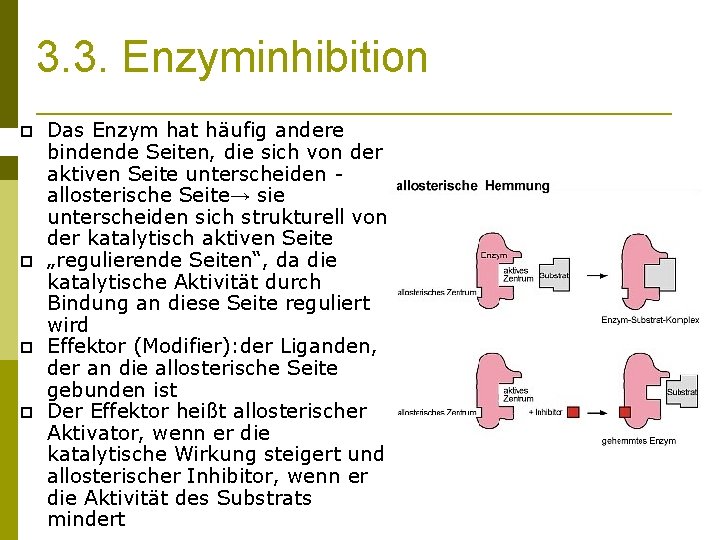
3. 3. Enzyminhibition Das Enzym hat häufig andere bindende Seiten, die sich von der aktiven Seite unterscheiden allosterische Seite→ sie unterscheiden sich strukturell von der katalytisch aktiven Seite „regulierende Seiten“, da die katalytische Aktivität durch Bindung an diese Seite reguliert wird Effektor (Modifier): der Liganden, der an die allosterische Seite gebunden ist Der Effektor heißt allosterischer Aktivator, wenn er die katalytische Wirkung steigert und allosterischer Inhibitor, wenn er die Aktivität des Substrats mindert
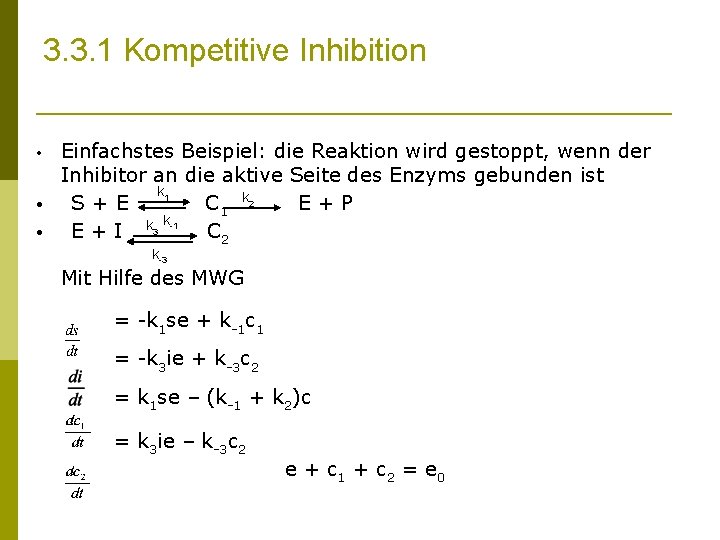
3. 3. 1 Kompetitive Inhibition • • • Einfachstes Beispiel: die Reaktion wird gestoppt, wenn der Inhibitor an die aktive Seite des Enzyms gebunden ist k 1 S+E C 1 k 2 E+P k E + I k 3 -1 C 2 k-3 Mit Hilfe des MWG = -k 1 se + k-1 c 1 = -k 3 ie + k-3 c 2 = k 1 se – (k-1 + k 2)c = k 3 ie – k-3 c 2 e + c 1 + c 2 = e 0
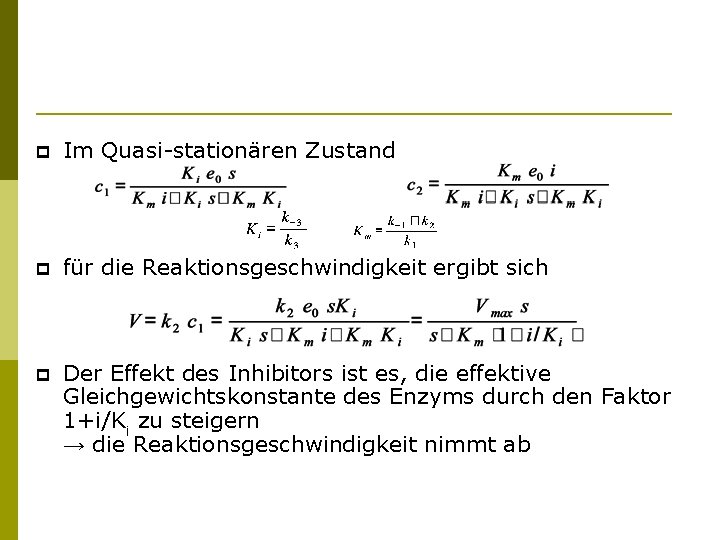
Im Quasi-stationären Zustand für die Reaktionsgeschwindigkeit ergibt sich Der Effekt des Inhibitors ist es, die effektive Gleichgewichtskonstante des Enzyms durch den Faktor 1+i/Ki zu steigern → die Reaktionsgeschwindigkeit nimmt ab
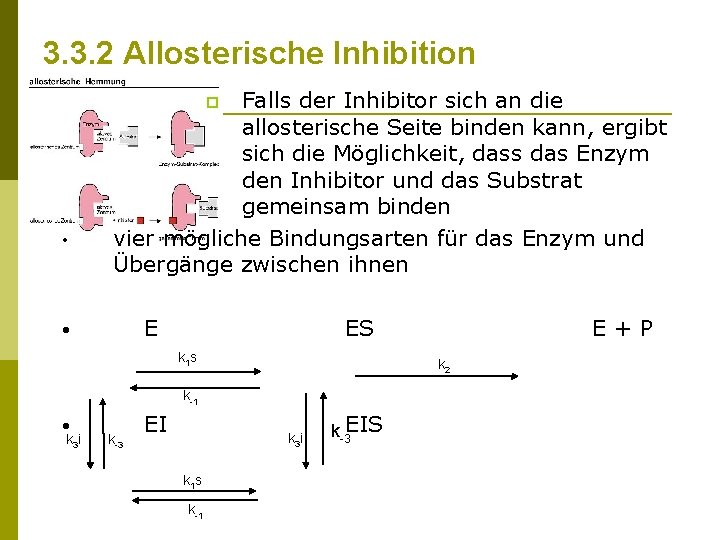
3. 3. 2 Allosterische Inhibition Falls der Inhibitor sich an die allosterische Seite binden kann, ergibt sich die Möglichkeit, dass das Enzym den Inhibitor und das Substrat gemeinsam binden vier mögliche Bindungsarten für das Enzym und Übergänge zwischen ihnen • ES k 1 s k 2 k-1 • k 3 i k-3 EI k 3 i k 1 s k-1 E+P k-3 EIS
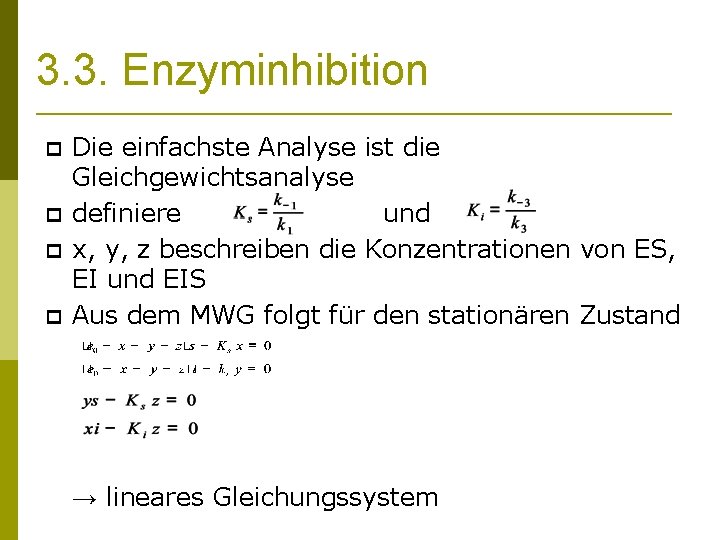
3. 3. Enzyminhibition Die einfachste Analyse ist die Gleichgewichtsanalyse definiere und x, y, z beschreiben die Konzentrationen von ES, EI und EIS Aus dem MWG folgt für den stationären Zustand → lineares Gleichungssystem
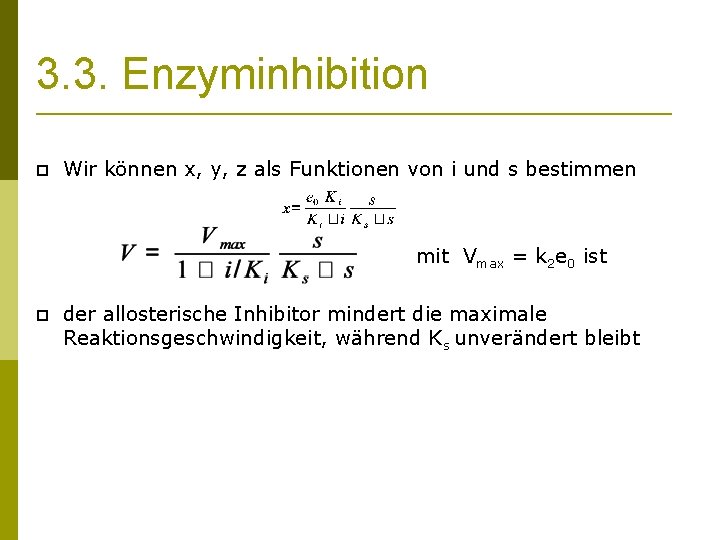
3. 3. Enzyminhibition Wir können x, y, z als Funktionen von i und s bestimmen mit Vmax = k 2 e 0 ist der allosterische Inhibitor mindert die maximale Reaktionsgeschwindigkeit, während Ks unverändert bleibt
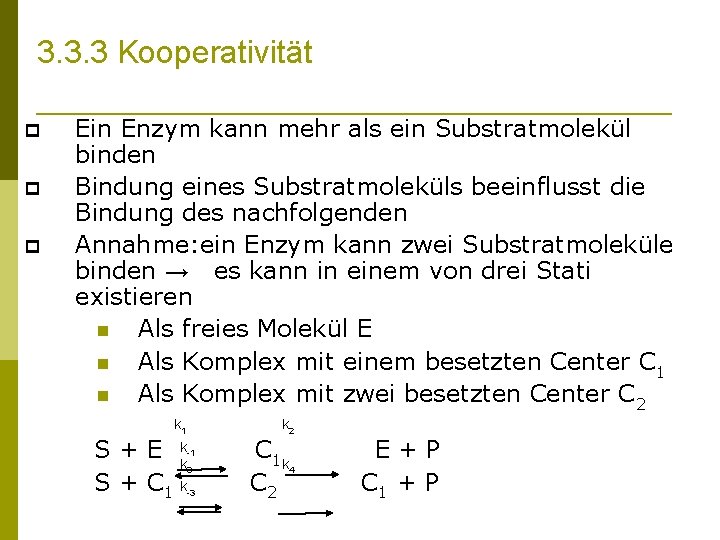
3. 3. 3 Kooperativität Ein Enzym kann mehr als ein Substratmolekül binden Bindung eines Substratmoleküls beeinflusst die Bindung des nachfolgenden Annahme: ein Enzym kann zwei Substratmoleküle binden → es kann in einem von drei Stati existieren Als freies Molekül E Als Komplex mit einem besetzten Center C 1 Als Komplex mit zwei besetzten Center C 2 k 1 S + E kk S + C 1 k -1 3 -3 k 2 C 1 k C 2 4 E+P C 1 + P
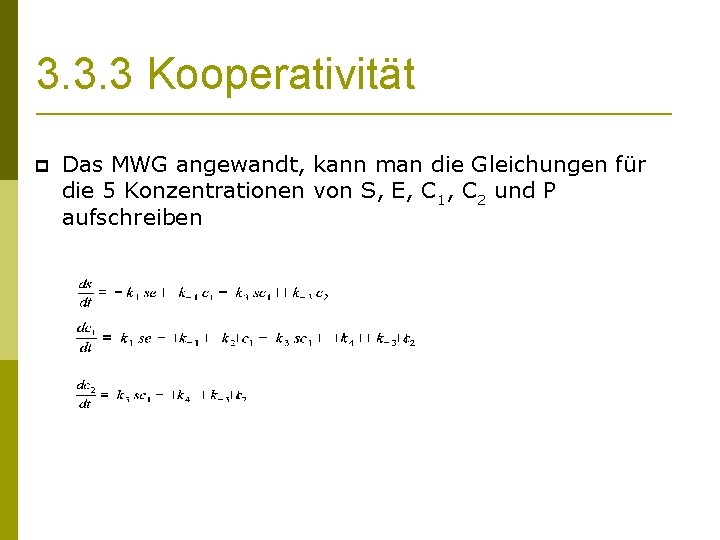
3. 3. 3 Kooperativität Das MWG angewandt, kann man die Gleichungen für die 5 Konzentrationen von S, E, C 1, C 2 und P aufschreiben
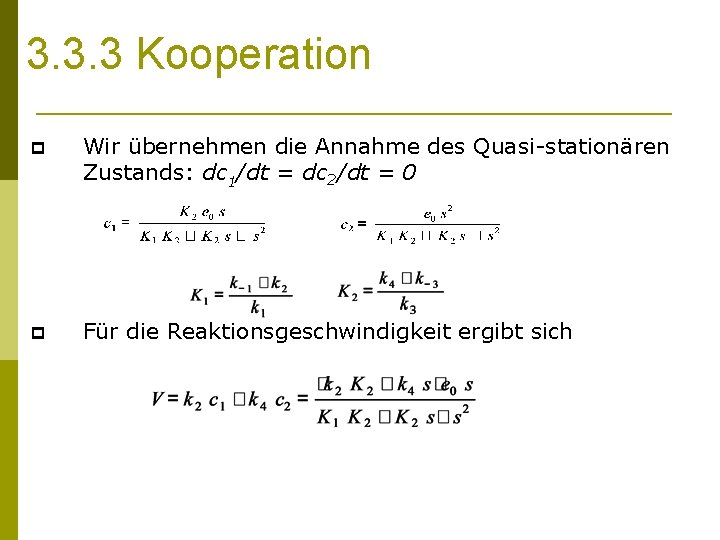
3. 3. 3 Kooperation Wir übernehmen die Annahme des Quasi-stationären Zustands: dc 1/dt = dc 2/dt = 0 Für die Reaktionsgeschwindigkeit ergibt sich
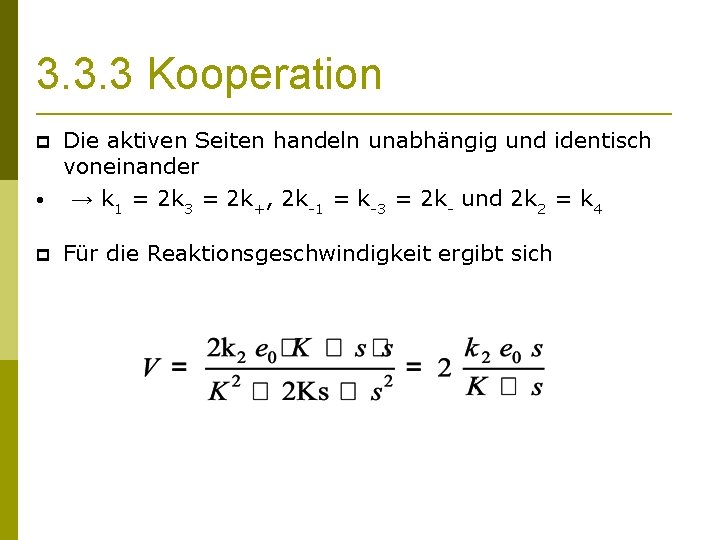
3. 3. 3 Kooperation • Die aktiven Seiten handeln unabhängig und identisch voneinander → k 1 = 2 k 3 = 2 k+, 2 k-1 = k-3 = 2 k- und 2 k 2 = k 4 Für die Reaktionsgeschwindigkeit ergibt sich
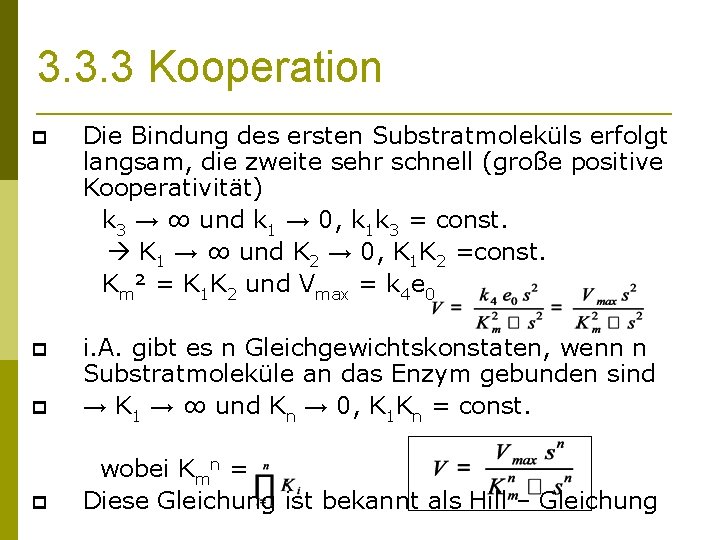
3. 3. 3 Kooperation Die Bindung des ersten Substratmoleküls erfolgt langsam, die zweite sehr schnell (große positive Kooperativität) k 3 → ∞ und k 1 → 0, k 1 k 3 = const. K 1 → ∞ und K 2 → 0, K 1 K 2 =const. Km² = K 1 K 2 und Vmax = k 4 e 0 i. A. gibt es n Gleichgewichtskonstaten, wenn n Substratmoleküle an das Enzym gebunden sind → K 1 → ∞ und Kn → 0, K 1 Kn = const. wobei Kmn = Diese Gleichung ist bekannt als Hill – Gleichung
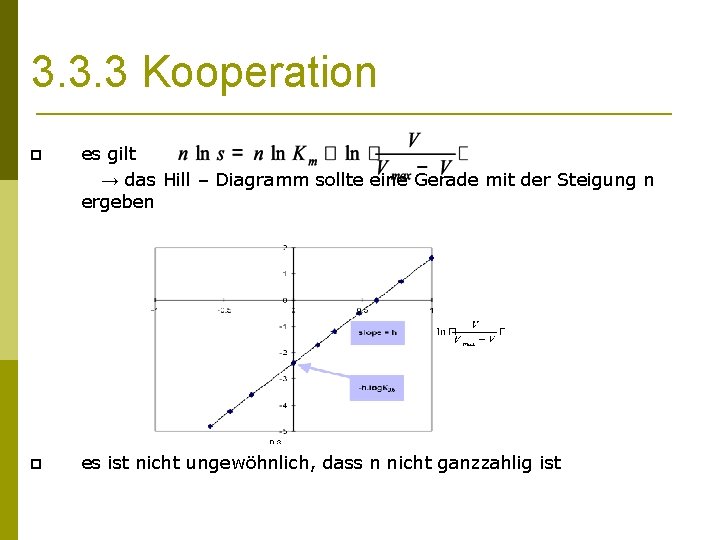
3. 3. 3 Kooperation es gilt → das Hill – Diagramm sollte eine Gerade mit der Steigung n ergeben es ist nicht ungewöhnlich, dass n nicht ganzzahlig ist
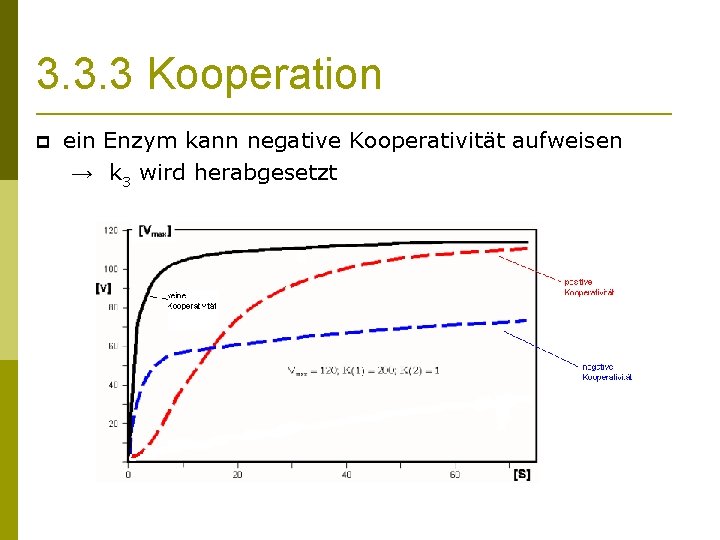
3. 3. 3 Kooperation ein Enzym kann negative Kooperativität aufweisen → k 3 wird herabgesetzt
3. 4. Das Monod – Wyman – Changeux Modell das Modell basiert auf folgende Annahmen: → kooperative Proteine sind zusammengesetzt aus diversen identischen Reaktionseinheiten, genannt Protomer, die gleichen Positionen im Protein belegen → jedes Protomer umfasst eine bindende Seite für jeden Liganden → die bindenden Seiten innerhalb jeden Proteins sind äquivalent → falls die Bindung eines Linganden zu einem Protomer einen konformativen Wechsel im dem Protomer einleitet, wird ein identischer konformativer Wechsel in allen Proteinen eingeleitet → das Protein hat zwei konformative Stati, gewöhnlich bezeichnet als R und T, die sich in ihrem Verhalten Liganden zu binden unterscheiden
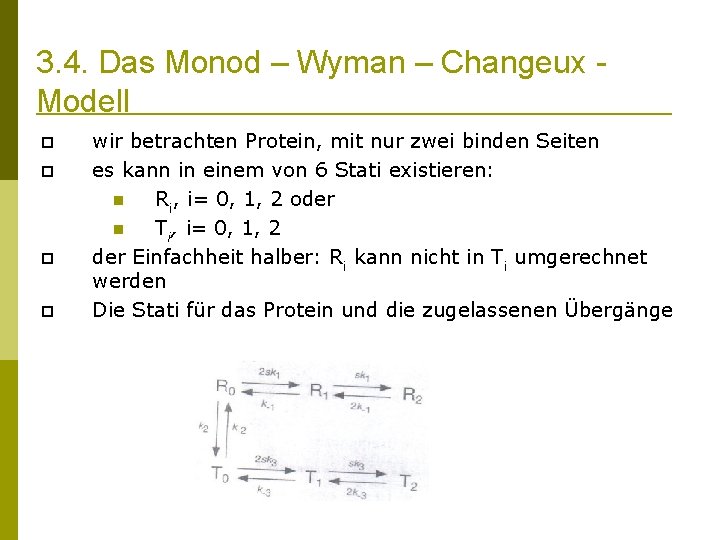
3. 4. Das Monod – Wyman – Changeux Modell wir betrachten Protein, mit nur zwei binden Seiten es kann in einem von 6 Stati existieren: Ri, i= 0, 1, 2 oder Ti, i= 0, 1, 2 der Einfachheit halber: Ri kann nicht in Ti umgerechnet werden Die Stati für das Protein und die zugelassenen Übergänge
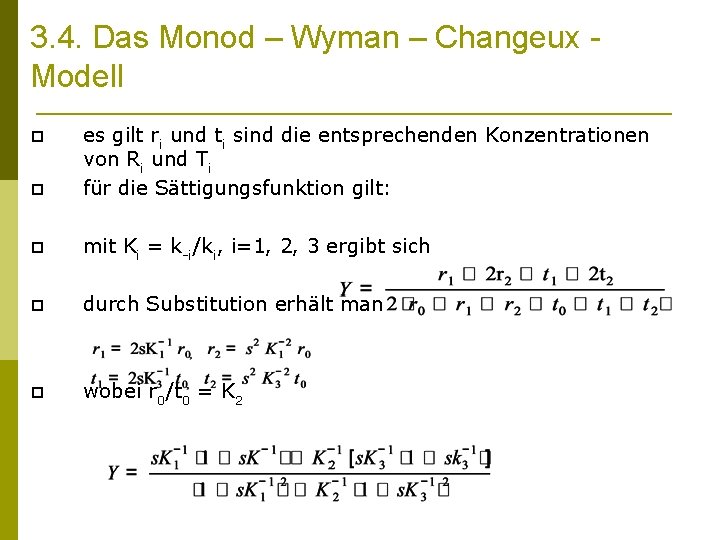
3. 4. Das Monod – Wyman – Changeux Modell es gilt ri und ti sind die entsprechenden Konzentrationen von Ri und Ti für die Sättigungsfunktion gilt: mit Ki = k-i/ki, i=1, 2, 3 ergibt sich durch Substitution erhält man wobei r 0/t 0 = K 2
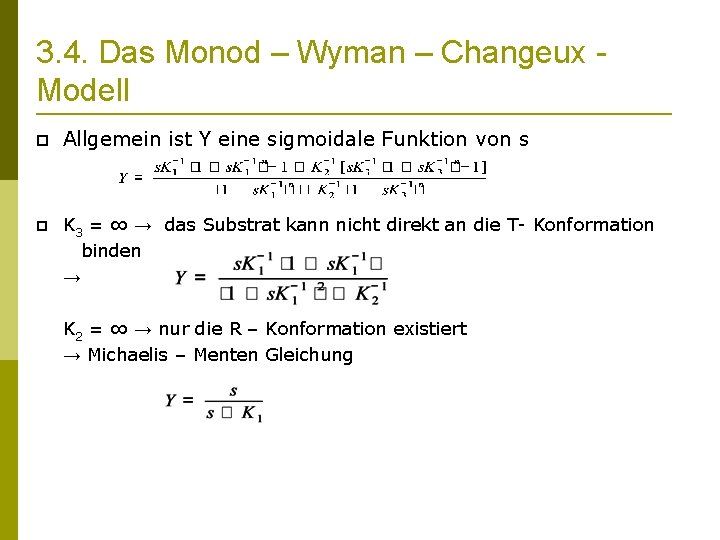
3. 4. Das Monod – Wyman – Changeux Modell Allgemein ist Y eine sigmoidale Funktion von s K 3 = ∞ → das Substrat kann nicht direkt an die T- Konformation binden → K 2 = ∞ → nur die R – Konformation existiert → Michaelis – Menten Gleichung
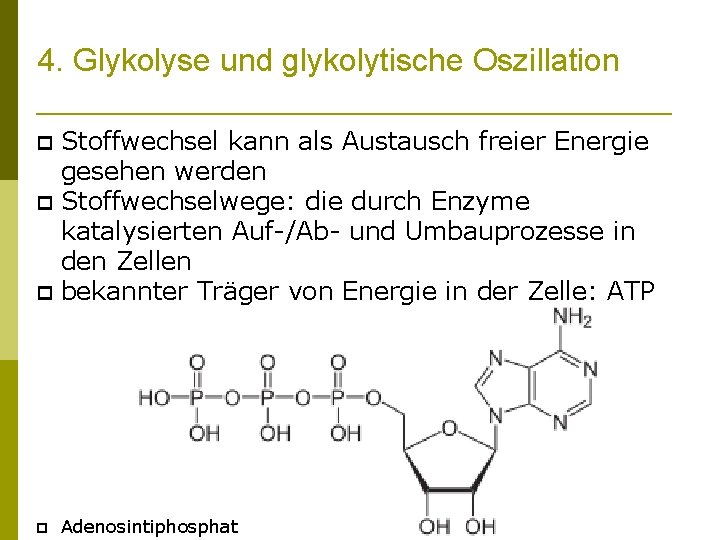
4. Glykolyse und glykolytische Oszillation Stoffwechsel kann als Austausch freier Energie gesehen werden Stoffwechselwege: die durch Enzyme katalysierten Auf-/Ab- und Umbauprozesse in den Zellen bekannter Träger von Energie in der Zelle: ATP Adenosintiphosphat
4. Glykolyse und glykolytische Oszillation Die Bindungen der drei Phosphate sind sehr energiereich Werden die Phosphoanhydrid-Bindungen durch Enzyme hydrolytisch gespalten, entsteht das Adenosindiphosphat (ADP) bzw. das Adenosinmonophosphat (AMP) und Phosphat es werden jeweils etwa 32, 3 k. J/mol (Spaltung einer Bindung) oder 64, 6 k. J/mol (Spaltung beider Bindungen) Energie frei. Die freiwerdende Energie ermöglicht die Arbeitsleistungen in den Zellen.
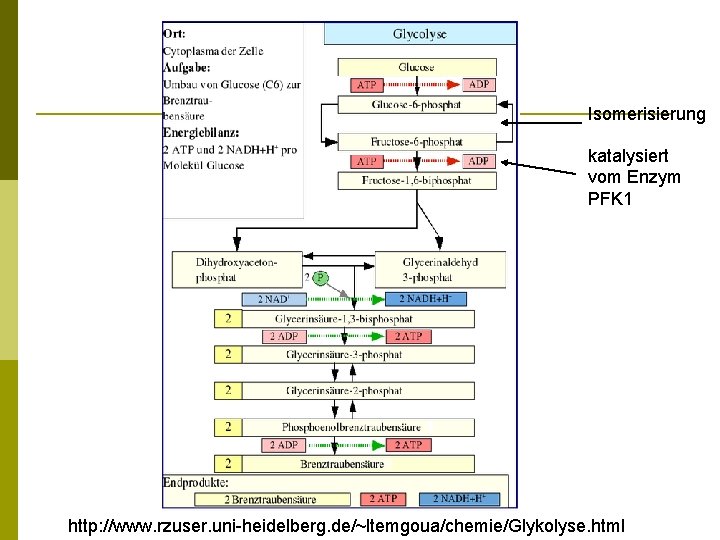
Isomerisierung katalysiert vom Enzym PFK 1 http: //www. rzuser. uni-heidelberg. de/~ltemgoua/chemie/Glykolyse. html
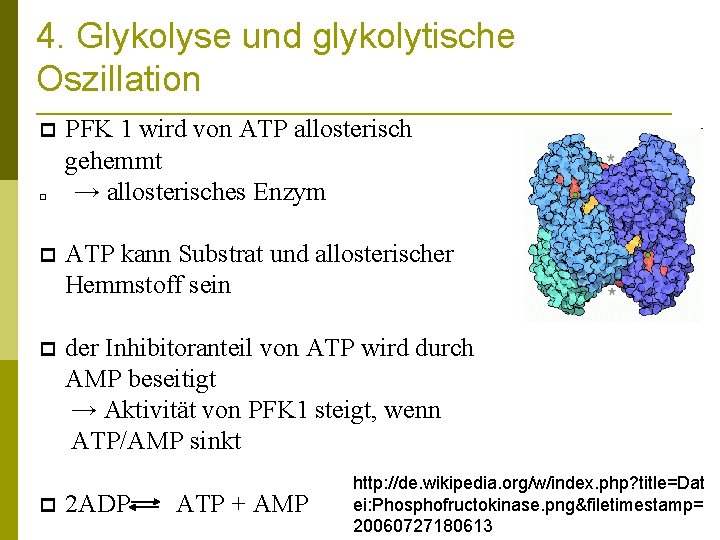
4. Glykolyse und glykolytische Oszillation � PFK 1 wird von ATP allosterisch gehemmt → allosterisches Enzym ATP kann Substrat und allosterischer Hemmstoff sein der Inhibitoranteil von ATP wird durch AMP beseitigt → Aktivität von PFK 1 steigt, wenn ATP/AMP sinkt 2 ADP ATP + AMP http: //de. wikipedia. org/w/index. php? title=Dat ei: Phosphofructokinase. png&filetimestamp= 20060727180613
4. Glykolyse und glykolytische Oszillation • • ein Überfluss an Fructose 6 -Phosphat führt zur Bildung von Fructose-2, 6 -bisphosphat → Aktivität von PFK 1 wächst → negative Rückkopplung PFK 1 - Aktivität wird von einem komplexen System von Reaktionen kontrolliert
4. Glykolyse und glykolytische Oszillation unter gewissen Umständen ist bekannt: die Rate der Glykolyse ist periodisch, manchmal sogar chaotisch ein mathematisches Modell von Sel´kov (1968), später modifiziert von Goldbeter und Lefever (1972) Achtung: nur die positive Rückkopplung von ADP auf PFK 1 wird beachtet
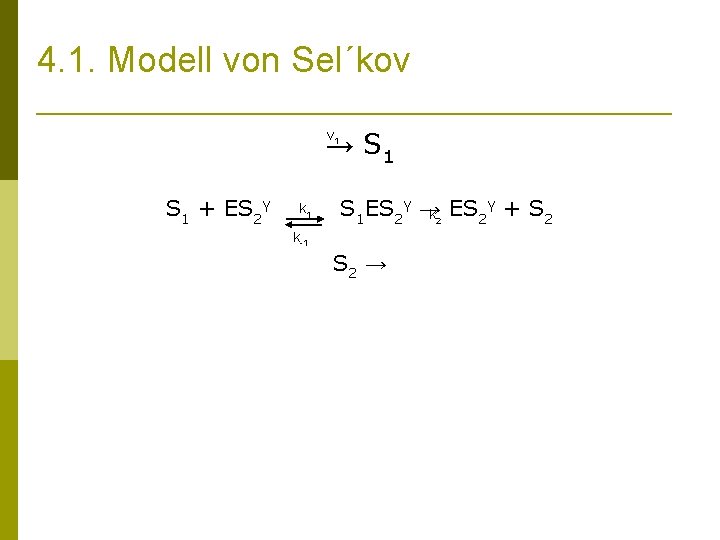
4. 1. Modell von Sel´kov PFK 1 ist inaktiv im ungebundenen Status aktiviert durch die Bindung mit ADP-Molekülen im aktiven Status katalysiert das Enzym die Produktion von ADP aus ATP das Modell: PFK 1 (E) ist aktiviert oder deaktiviert, je nach Bindungsstatus mit den γ-Molekülen von ADP (S 2) γS 2 + E ES 2γ ATP (S 1) kann sich an die aktivierte Form des Enzyms binden um ein Produkt von ADP zu bilden Annahme: die Rate von S 1 ist beständig, das Produkt S 2 wird jedoch irreversibel verbraucht
4. 1. Modell von Sel´kov → S 1 ν 1 S 1 + ES 2γ k 1 γ S 1 ES 2γ → k 2 ES 2 + S 2 k-1 S 2 →
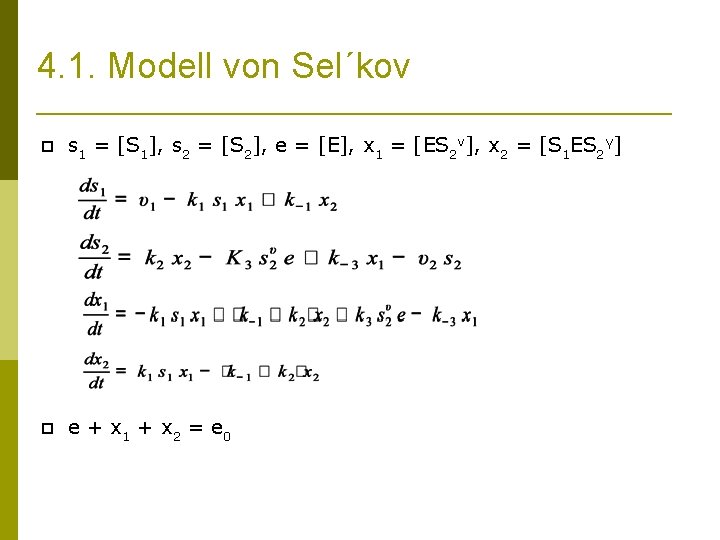
4. 1. Modell von Sel´kov s 1 = [S 1], s 2 = [S 2], e = [E], x 1 = [ES 2ν], x 2 = [S 1 ES 2γ] e + x 1 + x 2 = e 0
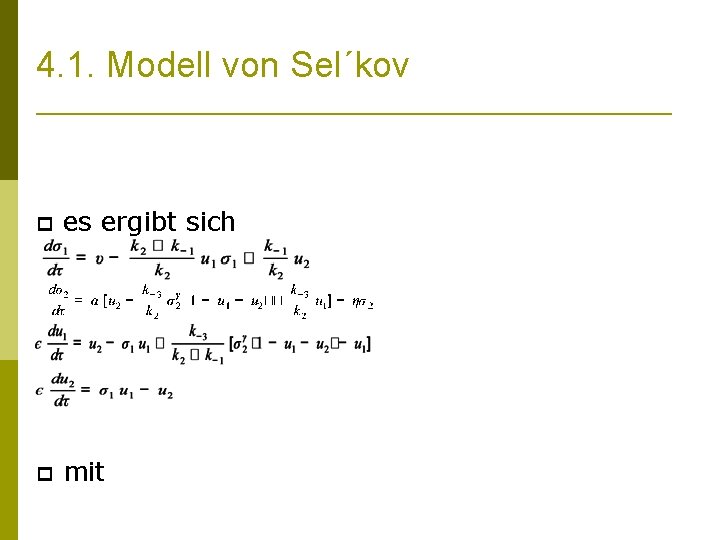
4. 1. Modell von Sel´kov es ergibt sich mit
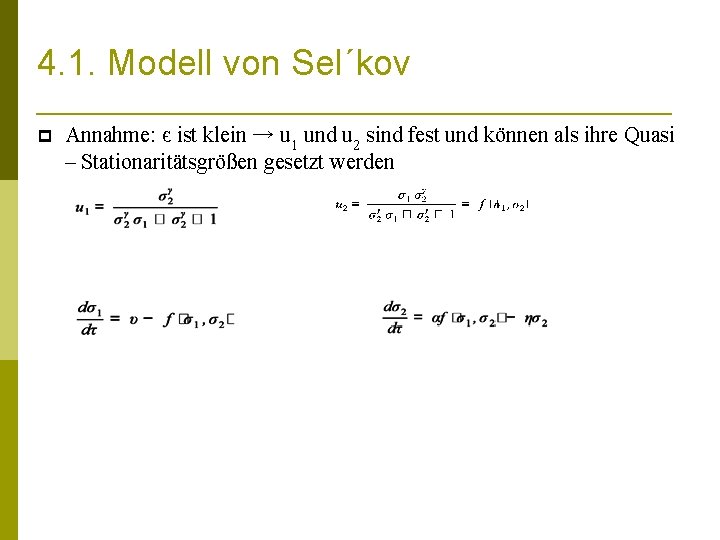
4. 1. Modell von Sel´kov Annahme: є ist klein → u 1 und u 2 sind fest und können als ihre Quasi – Stationaritätsgrößen gesetzt werden
4. 1. Modell von Sel´kov das System hat periodische Lösungen für einen gewissen Bereich von ν wegen der Sättigung, ist die Funktion f(σ1, σ2) durch 1 begrenzt falls ν > 1, sind die Lösungen der Differentialgleichungen nicht begrenzt
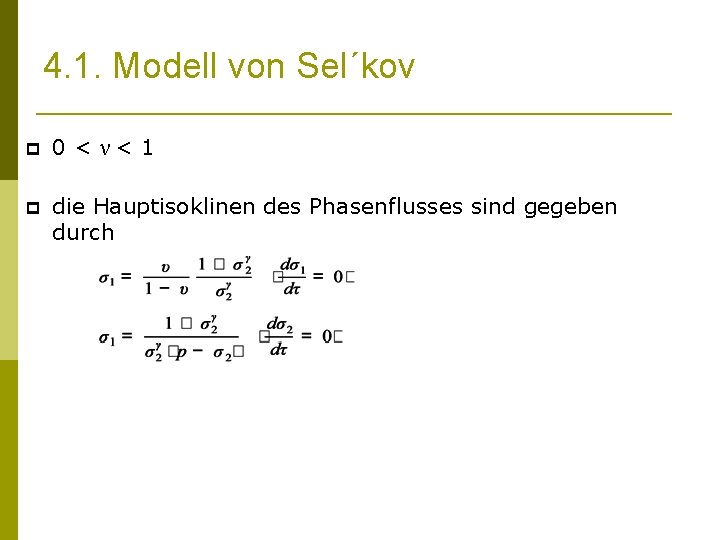
4. 1. Modell von Sel´kov 0 < ν< 1 die Hauptisoklinen des Phasenflusses sind gegeben durch
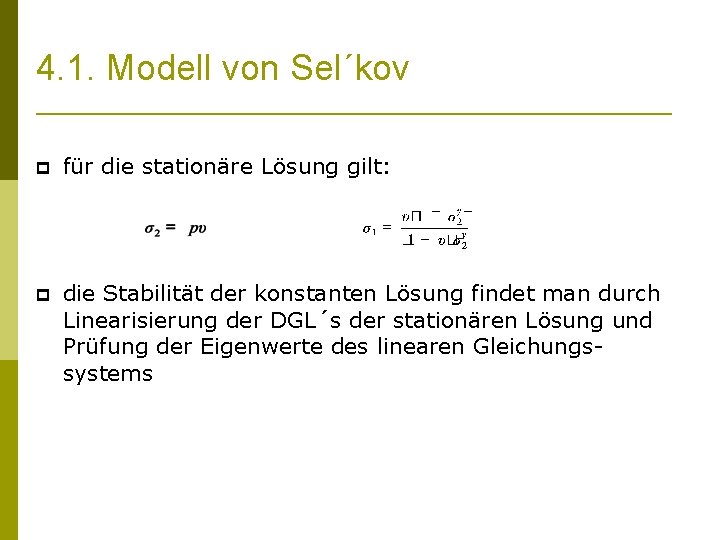
4. 1. Modell von Sel´kov für die stationäre Lösung gilt: die Stabilität der konstanten Lösung findet man durch Linearisierung der DGL´s der stationären Lösung und Prüfung der Eigenwerte des linearen Gleichungssystems
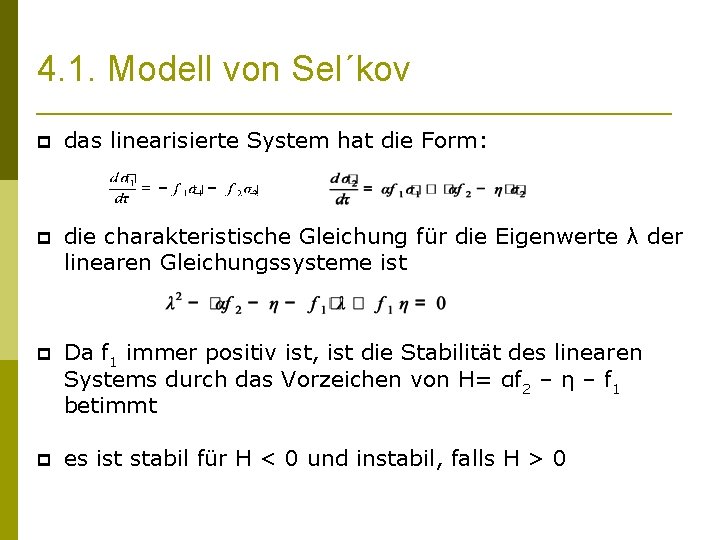
4. 1. Modell von Sel´kov das linearisierte System hat die Form: die charakteristische Gleichung für die Eigenwerte λ der linearen Gleichungssysteme ist Da f 1 immer positiv ist, ist die Stabilität des linearen Systems durch das Vorzeichen von H= αf 2 – η – f 1 betimmt es ist stabil für H < 0 und instabil, falls H > 0
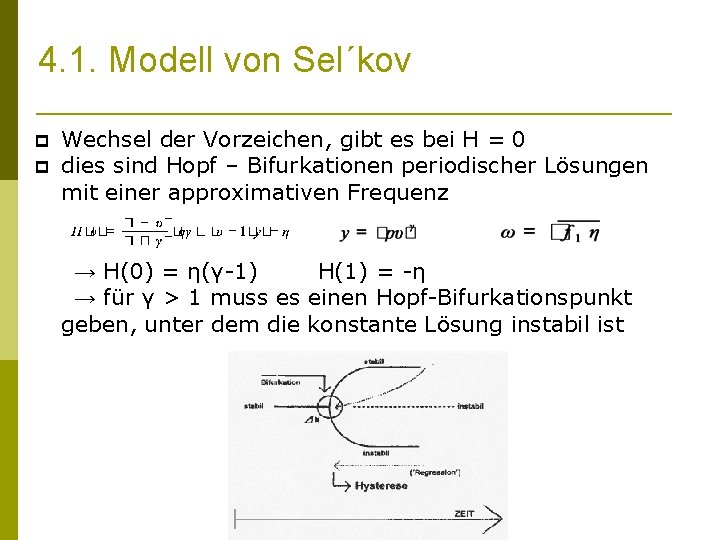
4. 1. Modell von Sel´kov Wechsel der Vorzeichen, gibt es bei H = 0 dies sind Hopf – Bifurkationen periodischer Lösungen mit einer approximativen Frequenz → H(0) = η(γ-1) H(1) = -η → für γ > 1 muss es einen Hopf-Bifurkationspunkt geben, unter dem die konstante Lösung instabil ist
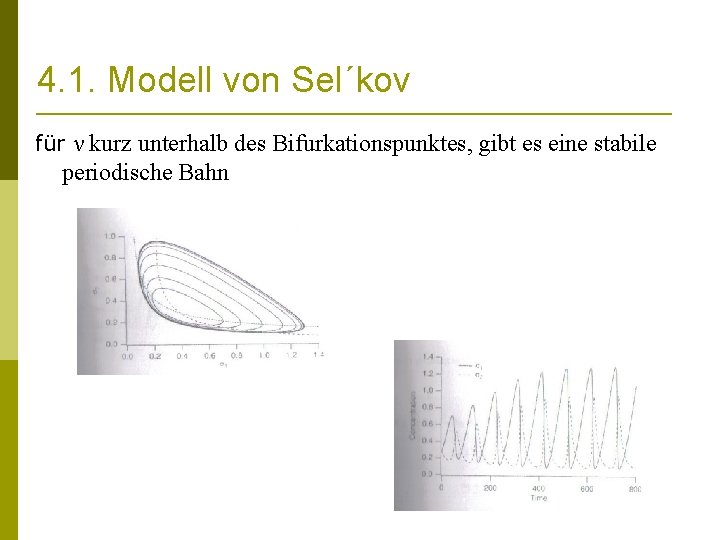
4. 1. Modell von Sel´kov für ν kurz unterhalb des Bifurkationspunktes, gibt es eine stabile periodische Bahn
4. 2. Hess und Boiteux (1973): es gibt für hohe und niedrige Injektionsraten eine stabile Stationaritäslösung es gibt zwei Hopf – Bifurkationspunkte 1. bei 20 m. M/hr Dauer 8 Min 2. bei 160 m. M/hr Dauer 3 Min
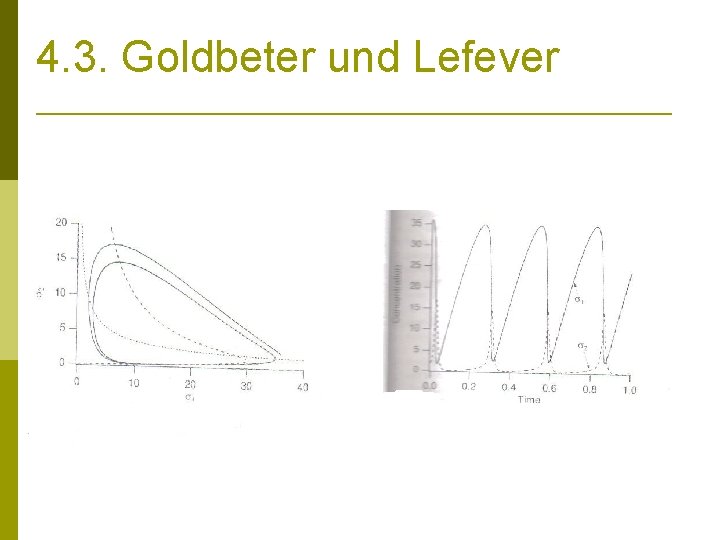
4. 3. Goldbeter und Lefever sie schlugen 1972 Modell des Monod – Wyman – Changeux – Typs vor Annahme: PFK 1 ist ein Dimer, das in zwei Stati existiert aktiven Status R inaktiver Status T S 1 kann an beide Formen gebunden werden S 2 (positiver Effektor des Enzyms) bindet nur an die aktive Form
4. 3. Goldbeter und Lefever Die enzymatischen Formen, an die ein Substrat binden, zersetzen sich irreversibel, um ADP zu bilden das Substrat wir dem System in einer konstanten Rate geliefert die Rate der Rückbildung des Produkts verläuft proportional zur Konzentration
4. 3. Goldbeter und Lefever Tj = inaktive T-Form von der Enzymbindung zu j Substratmolekülen Rij = aktive R-Form des Enzyms, gebunden an i Substratmoleküle und j Produktmolekülen
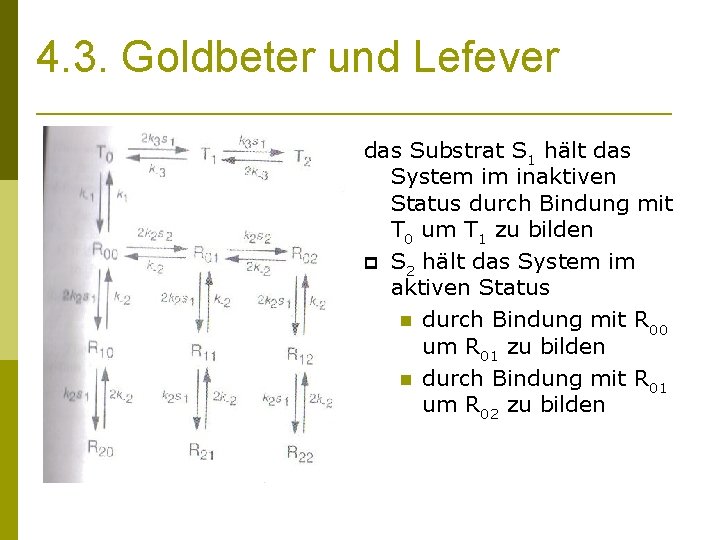
4. 3. Goldbeter und Lefever das Substrat S 1 hält das System im inaktiven Status durch Bindung mit T 0 um T 1 zu bilden S 2 hält das System im aktiven Status durch Bindung mit R 00 um R 01 zu bilden durch Bindung mit R 01 um R 02 zu bilden
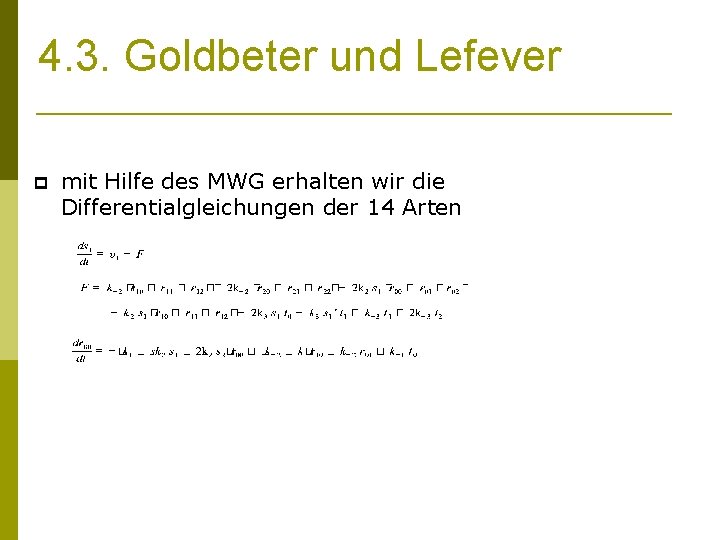
4. 3. Goldbeter und Lefever mit Hilfe des MWG erhalten wir die Differentialgleichungen der 14 Arten
4. 3. Goldbeter und Lefever Annahme: die 12 Zwischenstufen sind im Quasistationaritäszustand → lineares Gleichungssystem mit 12 Unbekannten und 12 Gleichungen es ist lösbar, wenn wir die Gesamtmenge der Enzyme e 0 setzen
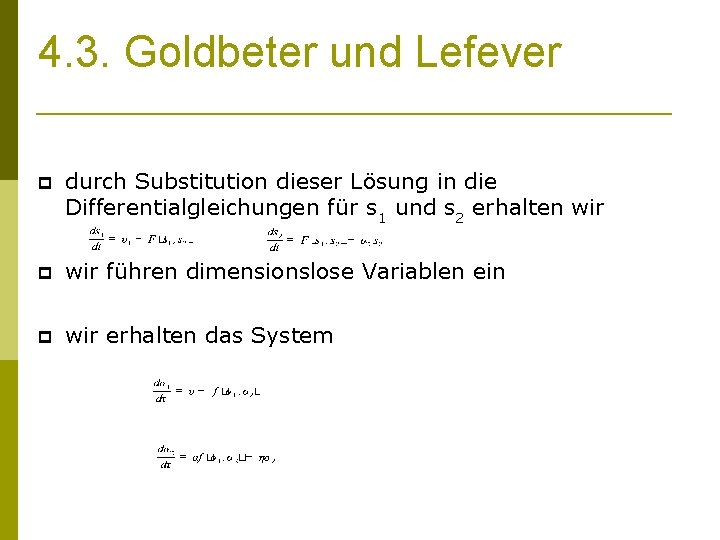
4. 3. Goldbeter und Lefever durch Substitution dieser Lösung in die Differentialgleichungen für s 1 und s 2 erhalten wir führen dimensionslose Variablen ein wir erhalten das System
4. 3. Goldbeter und Lefever Falls wir außerdem annehmen 1. das Substrat bindet nicht an die T-Form (k 3 = 0, T ist komplett inaktiv) 2. T 0 wird R 00 gegenüber bevorzugt (k 1>>k-1) 3. falls das Substrat S 1 an die R-Form bindet, wird die Bildung des Produkts S 2 der Trennung bevorzugt (k>>k-2) → das System kann wesentlich vereinfacht werden f(σ1, σ2) = σ1(1 + σ2)2
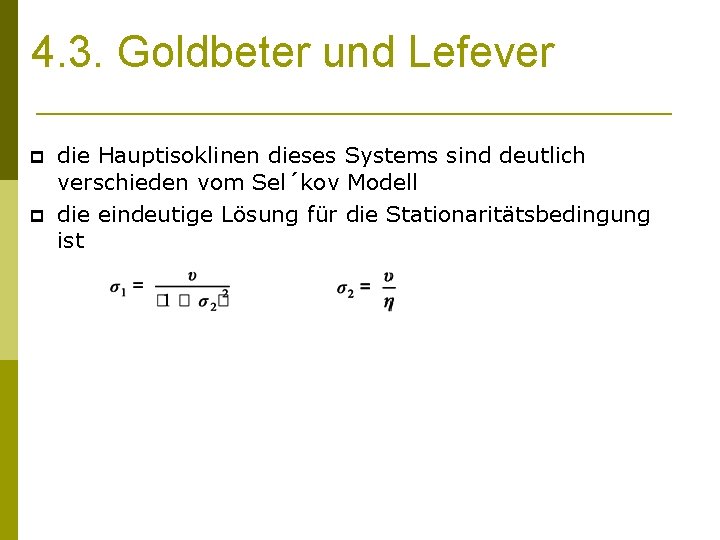
4. 3. Goldbeter und Lefever die Hauptisoklinen dieses Systems sind deutlich verschieden vom Sel´kov Modell die eindeutige Lösung für die Stationaritätsbedingung ist
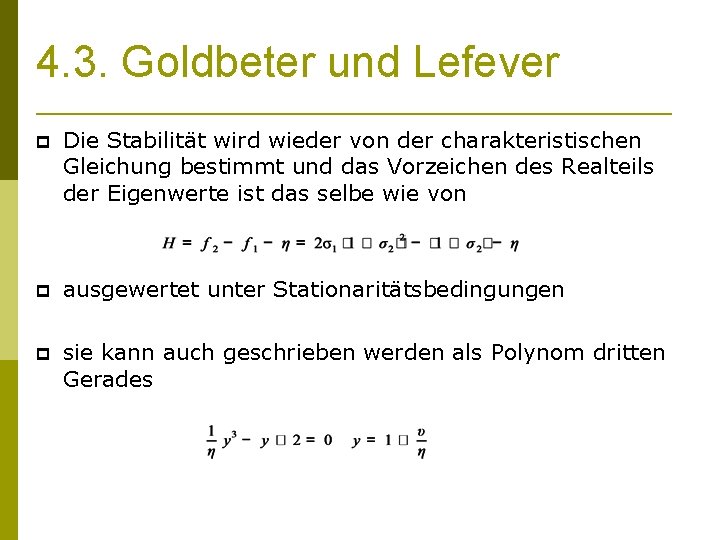
4. 3. Goldbeter und Lefever Die Stabilität wird wieder von der charakteristischen Gleichung bestimmt und das Vorzeichen des Realteils der Eigenwerte ist das selbe wie von ausgewertet unter Stationaritätsbedingungen sie kann auch geschrieben werden als Polynom dritten Gerades
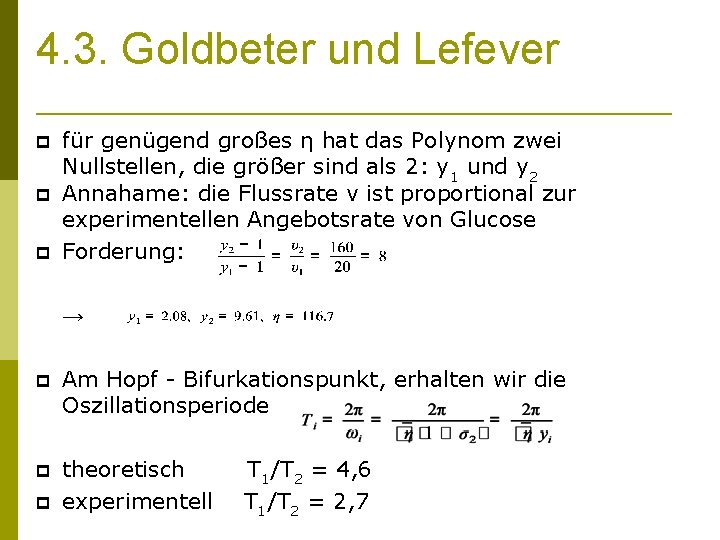
4. 3. Goldbeter und Lefever für genügend großes η hat das Polynom zwei Nullstellen, die größer sind als 2: y 1 und y 2 Annahame: die Flussrate ν ist proportional zur experimentellen Angebotsrate von Glucose Forderung: → Am Hopf - Bifurkationspunkt, erhalten wir die Oszillationsperiode theoretisch experimentell T 1/T 2 = 4, 6 T 1/T 2 = 2, 7
4. 3. Goldbeter und Lefever
- Slides: 73