
AZ IDEGRENDSZER Az idegsejt A neuronmkds alapjai Felpts











- Slides: 63
AZ IDEGRENDSZER Az idegsejt
A neuronműködés alapjai Felépítés: • Az idegszövetet alkotják nem specifikus elemek: erek, agy-gerincvelői burkok + 2 sejttípus: idegsejtek (neuronok) + támasztósejtek (gliasejtek) - közös őssejtből differenciálódnak • az egyedfejlődés során 2 x(10 x) annyi neuron jön létre, mint amennyi a kifejlett idegrendszerben van → elhalnak (<= apoptosis)
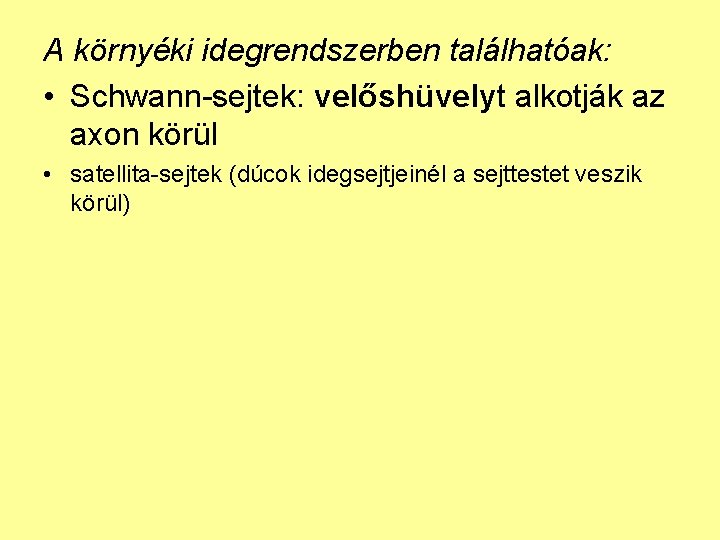
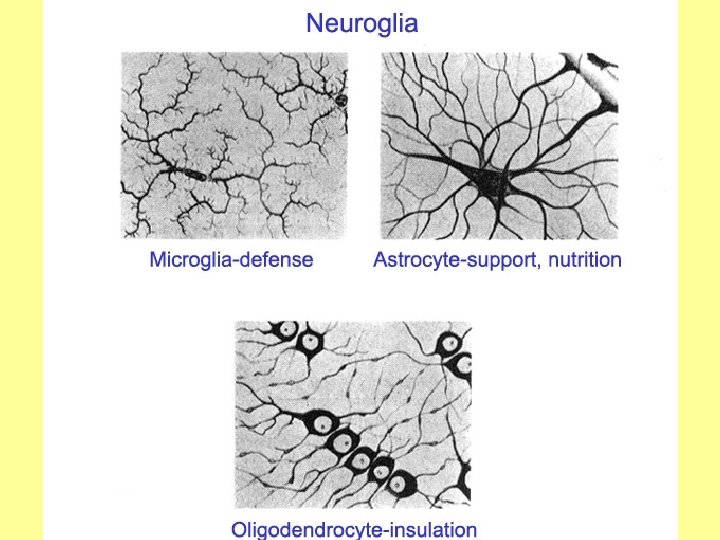
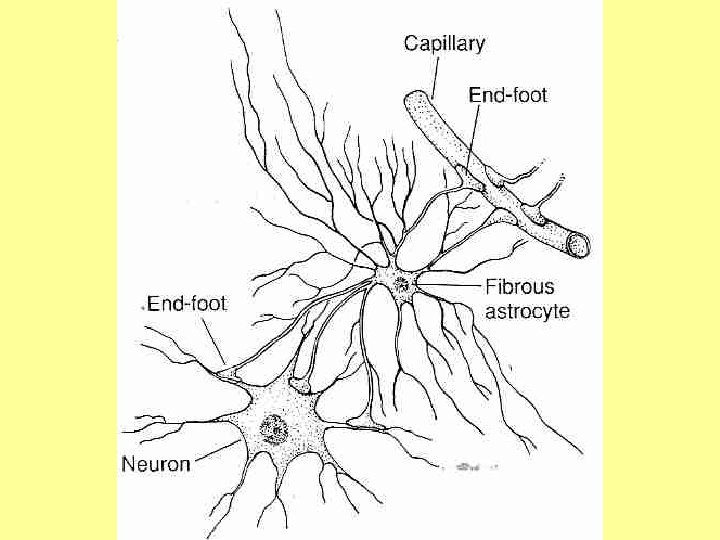
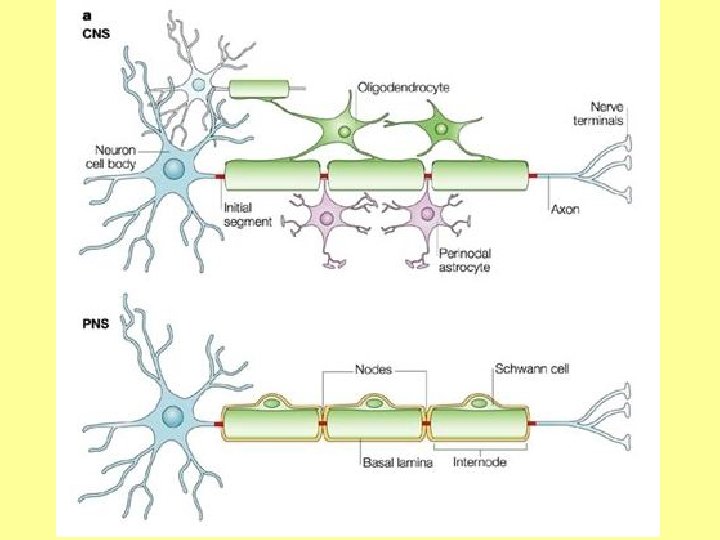
• 1) gliasejtek: a normális neuronműködés feltételei – a neuronokat védik, támasztják, anyagcserefolyamataikat segítik, stb. Különböző típusaik vannak: A központi idegrendszerben találhatóak: • astrocyták: soknyúlványos sejtek (támasztás, táplálás) • oligodendroglia/oligodendrocyták: a kp. -i ir. ben nyúlványaik alkotják a velőshüvelyt • microglia: immunsejtvonal-eredetűek; fagocitózisra képesek (szövettörmelék eltakarítása sérülés esetén) • ependyma-sejtek: agykamrákban (CSF kiválasztása – vérliquor-gát; ld: agyi keringés)
A környéki idegrendszerben találhatóak: • Schwann-sejtek: velőshüvelyt alkotják az axon körül • satellita-sejtek (dúcok idegsejtjeinél a sejttestet veszik körül)
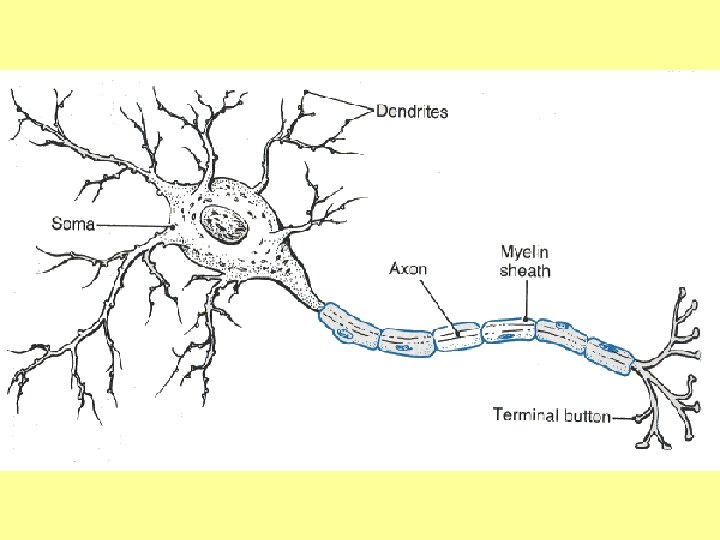
• 2) idegsejtek / neuronok: az információ felvételére, feldolgozására és szállítására specializálódott sejtek - a kp-i ir. -ben számuk átl. 87 milliárd (+ kb. 10 x ennyi gliasejt!) (ebből kb. 108: gerincvelő) Főbb részei: • sejttest – benne: sejtmag, sejtplazma, riboszómák (→ fehérjeszintézis!), Golgiapparátus, mitokondriumok (E-termelés) • nyúlványok - rövid: dendrit (sok) - hosszú: axon (1 v. 2) – eredése: a sejttest axondombjáról
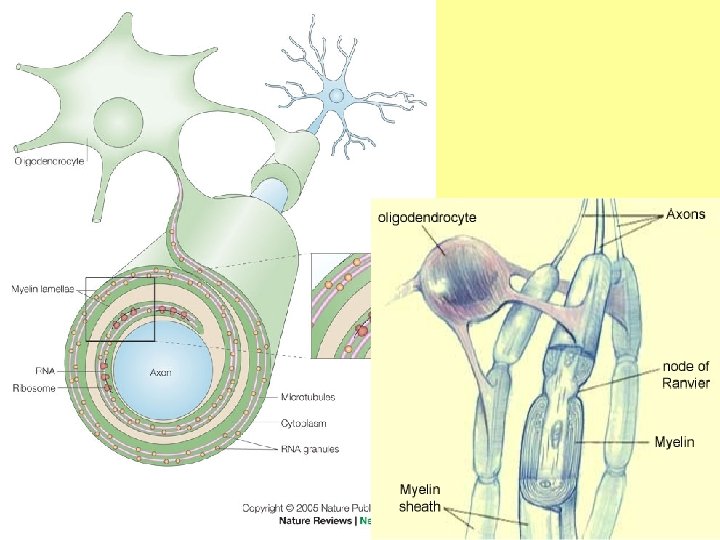
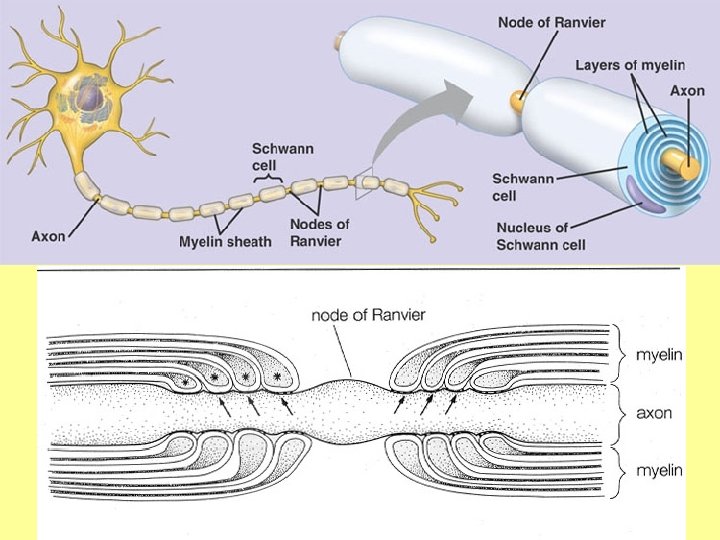
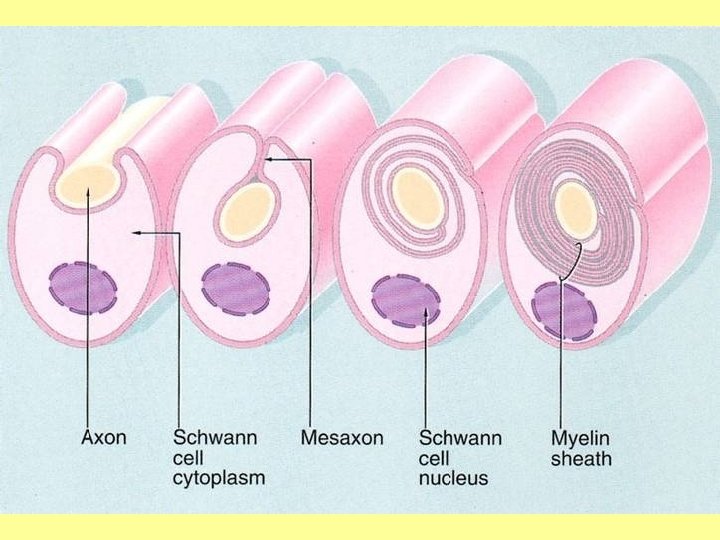
• Az ún. velőshüvelyes axonokon (a kp-i ir. ben ilyenek találhatóak) az axont körülvevő gliasejtek: oligodendroglia a központi idegrendszerben, Schwann-sejtek a környékiben → többször körülcsavarodnak az axonon és létrehozzák a velőshüvelyt (20 -300 membránréteg) • A Schwann-sejtek / oligodendrogliasejtek között az axon meztelen: ezek a Ranvierféle befűződések
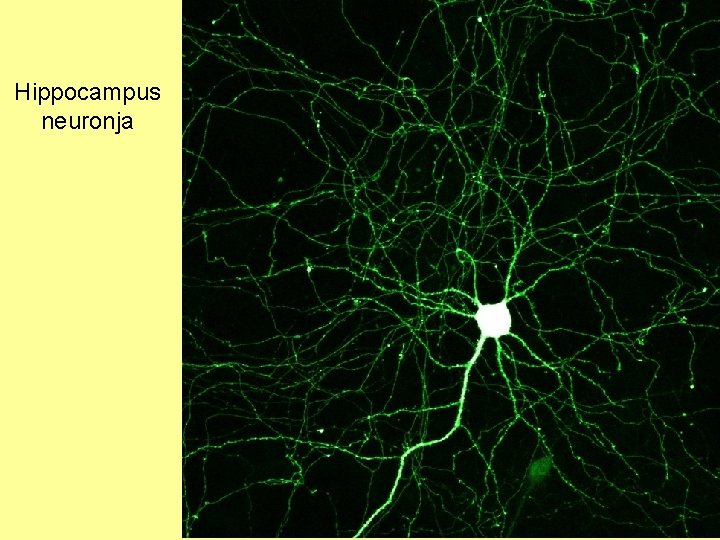
Hippocampus neuronja
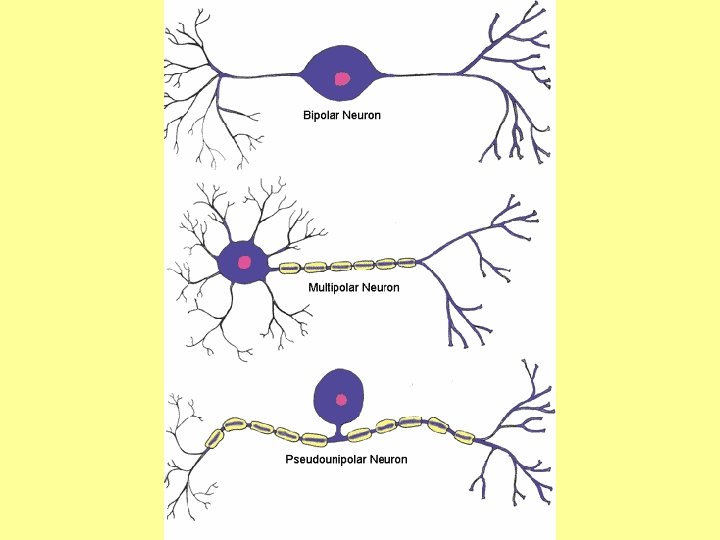
Az idegsejtek főbb típusai: Morfológiailag; a nyúlványok száma szerint: • pseudounipolaris: a sejttestből egy axon ered → ez hamar kettéágazik (pl. gerincvelői idegek, agyidegek érző dúcaiban) az álegynyúlványú elnevezés: az egyedfejlődés során 2 axonja olvad össze eggyé • bipolaris: 2 axon (pl. érzőrendszerek) • multipolaris sejtek: sok nyúlvány: egy axon, sok dendrit – ez a leggyakoribb típus; jellemző alakúak lehetnek a különböző idegrendszeri területeken (pl. a kisagy Purkinje-sejtjei, agykérgi piramissejtek)
Funkcionális felosztás: • Érző / afferens / szenzoros neuronok: a periféria felől szállítják az információt a kp. felé • Mozgató / motoros / efferens neuronok: a kp. válaszát szállítják a végrehajtó perifériás szerv felé • Interneuronok: az idegrendszer egyazon részén belül kapcsolnak össze más neuronokat • Projekciós neuronok: hosszú axonjaikkal az idegrendszer különböző nagyobb területeit kötik össze
Idegrosthüvely szerint: • Velőshüvely nélküli / velőtlen axon: - környéki idegrendszerben - nem teljesen velőtlenek: Schwann-sejtbe fekszik az axon - pl. : a szimpatikus ir. bizonyos rostjai (postganglionaris); C-rostok • Velőshüvelyes: - Schwann-sejtes axonok (környéki ir. ben) - Velőshüvelyes axonú neuronok a kpi ir. -ben (oligodendroglia)
Működési alapelvek • Az idegsejt az információt egyik pólusán felveszi → két elektromos jellé alakítja • az 1. jel változó nagyságú, mindenképpen létrejön • a 2. jel akkor jön létre, ha az első elért egy küszöbértéket. Ez a 2. jel az akciós potenciál. → végigfut a sejt másik pólusához • → az axonvégződésen ingerületátvivő molekulák (= neurotranszmitterek) szabadulnak fel • ezek a molekulák viszik át az információt egy másik neuronra, vagy végrehajtó sejtekre: izom- / mirigysejtre
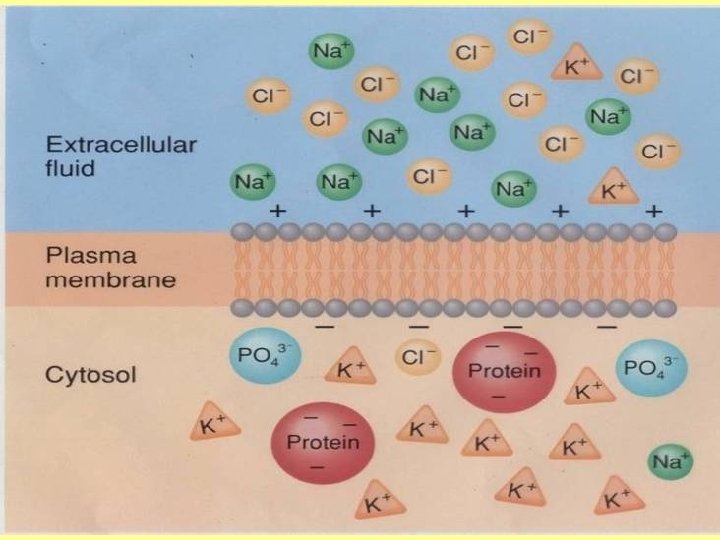
A nyugalmi membránpotenciál • Az élő sejtek belseje (intracellularis tér) és külseje (extracellularis tér) között elektromos feszültségkülönbség mérhető (m. V) Hogyan jön létre? • Az ionok nyugalmi megoszlása egyenlőtlen: - belül: sok K+, (kevés Na+), nagy méretű fehérjeanionok (anion: negatív tölt. ion) - kívül: sok Na+ és Cl- (kevés K+)
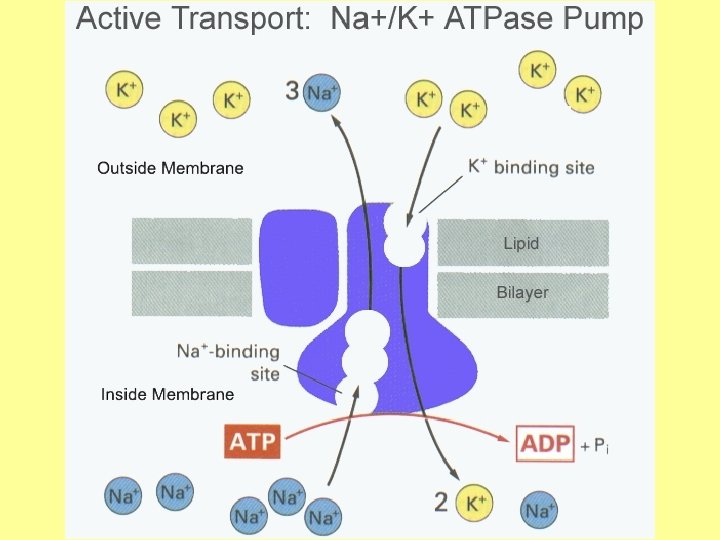
• A membrán az ionok átjárását csatornamolekulákon (fehérjék) és pumpamolekulákon keresztül szabályozza: • Na+-csatornák, K+-csatornák, Cl- -csatornák: szelektíven szabályozzák az adott ionok átjutását • az egyenlőtlen Na+ és K+-eloszlásért a Na+ –K+-pumpa felelős: (ATP hasítása közben) 3 Na+-ot 2 K+-ra cserél ki
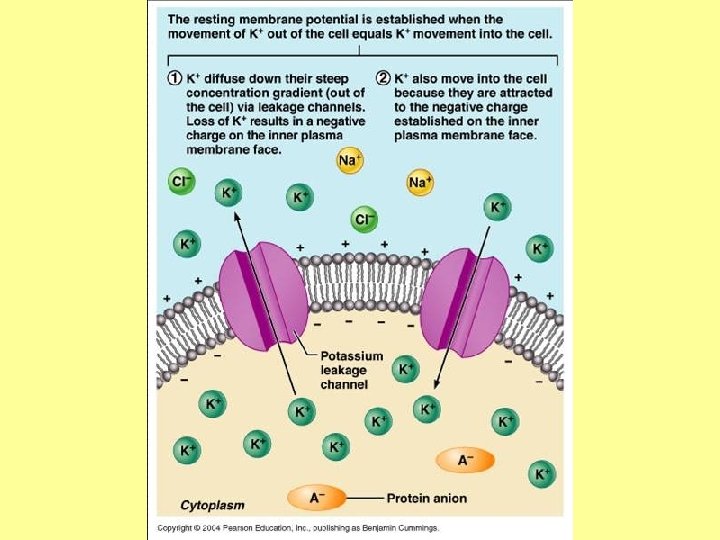
• A feszültségkülönbség kialakulásának 2. kulcsa: K+-csatornák részlegesen nyitottak => a K+ kifelé diffundál (nagy cc. →kis cc. ) => ezzel a külső oldal egyre pozitívabbá válik, a belső egyre negatívabbá • a belső tér nagy fehérjeanionjai számára a membrán nem átjárható => a belső negatív töltés visszatartja a K+-ok egy részét • → beáll egyensúlyi állapot (= a K+-kiáramlás egyenlő a K+-beáramlással); kint pozitívabb, benn negatívabb lett a töltés • => így jön létre a nyugalmi membránpotenciál
• [Az élő sejtekben érvényesülő egyéb hatások: - a Na+-ionokra nézve a membrán kismértékben átjárható => pozitívabbá teszik a membránpotenciált - Na+–K+-pumpa: 3 Na+-ot 2 K+-ra cserél => negatívabbá teszi a belső teret] • A külső (extracellularis) K+-cc. módosítja a membránpotenciált: - hyperkalaemia (nagy külső K+-cc. ) => kevesebb K+ megy ki => a membránpotenciál csökken (depolarizáló hatás) - hypokalaemia => hiperpolarizáló (potenciált növelő) hatás
• a nyugalmi membránpotenciál értékét megegyezés szerint a sejtbelsőhöz viszonyítjuk → negatív érték: – 30 és – 90 m. V közötti a kül. sejttípusoktól függően • A nyugalmi potenciál minden sejtünk sajátja, de egyes sejtek képesek a nyugalmi potenciál gyors (ms-os időskála) megváltoztatására: az idegsejtek és az izomsejtek
Az ingerületvezetés • Inger: a külső/belső környezet hatása, ami választ vált ki az élőlényből • Ingerület: a továbbított információ az idegrendszerben (az inger információja elektromos /+kémiai/ jellé alakult át) • Az ingerfelvétel a neuron erre specializált részén történik meg - a legtöbb neuronban a sejttest és/vagy a dendritek - érző neuronokban az axon végződése
• Ha az érkező jel által létrehozott depolarizáció eléri a küszöbértéket (ingerküszöb: az a minimális depolarizálódás, ami már kiváltja az akciós potenciált) => a neuronban akciós potenciál keletkezik → ez automatikusan végigterjed az idegsejten: „minden vagy semmi” elv alapján • 1) Na+-csatornák nyitnak (először csak néhány, majd a beáramló Na+-ok nyitják az ún. feszültségfüggő Na+-csatornákat) => Na+-beáramlás => csökkenti a belső negativitást, eléri a 0 értéket, majd túl is viszi a pozitív tartományba (csúcspotenciál)
ez a folyamat a depolarizálódás → ezután a Na+-permeabilitás csökken → majd megszűnik • 2) a Na+-csatornák nyitását követően nem sokkal nyitnak a K+-csatornák => K+-kiáramlás (lassabb, mint a Na+-beáramlás) => ismét negatívabbá válik a sejt belseje: repolarizáció → majd kis hiperpolarizáció → a nyugalmi érték visszaáll • 3) a Na+-K+-pumpák visszaállítják az eredeti, egyenlőtlen ioneloszlást
A refrakter állapot: • a Na+-csatornák bezárás után inaktív állapotba kerülnek: nem nyithatóak újra bizonyos időn belül => a csúcspotenciál után az axon néhány ms-ra ingerelhetetlenné válik Az extracelluláris Ca 2+ hatása: • Na+-csatornák feszültségfüggése változik • ha a Ca 2+-cc. alacsony (hypocalcaemia) => a csatornák már kisebb depolarizációra is nyílnak => ingerlékenység-fokozódás: pl. izomgörcsök fellépése • hypercalcaemia => az ingerküszöb megemelkedik
Az akciós potenciál tovaterjedése (= ingerületvezetés): • a helyi depolarizálódás kinyitja a közvetlenül szomszédos Na+-csatornákat => akciós potenciál váltódik ki a mellette levő membránszakaszon is → ez ismét egy lépéssel odébb terjed …: az axon hosszában végigvonul az akciós potenciál • ez a pontról pontra történő vezetés a velőshüvely nélküli axonokban + a vázizomrostokban megy végbe (v = 1 -2 m/s)
• A velőshüvelyes axonokban viszont a gliasejtek szigetelnek → feszültségfüggő Na+-csatornák szinte csak a Ranvierbefűződésekben vannak: csak ezekben jöhet létre akciós potenciál => ez az egész internodiumot depolarizálja (sőt, akár többet is egyszerre) → innen rögtön a következő befűződésre „ugrik” a depolarizáció = ugrásszerű / saltatoricus ingerületvezetés - gyors: v = több mint 100 m/s!
• Az ingerület végül az axonterminalishoz érkezik → itt egy kis résen keresztül adódik át a következő sejtre: • az ingerületáttevődés helyei 2 neuron között: szinapszis / synapsis Típusai: • Elektromos szinapszis (= gap junction) - csatornafehérjéken keresztül ionok jutnak át egyik neuronból a másikba - mindkét irányba vezet
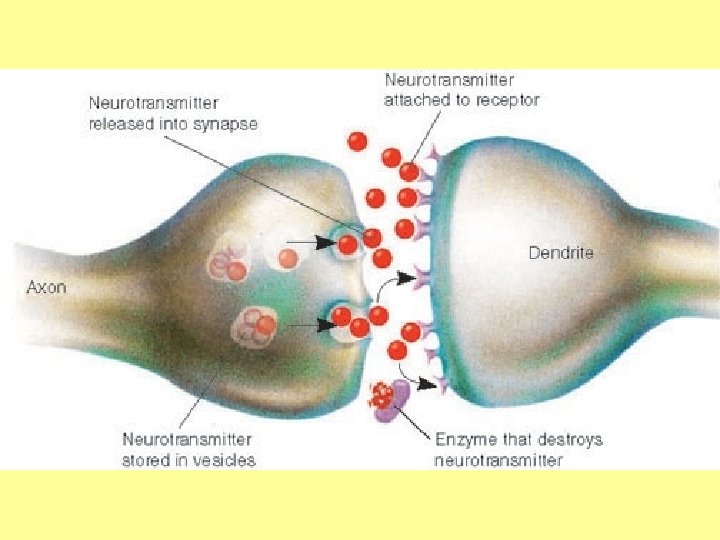
• Kémiai szinapszis - ingerületátvivő molekulákkal (= neurotranszmitterek) történik az információátadás - a transzmitter membránhólyagocskákban van, exocytosissal ürül az ún. szinaptikus résbe - a posztszinaptikus membránon receptorok kötik meg őket (→ az elektromos jel kémiai anyagokkal tevődik át) - normálisan egyirányú a vezetés - alaktanilag nagy változatosság jellemzi
http: //antranik. org/wp-content/uploads/2012/04/synapse. jpg
• A transzmitterek vagy depolarizálnak => serkentő (excitáló) neurotranszmitter / szinapszis - kationcsatornákat nyitnak meg => Na+beáramlás => kis helyi potenciálváltozás Időbeli szummáció: a kicsi pot. -változásokat okozó transzmitterfelszabadulások a potenciálváltozás lecsengése előtt ha megismétlődnek => hatásuk összeadódik Térbeli szummáció: közeli szinapszisokban (rövid időn belül) történik felszabadulás => ezek hatásai is összeadódnak → így akciós potenciált válthatnak ki
• vagy hiperpolarizálnak => gátló (inhibitor) neurotranszmitter / szinapszis - Cl- -csatornákat nyitnak => Cl- -beáramlás • helyi depolarizációk és hiperpolarizációk keletkeznek → ezek eredője szabja meg a sejt válaszát
Neurotranszmitterek • Az adott neuronra jellemzőek Típusaik: • I. ezek a transzmitterek szinaptikus vesiculumokban tárolódnak, exocytosissal szabadulnak fel, kvantumokban • 1) „klasszikus” ingerületátvivők acetil-kolin, glutamát, glicin, GABA, katecholaminok /adrenalin, noradrenalin, dopamin/, szerotonin (=5 hidroxitriptamin), hisztamin, ATP - kis molekulatömeg - az idegvégződésben szintetizálódnak
• 2) peptidek – a sejttestben szintetizálódnak pl. ACTH, endorfinok, enkefalinok, vazopresszin, oxitocin, glukagon, ghrelin, szomatosztatin, gasztrin, kolecisztokinin, Y-neuropeptidek, kalcitonin, ANG II, Ag. RP, stb. - egy idegvégződésből többféle transzmitter is felszabadulhat: kotranszmitterek • II. az idegvégződésekben képződő, rövid életű kis molekulák NO, CO - közvetlenül a felszabadulás előtt keletkeznek, nem tárolódnak membránhólyagocskákban
Transzmitterek felszabadulása: • az axonvég membránjának belső oldalán, sűrűn egymás mellett szinaptikus vesiculumok horgonyoznak: köztük és a membrán között a cytoskeleton fonalai húzódnak → ezek mentén „futnak” a membránhoz, s ürítik tartalmukat • az érkező akciós potenciál hatására Ca 2+ok lépnek a sejtekbe → ez váltja ki a hólyagocskák kiürülését • a szinapszisok között nagy változatosság: pl. az ideg-izom összeköttetésben mindig
sok trm. -kvantum ürül => feltétlenül akciós pot. jön létre → az izomsejt összehúzódik • más szinapszisokban – pl. a kp-i ir. -ben – kevés trm. ürül => a posztszinaptikus válasz több preszinaptikus végződés trmleadásától függ → a kevés trm. lehetőséget biztosít arra, hogy a neuron „válasszon”: továbbítja-e a jelet vagy sem. Ez a neuron döntéshozó funkciója.
Preszinaptikus gátlás és facilitálás: • Preszinaptikus gátlás: „ 1. ” neuron axonvégződésére egy másik neuron (2. ) axonvégződése érkezik egy szinapszissal → 2. megakadályozhatja az 1. -be történő Ca 2+beáramlást, s így a trm. -ürülést a 3. neuron felé • vagy: fokozza a Ca 2+-beáramlást => trm. felszabadulást: ez a preszinaptikus facilitáció • => így egyes pályák kiiktatódhatnak, mások információi kiemelhetőek a „háttérzajból”
Transzmitterek semlegesítése: • 1) Diffúzió: a felszabadulás helyéről a trm. diffundál, és a vérárammal távozik (pl. : szimpatikus végződésekből felszabaduló noradrenalin hormonként viselkedik a testben) • 2) Transzmitterlebontás: a szinapszisban jelen lévő enzimek bontják le a trm. -t • 3) Trm. -visszavétel az idegvégződésbe: dopamin, noradrenalin, szerotonin, glutamát, GABA, glicin így nyerődik vissza – egyes drogok és gyógyszerek a visszavételt gátolják (pl. kokain – köv. félév) - gliasejtek is visszavehetnek transzmittert
Transzmitterspecifikus projekciók • az idegrendszerben végigkövethetőek az egy bizonyos átvivőanyagot tartalmazó idegsejtekből kiinduló pályák → funkcionálisan szervezettek • gyakran távoli területekhez futnak, szétágazóak lehetnek • megbetegedések kialakulásának feltérképezésében fontosak lehetnek • Pl. : substantia nigra (bazális ganglionok) dopaminerg projekciója: mozgások összerendezése; periaqueductalis magvak opioid projekciója: fájdalomérzet módosítása (ld. később)
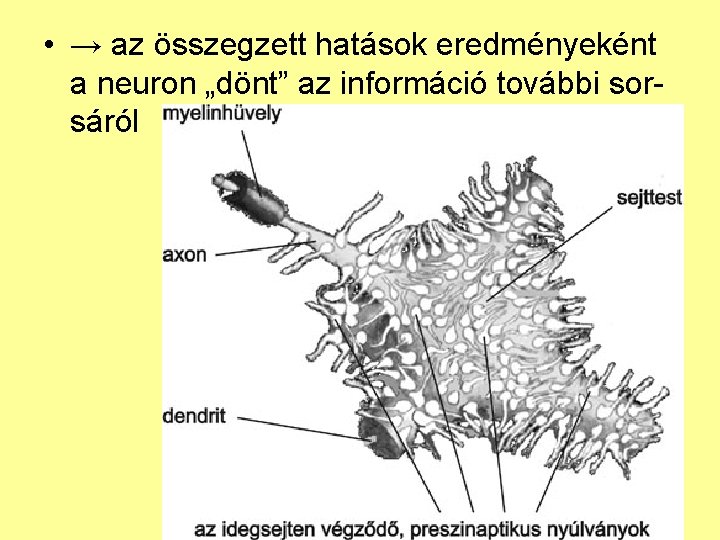
Szinaptikus áttevődés a központi idegrendszer neuronjaiban A neuron folyamatosan igen/nem döntéseket hoz → ez minden szinapszisnál megismétlődik => kp-i idegrendszeri működéseink ilyen döntéssorozatok eredményei • Egy neuron dendritjein / sejttestén rengeteg szinaptikus végződés van: több ezer másik neurontól kap információt (= konvergencia elv) + axonelágazásai és dendritjei révén sok neuronra továbbítódik az ő jele (= divergencia elv)
• → az összegzett hatások eredményeként a neuron „dönt” az információ további sorsáról
Az ingerfelvétel módosulásai: • A hosszan tartó ingerlés kétféle változást is kiválthat az axondombon: - a depolarizáció alatt az axondombon a K+-csatornák nagyobb mértékben nyílnak => gyorsítja a repolarizációt => a refrakter szakasz csökken, így a neuron ingerületleadási frekvenciája megnő - vagy: másfajta K+-csatornák nyílnak az axondombon => hiperpolarizálja a membránt => nagyobb preszinaptikus jel szükséges az ingerülethez. Ez az adaptálódás.
A szinaptikus plaszticitás: • Preszinaptikus facilitálás (nem másik, az axonterminalison szinaptizáló neuron miatti!) gyorsan egymást követő bejövő ingerületek Ca 2+csatornákat nyitnak → a Ca 2+-ok egy része visszamarad a szinaptikus résben => egyre nagyobb transzmitterfelszabadulást eredményeznek. • Posztszinaptikus módosulás: LTP (long term potentiation; „hosszú távú potenciálódás”) ha a preszinaptikus ingerületsorozat frekvenciája elég magas => percektől–napokig ( –hetekig) módosíthatja a posztszinaptikus ingerületleadásokat
→ ugyanakkora preszinaptikus aktiválás nagyobb potenciált vált ki: tehát a neuron könnyebben aktiválható lesz - az LTP létrejöttében valószínűleg többféle eltérő mechanizmus szerepel (ld. még köv. félév: tanulás, emlékezet)
Szinapszisokra ható anyagok neurotoxinok Botulinummérgezés: Clostridium botulinum anaerob talajbaktérium • rosszul sterilizált húskészítményekben (roszszul füstölt kolbász), húskonzervekben, főzelékkonzervekben • a proteáz hatású toxin az idegvégződésbe jutva bontja az exocytosisban részt vevő fehérjék egy részét => megszűnik a trm. felszabadulás: bénulás • már mikrogramm mennyiségben hatásos
• az elfogyasztás után néhány órával jelentkeznek az első tünetek • a légzőizmok bénulása halálos lehet • ha nem volt halálos kimenetelű, egyes izmok hónapokig bénultak maradhatnak • szépségiparban: botox-kezelés (ráncképződésért felelős izmocskák bénítása hónapokra) • gyógyítás: görcsös állapotok kezelése
Kuráre: (Chondrodendron tomentosum d-am. növény) • d-tubokurarin nevű toxin a dél-amerikai indián nyílméreg hatóanyaga • az n-ACh-receptorhoz kötődnek → nem nyitják, de a felszabadult acetilkolin transzmitter kötődését megakadályozzák => izombénulás
Nyílméregbéka: 28 alkaloidcsalád, pl. : batrachotoxin (gör. „batrachos” = béka) • irreverzibilisen kötődik a Na-csatornákhoz és kinyitja azokat → permanens nyitottság → depolarizáció → a neuron nem tudja visszanyerni a nyugalmi potenciált, így akciós pot. -t sem tud generálni: működése leáll → bénulás • + szívizombénító: arrythmia, extrasystole, kamrai fibrilláció → szívmegállás
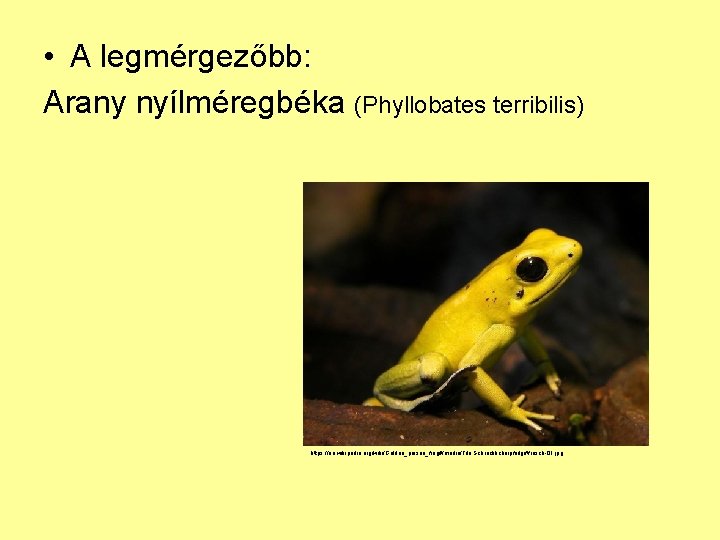
• A legmérgezőbb: Arany nyílméregbéka (Phyllobates terribilis) https: //en. wikipedia. org/wiki/Golden_poison_frog#/media/File: Schrecklicherpfeilgiftfrosch-01. jpg
Acetil-kolin-észteráz-gátlók: • Növényvédőszerek (parathion), II. világháborúban használt harci gázok (Tabun, Sarin – 1995ös tokiói terrorakció!) • az ACh-észteráz bontja el az ACh transzmittert → ha ezt gátolják => túl sok trm. marad vissza a szinaptikus résekben => túlingerlés • jellegzetes autonóm idegrendszeri tünetek: nyálfolyás, mellkasi szorítás, pupillaszűkülés, → majd hányás, vizelés, székletürítés, keringési zavarok, izomrángások-görcsök, kóma, halál • ha nem letális dózisban történt a mérgezés + a mérgezett nem kap megfelelő kezelést => tartós idegrendszeri károsodások
Ábrák forrása • • • • • • http: //www. benbest. com/cryonics/Astrocyte. jpg http: //www. nature. com/nrn/journal/v 6/n 9/images/nrn 1743 -f 1. jpg http: //thebrain. mcgill. ca/flash/i/i_01_cl/i_01_cl_fon_2 a. jpg http: //www. nature. com/nrn/journal/v 4/n 12/images/nrn 1253 -f 1. jpg http: //www. nature. com/nm/journal/v 12/n 8/images/nm 0806 -885 -F 1. jpg http: //www 2. cedarcrest. edu/academic/bio/hale/bio. T_EID/lectures/tetanus-neuron. gif http: //www. bio. miami. edu/~cmallery/150/neuro/c 7. 48. 8. node. ranvier. jpg http: //www. psych. ndsu. nodak. edu/mccourt/Psy 460/Neurophysiology%20 of%20 vision/node%20 of %20 ranvier. JPG http: //www. mc. vanderbilt. edu/histology/images/histology/nervous_tissue/display/schwann 3. jpg http: //www. greenspine. ca/media/m. GFP_neuron 2. jpg http: //library. thinkquest. org/C 0126536/neuron_type. gif http: //faculty. irsc. edu/FACULTY/TFischer/AP 1/resting%20 membrane%20 potential 2. jpg http: //www. colorado. edu/intphys/Class/IPHY 3730/image/figure 3 -10. jpg http: //faculty. irsc. edu/FACULTY/TFischer/AP 1/resting%20 membrane%20 potential. jpg http: //m. blog. hu/ak/akciospotencial/image/psychenova/videok_az_agybol_az_akcios_potencial/ak cpot. jpg http: //www. mindcreators. com/Images/NB_Ion. Flow. gif http: //antranik. org/wp-content/uploads/2012/04/synapse. jpg http: //www. txtwriter. com/Backgrounders/Drugaddiction/synapse. jpg http: //aids. hallym. ac. kr/d/kns/tutor/medical/01 premed 2/chapter 45/preif. gif http: //epa. oszk. hu/00600/00691/00003/madarasz 02. jpg http: //www. ntbg. org/plants/imageonly. php? rid=416&plantid=2749