
Apuntes de BOINFORMTICA Curso 2008 2009 Material de
Apuntes de BOINFORMÁTICA Curso 2008 -2009 (Material de apoyo multimedia) 1
Introducción 2
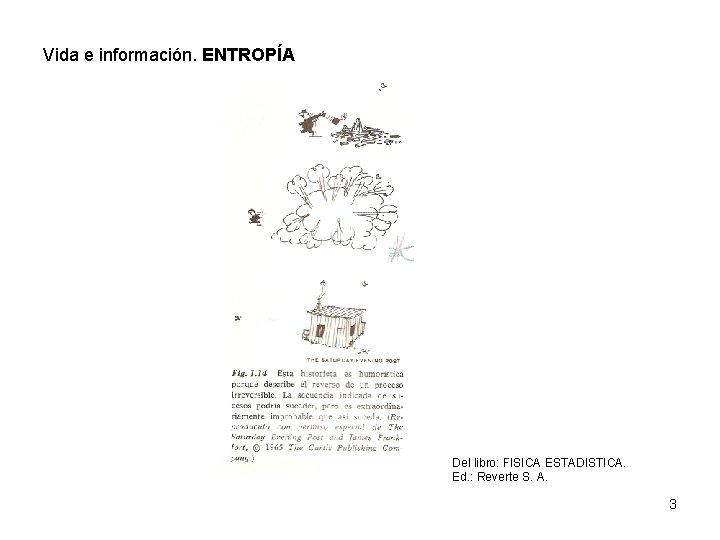
Vida e información. ENTROPÍA Del libro: FISICA ESTADISTICA. Ed. : Reverte S. A. 3
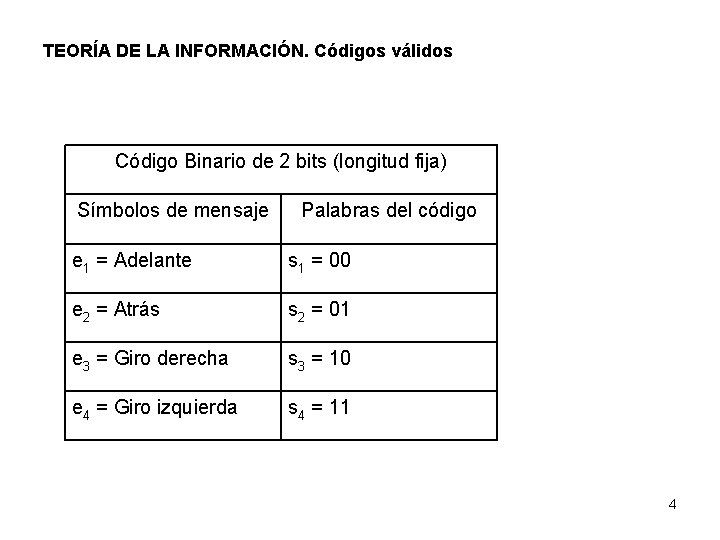
TEORÍA DE LA INFORMACIÓN. Códigos válidos Código Binario de 2 bits (longitud fija) Símbolos de mensaje Palabras del código e 1 = Adelante s 1 = 00 e 2 = Atrás s 2 = 01 e 3 = Giro derecha s 3 = 10 e 4 = Giro izquierda s 4 = 11 4
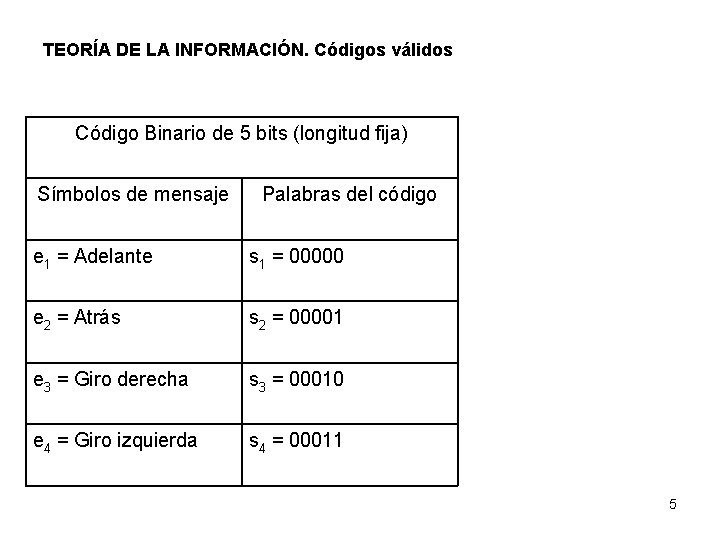
TEORÍA DE LA INFORMACIÓN. Códigos válidos Código Binario de 5 bits (longitud fija) Símbolos de mensaje Palabras del código e 1 = Adelante s 1 = 00000 e 2 = Atrás s 2 = 00001 e 3 = Giro derecha s 3 = 00010 e 4 = Giro izquierda s 4 = 00011 5
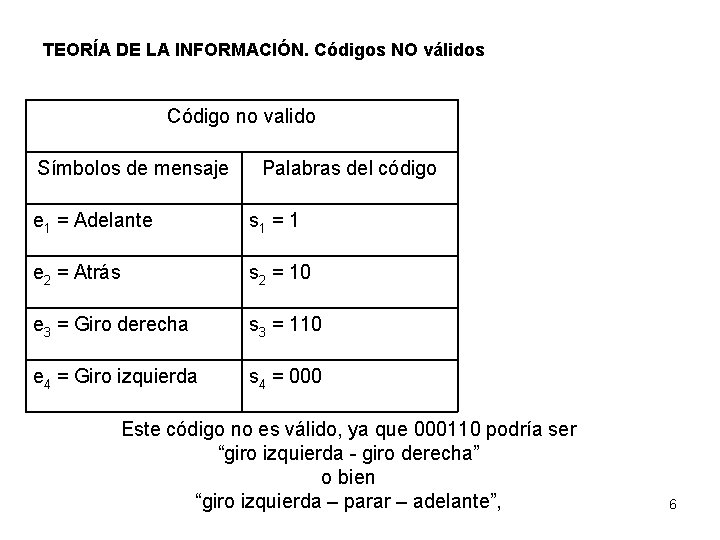
TEORÍA DE LA INFORMACIÓN. Códigos NO válidos Código no valido Símbolos de mensaje Palabras del código e 1 = Adelante s 1 = 1 e 2 = Atrás s 2 = 10 e 3 = Giro derecha s 3 = 110 e 4 = Giro izquierda s 4 = 000 Este código no es válido, ya que 000110 podría ser “giro izquierda - giro derecha” o bien “giro izquierda – parar – adelante”, 6
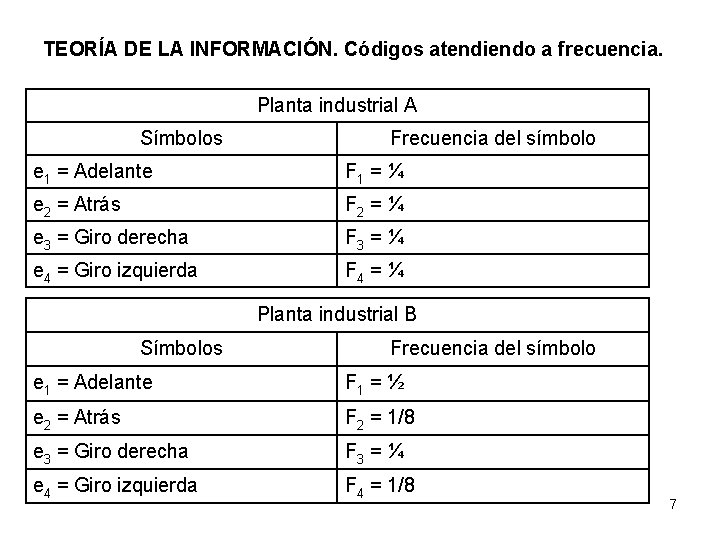
TEORÍA DE LA INFORMACIÓN. Códigos atendiendo a frecuencia. Planta industrial A Símbolos Frecuencia del símbolo e 1 = Adelante F 1 = ¼ e 2 = Atrás F 2 = ¼ e 3 = Giro derecha F 3 = ¼ e 4 = Giro izquierda F 4 = ¼ Planta industrial B Símbolos Frecuencia del símbolo e 1 = Adelante F 1 = ½ e 2 = Atrás F 2 = 1/8 e 3 = Giro derecha F 3 = ¼ e 4 = Giro izquierda F 4 = 1/8 7
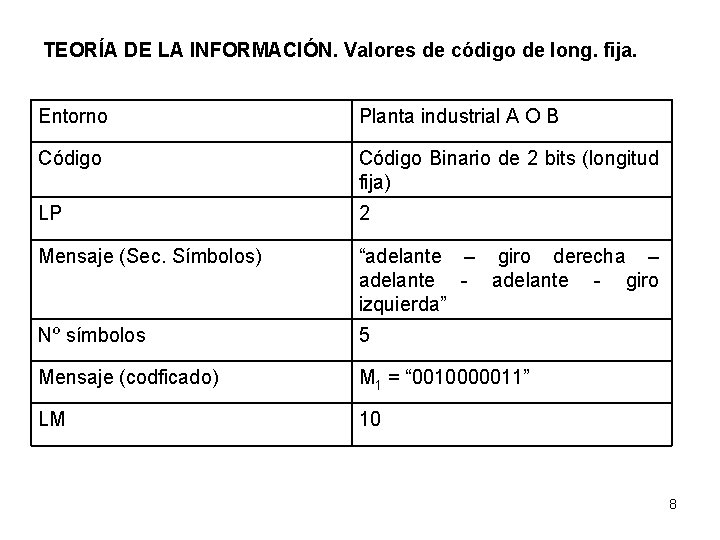
TEORÍA DE LA INFORMACIÓN. Valores de código de long. fija. Entorno Planta industrial A O B Código Binario de 2 bits (longitud fija) LP 2 Mensaje (Sec. Símbolos) “adelante – giro derecha – adelante - giro izquierda” Nº símbolos 5 Mensaje (codficado) M 1 = “ 0010000011” LM 10 8
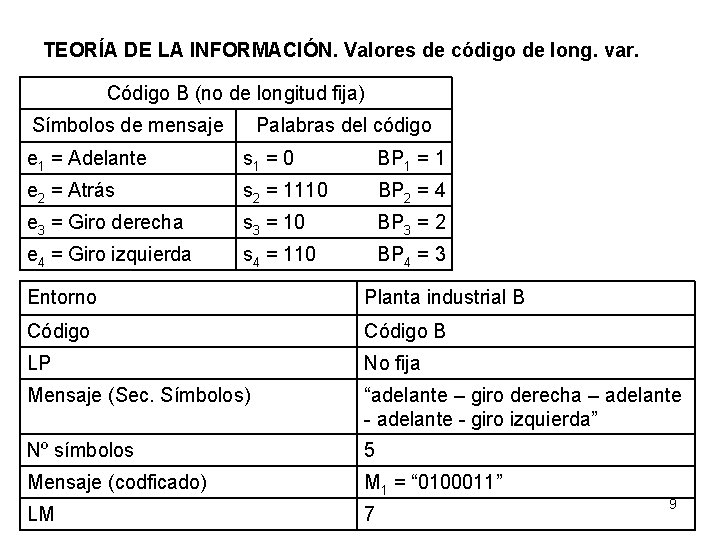
TEORÍA DE LA INFORMACIÓN. Valores de código de long. var. Código B (no de longitud fija) Símbolos de mensaje Palabras del código e 1 = Adelante s 1 = 0 BP 1 = 1 e 2 = Atrás s 2 = 1110 BP 2 = 4 e 3 = Giro derecha s 3 = 10 BP 3 = 2 e 4 = Giro izquierda s 4 = 110 BP 4 = 3 Entorno Planta industrial B Código B LP No fija Mensaje (Sec. Símbolos) “adelante – giro derecha – adelante - giro izquierda” Nº símbolos 5 Mensaje (codficado) M 1 = “ 0100011” LM 7 9
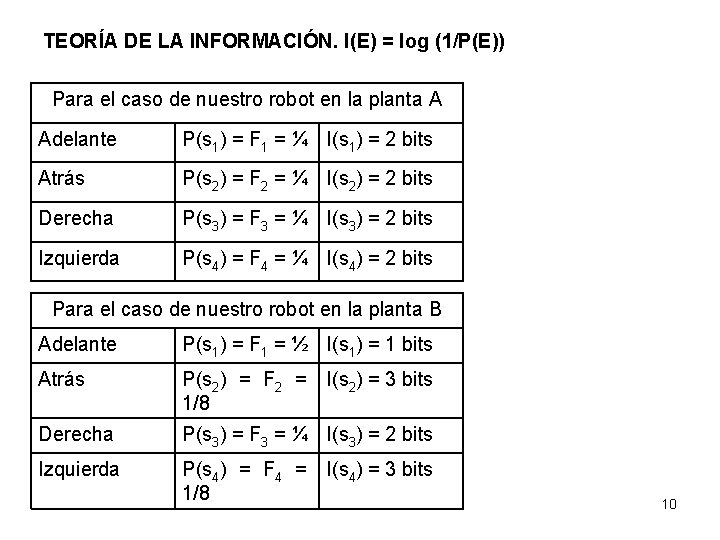
TEORÍA DE LA INFORMACIÓN. I(E) = log (1/P(E)) Para el caso de nuestro robot en la planta A Adelante P(s 1) = F 1 = ¼ I(s 1) = 2 bits Atrás P(s 2) = F 2 = ¼ I(s 2) = 2 bits Derecha P(s 3) = F 3 = ¼ I(s 3) = 2 bits Izquierda P(s 4) = F 4 = ¼ I(s 4) = 2 bits Para el caso de nuestro robot en la planta B Adelante P(s 1) = F 1 = ½ I(s 1) = 1 bits Atrás P(s 2) = F 2 = I(s 2) = 3 bits 1/8 Derecha P(s 3) = F 3 = ¼ I(s 3) = 2 bits Izquierda P(s 4) = F 4 = I(s 4) = 3 bits 1/8 10
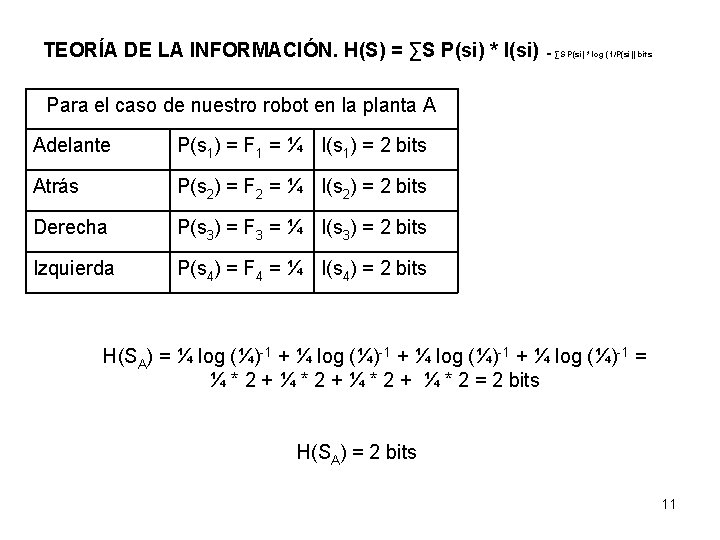
TEORÍA DE LA INFORMACIÓN. H(S) = ∑S P(si) * I(si) = ∑S P(si) * log (1/P(si)) bits Para el caso de nuestro robot en la planta A Adelante P(s 1) = F 1 = ¼ I(s 1) = 2 bits Atrás P(s 2) = F 2 = ¼ I(s 2) = 2 bits Derecha P(s 3) = F 3 = ¼ I(s 3) = 2 bits Izquierda P(s 4) = F 4 = ¼ I(s 4) = 2 bits H(SA) = ¼ log (¼)-1 + ¼ log (¼)-1 = ¼ * 2 + ¼ * 2 = 2 bits H(SA) = 2 bits 11
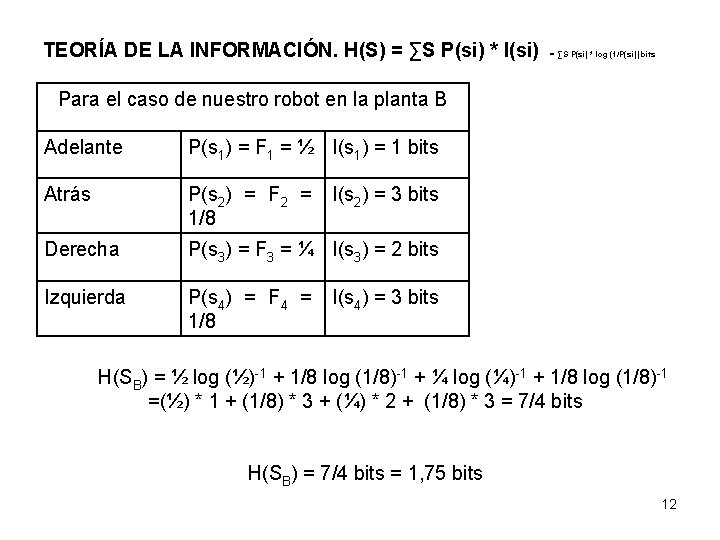
TEORÍA DE LA INFORMACIÓN. H(S) = ∑S P(si) * I(si) = ∑S P(si) * log (1/P(si)) bits Para el caso de nuestro robot en la planta B Adelante P(s 1) = F 1 = ½ I(s 1) = 1 bits Atrás P(s 2) = F 2 = I(s 2) = 3 bits 1/8 Derecha P(s 3) = F 3 = ¼ I(s 3) = 2 bits Izquierda P(s 4) = F 4 = I(s 4) = 3 bits 1/8 H(SB) = ½ log (½)-1 + 1/8 log (1/8)-1 + ¼ log (¼)-1 + 1/8 log (1/8)-1 =(½) * 1 + (1/8) * 3 + (¼) * 2 + (1/8) * 3 = 7/4 bits H(SB) = 7/4 bits = 1, 75 bits 12
Genética 13
GENÉTICA MENDELIANA Gregor Johann Mendel Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 14
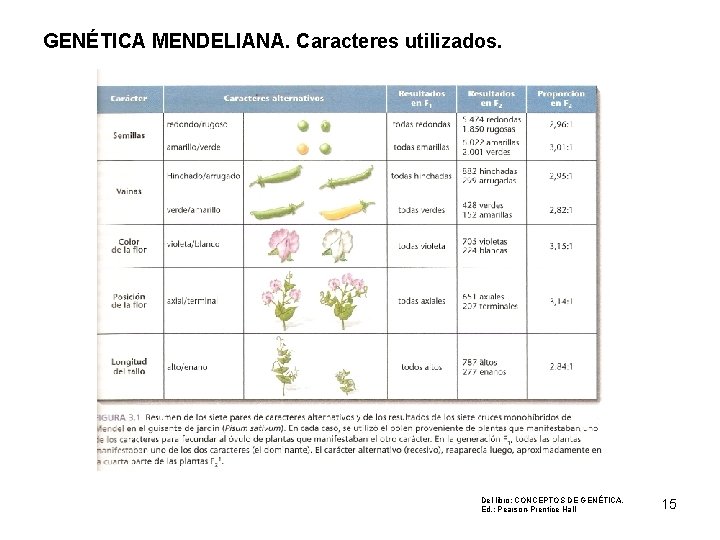
GENÉTICA MENDELIANA. Caracteres utilizados. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 15
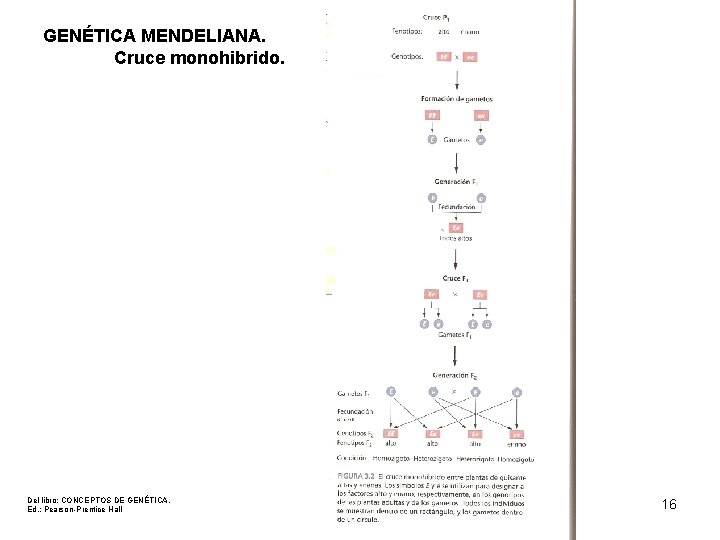
GENÉTICA MENDELIANA. Cruce monohibrido. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 16
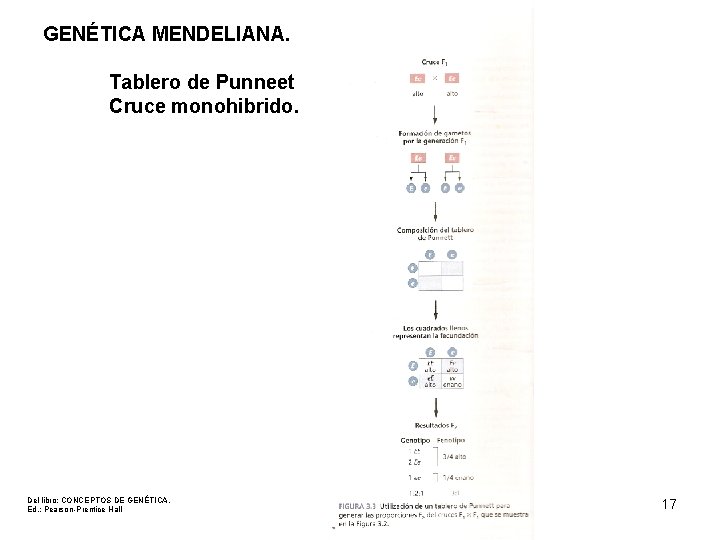
GENÉTICA MENDELIANA. Tablero de Punneet Cruce monohibrido. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 17
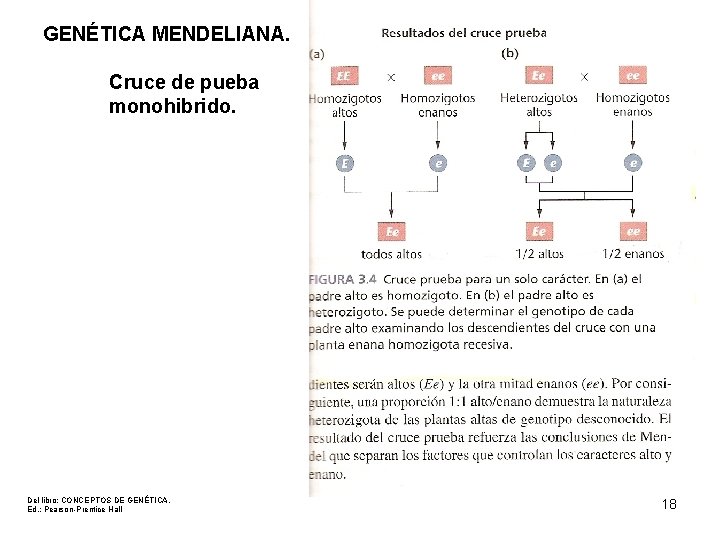
GENÉTICA MENDELIANA. Cruce de pueba monohibrido. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 18
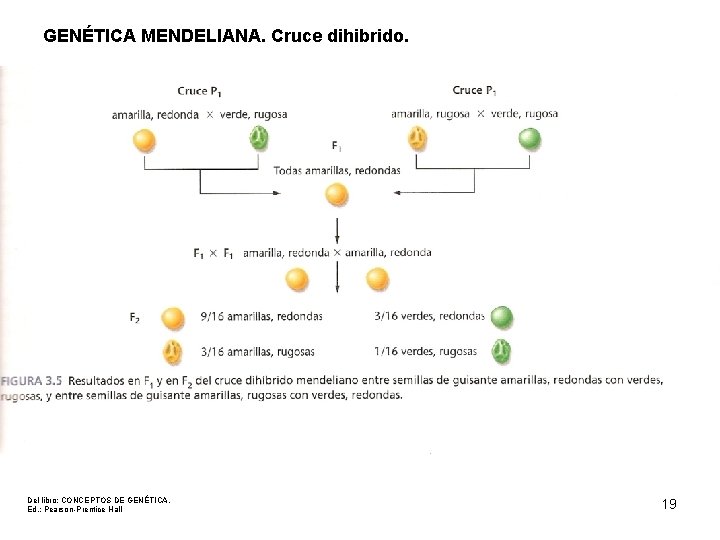
GENÉTICA MENDELIANA. Cruce dihibrido. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 19
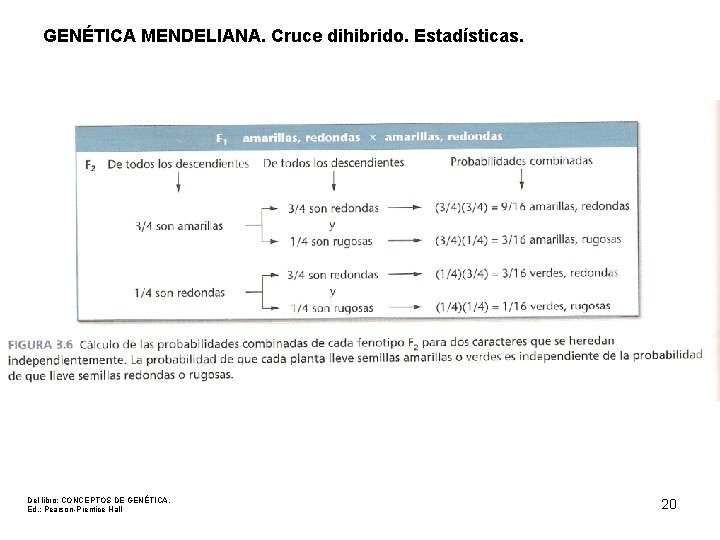
GENÉTICA MENDELIANA. Cruce dihibrido. Estadísticas. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 20
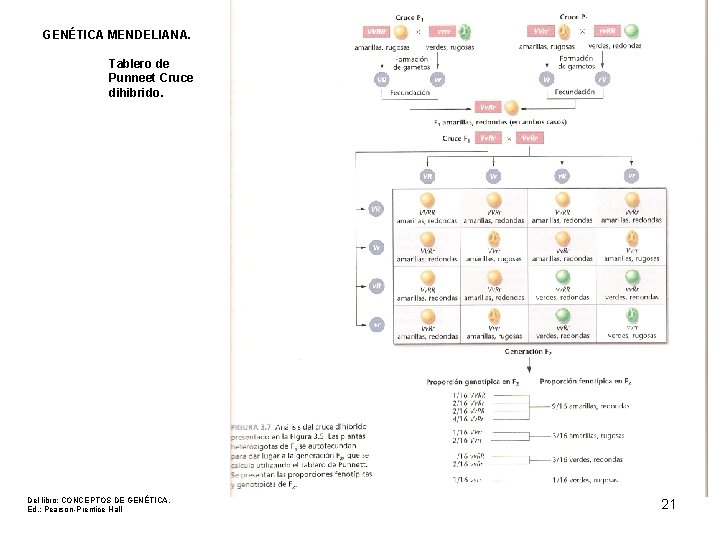
GENÉTICA MENDELIANA. Tablero de Punneet Cruce dihibrido. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 21
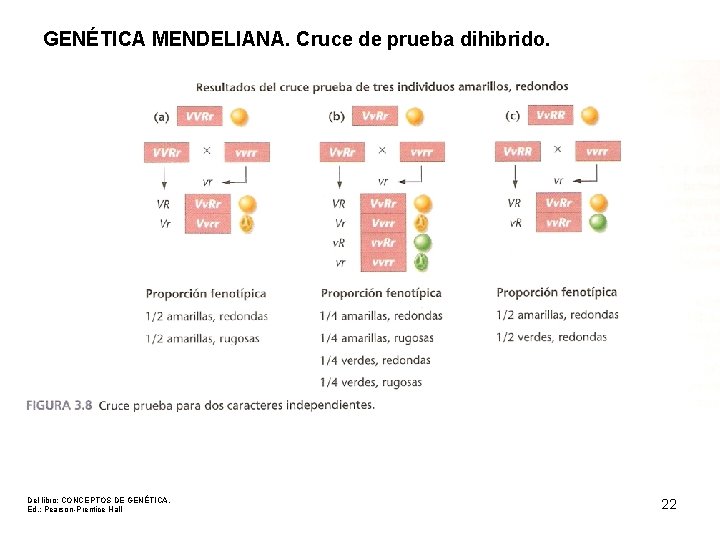
GENÉTICA MENDELIANA. Cruce de prueba dihibrido. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 22
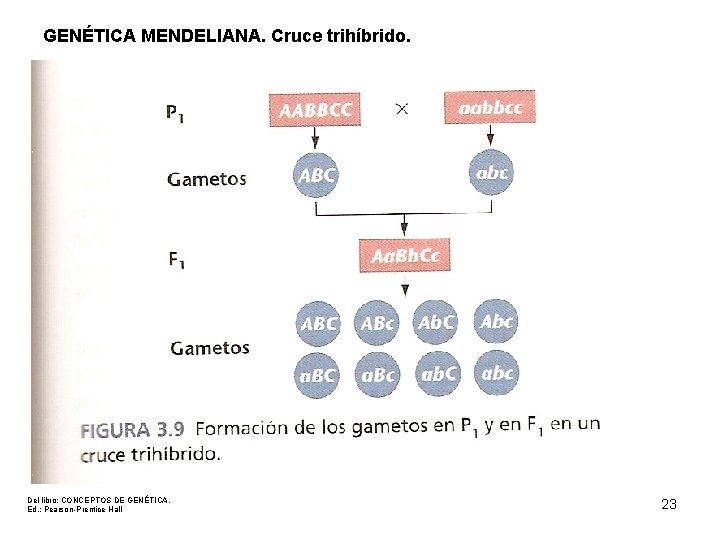
GENÉTICA MENDELIANA. Cruce trihíbrido. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 23
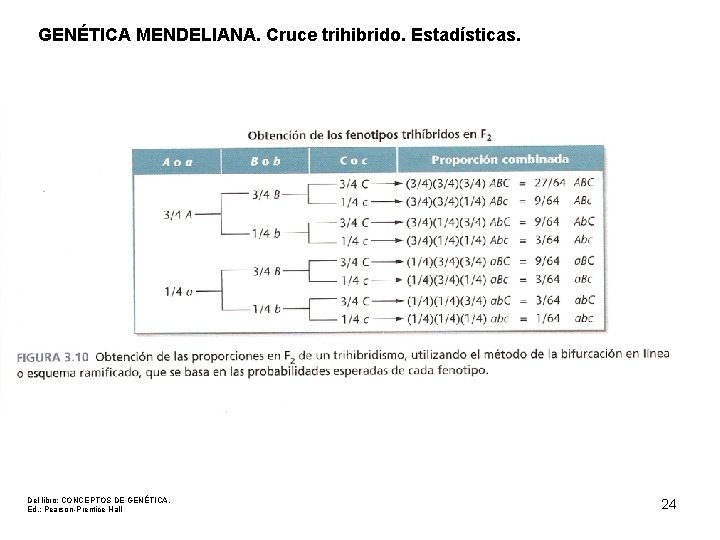
GENÉTICA MENDELIANA. Cruce trihibrido. Estadísticas. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 24
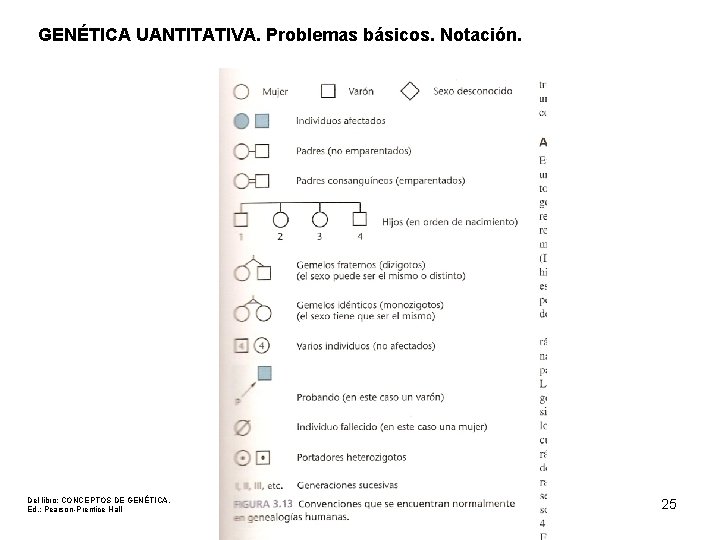
GENÉTICA UANTITATIVA. Problemas básicos. Notación. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 25
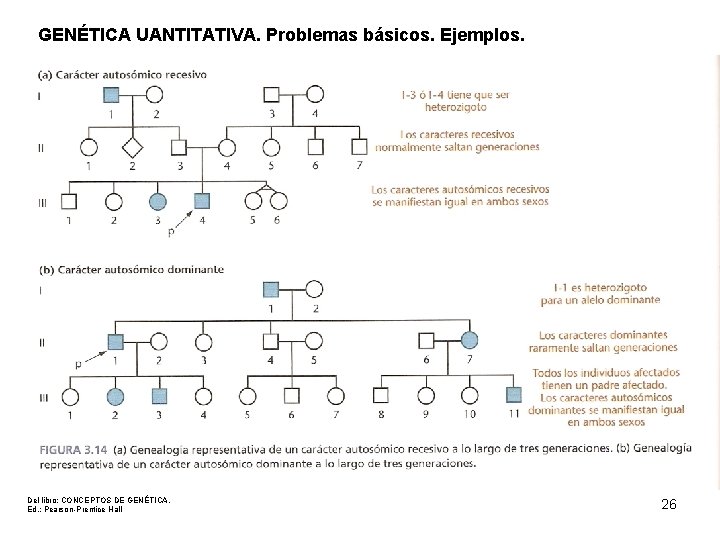
GENÉTICA UANTITATIVA. Problemas básicos. Ejemplos. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 26
GENÉTICA UANTITATIVA. Problemas básicos. Problema 1. En los humanos el albinismo es un carácter recesivo simple. De dos padres normales nacen cuatro hijos normales y uno albino. Determine los genotipos de padres y descendientes Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 27
GENÉTICA UANTITATIVA. Problemas básicos. Problema 2. En los humanos el albinismo es un carácter recesivo simple. Una mujer albina y un varon normal tienen 6 hijos, ninguno de ellos albino. Determine los genotipos de padres y descendientes Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 28
GENÉTICA UANTITATIVA. Problemas básicos. Problema 3. En los humanos el albinismo es un carácter recesivo simple. Una hembra albina y un varon normal tienen 3 hijos albino y 3 normales. Determine los genotipos de padres y descendientes Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 29
GENÉTICA UANTITATIVA. Problemas básicos. Problema 4. En los humanos el albinismo es un carácter recesivo simple. Representa gráficamente la genealogía para los problemas 2 y 3. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 30
GENÉTICA UANTITATIVA. Problemas básicos. Problema 5. En los humanos el albinismo es un carácter recesivo simple. Suponga que un hijo albino del problema 3 se casa con uno normal del problema 2 y tienen 8 hijos. ¿Cuál debería ser su fenotipo? Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 31
GENÉTICA CUANTITATIVA “La Bacanal” de Tiziano 32
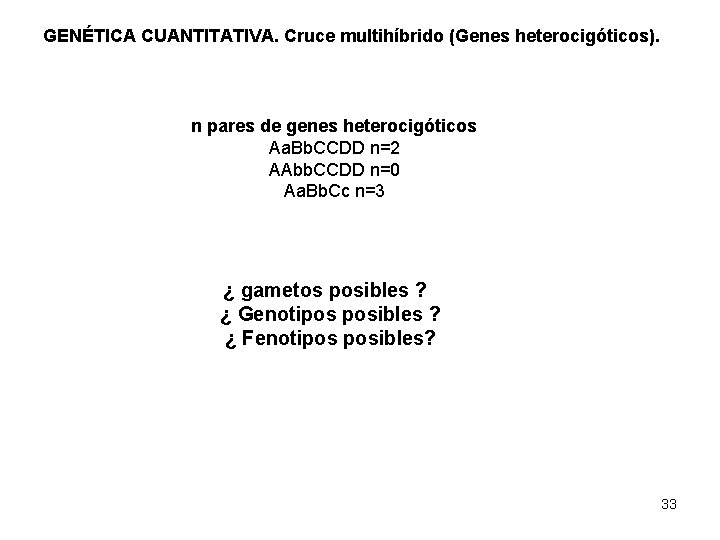
GENÉTICA CUANTITATIVA. Cruce multihíbrido (Genes heterocigóticos). n pares de genes heterocigóticos Aa. Bb. CCDD n=2 AAbb. CCDD n=0 Aa. Bb. Cc n=3 ¿ gametos posibles ? ¿ Genotipos posibles ? ¿ Fenotipos posibles? 33
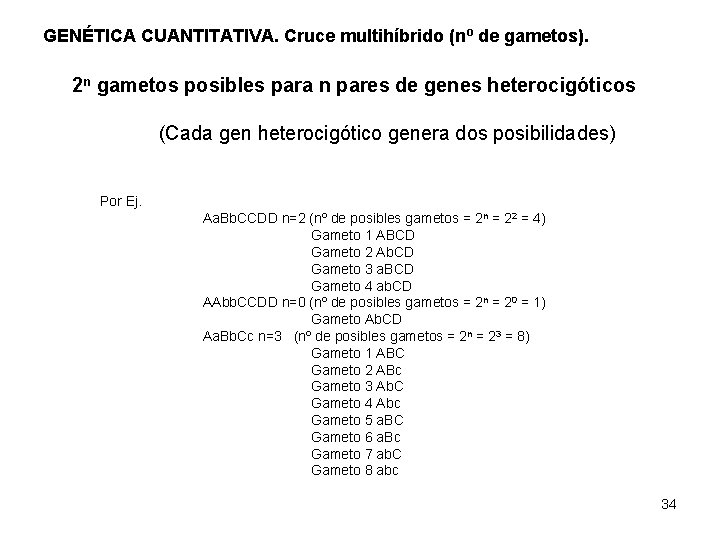
GENÉTICA CUANTITATIVA. Cruce multihíbrido (nº de gametos). 2 n gametos posibles para n pares de genes heterocigóticos (Cada gen heterocigótico genera dos posibilidades) Por Ej. Aa. Bb. CCDD n=2 (nº de posibles gametos = 2 n = 22 = 4) Gameto 1 ABCD Gameto 2 Ab. CD Gameto 3 a. BCD Gameto 4 ab. CD AAbb. CCDD n=0 (nº de posibles gametos = 2 n = 20 = 1) Gameto Ab. CD Aa. Bb. Cc n=3 (nº de posibles gametos = 2 n = 23 = 8) Gameto 1 ABC Gameto 2 ABc Gameto 3 Ab. C Gameto 4 Abc Gameto 5 a. BC Gameto 6 a. Bc Gameto 7 ab. C Gameto 8 abc 34
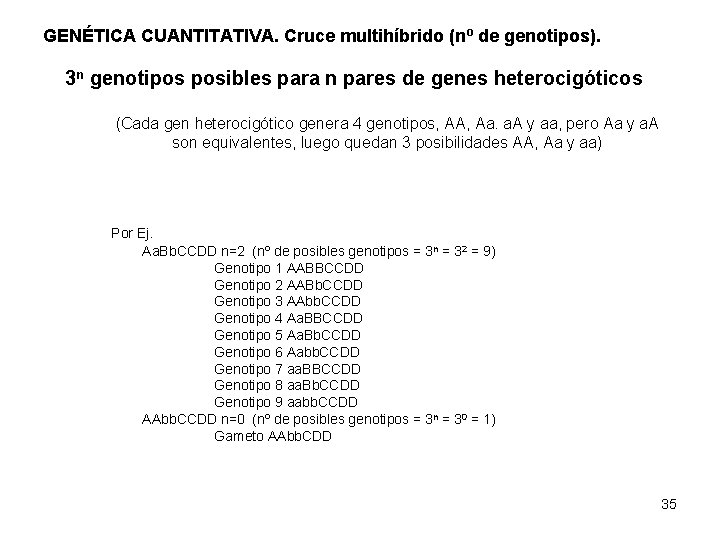
GENÉTICA CUANTITATIVA. Cruce multihíbrido (nº de genotipos). 3 n genotipos posibles para n pares de genes heterocigóticos (Cada gen heterocigótico genera 4 genotipos, AA, Aa. a. A y aa, pero Aa y a. A son equivalentes, luego quedan 3 posibilidades AA, Aa y aa) Por Ej. Aa. Bb. CCDD n=2 (nº de posibles genotipos = 3 n = 32 = 9) Genotipo 1 AABBCCDD Genotipo 2 AABb. CCDD Genotipo 3 AAbb. CCDD Genotipo 4 Aa. BBCCDD Genotipo 5 Aa. Bb. CCDD Genotipo 6 Aabb. CCDD Genotipo 7 aa. BBCCDD Genotipo 8 aa. Bb. CCDD Genotipo 9 aabb. CCDD AAbb. CCDD n=0 (nº de posibles genotipos = 3 n = 30 = 1) Gameto AAbb. CDD 35
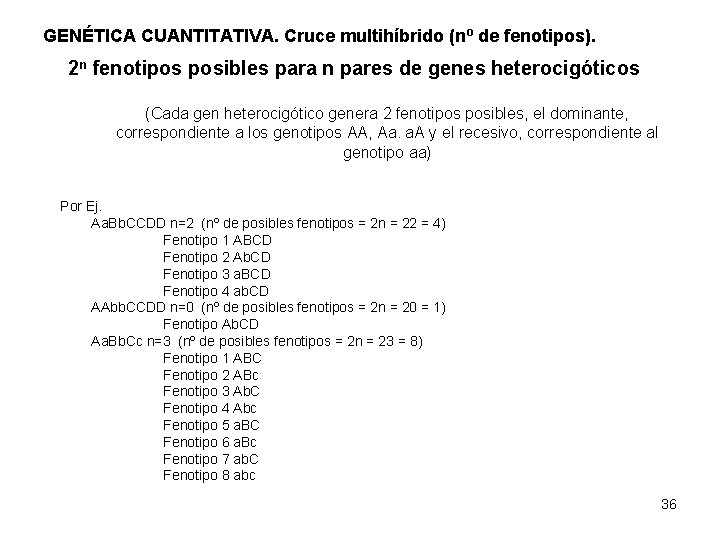
GENÉTICA CUANTITATIVA. Cruce multihíbrido (nº de fenotipos). 2 n fenotipos posibles para n pares de genes heterocigóticos (Cada gen heterocigótico genera 2 fenotipos posibles, el dominante, correspondiente a los genotipos AA, Aa. a. A y el recesivo, correspondiente al genotipo aa) Por Ej. Aa. Bb. CCDD n=2 (nº de posibles fenotipos = 2 n = 22 = 4) Fenotipo 1 ABCD Fenotipo 2 Ab. CD Fenotipo 3 a. BCD Fenotipo 4 ab. CD AAbb. CCDD n=0 (nº de posibles fenotipos = 2 n = 20 = 1) Fenotipo Ab. CD Aa. Bb. Cc n=3 (nº de posibles fenotipos = 2 n = 23 = 8) Fenotipo 1 ABC Fenotipo 2 ABc Fenotipo 3 Ab. C Fenotipo 4 Abc Fenotipo 5 a. BC Fenotipo 6 a. Bc Fenotipo 7 ab. C Fenotipo 8 abc 36
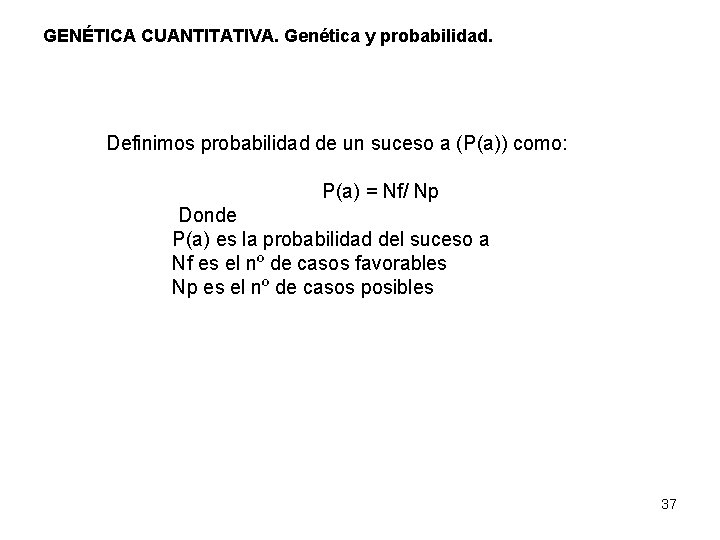
GENÉTICA CUANTITATIVA. Genética y probabilidad. Definimos probabilidad de un suceso a (P(a)) como: P(a) = Nf/ Np Donde P(a) es la probabilidad del suceso a Nf es el nº de casos favorables Np es el nº de casos posibles 37
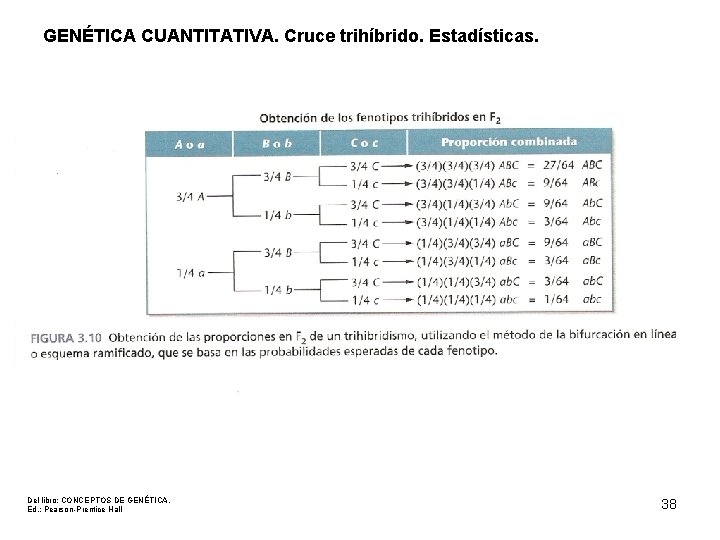
GENÉTICA CUANTITATIVA. Cruce trihíbrido. Estadísticas. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 38
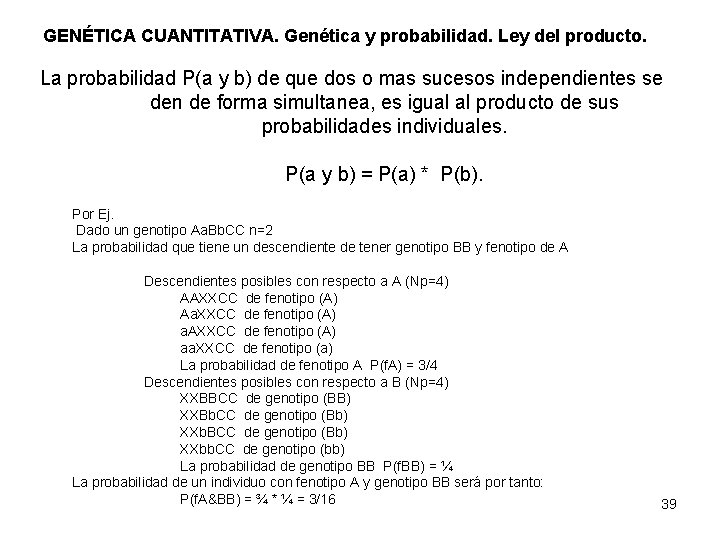
GENÉTICA CUANTITATIVA. Genética y probabilidad. Ley del producto. La probabilidad P(a y b) de que dos o mas sucesos independientes se den de forma simultanea, es igual al producto de sus probabilidades individuales. P(a y b) = P(a) * P(b). Por Ej. Dado un genotipo Aa. Bb. CC n=2 La probabilidad que tiene un descendiente de tener genotipo BB y fenotipo de A Descendientes posibles con respecto a A (Np=4) AAXXCC de fenotipo (A) Aa. XXCC de fenotipo (A) a. AXXCC de fenotipo (A) aa. XXCC de fenotipo (a) La probabilidad de fenotipo A P(f. A) = 3/4 Descendientes posibles con respecto a B (Np=4) XXBBCC de genotipo (BB) XXBb. CC de genotipo (Bb) XXb. BCC de genotipo (Bb) XXbb. CC de genotipo (bb) La probabilidad de genotipo BB P(f. BB) = ¼ La probabilidad de un individuo con fenotipo A y genotipo BB será por tanto: P(f. A&BB) = ¾ * ¼ = 3/16 39
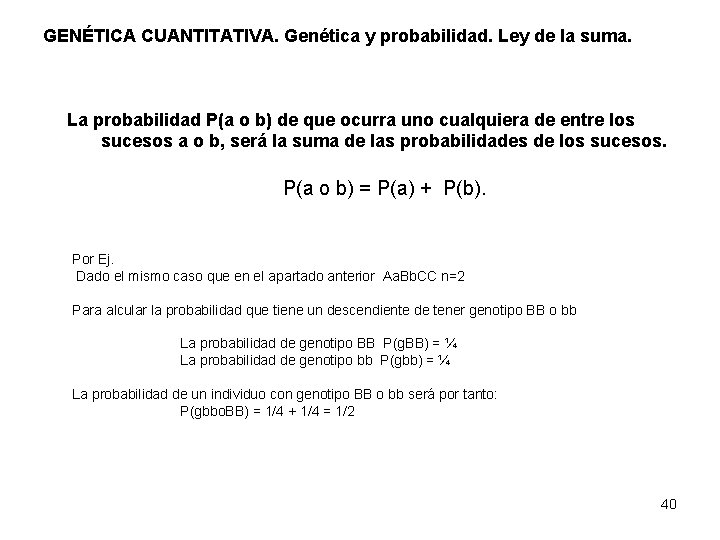
GENÉTICA CUANTITATIVA. Genética y probabilidad. Ley de la suma. La probabilidad P(a o b) de que ocurra uno cualquiera de entre los sucesos a o b, será la suma de las probabilidades de los sucesos. P(a o b) = P(a) + P(b). Por Ej. Dado el mismo caso que en el apartado anterior Aa. Bb. CC n=2 Para alcular la probabilidad que tiene un descendiente de tener genotipo BB o bb La probabilidad de genotipo BB P(g. BB) = ¼ La probabilidad de genotipo bb P(gbb) = ¼ La probabilidad de un individuo con genotipo BB o bb será por tanto: P(gbbo. BB) = 1/4 + 1/4 = 1/2 40
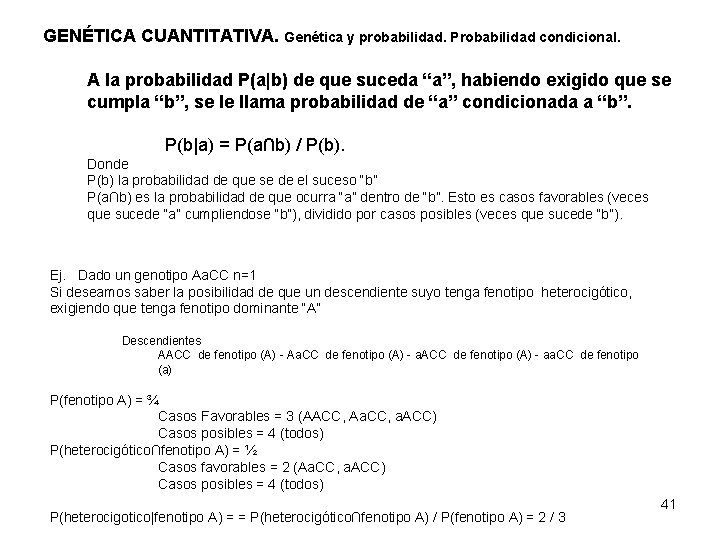
GENÉTICA CUANTITATIVA. Genética y probabilidad. Probabilidad condicional. A la probabilidad P(a|b) de que suceda “a”, habiendo exigido que se cumpla “b”, se le llama probabilidad de “a” condicionada a “b”. P(b|a) = P(a∩b) / P(b). Donde P(b) la probabilidad de que se de el suceso “b” P(a∩b) es la probabilidad de que ocurra “a” dentro de “b”. Esto es casos favorables (veces que sucede “a” cumpliendose “b”), dividido por casos posibles (veces que sucede “b”). Ej. Dado un genotipo Aa. CC n=1 Si deseamos saber la posibilidad de que un descendiente suyo tenga fenotipo heterocigótico, exigiendo que tenga fenotipo dominante “A” Descendientes AACC de fenotipo (A) - Aa. CC de fenotipo (A) - a. ACC de fenotipo (A) - aa. CC de fenotipo (a) P(fenotipo A) = ¾ Casos Favorables = 3 (AACC, Aa. CC, a. ACC) Casos posibles = 4 (todos) P(heterocigótico∩fenotipo A) = ½ Casos favorables = 2 (Aa. CC, a. ACC) Casos posibles = 4 (todos) P(heterocigotico|fenotipo A) = = P(heterocigótico∩fenotipo A) / P(fenotipo A) = 2 / 3 41
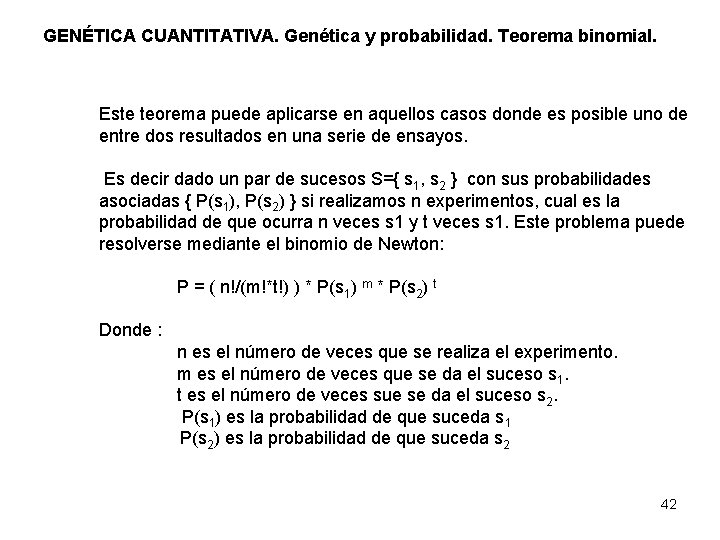
GENÉTICA CUANTITATIVA. Genética y probabilidad. Teorema binomial. Este teorema puede aplicarse en aquellos casos donde es posible uno de entre dos resultados en una serie de ensayos. Es decir dado un par de sucesos S={ s 1, s 2 } con sus probabilidades asociadas { P(s 1), P(s 2) } si realizamos n experimentos, cual es la probabilidad de que ocurra n veces s 1 y t veces s 1. Este problema puede resolverse mediante el binomio de Newton: P = ( n!/(m!*t!) ) * P(s 1) m * P(s 2) t Donde : n es el número de veces que se realiza el experimento. m es el número de veces que se da el suceso s 1. t es el número de veces sue se da el suceso s 2. P(s 1) es la probabilidad de que suceda s 1 P(s 2) es la probabilidad de que suceda s 2 42
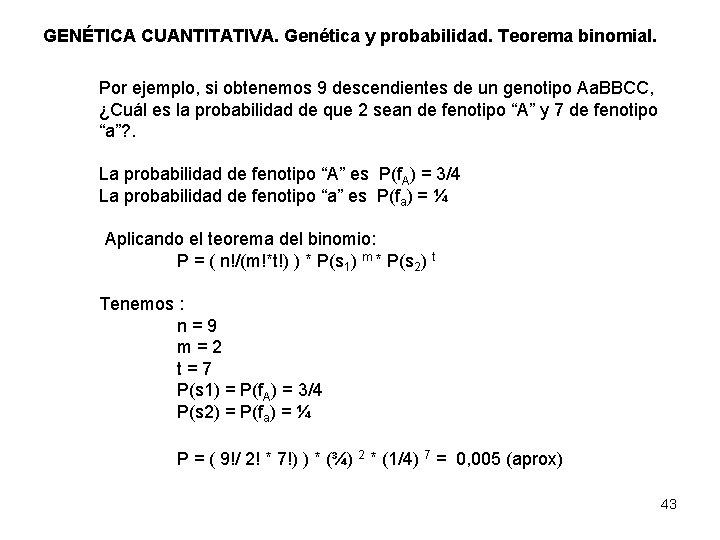
GENÉTICA CUANTITATIVA. Genética y probabilidad. Teorema binomial. Por ejemplo, si obtenemos 9 descendientes de un genotipo Aa. BBCC, ¿Cuál es la probabilidad de que 2 sean de fenotipo “A” y 7 de fenotipo “a”? . La probabilidad de fenotipo “A” es P(f. A) = 3/4 La probabilidad de fenotipo “a” es P(fa) = ¼ Aplicando el teorema del binomio: P = ( n!/(m!*t!) ) * P(s 1) m * P(s 2) t Tenemos : n = 9 m = 2 t = 7 P(s 1) = P(f. A) = 3/4 P(s 2) = P(fa) = ¼ P = ( 9!/ 2! * 7!) ) * (¾) 2 * (1/4) 7 = 0, 005 (aprox) 43
MECANISMOS GENÉTICOS 44
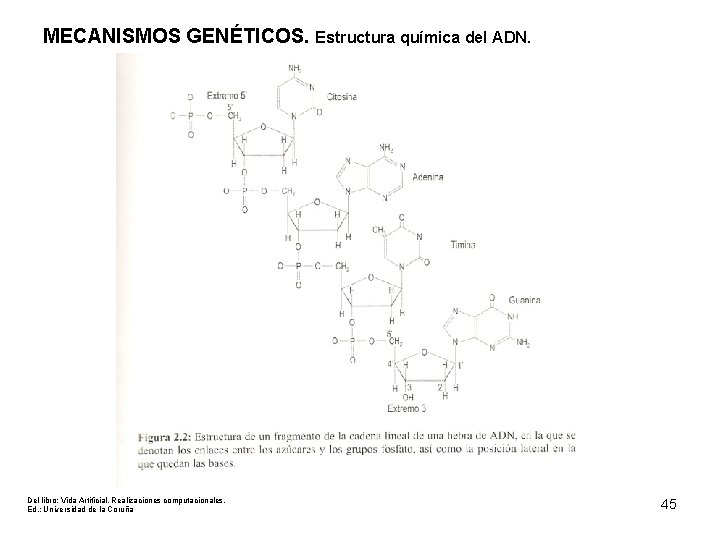
MECANISMOS GENÉTICOS. Estructura química del ADN. Del libro: Vida Artificial. Realizaciones computacionales. Ed. : Universidad de la Coruña 45
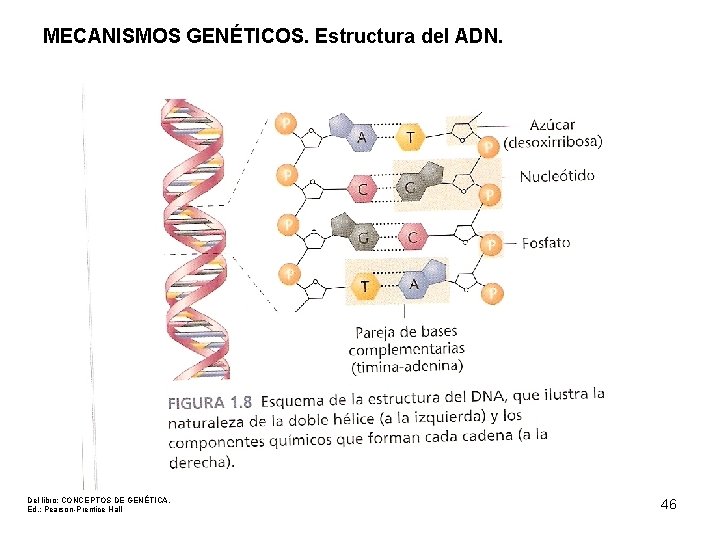
MECANISMOS GENÉTICOS. Estructura del ADN. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 46
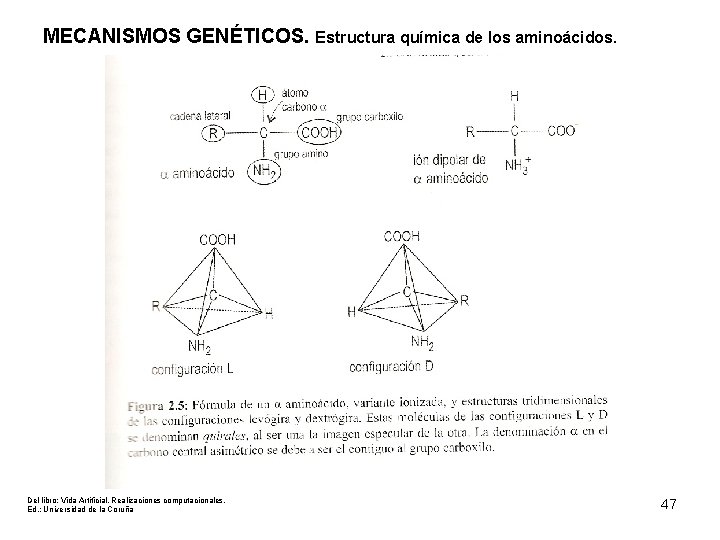
MECANISMOS GENÉTICOS. Estructura química de los aminoácidos. Del libro: Vida Artificial. Realizaciones computacionales. Ed. : Universidad de la Coruña 47
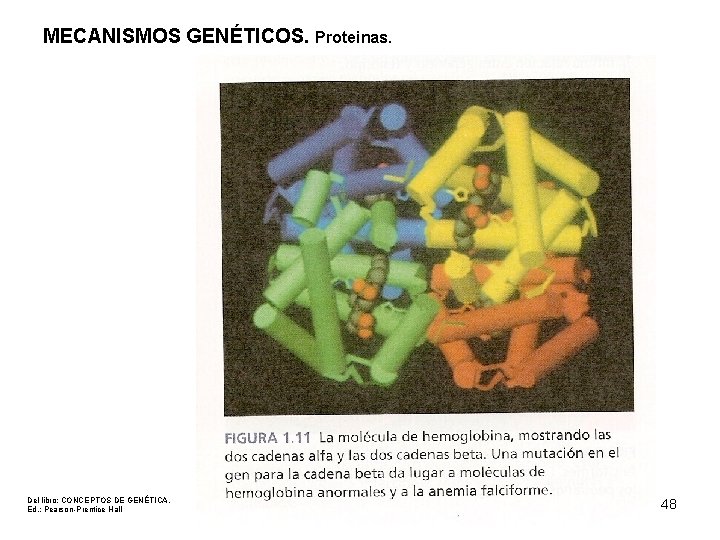
MECANISMOS GENÉTICOS. Proteinas. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 48
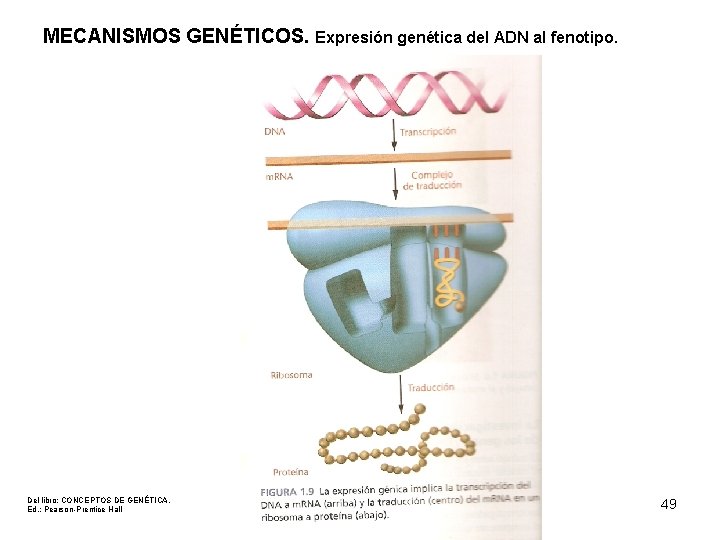
MECANISMOS GENÉTICOS. Expresión genética del ADN al fenotipo. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 49
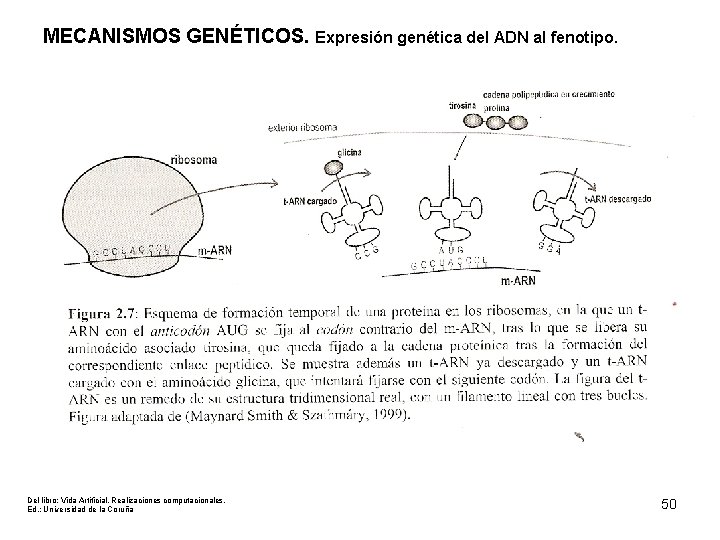
MECANISMOS GENÉTICOS. Expresión genética del ADN al fenotipo. Del libro: Vida Artificial. Realizaciones computacionales. Ed. : Universidad de la Coruña 50
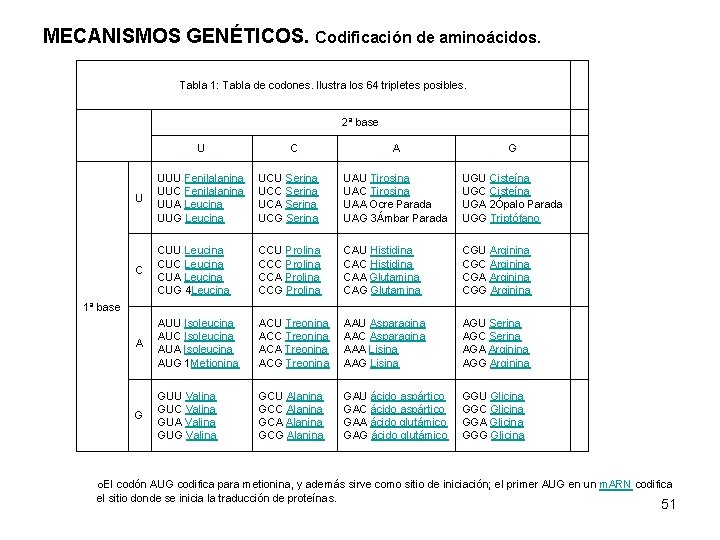
MECANISMOS GENÉTICOS. Codificación de aminoácidos. Tabla 1: Tabla de codones. Ilustra los 64 tripletes posibles. 2ª base U C A G U UUU Fenilalanina UUC Fenilalanina UUA Leucina UUG Leucina UCU Serina UCC Serina UCA Serina UCG Serina UAU Tirosina UAC Tirosina UAA Ocre Parada UAG 3Ámbar Parada UGU Cisteína UGC Cisteína UGA 2Ópalo Parada UGG Triptófano C CUU Leucina CUC Leucina CUA Leucina CUG 4 Leucina CCU Prolina CCC Prolina CCA Prolina CCG Prolina CAU Histidina CAC Histidina CAA Glutamina CAG Glutamina CGU Arginina CGC Arginina CGA Arginina CGG Arginina A AUU Isoleucina AUC Isoleucina AUA Isoleucina AUG 1 Metionina ACU Treonina ACC Treonina ACA Treonina ACG Treonina AAU Asparagina AAC Asparagina AAA Lisina AAG Lisina AGU Serina AGC Serina AGA Arginina AGG Arginina G GUU Valina GUC Valina GUA Valina GUG Valina GCU Alanina GCC Alanina GCA Alanina GCG Alanina GAU ácido aspártico GAC ácido aspártico GAA ácido glutámico GAG ácido glutámico GGU Glicina GGC Glicina GGA Glicina GGG Glicina 1ª base o. El codón AUG codifica para metionina, y además sirve como sitio de iniciación; el primer AUG en un m. ARN codifica el sitio donde se inicia la traducción de proteínas. 51
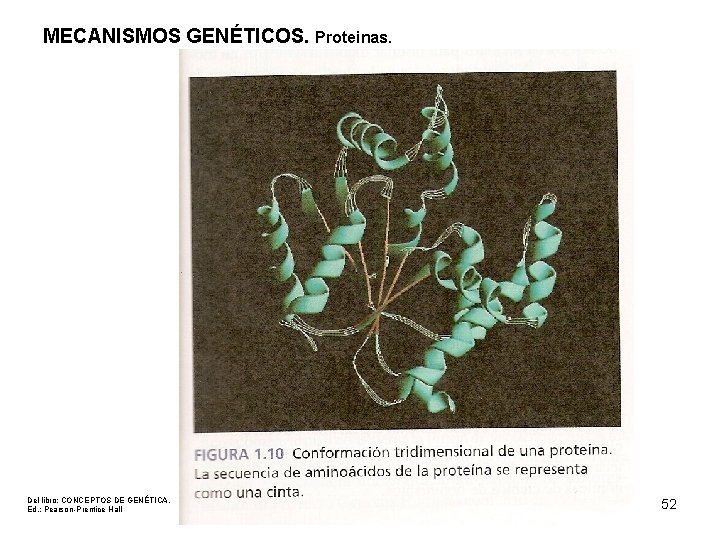
MECANISMOS GENÉTICOS. Proteinas. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 52
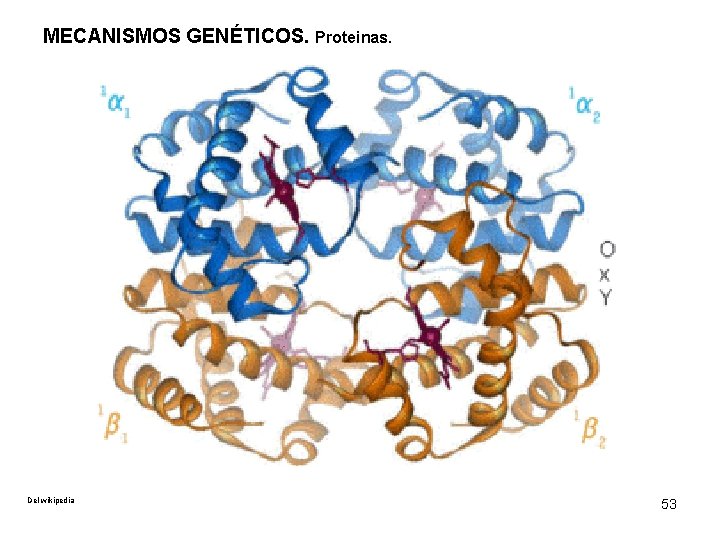
MECANISMOS GENÉTICOS. Proteinas. Del wikipedia 53
DIVISIÓN CELULAR MITOSIS Y MEIOSIS 54
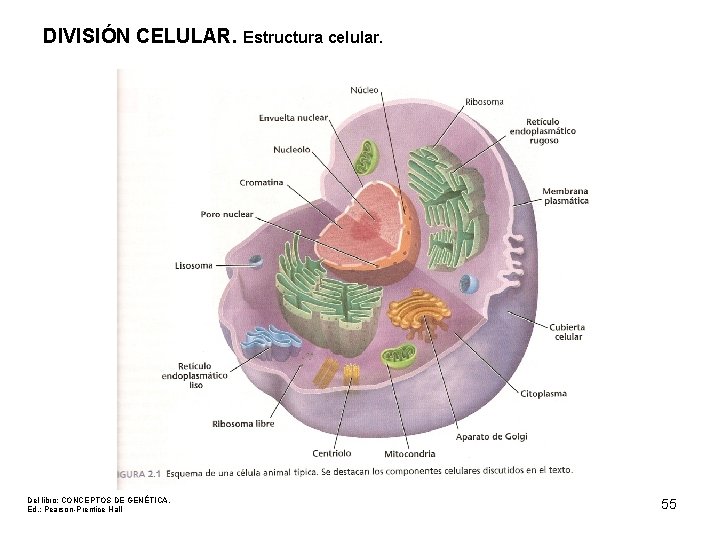
DIVISIÓN CELULAR. Estructura celular. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 55
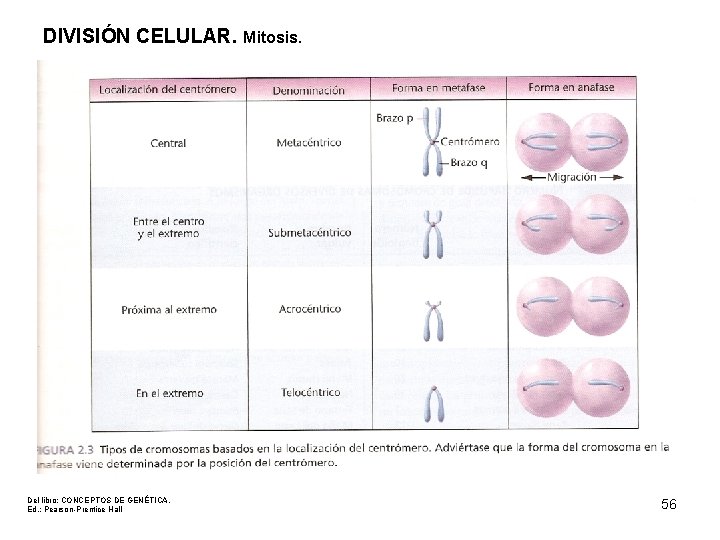
DIVISIÓN CELULAR. Mitosis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 56
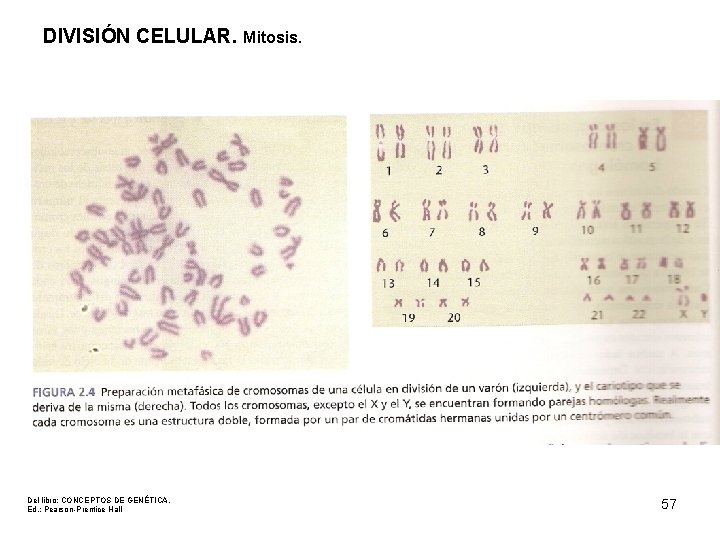
DIVISIÓN CELULAR. Mitosis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 57
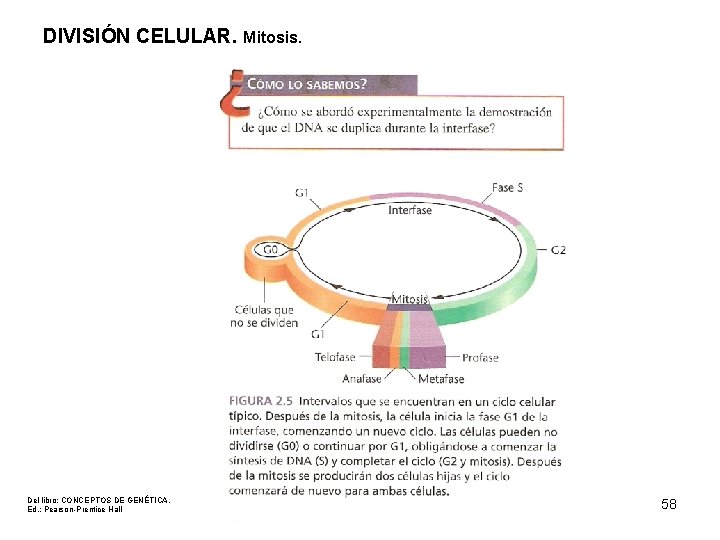
DIVISIÓN CELULAR. Mitosis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 58
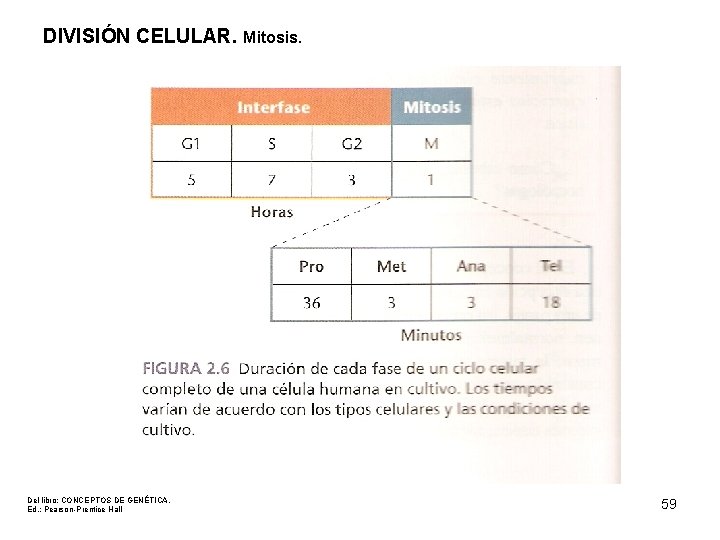
DIVISIÓN CELULAR. Mitosis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 59
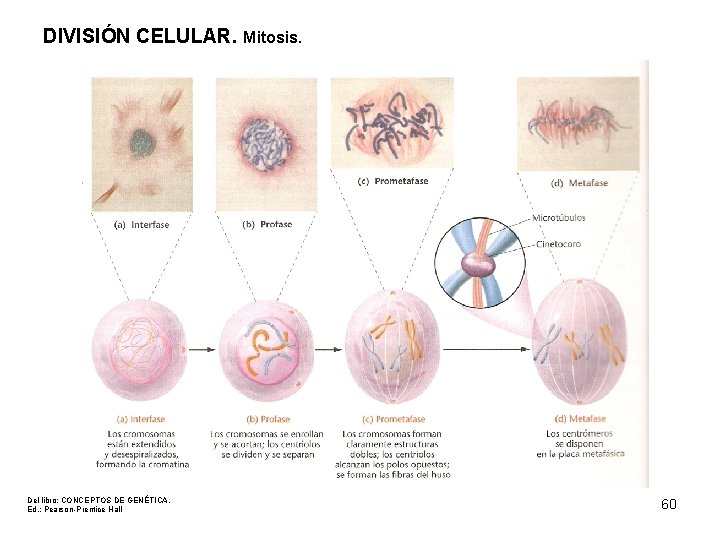
DIVISIÓN CELULAR. Mitosis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 60
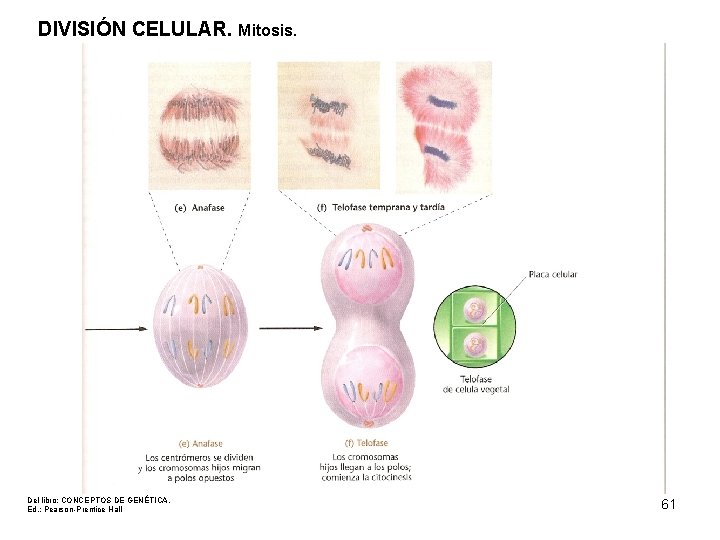
DIVISIÓN CELULAR. Mitosis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 61
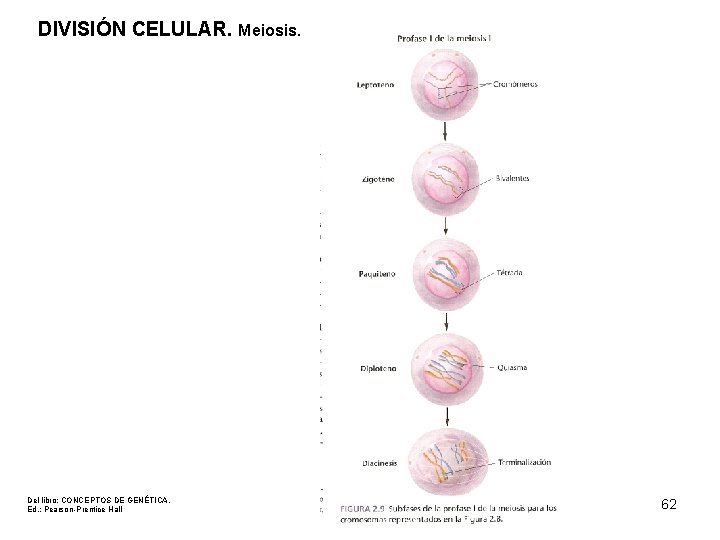
DIVISIÓN CELULAR. Meiosis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 62
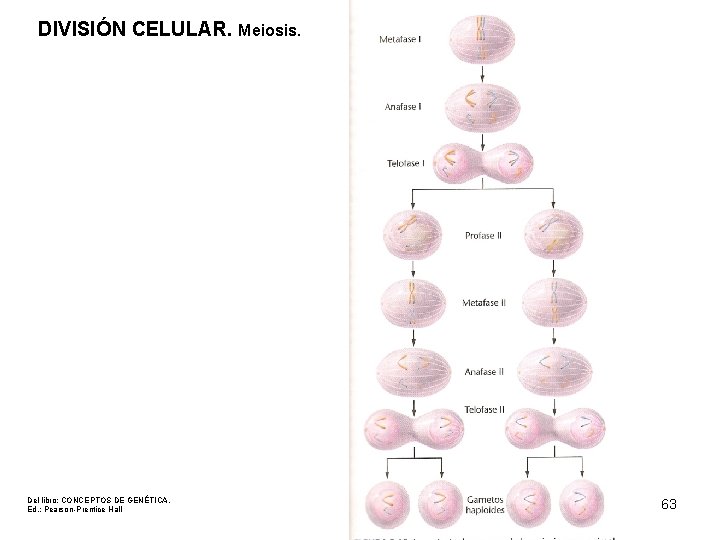
DIVISIÓN CELULAR. Meiosis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 63
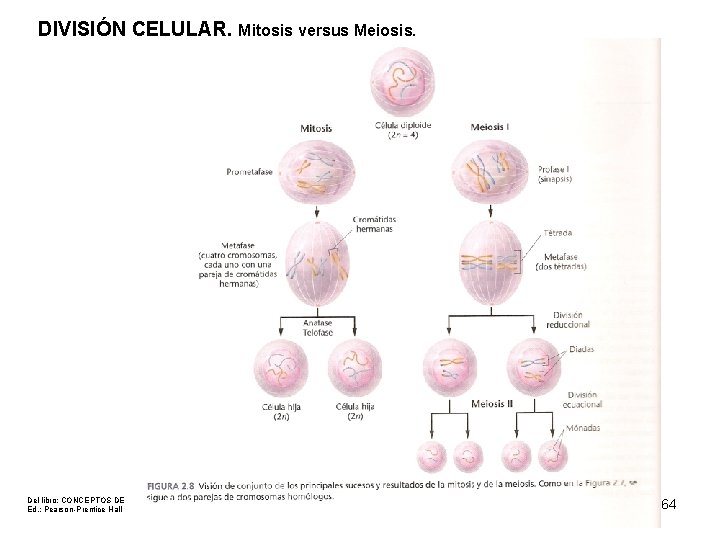
DIVISIÓN CELULAR. Mitosis versus Meiosis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 64
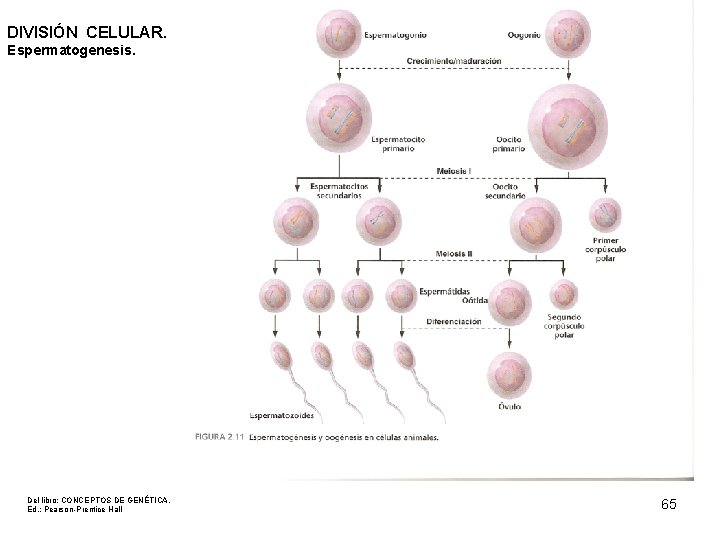
DIVISIÓN CELULAR. Espermatogenesis. Del libro: CONCEPTOS DE GENÉTICA. Ed. : Pearson-Prentice Hall 65
GENES Y PROTEÍNAS 66
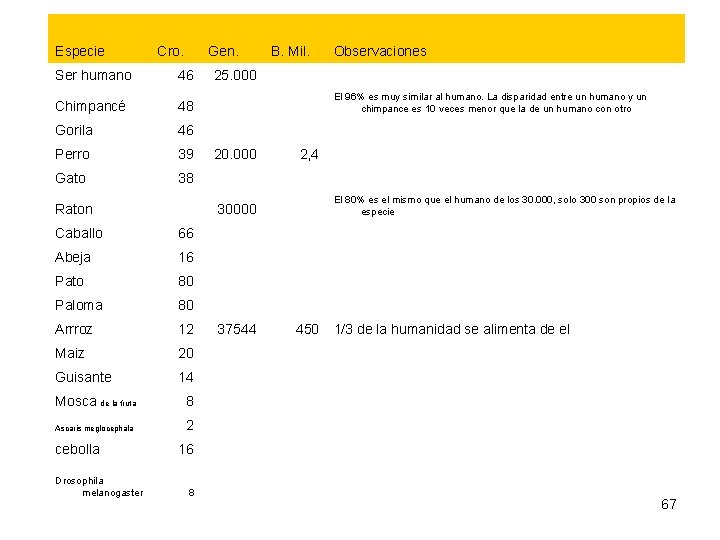
Especie Cro. Gen. Ser humano 46 Chimpancé 48 Gorila 46 Perro 39 Gato 38 Raton 66 Abeja 16 Pato 80 Paloma 80 Arrroz 12 Maiz 20 Guisante 14 Mosca de la fruta 8 Ascaris meglocephala 2 Drosophila melanogaster Observaciones 25. 000 El 96% es muy similar al humano. La disparidad entre un humano y un chimpance es 10 veces menor que la de un humano con otro 20. 000 2, 4 El 80% es el mismo que el humano de los 30. 000, solo 300 son propios de la especie 30000 Caballo cebolla B. Mil. 37544 450 1/3 de la humanidad se alimenta de el 16 8 67
EVOLUCIÓN 68
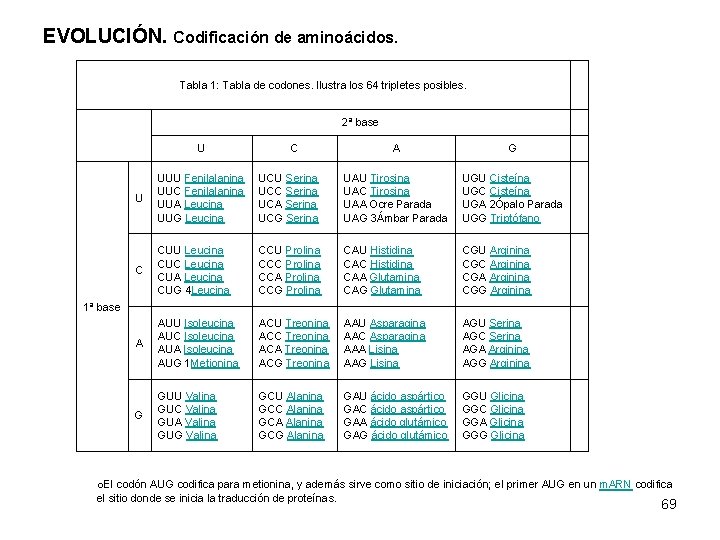
EVOLUCIÓN. Codificación de aminoácidos. Tabla 1: Tabla de codones. Ilustra los 64 tripletes posibles. 2ª base U C A G U UUU Fenilalanina UUC Fenilalanina UUA Leucina UUG Leucina UCU Serina UCC Serina UCA Serina UCG Serina UAU Tirosina UAC Tirosina UAA Ocre Parada UAG 3Ámbar Parada UGU Cisteína UGC Cisteína UGA 2Ópalo Parada UGG Triptófano C CUU Leucina CUC Leucina CUA Leucina CUG 4 Leucina CCU Prolina CCC Prolina CCA Prolina CCG Prolina CAU Histidina CAC Histidina CAA Glutamina CAG Glutamina CGU Arginina CGC Arginina CGA Arginina CGG Arginina A AUU Isoleucina AUC Isoleucina AUA Isoleucina AUG 1 Metionina ACU Treonina ACC Treonina ACA Treonina ACG Treonina AAU Asparagina AAC Asparagina AAA Lisina AAG Lisina AGU Serina AGC Serina AGA Arginina AGG Arginina G GUU Valina GUC Valina GUA Valina GUG Valina GCU Alanina GCC Alanina GCA Alanina GCG Alanina GAU ácido aspártico GAC ácido aspártico GAA ácido glutámico GAG ácido glutámico GGU Glicina GGC Glicina GGA Glicina GGG Glicina 1ª base o. El codón AUG codifica para metionina, y además sirve como sitio de iniciación; el primer AUG en un m. ARN codifica el sitio donde se inicia la traducción de proteínas. 69
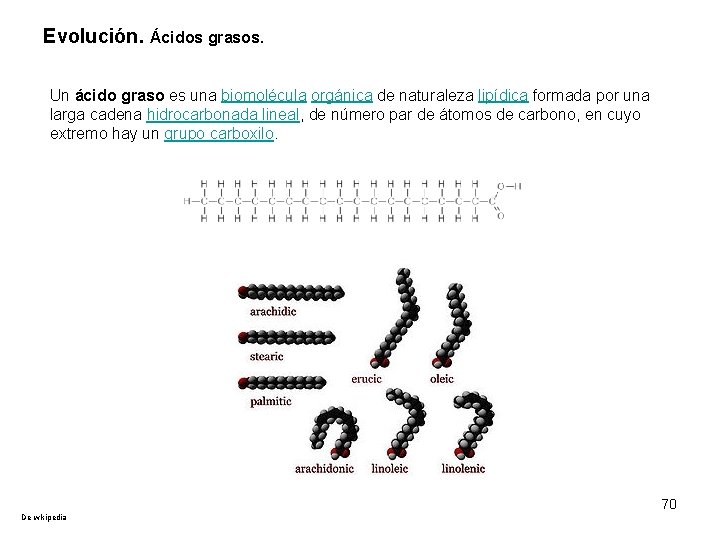
Evolución. Ácidos grasos. Un ácido graso es una biomolécula orgánica de naturaleza lipídica formada por una larga cadena hidrocarbonada lineal, de número par de átomos de carbono, en cuyo extremo hay un grupo carboxilo. 70 De wikipedia
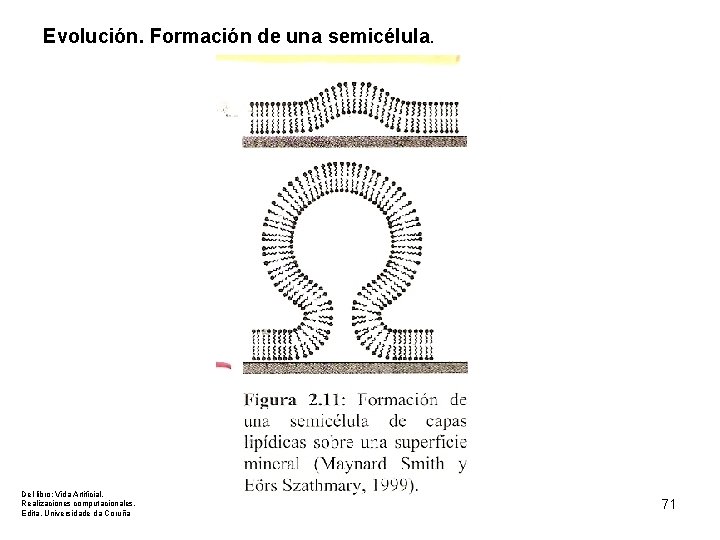
Evolución. Formación de una semicélula. Del libro: Vida Artificial. Realizaciones computacionales. Edita. Universidade da Coruña 71
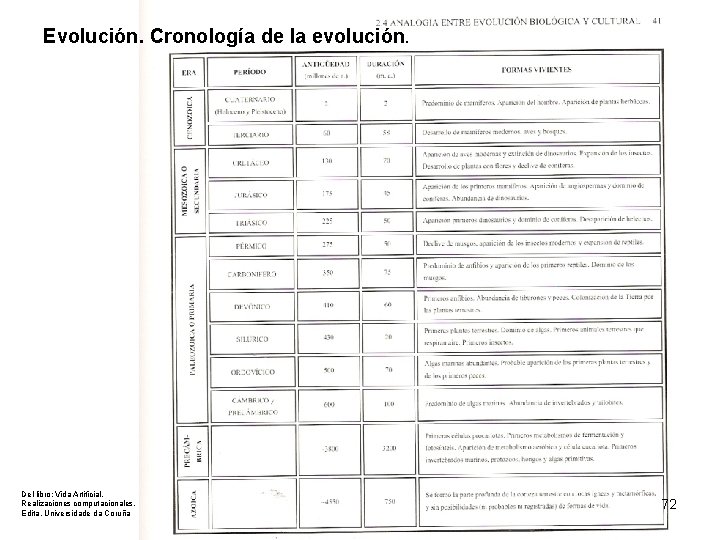
Evolución. Cronología de la evolución. Del libro: Vida Artificial. Realizaciones computacionales. Edita. Universidade da Coruña 72
GENÉTICA. SISTEMAS BIOINSPIRADOS 73
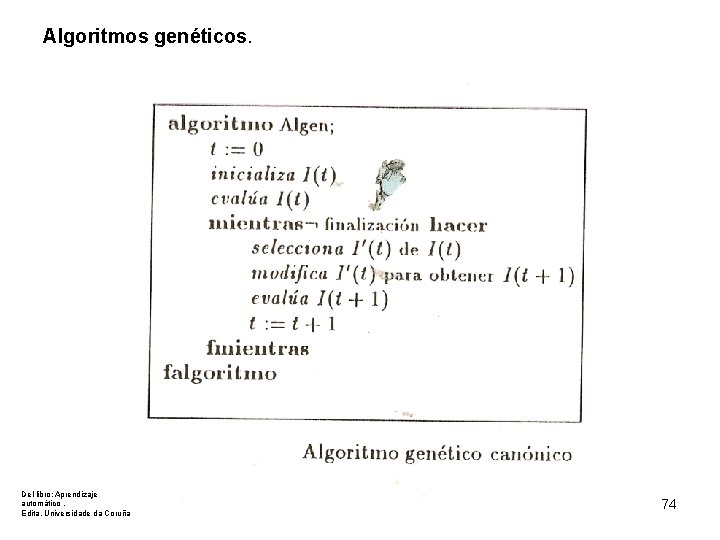
Algoritmos genéticos. Del libro: Aprendizaje automático. Edita. Universidade da Coruña 74
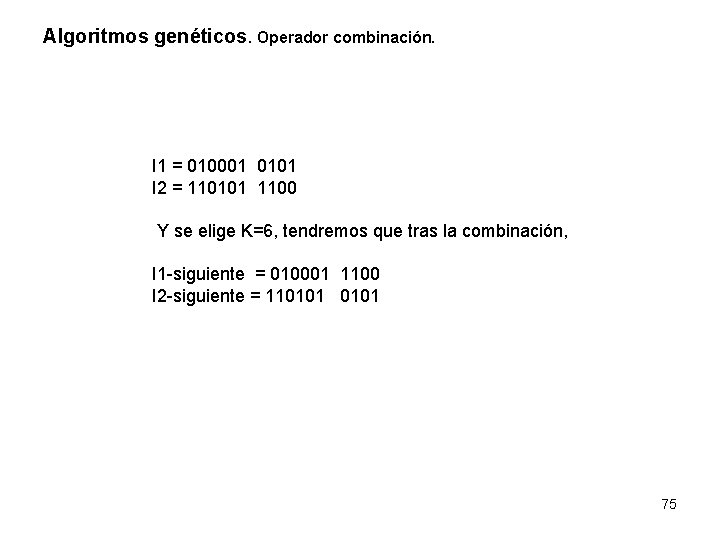
Algoritmos genéticos. Operador combinación. I 1 = 010001 0101 I 2 = 110101 1100 Y se elige K=6, tendremos que tras la combinación, I 1 -siguiente = 010001 1100 I 2 -siguiente = 110101 75
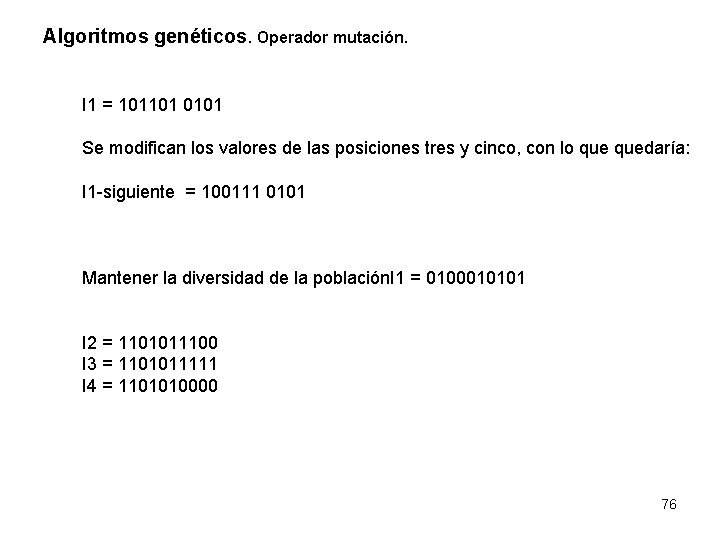
Algoritmos genéticos. Operador mutación. I 1 = 101101 0101 Se modifican los valores de las posiciones tres y cinco, con lo quedaría: I 1 -siguiente = 100111 0101 Mantener la diversidad de la población. I 1 = 0100010101 I 2 = 1101011100 I 3 = 1101011111 I 4 = 1101010000 76
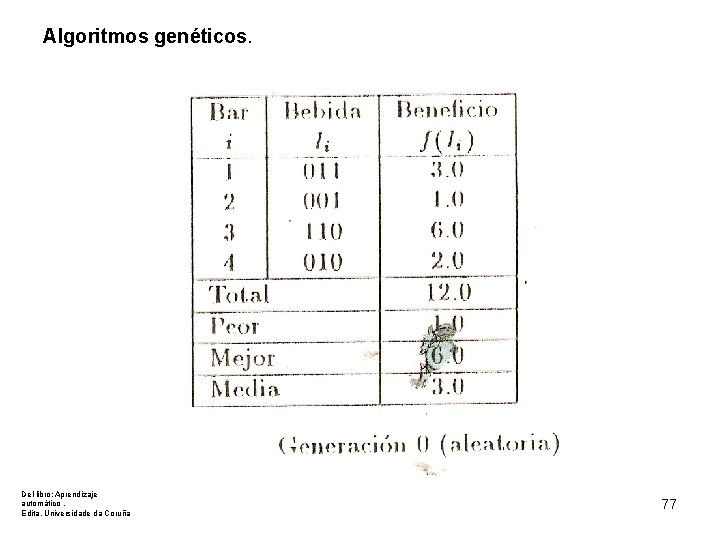
Algoritmos genéticos. Del libro: Aprendizaje automático. Edita. Universidade da Coruña 77
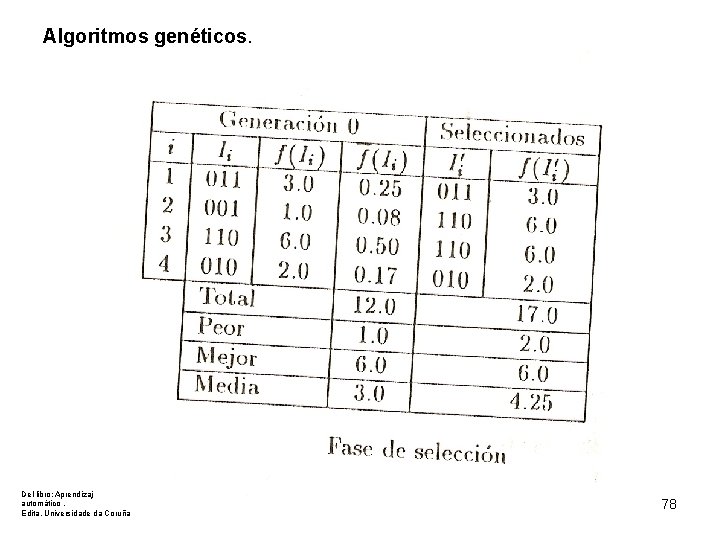
Algoritmos genéticos. Del libro: Aprendizaje automático. Edita. Universidade da Coruña 78
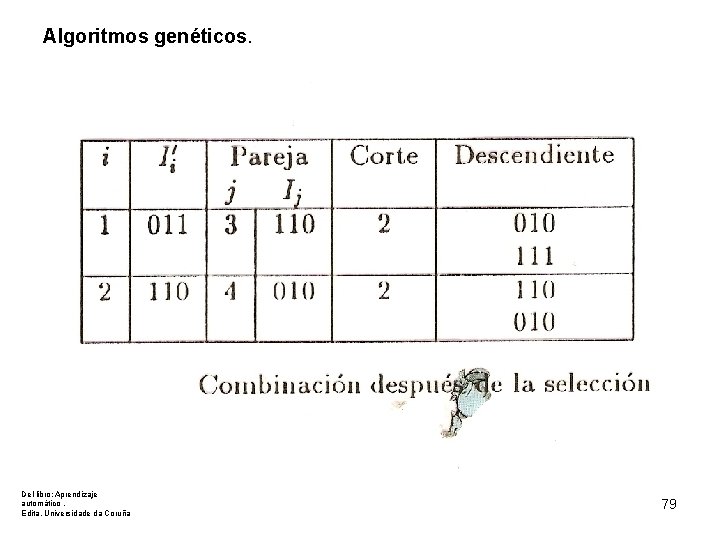
Algoritmos genéticos. Del libro: Aprendizaje automático. Edita. Universidade da Coruña 79
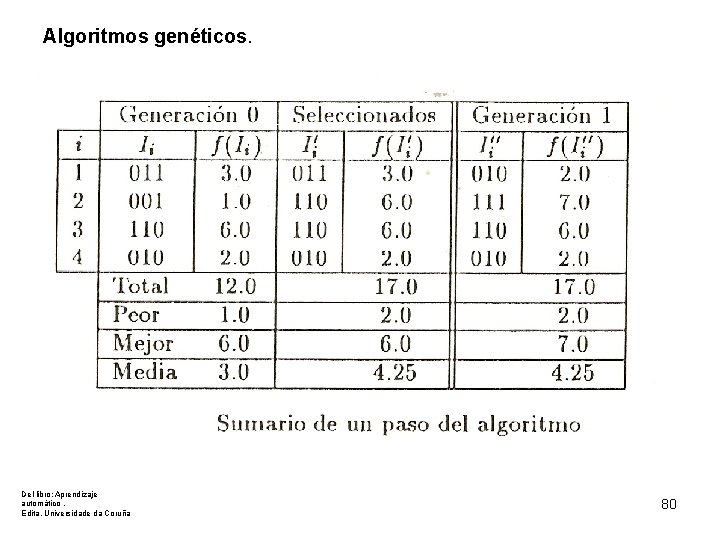
Algoritmos genéticos. Del libro: Aprendizaje automático. Edita. Universidade da Coruña 80
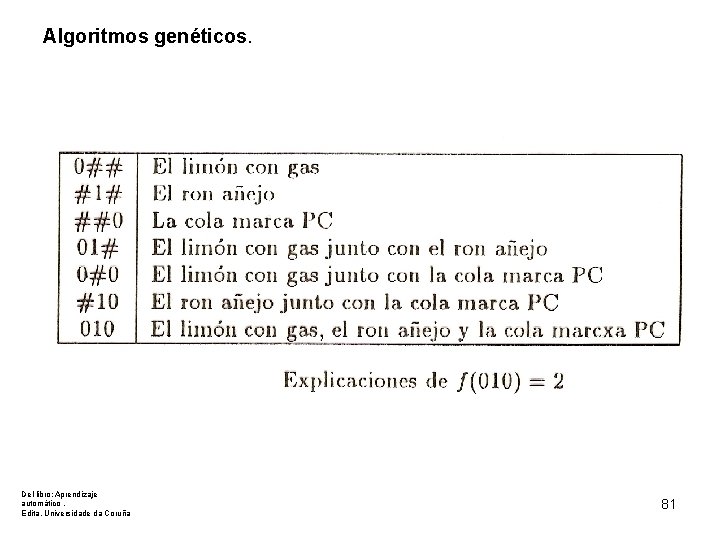
Algoritmos genéticos. Del libro: Aprendizaje automático. Edita. Universidade da Coruña 81
VIDA ARTIFICIAL 82
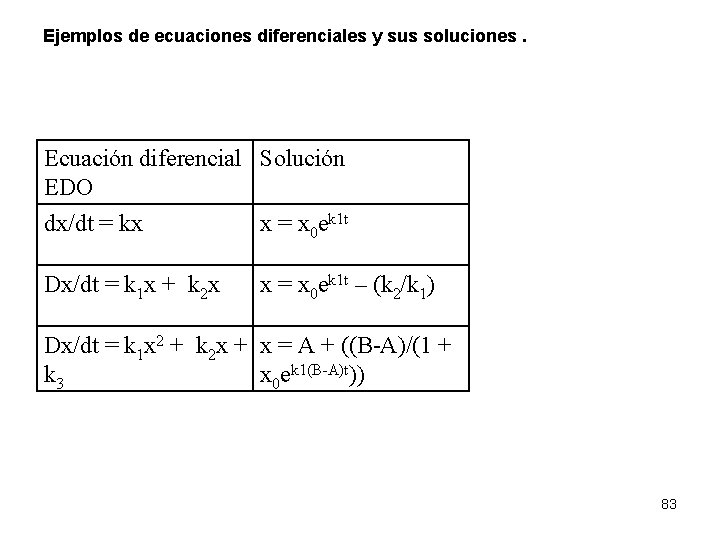
Ejemplos de ecuaciones diferenciales y sus soluciones. Ecuación diferencial Solución EDO dx/dt = kx x = x 0 ek 1 t Dx/dt = k 1 x + k 2 x x = x 0 ek 1 t – (k 2/k 1) Dx/dt = k 1 x 2 + k 2 x + x = A + ((B-A)/(1 + k 3 x 0 ek 1(B-A)t)) 83
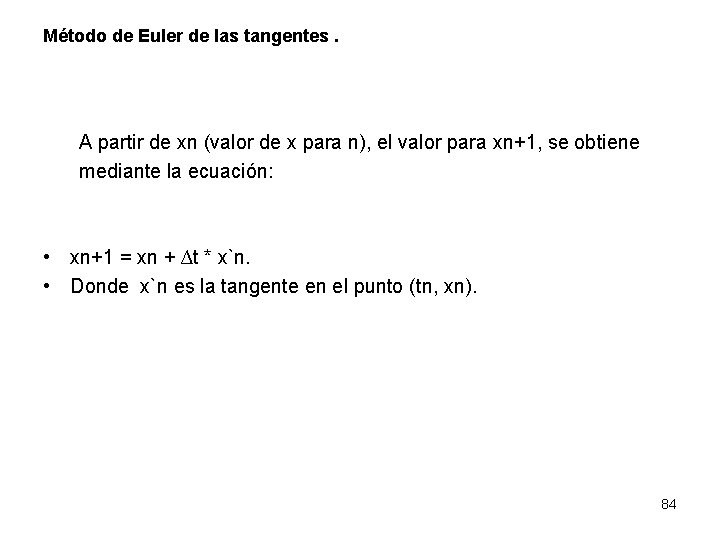
Método de Euler de las tangentes. A partir de xn (valor de x para n), el valor para xn+1, se obtiene mediante la ecuación: • xn+1 = xn + ∆t * x`n. • Donde x`n es la tangente en el punto (tn, xn). 84
Método de Euler de las tangentes. • ver grafica 2. 9, pág. 56 Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos 85
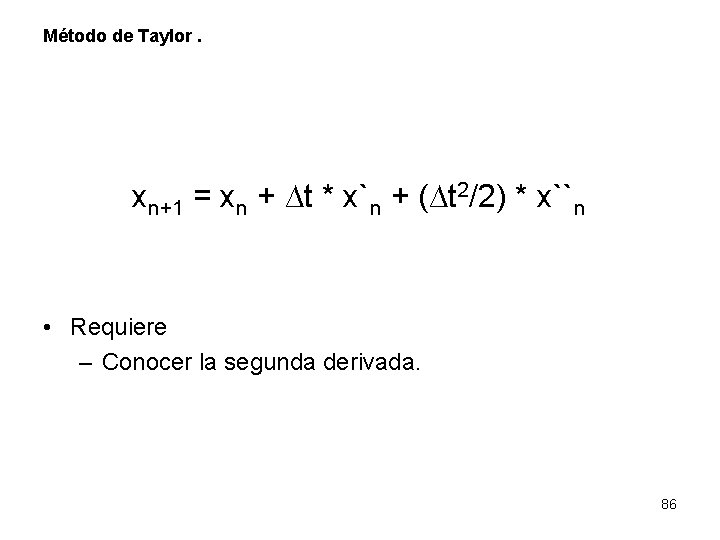
Método de Taylor. xn+1 = xn + ∆t * x`n + (∆t 2/2) * x``n • Requiere – Conocer la segunda derivada. 86
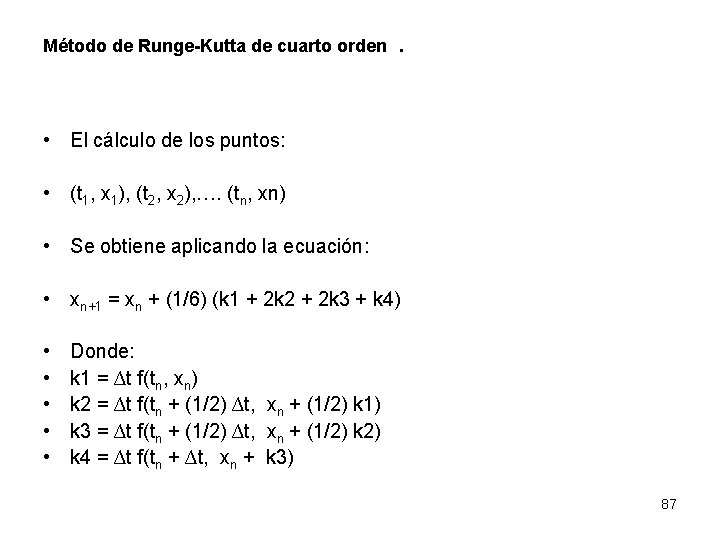
Método de Runge-Kutta de cuarto orden. • El cálculo de los puntos: • (t 1, x 1), (t 2, x 2), …. (tn, xn) • Se obtiene aplicando la ecuación: • xn+1 = xn + (1/6) (k 1 + 2 k 2 + 2 k 3 + k 4) • • • Donde: k 1 = ∆t f(tn, xn) k 2 = ∆t f(tn + (1/2) ∆t, xn + (1/2) k 1) k 3 = ∆t f(tn + (1/2) ∆t, xn + (1/2) k 4 = ∆t f(tn + ∆t, xn + k 3) 87
Método de Runge-Kutta de cuarto orden. • ver fig. 2. 10, pg. 58 Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos 88
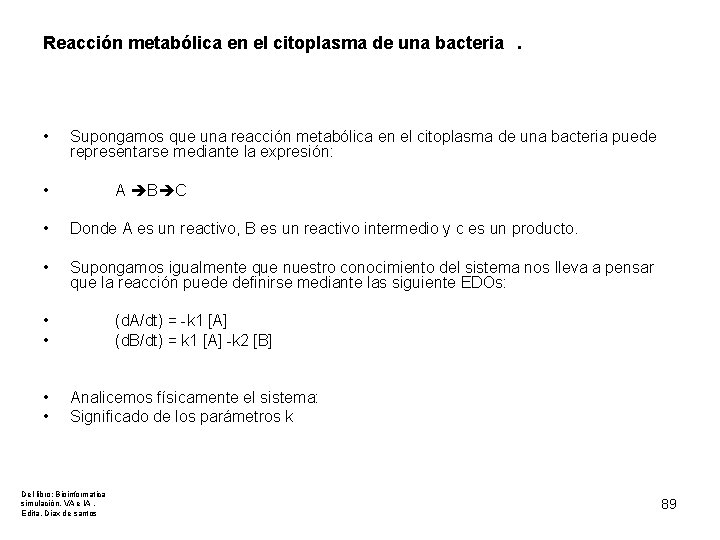
Reacción metabólica en el citoplasma de una bacteria. • Supongamos que una reacción metabólica en el citoplasma de una bacteria puede representarse mediante la expresión: • A B C • Donde A es un reactivo, B es un reactivo intermedio y c es un producto. • Supongamos igualmente que nuestro conocimiento del sistema nos lleva a pensar que la reacción puede definirse mediante las siguiente EDOs: • • (d. A/dt) = -k 1 [A] (d. B/dt) = k 1 [A] -k 2 [B] • • Analicemos físicamente el sistema: Significado de los parámetros k Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos 89
Reacción metabólica en el citoplasma de una bacteria. - Ver figura 2. 13, pag. 62 Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos 90
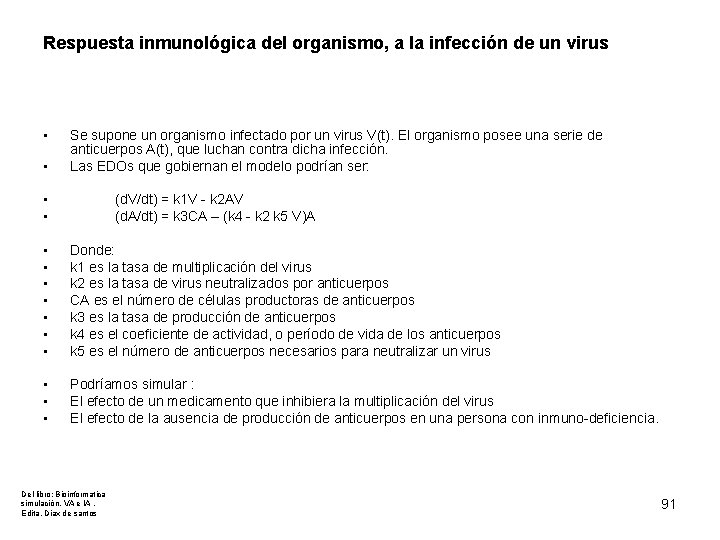
Respuesta inmunológica del organismo, a la infección de un virus • • Se supone un organismo infectado por un virus V(t). El organismo posee una serie de anticuerpos A(t), que luchan contra dicha infección. Las EDOs que gobiernan el modelo podrían ser: • • (d. V/dt) = k 1 V - k 2 AV (d. A/dt) = k 3 CA – (k 4 - k 2 k 5 V)A • • Donde: k 1 es la tasa de multiplicación del virus k 2 es la tasa de virus neutralizados por anticuerpos CA es el número de células productoras de anticuerpos k 3 es la tasa de producción de anticuerpos k 4 es el coeficiente de actividad, o período de vida de los anticuerpos k 5 es el número de anticuerpos necesarios para neutralizar un virus • • • Podríamos simular : El efecto de un medicamento que inhibiera la multiplicación del virus El efecto de la ausencia de producción de anticuerpos en una persona con inmuno-deficiencia. Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos 91
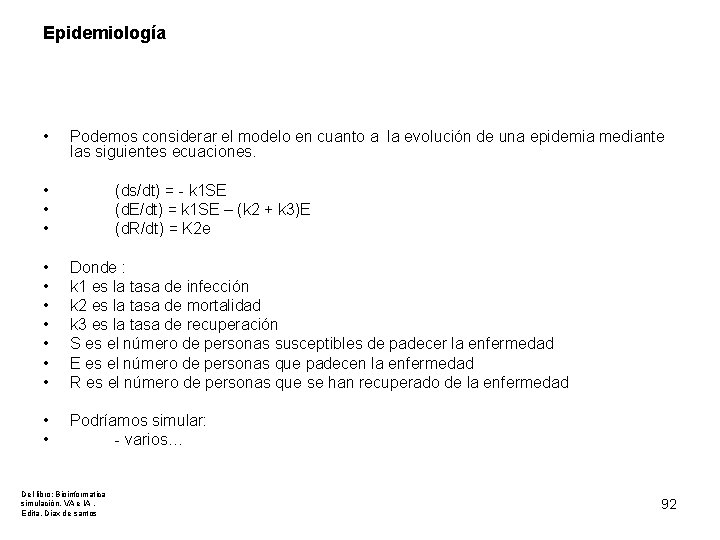
Epidemiología • Podemos considerar el modelo en cuanto a la evolución de una epidemia mediante las siguientes ecuaciones. • • • (ds/dt) = - k 1 SE (d. E/dt) = k 1 SE – (k 2 + k 3)E (d. R/dt) = K 2 e • • Donde : k 1 es la tasa de infección k 2 es la tasa de mortalidad k 3 es la tasa de recuperación S es el número de personas susceptibles de padecer la enfermedad E es el número de personas que padecen la enfermedad R es el número de personas que se han recuperado de la enfermedad • • Podríamos simular: - varios… Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos 92
Estado de la contaminación en un estanque • • Nuestro objetivo podría ser determinar el estado de contaminación de un lago, al que vierten contaminantes una serie de industrias. Podemos simular el sistema mediante las EDOs siguientes: • • (d. N/dt) = k. E – k. S N (d. CL/dt) = (1/V) (k. ECE - k. SCL) • • Donde : KE es el flujo de agua de entrada k. S es el flujo de agua de salida V es el volumen de agua que hay en el lago N es el nivel de de agua en el lago CE es la concentración de contaminantes en el agua que entra en el ago CL es la concentración de contaminantes disueltos en el lago • • Podríamos simular: La falta de flujo de entrada de agua debida a la sequía Que ocurriría si se instalara una central depuradora a la entrada del rio Que ocurre si se incrementa el flujo de contaminantes a la entrada por un accidente medioambiental Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos 93
Sistemas dinámicos lineales y no lineales • Fig 2. 23, pag 75, 76, 77 Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos 94
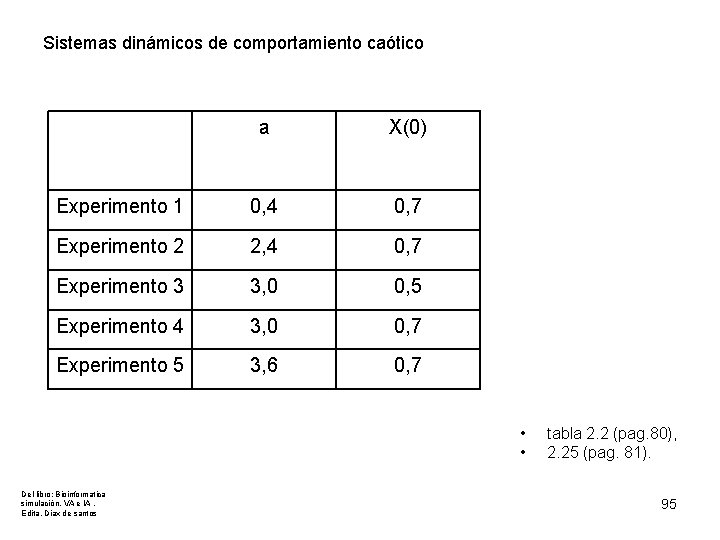
Sistemas dinámicos de comportamiento caótico a X(0) Experimento 1 0, 4 0, 7 Experimento 2 2, 4 0, 7 Experimento 3 3, 0 0, 5 Experimento 4 3, 0 0, 7 Experimento 5 3, 6 0, 7 • • Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos tabla 2. 2 (pag. 80), 2. 25 (pag. 81). 95
Ruta de doble periodo hacia el caos • figura 2. 26 Del libro: Bioinformatica simulación, VA e IA. Edita. Diax de santos 96
Propiedades de los sistemas de vida artificia. Emergencia 97
Propiedades de los sistemas de vida artificia. Autorreplicación • Autopoiesis Humberto Maturana Francisco Varela Del libro: WIKIPEDIA 98
TRABAJOS DE PRÁCTCAS 99
Trabajos de practicas. • Genética. – Acceso a bases de datos genéticas – Manejo de software de gestión de datos genéticos – Software de proteínas – Análisis de datos a bajo nivel • • • Vida artificial Redes neuronales Otros 100
101
- Slides: 101