
A Chargaff szablyok 1955 Klnbz llnyekbl kivonhat DNS
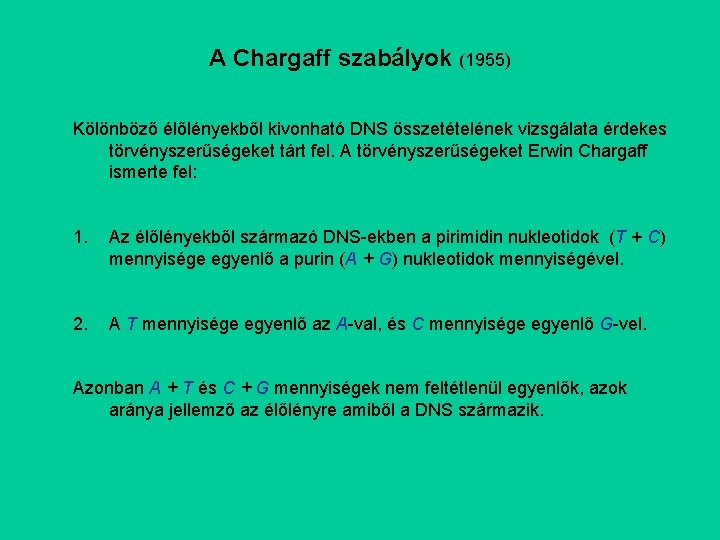
A Chargaff szabályok (1955) Kölönböző élőlényekből kivonható DNS összetételének vizsgálata érdekes törvényszerűségeket tárt fel. A törvényszerűségeket Erwin Chargaff ismerte fel: 1. Az élőlényekből származó DNS-ekben a pirimidin nukleotidok (T + C) mennyisége egyenlő a purin (A + G) nukleotidok mennyiségével. 2. A T mennyisége egyenlő az A-val, és C mennyisége egyenlő G-vel. Azonban A + T és C + G mennyiségek nem feltétlenül egyenlők, azok aránya jellemző az élőlényre amiből a DNS származik.
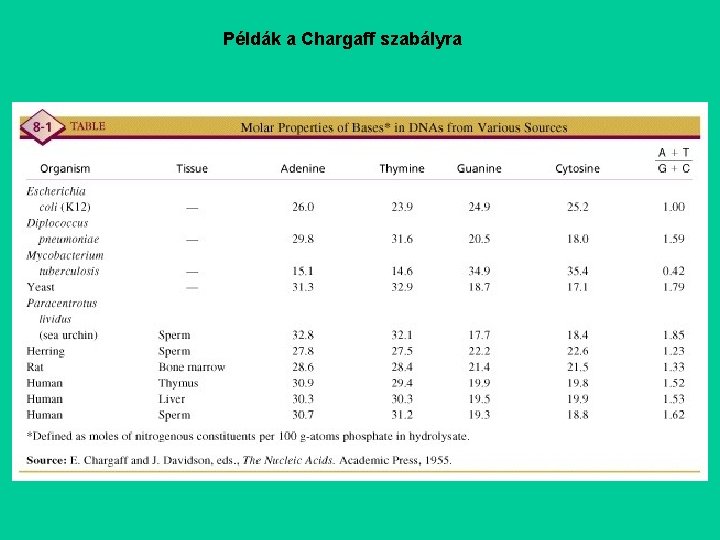
Példák a Chargaff szabályra
A replikáció mechanizmusa
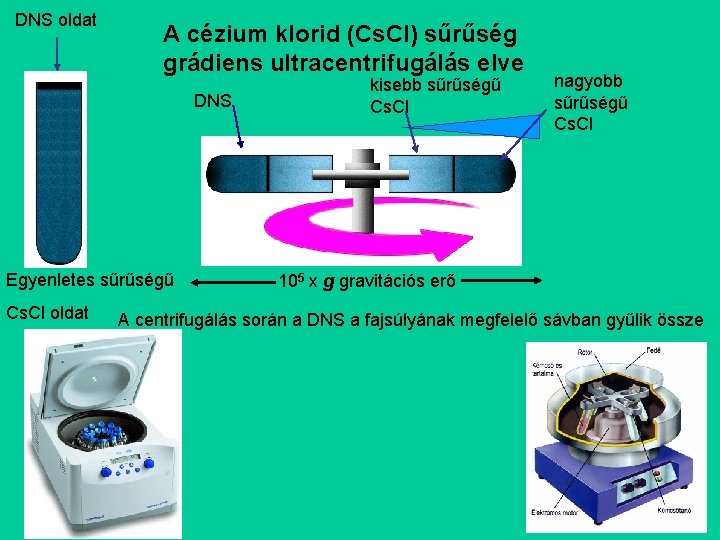
DNS oldat A cézium klorid (Cs. Cl) sűrűség grádiens ultracentrifugálás elve DNS Egyenletes sűrűségű Cs. Cl oldat kisebb sűrűségű Cs. Cl nagyobb sűrűségű Cs. Cl 105 x g gravitációs erő A centrifugálás során a DNS a fajsúlyának megfelelő sávban gyűlik össze
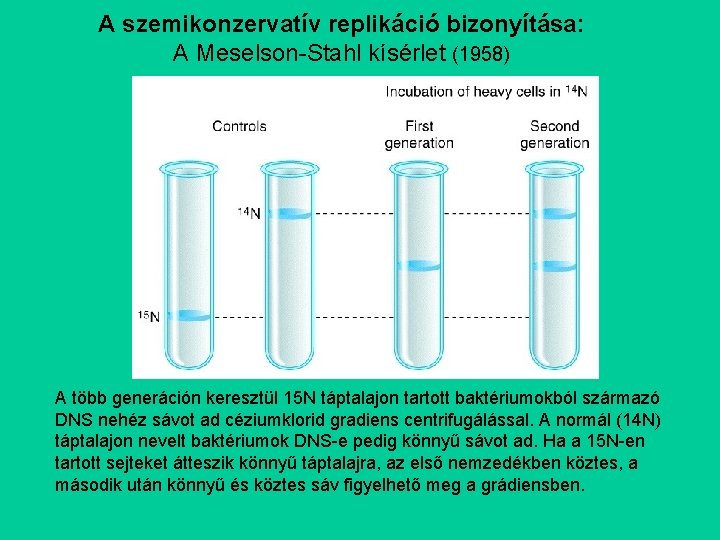
A szemikonzervatív replikáció bizonyítása: A Meselson-Stahl kísérlet (1958) A több generáción keresztül 15 N táptalajon tartott baktériumokból származó DNS nehéz sávot ad céziumklorid gradiens centrifugálással. A normál (14 N) táptalajon nevelt baktériumok DNS-e pedig könnyű sávot ad. Ha a 15 N-en tartott sejteket átteszik könnyű táptalajra, az első nemzedékben köztes, a második után könnyű és köztes sáv figyelhető meg a grádiensben.
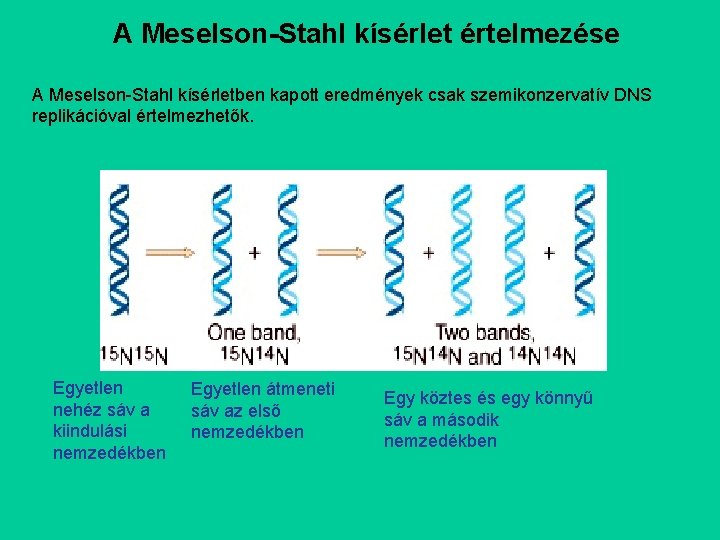
A Meselson-Stahl kísérlet értelmezése A Meselson-Stahl kísérletben kapott eredmények csak szemikonzervatív DNS replikációval értelmezhetők. Egyetlen nehéz sáv a kiindulási nemzedékben Egyetlen átmeneti sáv az első nemzedékben Egy köztes és egy könnyű sáv a második nemzedékben
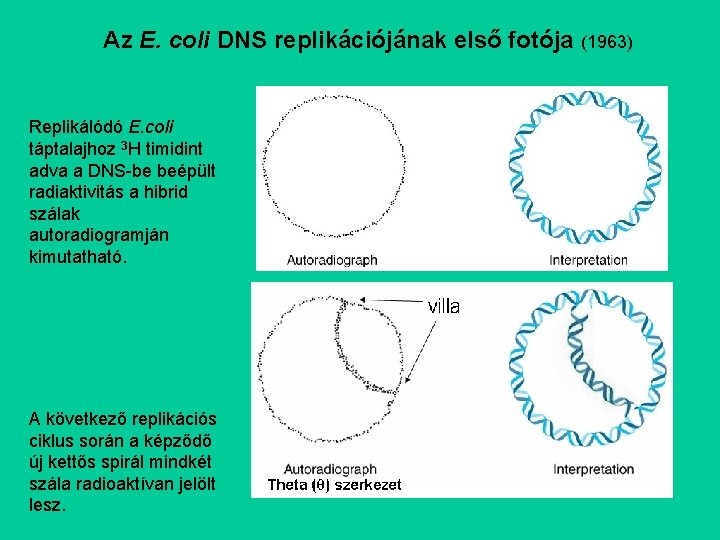
Az E. coli DNS replikációjának első fotója (1963) Replikálódó E. coli táptalajhoz 3 H timidint adva a DNS-be beépült radiaktivitás a hibrid szálak autoradiogramján kimutatható. A következő replikációs ciklus során a képződő új kettős spirál mindkét szála radioaktívan jelölt lesz.
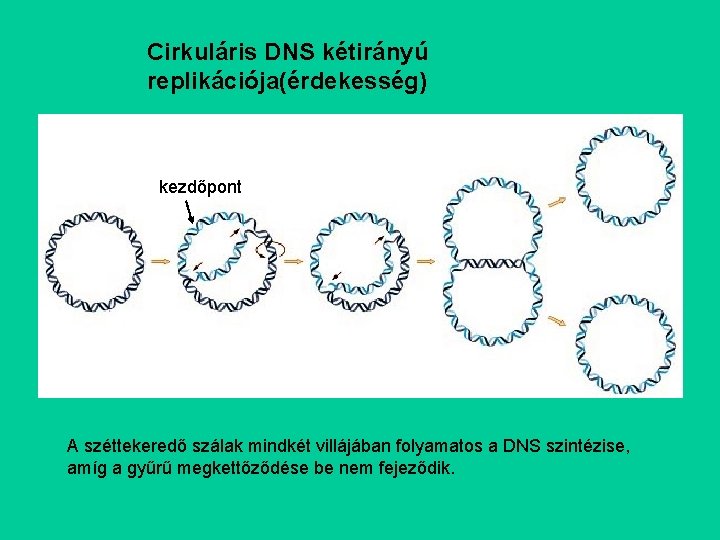
Cirkuláris DNS kétirányú replikációja(érdekesség) kezdőpont A széttekeredő szálak mindkét villájában folyamatos a DNS szintézise, amíg a gyűrű megkettőződése be nem fejeződik.
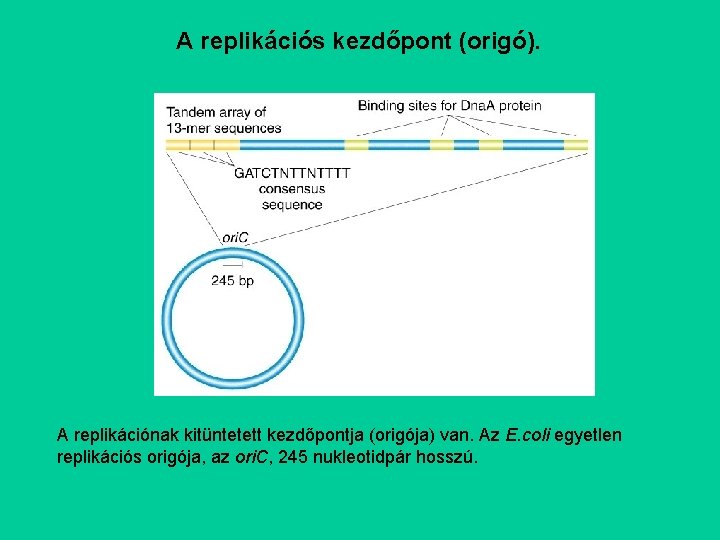
A replikációs kezdőpont (origó). A replikációnak kitüntetett kezdőpontja (origója) van. Az E. coli egyetlen replikációs origója, az ori. C, 245 nukleotidpár hosszú.
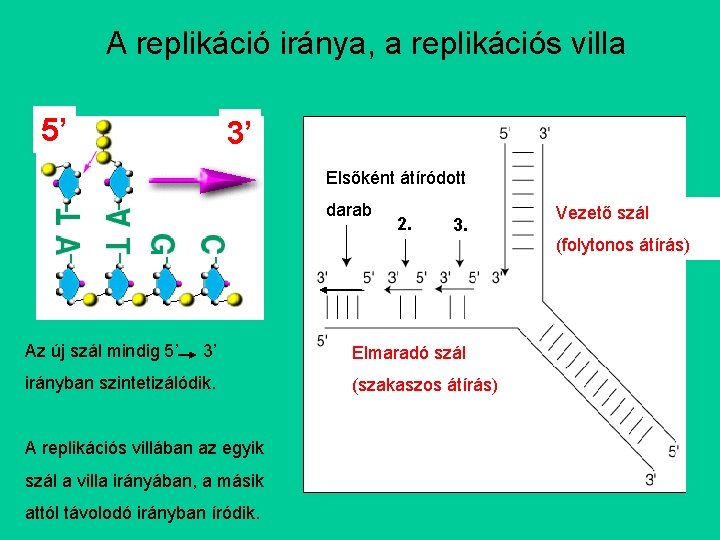
A replikáció iránya, a replikációs villa 5’ 3’ Elsőként átíródott darab 2. 3. Vezető szál (folytonos átírás) Az új szál mindig 5’ 3’ irányban szintetizálódik. A replikációs villában az egyik szál a villa irányában, a másik attól távolodó irányban íródik. Elmaradó szál (szakaszos átírás)
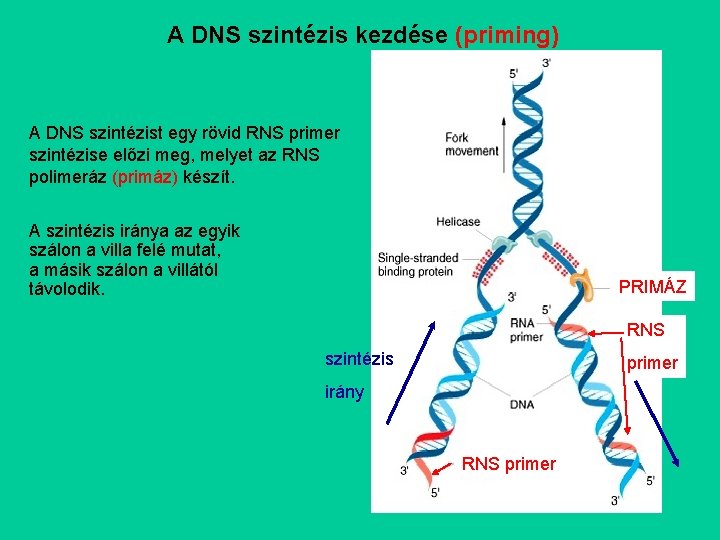
A DNS szintézis kezdése (priming) A DNS szintézist egy rövid RNS primer szintézise előzi meg, melyet az RNS polimeráz (primáz) készít. A szintézis iránya az egyik szálon a villa felé mutat, a másik szálon a villától távolodik. PRIMÁZ RNS szintézis primer irány RNS primer
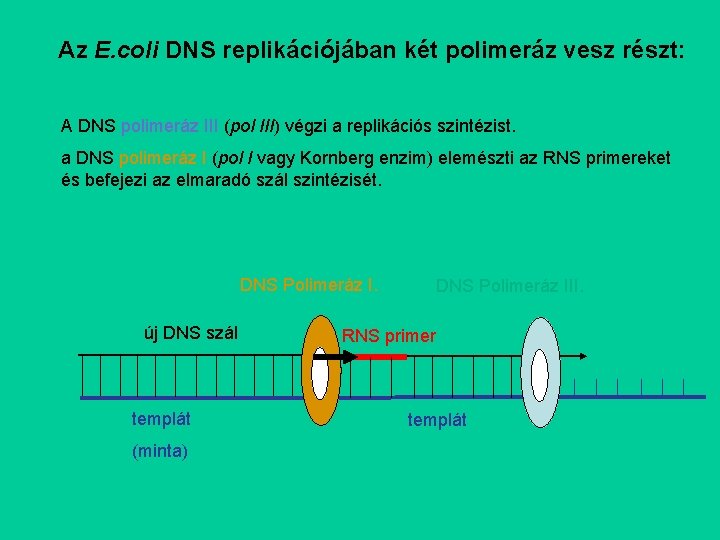
Az E. coli DNS replikációjában két polimeráz vesz részt: A DNS polimeráz III (pol III) végzi a replikációs szintézist. a DNS polimeráz I (pol I vagy Kornberg enzim) elemészti az RNS primereket és befejezi az elmaradó szál szintézisét. DNS Polimeráz I. új DNS szál templát (minta) DNS Polimeráz III. RNS primer templát
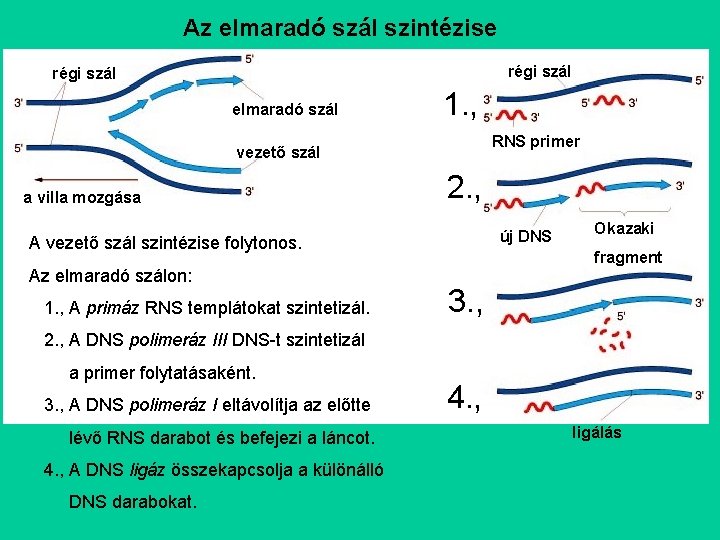
Az elmaradó szál szintézise régi szál elmaradó szál 1. , RNS primer vezető szál a villa mozgása 2. , új DNS A vezető szál szintézise folytonos. Az elmaradó szálon: 1. , A primáz RNS templátokat szintetizál. Okazaki fragment 3. , 2. , A DNS polimeráz III DNS-t szintetizál a primer folytatásaként. 3. , A DNS polimeráz I eltávolítja az előtte lévő RNS darabot és befejezi a láncot. 4. , A DNS ligáz összekapcsolja a különálló DNS darabokat. 4. , ligálás
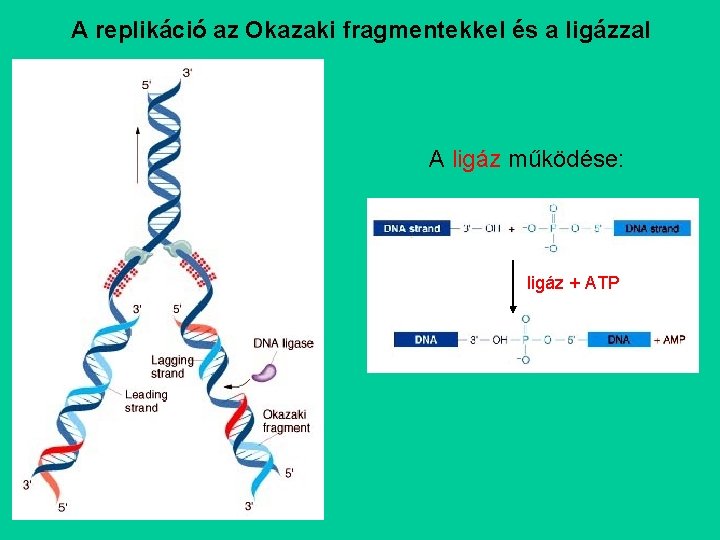
A replikáció az Okazaki fragmentekkel és a ligázzal A ligáz működése: ligáz + ATP
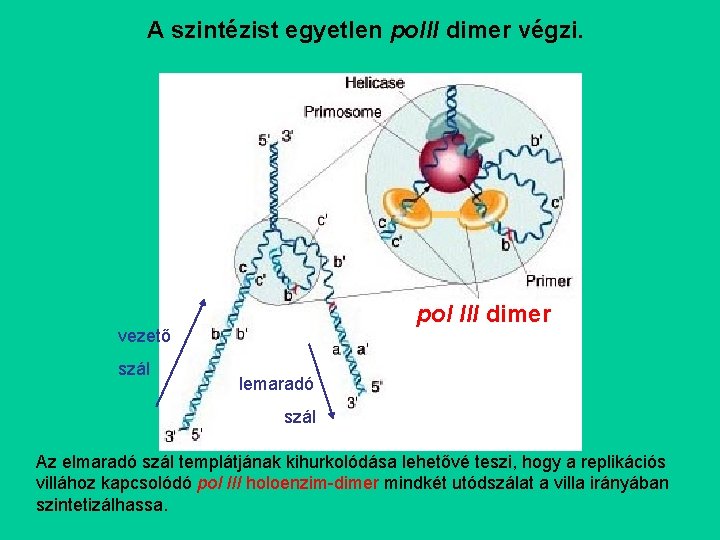
A szintézist egyetlen pol. II dimer végzi. pol III dimer vezető szál lemaradó szál Az elmaradó szál templátjának kihurkolódása lehetővé teszi, hogy a replikációs villához kapcsolódó pol III holoenzim-dimer mindkét utódszálat a villa irányában szintetizálhassa.
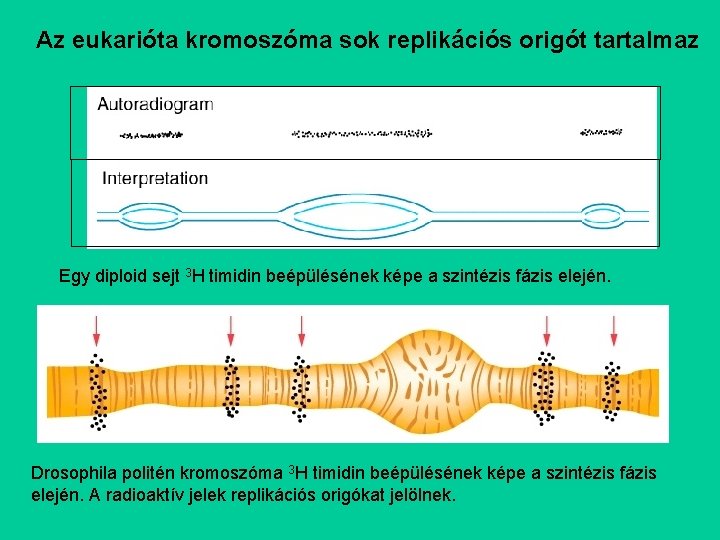
Az eukarióta kromoszóma sok replikációs origót tartalmaz Egy diploid sejt 3 H timidin beépülésének képe a szintézis fázis elején. Drosophila politén kromoszóma 3 H timidin beépülésének képe a szintézis fázis elején. A radioaktív jelek replikációs origókat jelölnek.
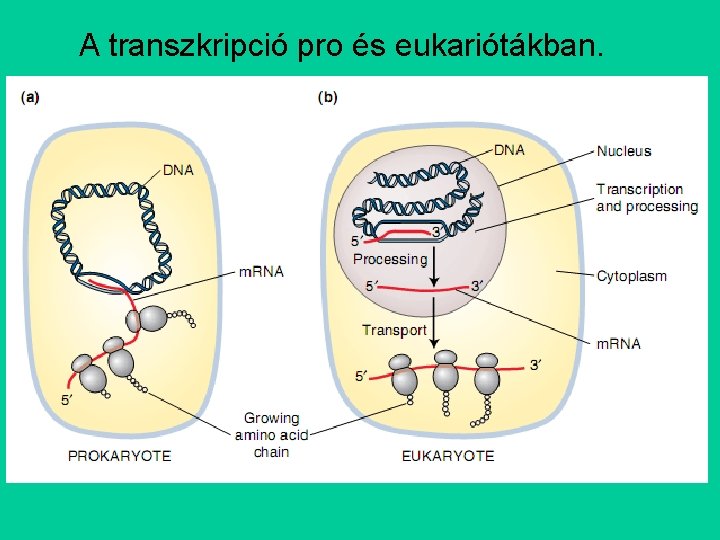
A transzkripció pro és eukariótákban.
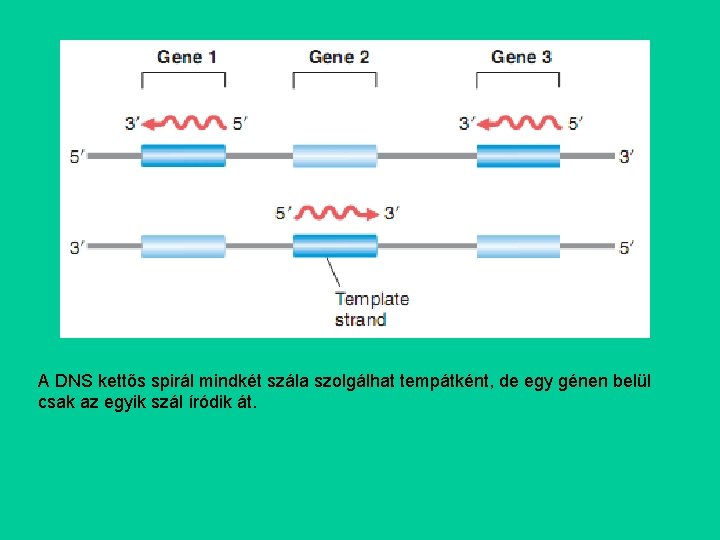
A DNS kettős spirál mindkét szála szolgálhat tempátként, de egy génen belül csak az egyik szál íródik át.
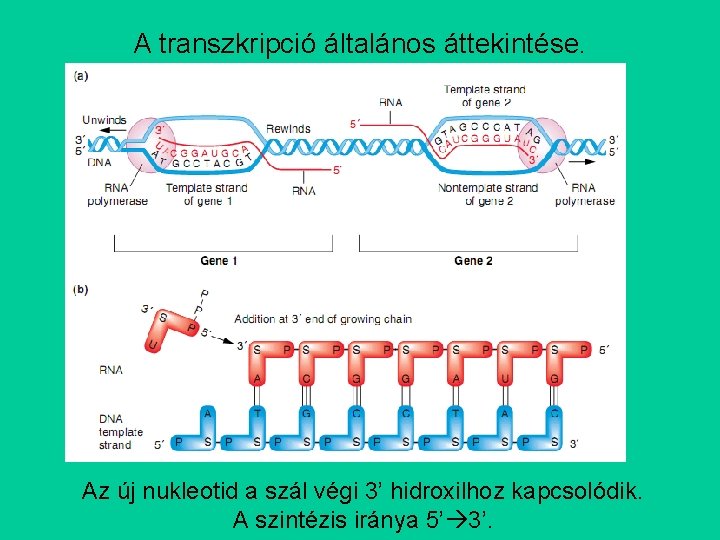
A transzkripció általános áttekintése. Az új nukleotid a szál végi 3’ hidroxilhoz kapcsolódik. A szintézis iránya 5’ 3’.
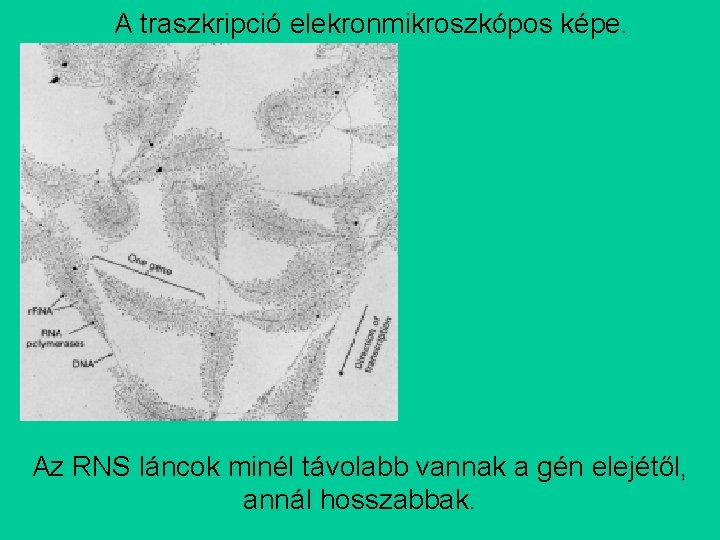
A traszkripció elekronmikroszkópos képe. Az RNS láncok minél távolabb vannak a gén elejétől, annál hosszabbak.
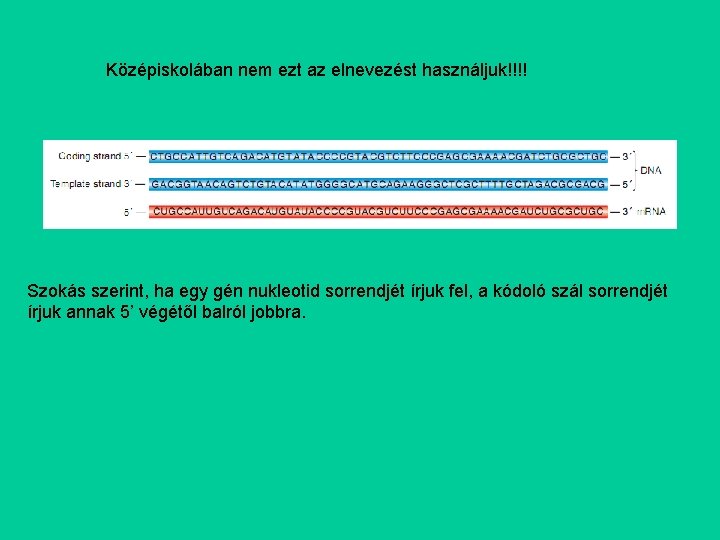
Középiskolában nem ezt az elnevezést használjuk!!!! Szokás szerint, ha egy gén nukleotid sorrendjét írjuk fel, a kódoló szál sorrendjét írjuk annak 5’ végétől balról jobbra.
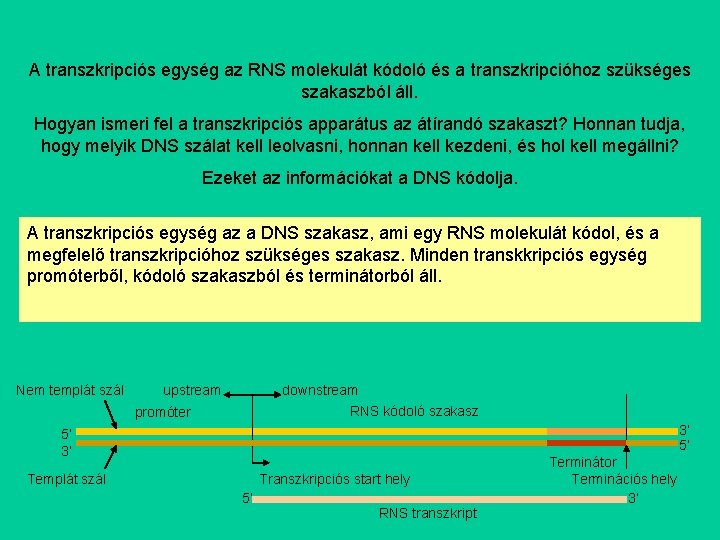
A transzkripciós egység az RNS molekulát kódoló és a transzkripcióhoz szükséges szakaszból áll. Hogyan ismeri fel a transzkripciós apparátus az átírandó szakaszt? Honnan tudja, hogy melyik DNS szálat kell leolvasni, honnan kell kezdeni, és hol kell megállni? Ezeket az információkat a DNS kódolja. A transzkripciós egység az a DNS szakasz, ami egy RNS molekulát kódol, és a megfelelő transzkripcióhoz szükséges szakasz. Minden transkkripciós egység promóterből, kódoló szakaszból és terminátorból áll. Nem templát szál upstream downstream RNS kódoló szakasz promóter 3’ 5’ 5’ 3’ Templát szál Transzkripciós start hely 5’ RNS transzkript Terminátor Terminációs hely 3’
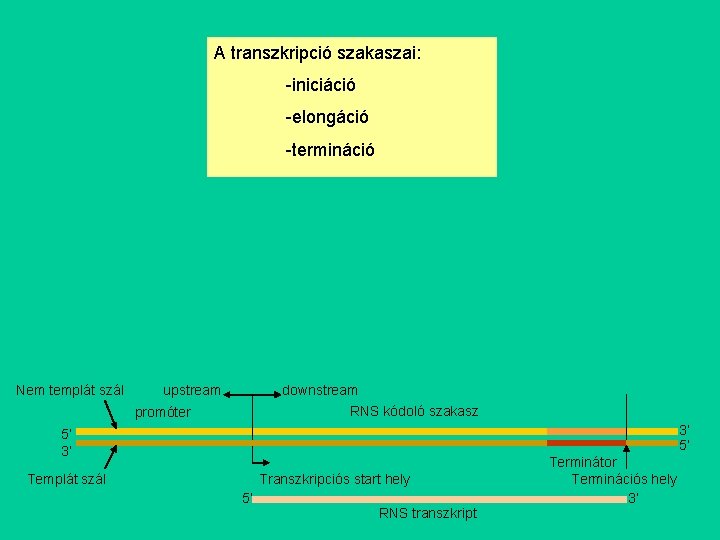
A transzkripció szakaszai: -iniciáció -elongáció -termináció Nem templát szál upstream downstream RNS kódoló szakasz promóter 3’ 5’ 5’ 3’ Templát szál Transzkripciós start hely 5’ RNS transzkript Terminátor Terminációs hely 3’
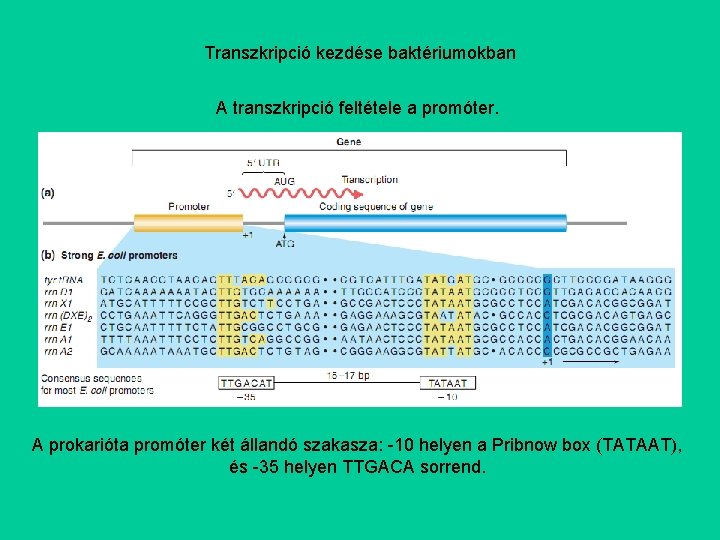
Transzkripció kezdése baktériumokban A transzkripció feltétele a promóter. A prokarióta promóter két állandó szakasza: -10 helyen a Pribnow box (TATAAT), és -35 helyen TTGACA sorrend.
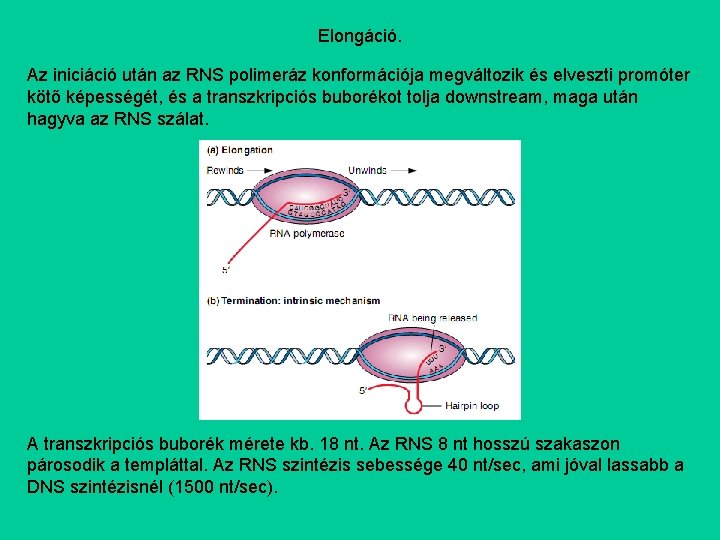
Elongáció. Az iniciáció után az RNS polimeráz konformációja megváltozik és elveszti promóter kötő képességét, és a transzkripciós buborékot tolja downstream, maga után hagyva az RNS szálat. A transzkripciós buborék mérete kb. 18 nt. Az RNS 8 nt hosszú szakaszon párosodik a templáttal. Az RNS szintézis sebessége 40 nt/sec, ami jóval lassabb a DNS szintézisnél (1500 nt/sec).
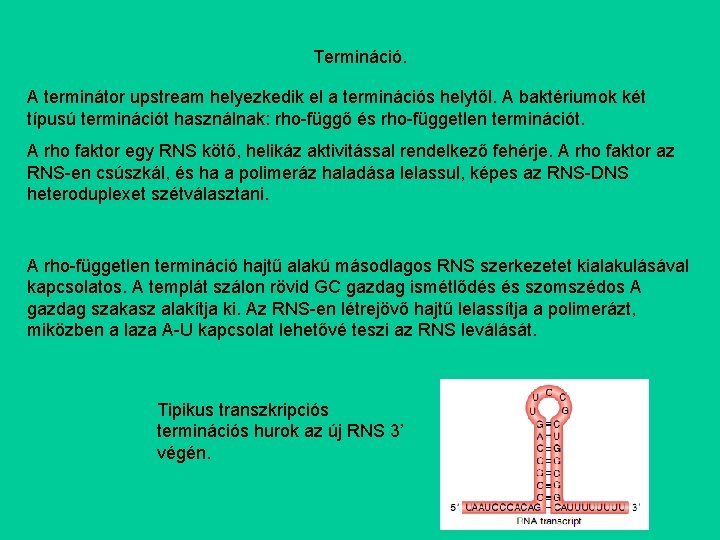
Termináció. A terminátor upstream helyezkedik el a terminációs helytől. A baktériumok két típusú terminációt használnak: rho-függő és rho-független terminációt. A rho faktor egy RNS kötő, helikáz aktivitással rendelkező fehérje. A rho faktor az RNS-en csúszkál, és ha a polimeráz haladása lelassul, képes az RNS-DNS heteroduplexet szétválasztani. A rho-független termináció hajtű alakú másodlagos RNS szerkezetet kialakulásával kapcsolatos. A templát szálon rövid GC gazdag ismétlődés és szomszédos A gazdag szakasz alakítja ki. Az RNS-en létrejövő hajtű lelassítja a polimerázt, miközben a laza A-U kapcsolat lehetővé teszi az RNS leválását. Tipikus transzkripciós terminációs hurok az új RNS 3’ végén.
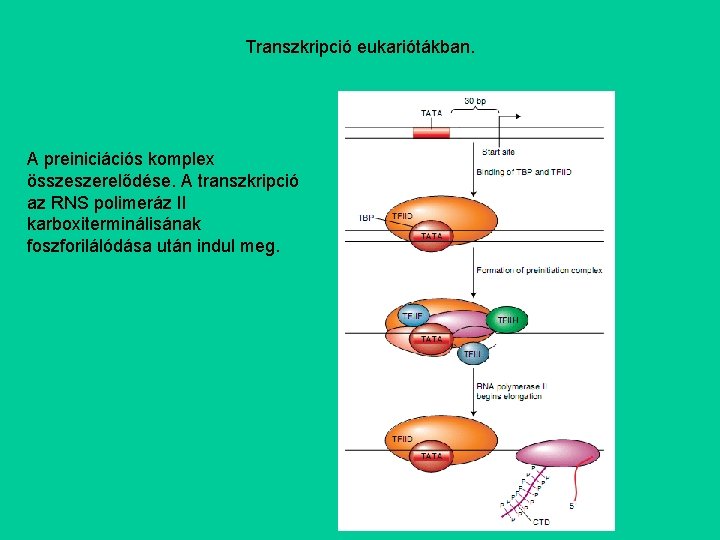
Transzkripció eukariótákban. A preiniciációs komplex összeszerelődése. A transzkripció az RNS polimeráz II karboxiterminálisának foszforilálódása után indul meg.
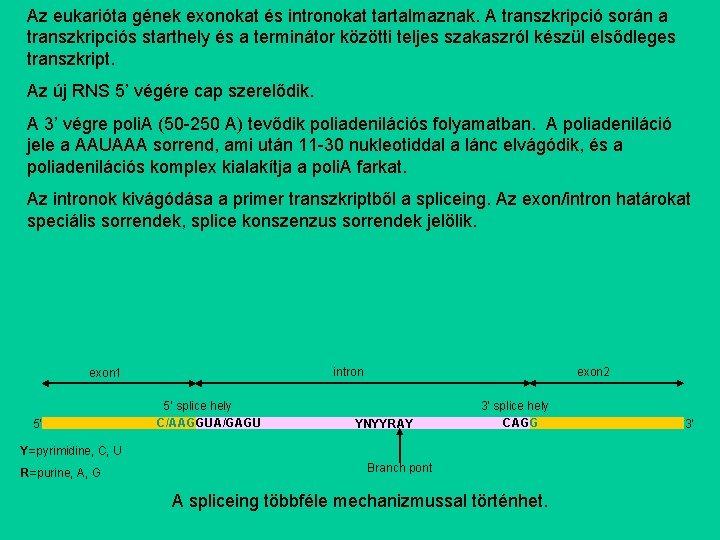
Az eukarióta gének exonokat és intronokat tartalmaznak. A transzkripció során a transzkripciós starthely és a terminátor közötti teljes szakaszról készül elsődleges transzkript. Az új RNS 5’ végére cap szerelődik. A 3’ végre poli. A (50 -250 A) tevődik poliadenilációs folyamatban. A poliadeniláció jele a AAUAAA sorrend, ami után 11 -30 nukleotiddal a lánc elvágódik, és a poliadenilációs komplex kialakítja a poli. A farkat. Az intronok kivágódása a primer transzkriptből a spliceing. Az exon/intron határokat speciális sorrendek, splice konszenzus sorrendek jelölik. intron exon 1 5’ 5’ splice hely C/AAGGUA/GAGU exon 2 YNYYRAY 3’ splice hely CAGG Y=pyrimidine, C, U R=purine, A, G Branch pont A spliceing többféle mechanizmussal történhet. 3’
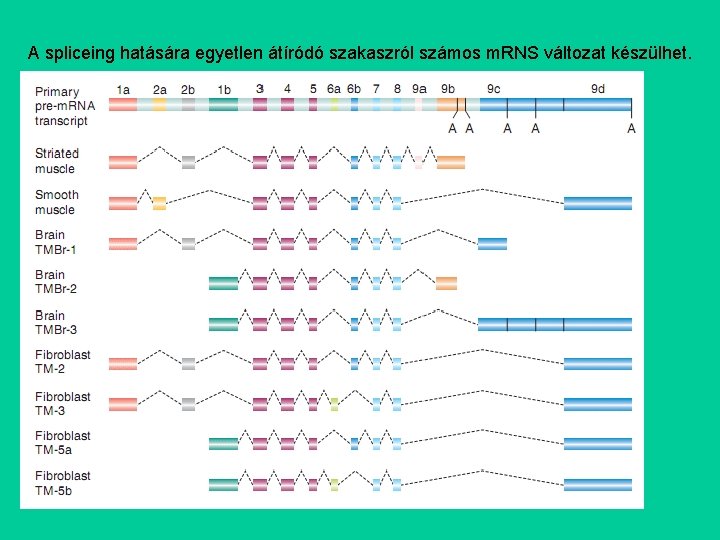
A spliceing hatására egyetlen átíródó szakaszról számos m. RNS változat készülhet.
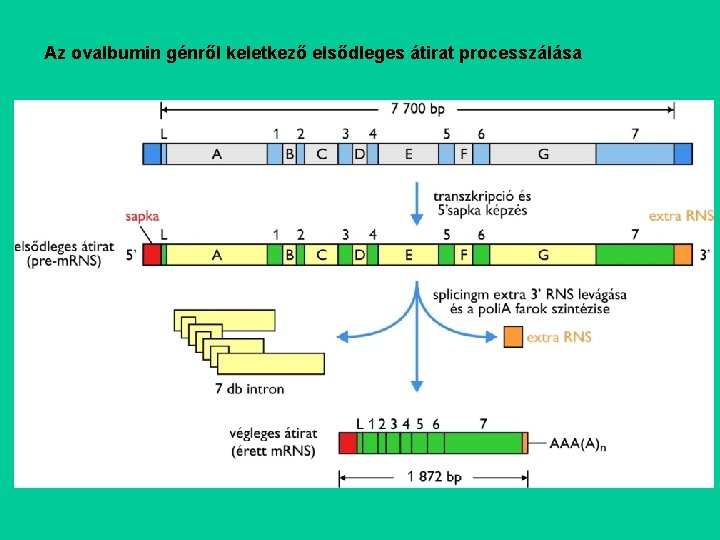
Az ovalbumin génről keletkező elsődleges átirat processzálása
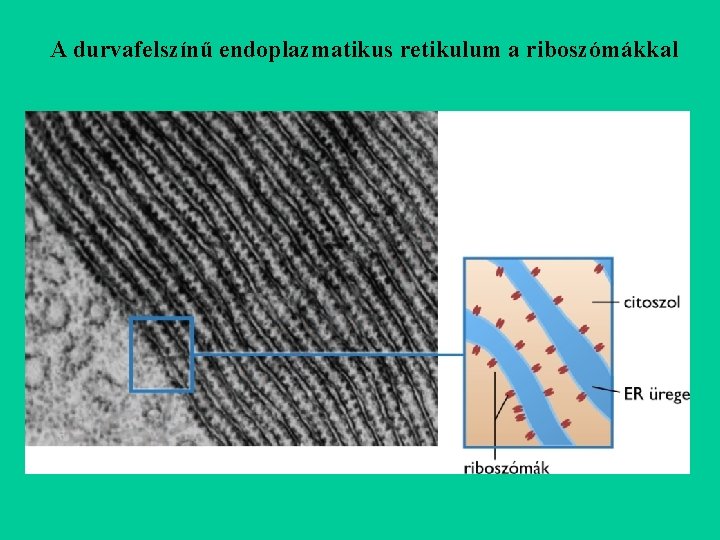
A durvafelszínű endoplazmatikus retikulum a riboszómákkal
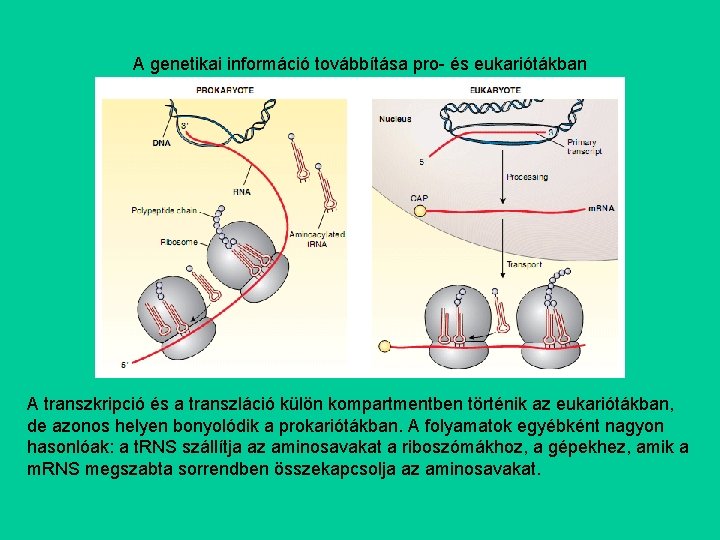
A genetikai információ továbbítása pro- és eukariótákban A transzkripció és a transzláció külön kompartmentben történik az eukariótákban, de azonos helyen bonyolódik a prokariótákban. A folyamatok egyébként nagyon hasonlóak: a t. RNS szállítja az aminosavakat a riboszómákhoz, a gépekhez, amik a m. RNS megszabta sorrendben összekapcsolja az aminosavakat.
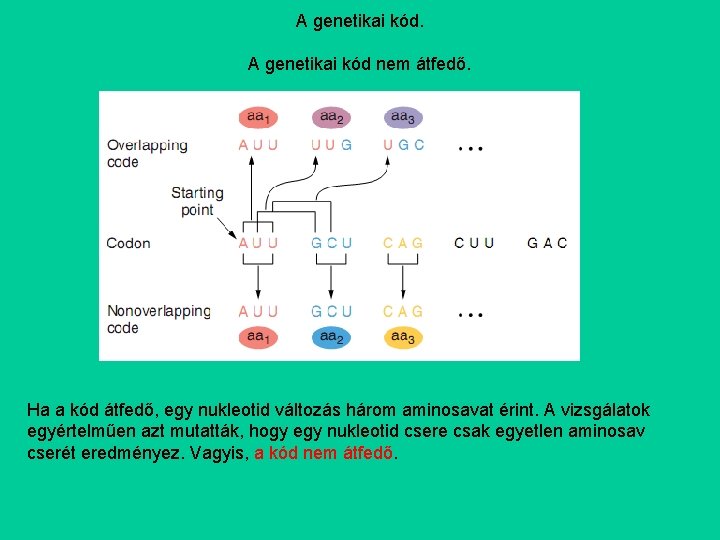
A genetikai kód nem átfedő. Ha a kód átfedő, egy nukleotid változás három aminosavat érint. A vizsgálatok egyértelműen azt mutatták, hogy egy nukleotid csere csak egyetlen aminosav cserét eredményez. Vagyis, a kód nem átfedő.
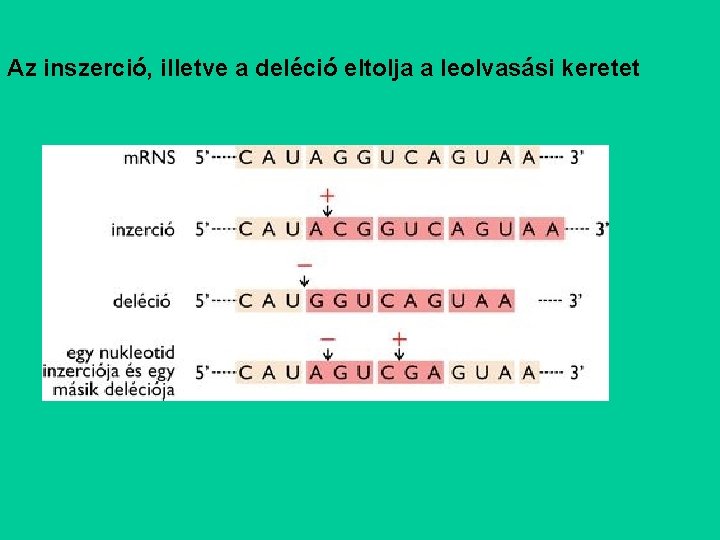
Az inszerció, illetve a deléció eltolja a leolvasási keretet

Hány betűs a kód? Elvi megfontolás: 20 aminosavat kell kódolni 4 nukleotiddal. Egyetlen nukleotid 4, kettő 4 x 4=16, három 4 x 4=64 aminosavat kódolhat. 20 aminosav kódolásához tehát kettőnél több nukleotid kell a kódhoz. A kód triplet voltát a T 4 fág r. II lókuszán igazolták. A proflavin mutagén hatása egyetlen nukleotidpár inszerciójában vagy deléciójában nyilvánul meg. Profavin indukált r. II mutáns (FCO) proflavinnal indukált revertánsa visszanyerte a virulenciát K baktérium törzsön. A revertáns azonban nem minden fenotípusában bizonyult vad típusúnak. Rekombináció segítségével igazolták, hogy a revertáns nem vad típusú, hanem valójában az r. II lókuszban két mutációt hordoz. Az eredeti FCO allél inszerciót, a revertáns az inszercióhoz közel egy deléciót is hordoz.
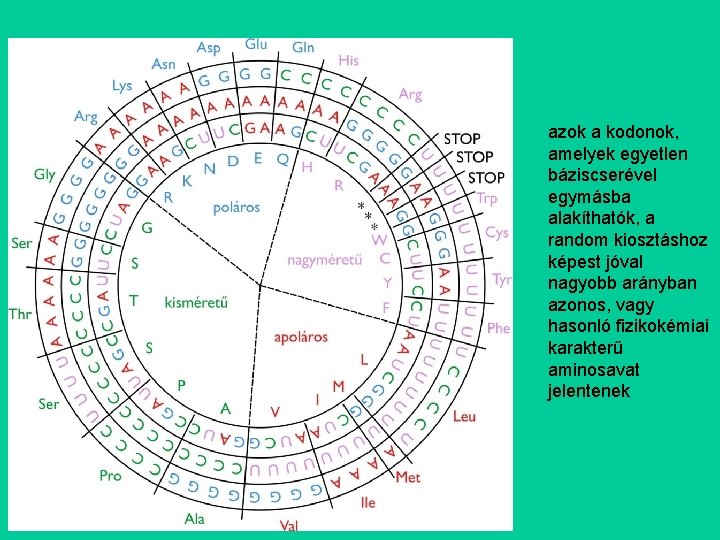
azok a kodonok, amelyek egyetlen báziscserével egymásba alakíthatók, a random kiosztáshoz képest jóval nagyobb arányban azonos, vagy hasonló fizikokémiai karakterű aminosavat jelentenek
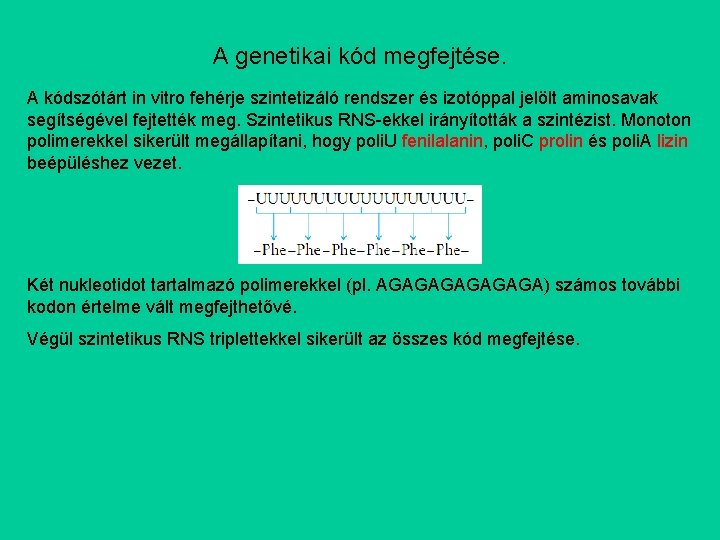
A genetikai kód megfejtése. A kódszótárt in vitro fehérje szintetizáló rendszer és izotóppal jelölt aminosavak segítségével fejtették meg. Szintetikus RNS-ekkel irányították a szintézist. Monoton polimerekkel sikerült megállapítani, hogy poli. U fenilalanin, poli. C prolin és poli. A lizin beépüléshez vezet. Két nukleotidot tartalmazó polimerekkel (pl. AGAGAGA) számos további kodon értelme vált megfejthetővé. Végül szintetikus RNS triplettekkel sikerült az összes kód megfejtése.
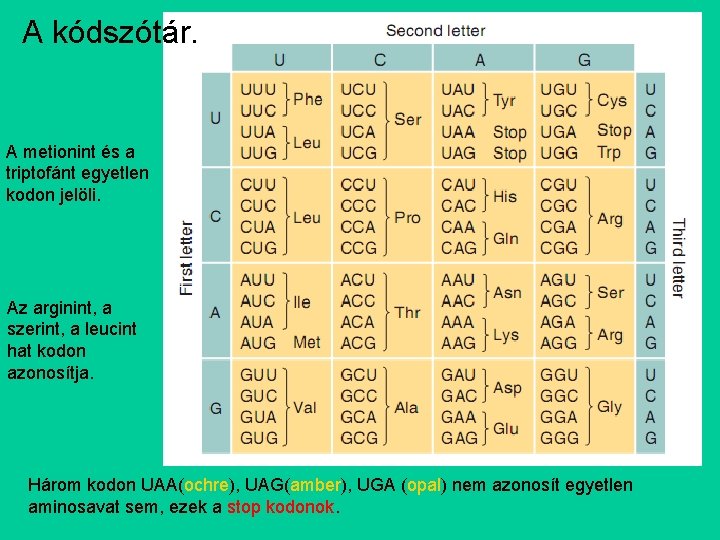
A kódszótár. A metionint és a triptofánt egyetlen kodon jelöli. Az arginint, a szerint, a leucint hat kodon azonosítja. Három kodon UAA(ochre), UAG(amber), UGA (opal) nem azonosít egyetlen aminosavat sem, ezek a stop kodonok.
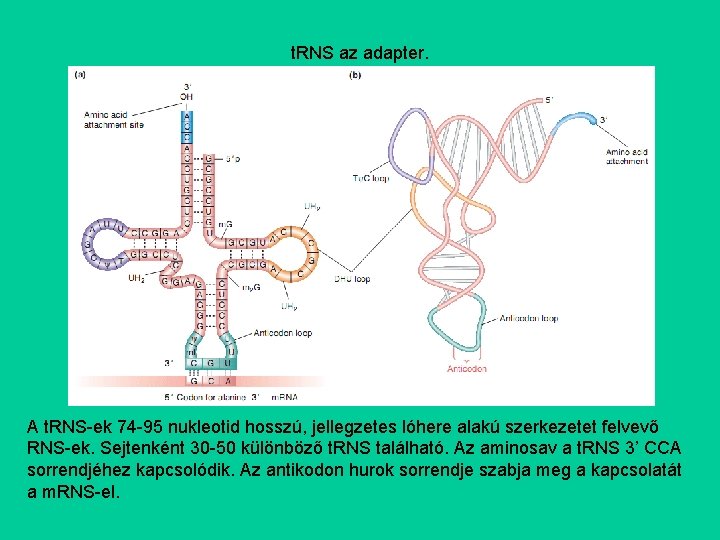
t. RNS az adapter. A t. RNS-ek 74 -95 nukleotid hosszú, jellegzetes lóhere alakú szerkezetet felvevő RNS-ek. Sejtenként 30 -50 különböző t. RNS található. Az aminosav a t. RNS 3’ CCA sorrendjéhez kapcsolódik. Az antikodon hurok sorrendje szabja meg a kapcsolatát a m. RNS-el.
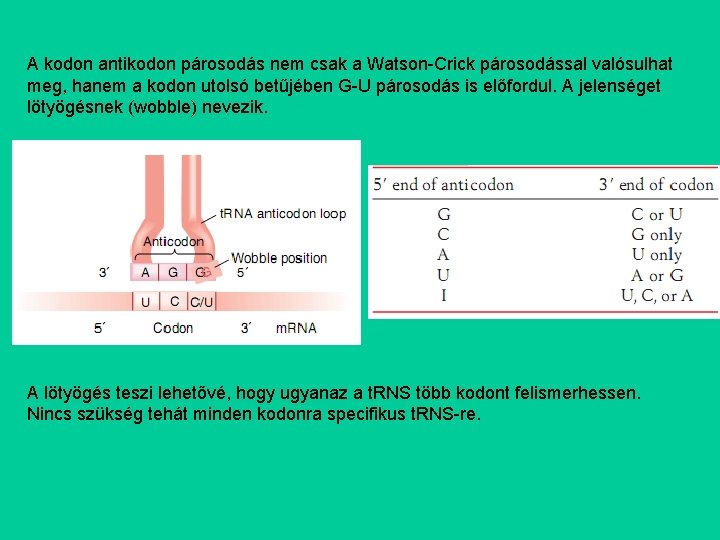
A kodon antikodon párosodás nem csak a Watson-Crick párosodással valósulhat meg, hanem a kodon utolsó betűjében G-U párosodás is előfordul. A jelenséget lötyögésnek (wobble) nevezik. A lötyögés teszi lehetővé, hogy ugyanaz a t. RNS több kodont felismerhessen. Nincs szükség tehát minden kodonra specifikus t. RNS-re.
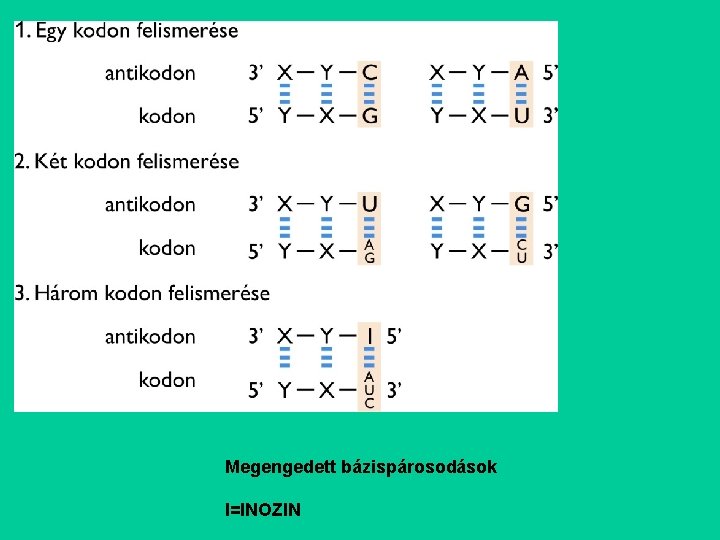
Megengedett bázispárosodások I=INOZIN
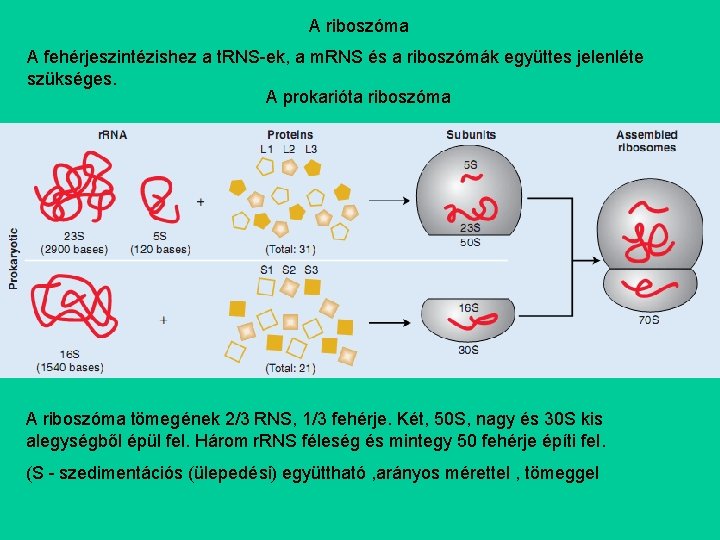
A riboszóma A fehérjeszintézishez a t. RNS-ek, a m. RNS és a riboszómák együttes jelenléte szükséges. A prokarióta riboszóma A riboszóma tömegének 2/3 RNS, 1/3 fehérje. Két, 50 S, nagy és 30 S kis alegységből épül fel. Három r. RNS féleség és mintegy 50 fehérje építi fel. (S - szedimentációs (ülepedési) együttható , arányos mérettel , tömeggel
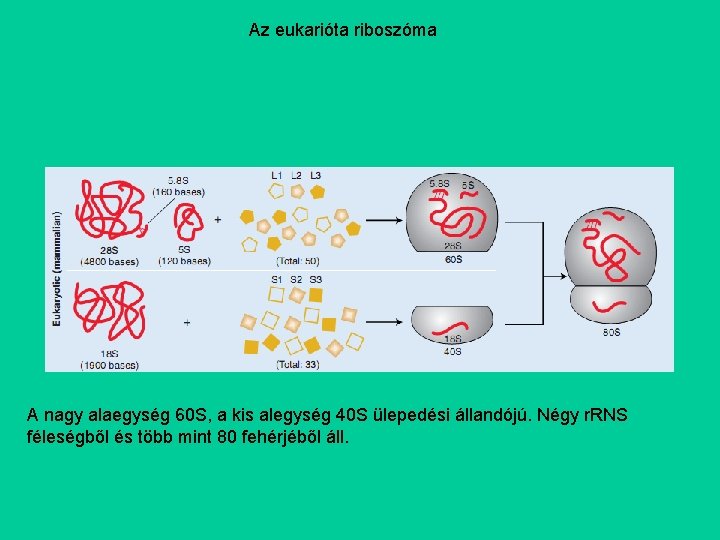
Az eukarióta riboszóma A nagy alaegység 60 S, a kis alegység 40 S ülepedési állandójú. Négy r. RNS féleségből és több mint 80 fehérjéből áll.
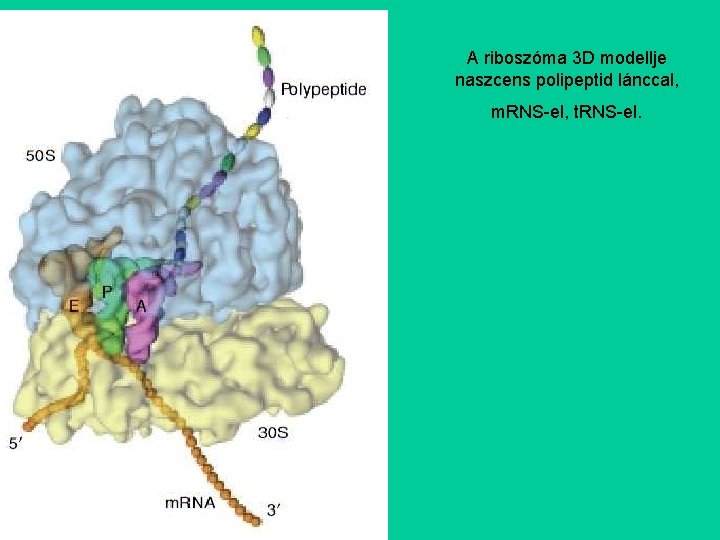
A riboszóma 3 D modellje naszcens polipeptid lánccal, m. RNS-el, t. RNS-el.
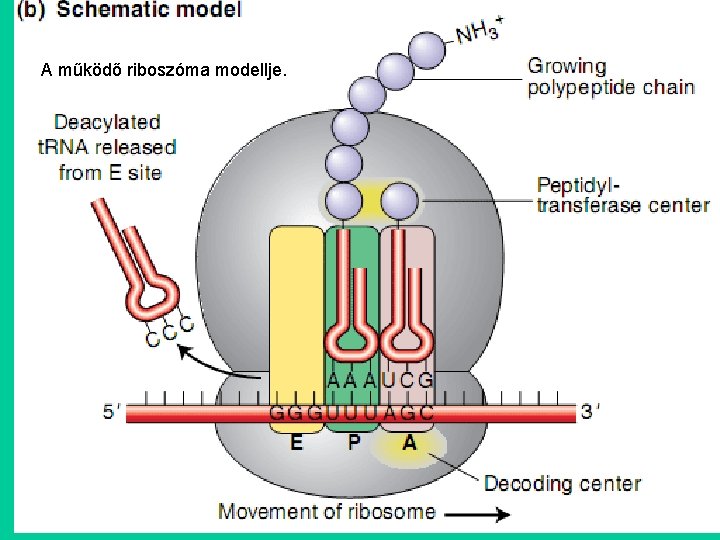
A működő riboszóma modellje.
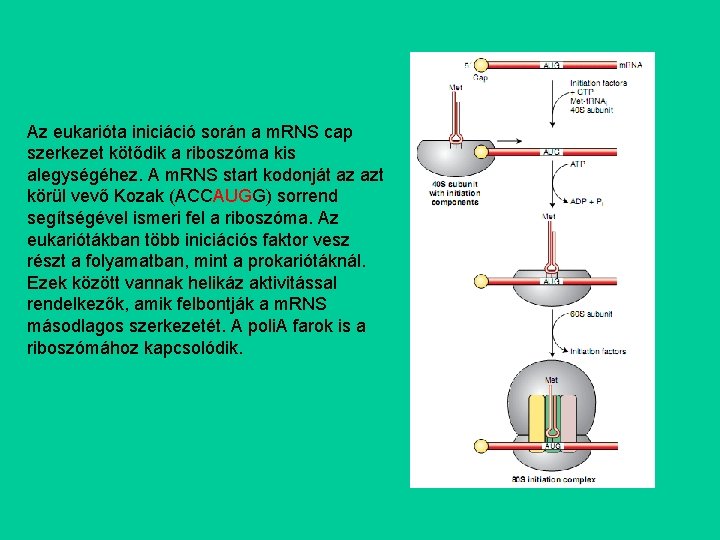
Az eukarióta iniciáció során a m. RNS cap szerkezet kötődik a riboszóma kis alegységéhez. A m. RNS start kodonját az azt körül vevő Kozak (ACCAUGG) sorrend segítségével ismeri fel a riboszóma. Az eukariótákban több iniciációs faktor vesz részt a folyamatban, mint a prokariótáknál. Ezek között vannak helikáz aktivitással rendelkezők, amik felbontják a m. RNS másodlagos szerkezetét. A poli. A farok is a riboszómához kapcsolódik.
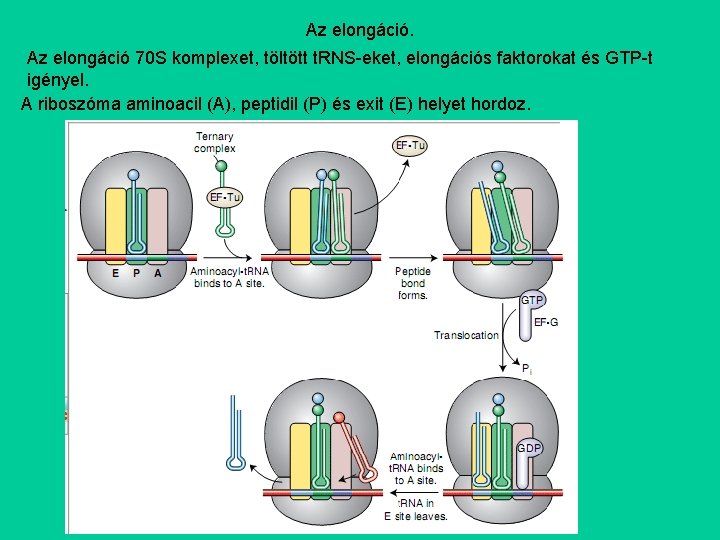
Az elongáció 70 S komplexet, töltött t. RNS-eket, elongációs faktorokat és GTP-t igényel. A riboszóma aminoacil (A), peptidil (P) és exit (E) helyet hordoz.
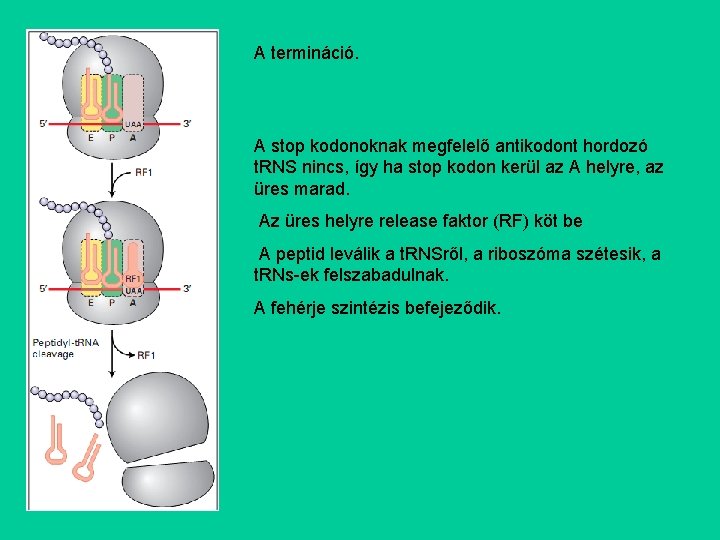
A termináció. A stop kodonoknak megfelelő antikodont hordozó t. RNS nincs, így ha stop kodon kerül az A helyre, az üres marad. Az üres helyre release faktor (RF) köt be A peptid leválik a t. RNSről, a riboszóma szétesik, a t. RNs-ek felszabadulnak. A fehérje szintézis befejeződik.
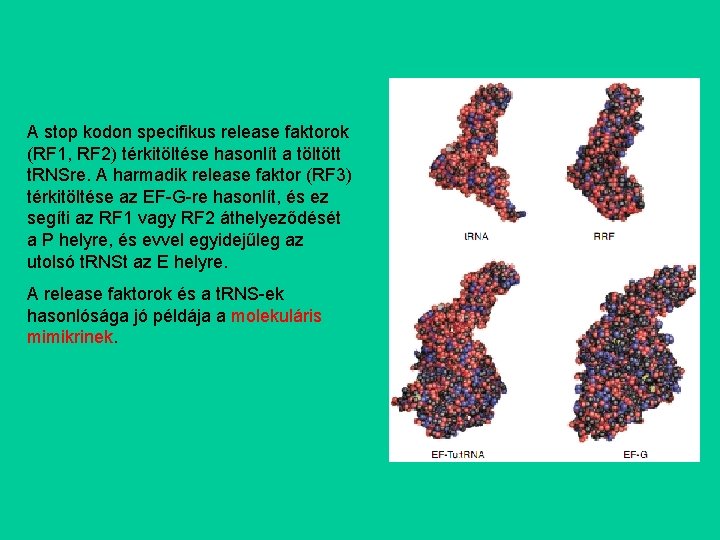
A stop kodon specifikus release faktorok (RF 1, RF 2) térkitöltése hasonlít a töltött t. RNSre. A harmadik release faktor (RF 3) térkitöltése az EF-G-re hasonlít, és ez segíti az RF 1 vagy RF 2 áthelyeződését a P helyre, és evvel egyidejűleg az utolsó t. RNSt az E helyre. A release faktorok és a t. RNS-ek hasonlósága jó példája a molekuláris mimikrinek.
Fehérjék transzláció utáni módosítása. A baktérium fehérjék első, formil-metioninja lecsípődik. Más fehérjék feldarabolódnak. Számos fehérje aktív konformációjának kialakításához segéd, dajka fehérjék szükségesek. Az eukarióták fehérjéinek egy része acetilálódik. A szekretált fehérjék N terminális végén 15 -20 aminosav hosszú szakasz, az un szignál peptid levágódik A szignál sorrend segíti a szintézis során, hogy a fehérje az endoplazmatikus retikulumba jusson.
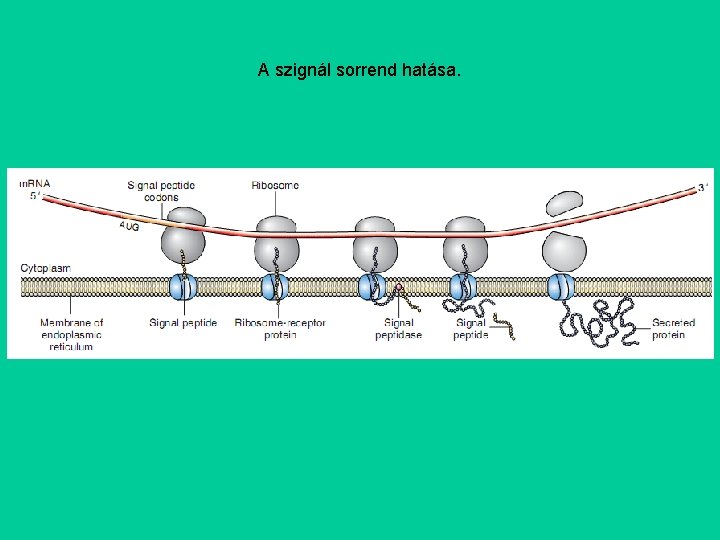
A szignál sorrend hatása.
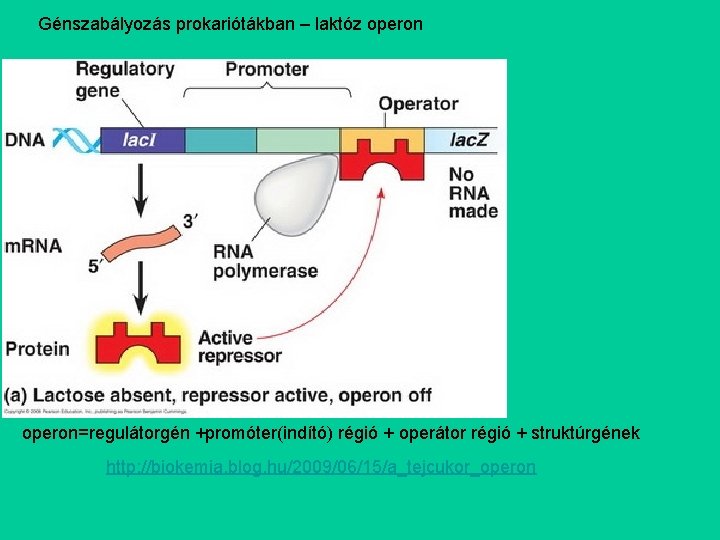
Génszabályozás prokariótákban – laktóz operon=regulátorgén +promóter(indító) régió + operátor régió + struktúrgének http: //biokemia. blog. hu/2009/06/15/a_tejcukor_operon
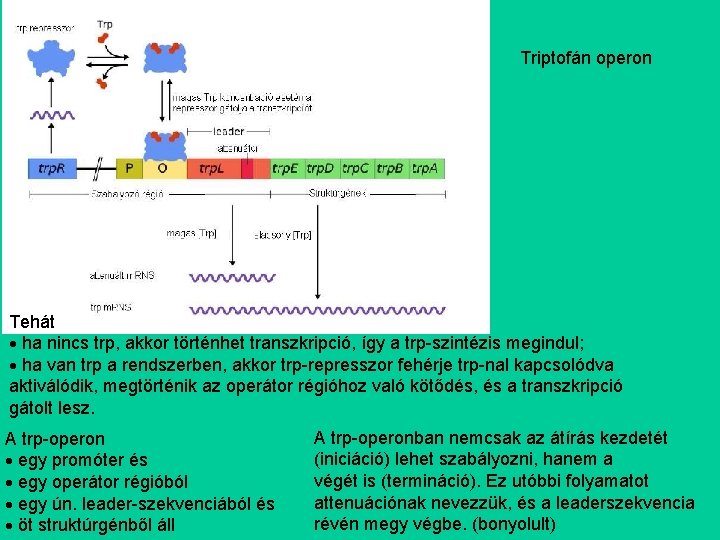
Triptofán operon Tehát · ha nincs trp, akkor történhet transzkripció, így a trp-szintézis megindul; · ha van trp a rendszerben, akkor trp-represszor fehérje trp-nal kapcsolódva aktiválódik, megtörténik az operátor régióhoz való kötődés, és a transzkripció gátolt lesz. A trp-operon · egy promóter és · egy operátor régióból · egy ún. leader-szekvenciából és · öt struktúrgénből áll A trp-operonban nemcsak az átírás kezdetét (iniciáció) lehet szabályozni, hanem a végét is (termináció). Ez utóbbi folyamatot attenuációnak nevezzük, és a leaderszekvencia révén megy végbe. (bonyolult)
https: //www. youtube. com/watch? v=ihjjxm. P 85 a. Q https: //www. youtube. com/watch? v=5 b. LEDd-PSTQ https: //www. youtube. com/watch? v=g. G 7 u. Csk. UOr. A https: //www. youtube. com/watch? v=D 3 f. OXt 4 Mr. OM https: //www. youtube. com/watch? v=Ikq 9 Ac. Bcoh. A https: //www. youtube. com/watch? v=o 0 BQJb. LNYSg intron https: //www. youtube. com/watch? v=Ygmo. Ht. LGb 5 c https: //www. youtube. com/watch? v=d. Kuby. IRi. N 84 https: //www. youtube. com/watch? v=rd. F 3 mny. S 1 p 0 mitokondrium
- Slides: 54